Ten zmodyfikowany protokół ekstrakcji poprawia wydajność RNA i DNA z bardziej precyzyjnie wybranych obszarów zainteresowania w histopatologicznych blokach tkankowych.
Artykuł metodologiczny
Przygotowanie utrwalonych w formalinie rdzeni tkankowych zatopionych w parafinie do ekstrakcji RNA i DNA
W tym artykule
Podsumowanie
Streszczenie
Tkanka osadzona w parafinie utrwalona w formalinie (FFPET) stanowi cenny, dobrze opisany substrat do badań molekularnych. Przydatność FFPET w analizie molekularnej jest skomplikowana zarówno ze względu na niejednorodny skład tkanki, jak i niską wydajność podczas ekstrakcji kwasów nukleinowych. Przegląd literatury ujawnił niedostatek protokołów rozwiązujących te problemy i żadnego, który wykazałby zweryfikowaną metodę jednoczesnej ekstrakcji RNA i DNA z regionów będących przedmiotem zainteresowania FFPET. Ta metoda rozwiązuje oba problemy. Specyficzność tkankową uzyskano poprzez mapowanie obszarów zainteresowania nowotworu na szkiełkach mikroskopowych i przenoszenie adnotacji na bloki FFPET. Rdzenie tkanek pobrano z obszarów zainteresowania za pomocą stempli do mikromacierzy 0,6 mm. Ekstrakcję kwasów nukleinowych przeprowadzono przy użyciu komercyjnego systemu ekstrakcji FFPET, z modyfikacjami etapów homogenizacji, deparafinowania i trawienia proteinazy K w celu poprawy trawienia tkanek i zwiększenia wydajności kwasów nukleinowych. Zmodyfikowany protokół zapewnia wystarczającą ilość i jakość kwasów nukleinowych do wykorzystania w wielu dalszych analizach, w tym w wieloanalitowej platformie ekspresji genów, a także w analizie ekspresji mRNA PCR w czasie rzeczywistym sprzężonej z odwrotną transkryptazą oraz analizie metylacji DNA metodą PCR specyficzną dla metylacji (MSP).
Wprowadzenie
Badania nad biomarkerami genomicznymi mają na celu zidentyfikowanie molekularnych korelatów, które dokładnie i niezawodnie odzwierciedlają stan choroby, i robią to w klinicznie użyteczny sposób. 1 Opracowanie biomarkerów opiera się na retrospektywnej analizie dobrze opisanych próbek tkanek. Chore i normalne próbki tkanek są przechowywane jako świeżo zamrożone tkanki w specjalistycznych biobankach lub jako bloki tkanek zatopionych w parafinie (FFPET) w archiwach klinicznych. Świeżo zamrożona tkanka pozwala na ekstrakcję wysokiej jakości kwasów nukleinowych i jest szeroko stosowana w badaniach nad odkrywaniem biomarkerów genomowych. Jednak w biobankach dostępnych jest mniej próbek tkanek, a badanie takich tkanek wprowadza skłonność do większych próbek, nietypowych kategorii chorób i pacjentów przyjmowanych w wyspecjalizowanych ośrodkach o większych możliwościach bankowania tkanek. 4 Z kolei FFPET jest domyślną metodą przechowywania chorych tkanek ludzkich i zwierzęcych. Podczas gdy bloki FFPET utrzymują morfologię komórkową, proces wiązania łączy inne składniki komórkowe z kwasami nukleinowymi. Usieciowane RNA i DNA są odzyskiwalne, ale tylko w zdegradowanych, wysoce rozdrobnionych formach. 5,6 Jednak te fragmenty DNA i RNA są podatne na analizę za pomocą rozszerzającego się wachlarza testów, w tym ekspresji mRNA, hipermetylacji DNA i sekwencjonowania celowanego. 7,8 pkt.Aby wykorzystać tę szansę w dużej ilości i różnorodności FFPET dostępnych do badań, potrzebny jest wydajny i niezawodny protokół ekstrakcji.
Duża część badań nad biomarkerami w tkankach koncentruje się na raku. Podobnie jak inne rodzaje chorych tkanek, tkanka nowotworowa często wykazuje znaczną regionalną heterogeniczność w zachowaniu komórek i typie komórki. Ponieważ badania nad biomarkerami opierają się na zdolności do korelowania składników chorej tkanki z cechami molekularnymi, kluczowym etapem tego procesu jest precyzyjne pobranie tkanki, która jest dobrze zachowana i wzbogacona dla badanej choroby. W FFPET często stosuje się dwie techniki wzbogacania: mikrodysekcję wychwytu laserowego (LCM) i cięcie mikrotomowe. LCM umożliwia wysoce skoncentrowane pobieranie tkanek i może być stosowany do izolowania określonych, dobrze zachowanych typów komórek w tkankach heterogenicznych. 9,10 LCM wymaga jednak drogiego sprzętu i jest zbyt czasochłonny w przypadku dużej liczby próbek. Cięcie mikrotomów jest szerzej stosowanym procesem, w którym cienkie sekcje są wycinane z bloków FFPET. 11,12 Skrawki wycinane mikrotomem często zawierają tkankę, która jest niejednorodna pod względem zachowania komórek (np. martwicza vs. dobrze zachowana) i składu (np. rak vs. łagodny miąższ), a zatem może prowadzić do homogenizacji cech molekularnych, które najlepiej badać oddzielnie. W związku z tym istnieje zapotrzebowanie na metodę o wysokiej przepustowości, która wzbogaca komórki będące przedmiotem zainteresowania. Trzecia metoda, izolacja kwasów nukleinowych z rdzeni FFPET, zapewnia to wzbogacenie, jest odpowiednia dla protokołów o wysokiej przepustowości i była stosowana przez innych do izolowania RNA lub DNA z oddzielnych rdzeni tkankowych. 7,13,14
Wiele opublikowanych protokołów określa metody ekstrakcji kwasów nukleinowych z FFPET (Tabela 1). Jednak protokoły, w których RNA i DNA są ekstrahowane z tej samej tkanki, zostały zoptymalizowane pod kątem skrawków tkanek mikrotomu, ale nie dla rdzeni tkanek. 15,16 Podobnie, opublikowane protokoły, które oferują zwiększoną specyficzność tkankową, czy to poprzez rdzenie tkankowe, czy mikrodysekcje szkiełkowe, określają procedury ekstrakcji DNA, ale nie RNA. 7,17 W tym miejscu zademonstrowano zoptymalizowany protokół podwójnej ekstrakcji zarówno DNA, jak i RNA z tego samego rdzenia tkankowego. Rdzenie tkanek są pobierane poprzez wprowadzenie stempli mikromacierzy tkankowej (TMA) do obszarów zainteresowania zmapowanych na blokach FFPET. Mapowanie odbywa się poprzez opisanie szkiełka mikroskopowego markerem i przeniesienie adnotacji na powierzchnię odpowiedniego bloku FFPET (rysunek 1).
Wcześniejsze prace, które doprowadziły do opracowania tego protokołu, obejmowały porównanie kilku dostępnych na rynku systemów ekstrakcji kwasów nukleinowych. W tym porównaniu modyfikacje protokołów komercyjnych, jak opisano poniżej, zapewniły najwyższą wydajność i jakość DNA i RNA (Selvarajah i wsp., In Prep). Rdzenie tkanek są grubsze niż skrawki 5-10 μm mikronów zwykle stosowane w protokołach ekstrakcji FFPET11,12,14,18-20 i mogą zawierać bardziej zmienne ilości parafiny. Aby to skompensować, deparafinowanie zostało wzmocnione przez powtórzenie obróbki ksylenem i etanolem oraz przez wprowadzenie etapu homogenizacji zmotoryzowanej (ryc. 1). Co więcej, czas trawienia proteinazy K został wydłużony w celu zwiększenia wydajności DNA. Ogólnie rzecz biorąc, protokół ten jest opłacalny i umożliwia ustalenie powiązań między molekularnymi i histopatologicznymi cechami choroby w dużych, dobrze scharakteryzowanych populacjach. Protokół w całości można przeprowadzić niezawodnie w ciągu 2 dni, w tym 3 godziny czasu pracy, przy niewielkim zapotrzebowaniu na specjalistyczny lub drogi sprzęt.
Protokół krok po kroku jest dalej zmodyfikowaną wersją protokołu producenta. 21 Proszę zapoznać się z Tabelą materiałów/sprzętu, aby zapoznać się z konkretnymi odczynnikami, sprzętem i producentami.
Protokół
1. Rdzeniowanie tkanek
- Przejrzyj szkiełko mikroskopowe i obrysuj obszar (obszary) zainteresowania za pomocą markera permanentnego o cienkim punkcie. Wytnij fragment filmu parafinowego wystarczająco duży, aby pokryć obszar zainteresowania na szkiełku mikroskopowym. Umieść folię mocno na szkiełku i owiń folię na krawędziach, aby folia się nie ślizgała. Za pomocą markera permanentnego z drobnym punktem obrysuj całą tkankę i obszar (obszary) zainteresowania w tkance, tak aby kontur dotykał – ale poza – obszarem (obszarami).
- Usuń folię i przenieś ją do odpowiedniego bloku tkanki. Zorientuj folię, odwracając ją lub obracając tak, aby kontur całej tkanki odpowiadał obserwowanemu kształtowi tkanki w bloku (ryc. 1). Mocno dociśnij odcinek folii do powierzchni bloku, aby zapobiec poślizgowi.
- Za pomocą końcówki markera permanentnego wykonaj płytkie, ale widoczne (~0,2 mm) wgłębienia wzdłuż konturu obszaru (obszarów) zainteresowania, a następnie usuń film. Załaduj 1 ml wybielacza, 70% etanolu i wody do oddzielnych probówek mikrowirówek o pojemności 1,5 lub 2,0 ml.
- Oczyść stempel receptorowy (czerwony) z zestawu dziurkacza 0,6 mm, przesuwając stempel kilka razy w górę i w dół, podczas gdy końcówka jest zanurzona w probówce zawierającej wybielacz. Powtórz powyższy krok z 70% etanolem, a następnie wodą (krytyczne, aby upewnić się, że wybielacz został usunięty).
- Wciśnij stempel w tkankę, wewnątrz obszaru zainteresowania na głębokość 3 mm i wycofaj stempel. Uwolnij rdzeń do probówki o niskim oprawie 1,5 lub 2 ml, wypychając go z stempla za pomocą rysika. Przechowuj rdzenie w temperaturze -20 °C (długotrwale) lub 4 °C do krótkotrwałego użytkowania.
- Oczyść stempel zgodnie z krokiem 1.4 i kontynuuj z następnymi obszarami lub próbką.
2. Deparafinizacja rdzeni tkankowych FFPE
- Przeprowadzić deparafinowanie w probówkach o pojemności 1,5 lub 2 ml, dodając 1 ml ksylenu do rdzenia tkanki i energicznie wirując przez 10 sekund. Podgrzewać przez 3 minuty w temperaturze 50 °C.
- Wirować przez 2 minuty w temperaturze pokojowej (RT) i maksymalnej prędkości (21 130 x g) i umieścić probówkę na lodzie na 5 minut (pozwala na zestalenie się woskowej pozostałości na wierzchu).
- Ostrożnie usunąć parafinę nagromadzoną wokół łąkotki za pomocą supernatantu za pomocą końcówki pipety i powtórzyć zabieg ksylenem (kroki 2.1-2.2).
- Dodać 1 ml etanolu (100%) i energicznie wirować przez 10 sekund. Wirować przez 2 minuty przy RT (maksymalna prędkość) i ostrożnie wyrzucić etanol. Powtórz powyższy krok raz.
3. Homogenizacja rdzeni odparafinowanych
- Ponownie zawiesić rdzenie w 700 μl etanolu (100%) przed homogenizacją. Za pomocą zmotoryzowanego homogenizatora tkanek zmiel rdzenie na drobne cząstki tkanek (~1 min na średnim ustawieniu). Wyczyść sondę homogenizatora między każdą próbką, aby zminimalizować przenoszenie zanieczyszczeń.
- Napełnij probówki o pojemności 15 ml ~10 ml wybielacza, roztworu neutralizującego RNazę i 70% etanolu. Po homogenizacji próbki umyć sondę homogenizatora w każdym z roztworów czyszczących w podanej powyżej kolejności. Uruchom homogenizator na najwyższych obrotach podczas etapu mycia.
- Wytrzyj sondę chusteczką i pozostaw sondę do całkowitego wyschnięcia przed homogenizacją następnej próbki. Sprawdź wzrokowo ostrza sondy pod kątem resztek tkanek. Jeśli zostanie znaleziona, ponownie wyczyść sondę. Codziennie zmieniaj roztwory czyszczące (wybielacz, etanol i roztwór neutralizujący RNazę).
- Po homogenizacji doprowadzić objętość próbki do 1 ml, dodając więcej 100% etanolu (~300 μl). Wirować z maksymalną prędkością przez 15 minut, ostrożnie zasysać etanol i suche na powietrzu granulki przez około 15-20 minut przed przystąpieniem do ekstrakcji RNA.
4. Trawienie z Proteinazą K
- Ponownie zawiesić osad w 150 μl bufora do wytrawiania proteinazy K i przesunąć rurkę, aby poluzować osad. Dodać 10 μl stabilnej temperaturowo proteinazy K i wymieszać przez trzebanie (nie obracać probówki). Inkubować zawartość w probówce w temperaturze 56 °C przez 15 minut, lekko mieszając.
- Pozostaw probówkę do inkubacji na lodzie przez 3 minuty. Całkowite schłodzenie jest ważne dla skutecznego wytrącania w następnym kroku. Wirować przez 15 minut z maksymalną prędkością.
5. Oddziel RNA od DNA
- Ostrożnie przenieść supernatant, nie naruszając osadu, do nowego 1,5 ml w celu oczyszczenia RNA.
- Przechowuj osad do oczyszczenia DNA (osad można przechowywać przez 2 godziny w temperaturze pokojowej, do 1 dnia w temperaturze 2-8 °C lub przez dłuższy czas w temperaturze -20 °C).
6. Oczyszczanie RNA
- Inkubować supernatant zawierający RNA w temperaturze 80 °C przez 15 minut (nie przekraczać tego czasu). Następnie krótko odwiruj probówkę, aby zebrać krople z wnętrza pokrywki.
- Dodać 320 μl buforu RLT, aby dostosować warunki wiązania, i wymieszać przez pipetowanie. Następnie dodaj 720 μl etanolu (100%) i wiruj.
- Przenieść 600 μl próbki, łącznie z osadem, który mógł się utworzyć, do kolumny wirowej RNA (dostarczonej w zestawie) umieszczonej w probówce zbiorczej o pojemności 2 ml i odłożyć pozostałą zawartość. Wirować przez 15 sekund przy ≥8 000 x g, wyrzucić przepływowy płyn i ponownie użyć probówki zbiorczej.
- Przenieść pozostałą próbkę do kolumny, w tym kropelki, które mogły nagromadzić się w pokrywie probówki, odwirować przez 15 sekund przy ≥8 000 x g i odrzucić przepływ.
- Dodać 350 μl buforu FRN do kolumny wirowej i wirować przez 15 sekund przy ≥8 000 x g, wyrzucić probówkę przepływową i ponownie użyć.
- Delikatnie wymieszać 10 μl roztworu podstawowego DNazy I z 70 μl buforu RDD, dodać bezpośrednio do membrany kolumny wirowej i inkubować w temperaturze pokojowej przez 15 minut.
- Dodać 500 μl buforu FRN do kolumny wirowej, wirować przez 15 sekund przy ≥8 000 x g i zachować przepływ do wykorzystania w następnym kroku. Aby zwiększyć odzysk małych RNA, umieść kolumnę wirową w nowej probówce zbiorczej o pojemności 2 ml i zastosuj przepływ z poprzedniego kroku do kolumny wirowej.
- Wirować przez 15 sekund przy ≥8 000 x g, wyrzucić przepływowy płyn i ponownie użyć probówki zbiorczej w następnym kroku. Dodać 500 μl buforu RPE do kolumny wirowej i wirować przez 15 sekund przy ≥8 000 x g, wyrzucić przepływ i ponownie użyć probówki zbiorczej w następnym kroku.
- Dodać 500 μl buforu RPE do kolumny wirowej i wirować przez 15 sekund przy ≥8 000 x g i wyrzucić probówkę zbiorczą z przepływem.
- Umieścić kolumnę wirową w nowej probówce zbiorczej o pojemności 2 ml, otworzyć pokrywę i wirować z maksymalną prędkością przez 5 minut. Wyrzucić probówkę zbiorczą z przepływem.
- Umieść kolumnę wirową w nowej kolekcji o pojemności 1,5 ml, dodaj 20 μl wody wolnej od RNaz bezpośrednio na membranę kolumny wirującej i inkubuj probówkę przez 1 minutę w temperaturze pokojowej. Wiruj z maksymalną prędkością przez 1 minutę, aby wymyć RNA. Przechowywać eluowaną próbkę RNA w temperaturze -80 °C.
7. Oczyszczanie DNA
- Zawiesić osad otrzymany podczas ekstrakcji RNA przez stopniowe dodawanie 45 μl buforu proteinazy K (400 mM Tris 7,5, 400 mM NaCl, 3 mM MgCl2, 4% SDS); 45 μlH2O; i 400 μg proteinazy K o wysokiej mocy.
- Inkubować powyższy roztwór w temperaturze 56 °C przez 24 godziny (zalecane) lub przez noc. Przeprowadzić inkubację w temperaturze 90 °C przez 2 godziny bez mieszania i krótko odwirować probówkę do mikrowirówki w celu zebrania kropli z wnętrza pokrywy.
- Pozostawić próbkę do ostygnięcia do temperatury pokojowej, a następnie dodać 4 μl RNazy A (100 mg/ml). Inkubować próbkę przez 2 minuty w temperaturze pokojowej.
- Dodać 200 μl buforu AL do próbki i dokładnie wymieszać przez wirowanie. Następnie dodaj 200 μl 100% etanolu i dokładnie wymieszaj, wirując. Przenieść całą próbkę do dostarczonej kolumny wirowej, umieścić w probówce zbiorczej o pojemności 2 ml i wirować przez 1 minutę przy ≥8 000 x g.
- Wyrzuć probówkę zbiorczą z przepływem i umieść kolumnę wirową w nowej probówce zbiorczej o pojemności 2 ml. Dodać 700 μl buforu AW1 do kolumny wirowej, wirować przez 15 sekund przy ≥8 000 x g, wyrzucić przepływ i ponownie użyć probówki zbiorczej.
- Dodać 700 μl buforu AW2 do kolumny wirowej, wirować przez 15 sekund przy ≥8 000 x g, wyrzucić przepływowy płyn i ponownie użyć probówki zbiorczej. Następnie dodać 700 μl 100% etanolu do kolumny wirowej, odwirować przez 15 sekund przy ≥8 000 x g i wyrzucić probówkę zbiorczą z przepływem.
- Umieść kolumnę wirową w nowej probówce zbiorczej o pojemności 2 ml, otwórz pokrywę kolumny wirującej i wiruj z pełną prędkością przez 5 minut. Wyrzuć probówkę zbiorczą z przepływem.
- Umieścić kolumnę wirową w nowej probówce zbiorczej o pojemności 1,5 ml i dodać 25 μl podgrzanej wody wolnej od nukleaz (50 °C). Inkubować kolumnę i probówkę w temperaturze 50 °C przez 10 minut. Wirować przez 1 minutę z maksymalną prędkością, dodać 25 μl wody wolnej od nukleaz (RT) do kolumny i inkubować przez 1 minutę w temperaturze suchej masy.
- Wirować przez 1 minutę z maksymalną prędkością (21,130 x g) i zbierać przez przepływowy zbiór zawierający genomowe DNA (łącznie około 50 μl DNA). Przechowywać kolumnę w temperaturze -20 °C (na wypadek, gdyby później wymagana była kolejna elucja).
Wyniki
Niniejszy protokół przedstawia zoptymalizowaną metodę odzyskiwania DNA i RNA z rdzeni tkankowych, z wykorzystaniem modyfikacji komercyjnego systemu ekstrakcji przeznaczonego dla przekrojów tkankowych. Optymalizacja obejmowała wprowadzenie homogenizacji tkanek, zastosowanie silniejszej Proteinazy K do ekstrakcji DNA oraz wydłużenie czasu trawienia tkanki. Wykresy i analizy statystyczne obejmowały dwuczynnikową analizę wariancji (2-way ANOVA), regresję liniową oraz korelację.
Optymalizacja trawienia proteinazą
Komercyjny zestaw zawierał stabilny w temperaturze pokojowej roztwór proteinazy K, który zastąpiono silniejszą proteinazą K, co zaowocowało wyższą wydajnością pozyskiwania DNA (Rysunek 2A). Aby dodatkowo zwiększyć wydajność DNA, czas trawienia przedłużono z 2 do 24 h. Nie stwierdzono istotnych różnic między tymi dwoma punktami czasowymi, jednak trawienie trwające 24 h wydawało się zapewniać bardziej spójne wyniki we wszystkich próbkach. Natomiast dalsza inkubacja do 48 h nie przyniosła już poprawy odzysku DNA (Rysunek 2B; p = 0,74).
Typowe odzyskiwanie DNA z próbek tkanek raka prostaty utrwalonych w FFPE
Z zastosowaniem zoptymalizowanego protokołu przeprowadzono koekstrakcję RNA i DNA z 3 próbek raka prostaty utrwalonych w formalinie i zatopionych w parafinie (FFPET), których wiek wynosił od 3 do 14 lat. Z każdej próbki wykorzystano 3 rdzenie tkankowe (średnia całkowita objętość tkanki 0,95 ± 0,13 mm3). Chociaż istnieją inne metody elektroforezy żelowej oparte na mikrofluidyce, które pozwalają na szacowanie stężeń i ocenę rozkładu wielkości cząsteczek kwasów nukleinowych, metody te nie zapewniają powtarzalnego oznaczania ilości kwasów nukleionowych i nie potrafią odróżnić RNA od DNA, co jest możliwe w przypadku analiz fluorometrycznych.2 Ponieważ wyniki elektroforezy żelowej opartej na mikrofluidyce nie są wiarygodne w przypadku pofragmentowanych kwasów nukleinowych pochodzących z FFPET,23 wydajność kwasów nukleinowych mierzono fluorometrycznie (szczegóły znajdują się w liście odczynników). Średnia wydajność wyniosła 2 270 ng RNA oraz 820 ng DNA (Ryc. 3A). Około 90% wszystkich przeanalizowanych w niniejszym badaniu próbek FFPET pozwoliło na uzyskanie ≥10 ng DNA oraz ≥ 50 ng RNA. Co ciekawe, nie stwierdzono istotnej korelacji między wiekiem próbki FFPET a odzyskiem kwasów nukleinowych (Ryc. 3B). Ogólnie rzecz biorąc, wydajność RNA i DNA była skorelowana w obrębie próbek (R2 = 0,39; p <0,01), choć z każdej próbki odzyskano ponad dwukrotnie więcej RNA niż DNA (Ryc. 3C).
Ponieważ prace pilotażowe i optymalizacyjne przeprowadzono na tkankach prostaty, kolejnym krokiem było zbadanie wydajności tego protokołu na kilku dodatkowych typach tkanek archiwalnych. Rozpoczęto od próbek FFPET pobranych chirurgicznie oraz podczas autopsji, reprezentujących łagodną zmianę wątroby (1 próbka z 1 przypadku), nowotwory mózgu (8 próbek z 1 przypadku), pęcherza moczowego (2 próbki z 2 przypadków) oraz piersi (3 próbki z 3 przypadków); protokół pozwolił na uzyskanie >10 ng DNA i RNA z 90% próbek (Rysunek 3D). Chociaż wydajność kwasów nukleinowych była niższa w tkankach z autopsji niż w tkankach chirurgicznych, reprezentatywne wyniki wskazują, że protokół zapewnia podobną wydajność w przypadku nowotworów pochodzących z różnych lokalizacji.
Ocena integralności RNA i DNA oraz ich reprezentatywna wydajność w analizach następczych
Analiza ekspresji RNA 47 genów w 8 wybranych próbkach raka prostaty FFPET oraz w próbce świeżej linii komórkowej raka prostaty PC-3 (jako kontroli pozytywnej) została przeprowadzona z wykorzystaniem komercyjnej wieloanalitowej platformy ekspresji genów zoptymalizowanej dla materiału FFPET. Liczba cząsteczek mRNA w PC3 była zazwyczaj wyższa niż w próbkach FFPET (Ryc. 4A). Jednakże, porównując względną ekspresję wszystkich genów, próbki raka prostaty FFPET wykazały profile ekspresji podobne do RNA z linii PC-3, co wskazuje, że oba źródła RNA nadają się do profilowania ekspresji RNA.
Aby zademonstrować wydajność genomowego DNA wyekstrahowanego zgodnie z tym protokołem, ekstrakty DNA przekonwertowane metodą bisulfitową z próbek FFPET poddano amplifikacji za pomocą PCR specyficznego dla metylacji (MSP).24 Analiza MSP elementów powtarzalnych ALU, silnie zmetylowanych regionów występujących w milionach kopii w genomie ludzkim,25 została wykorzystana jako kontrola metylacji genomowej i oczekiwano, że wykaże ona minimalne różnice między próbkami. Jak pokazano na Rysunku 4B, między różnymi próbkami zaobserwowano niewielkie lub żadne różnice w poziomach metylacji ALU MSP. Ponadto testy MSP oparte na GSTP1, genie znanym z hipermetylacji w raku prostaty, ale nie w próbkach łagodnych,26 nie wykazały wykrywalnych amplifikacji w DNA z próbek łagodnych. Zgodnie z oczekiwaniami, w DNA z tkanek nowotworowych wykryto niższe wartości progu cyklu (Ct) w qPCR, co wskazuje na wzbogacenie zmetylowanych kopii GSTP1. Użyteczność kwasów nukleinowych odzyskanych tym protokołem przetestowano dalej w typowych analizach następczych, wykorzystując kwasy nukleinowe odzyskane z łagodnych zmian wątroby, z mózgu (post-mortem) oraz z dwóch chirurgicznie usuniętych próbek raka piersi. Zarówno analiza ekspresji oparta na RT-qPCR, jak i testy MSP przebiegały pomyślnie w przypadku FFPET raka piersi i wątroby, jednak analiza RT-PCR nie pozwoliła na amplifikację silnie eksprimowanego mRNA z pośmiertnej próbki guza mózgu (Rysunek 4C), co sugeruje degradację RNA, prawdopodobnie z powodu opóźnionej fiksacji tkanki.

Rysunek 1: Przegląd procedury ekstrakcji dla próbek FFPET. Rysunek ilustruje sposób mapowania obszaru zainteresowania w bloku tkankowym na podstawie selekcji histopatologicznej z preparatu mikroskopowego. Następnie z każdego obszaru tkanki, przy użyciu wycinaków do biopsji, pobiera się trzy rdzenie tkankowe o średnicy 0,6 mm, które są razem homogenizowane, a następnie poddawane ekstrakcji zarówno RNA, jak i DNA. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rysunek 2Wydajność kwasów nukleinowych (DNA i RNA) w ng/mm3 z FFPET przy użyciu dwóch rodzajów Proteinazy K (enzymów termostabilnych i o wysokiej aktywności), z testowaniem zakresu czasów inkubacji w przypadku tego drugiego. (AWydajność proteinazy K od różnych dostawców. Ekstrakcje DNA przeprowadzono na reprezentatywnej próbce FFPET, wykorzystując enzym stabilny termicznie dostarczony w zestawie w porównaniu z silniejszym enzymem od innego producenta.B) Wyznaczanie optymalnego czasu inkubacji Proteinazy K w celu maksymalizacji wydajności DNA. Wydajność trawienia Proteinazą K w wysokim stężeniu oceniano dla trzech różnych okresów inkubacji z wykorzystaniem 3 próbek FFPET. Słupki błędów reprezentują błąd standardowy średniej (SEM). Kliknij tutaj, aby wyświetlić powiększoną wersję tej figury.
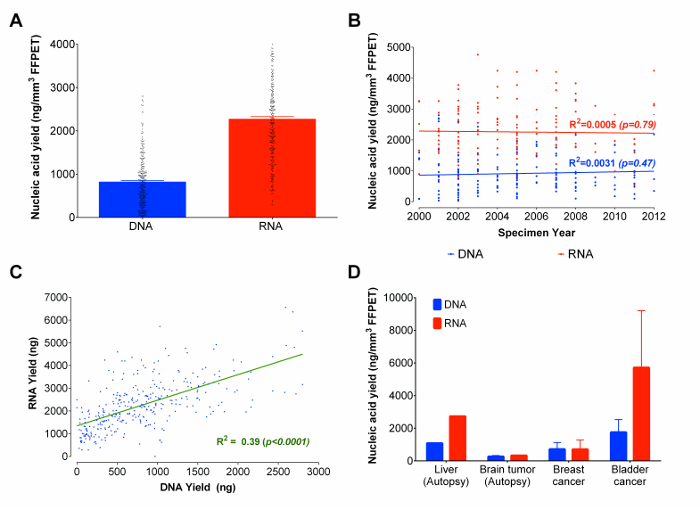
Rycina 3Wydajność kwasów nukleinowych (DNA i RNA) w ng/mm3 całkowitej liczby próbek FFPET, w podziale na lata pobrania próbek oraz reprezentatywne typy tkanek. (A) Całkowita ilość odzyskanych kwasów nukleinowych z tkanek utrwalonych w formalinie i zatopionych w parafinie. Przedstawione ilości kwasów nukleinowych oparto na ekstrakcjach z 33 próbek FFPET z wykorzystaniem zoptymalizowanego protokołu. (B) Wykres korelacji między odzyskaną całkowitą ilością DNA i RNA a wiekiem próbek FFPET. Wykorzystane wyekstrahowane próbki FFPET pochodziły z lat 20–2012. (C) Korelacja między wydajnościami równoczesnej ekstrakcji DNA i RNA z 3 próbek prostaty. Występuje pozytywna korelacja między wydajnością DNA a wydajnością RNA. (D) Demonstracja protokołu z wykorzystaniem dodatkowych typów tkanek archiwalnych. Zoptymalizowany protokół zastosowano do ekstrakcji kwasów nukleinowych z 14 próbek nowotworowych (pierś, pęcherz moczowy i mózg) oraz prawidłowych (wątroba). Słupki błędów reprezentują SEM. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rysunek 4: Wydajność RNA i DNA współekstrahowanych z rdzeni tkankowych w aplikacjach analitycznych. (A) liczba cząsteczek mRNA dla tkanek raka prostaty utrwalonych metodą FFPE oraz dla świeżej kontroli z linii komórkowej PC-3. Każdy punkt reprezentuje średnią z 3 powtórzeń technicznych wyekstrahowanych oddzielnie. Wartości RNA dla świeżej linii komórkowej PC-3 przedstawiono żółtymi słupkami, a wartości dla tkanek FFPE – kolorowymi kropkami. (B) Testy PCR specyficzne dla metylacji w DNA z próbek raka prostaty utrwalonych w formalinie i zatopionych w parafinie (FFPET). Wartości progu cyklu uzyskano dla 10 próbek, przeprowadzając analizy zgodnie z oczekiwaniami przy użyciu 50 ng DNA konwertowanego bisulfitowo na reakcję. Testy ALU MSP we wszystkich próbkach FFPET wykazały podobne wartości progu cyklu (p >0.67)Analizy MSP dla GSTP1 wykazały wyższy poziom metylacji (niższy próg cyklu) w raku prostaty niż w łagodnych zmianach prostaty.C) Ocena jakości DNA i RNA z dodatkowych typów tkanek. Analizy ekspresji genu HPRT1 oraz metylacji genu Alu przeprowadzono na kwasach nukleinowych (odpowiednio RNA i DNA) wyekstrahowanych z prawidłowej wątroby (autopsja) oraz raków mózgu (autopsja) i piersi (wszystkie FFPE). Wyniki z prostaty przedstawiono w celu porównania. Uwaga: w każdym typie tkanki zaobserwowano podobne wyniki, z wyjątkiem nieudanej amplifikacji mRNA w jednej próbce autopsyjnej. Każdy punkt lub słupek reprezentuje jedną próbkę, a słupki błędów oznaczają SEM. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
| Rdzenie tkankowe | |||||||||||
| Ilość tkanki wejściowej (mm3) | Wyekstrahowany kwas nukleinowy | Walidacja | Kontrola jakości: DNA | Kontrola jakości: RNA | |||||||
| (liczba próbek) | Wiek próbki (lata) | Całkowita wydajność (ng) | Wielkość fragmentu (bp) | PCR | Całkowita wydajność (ng) | Wielkość fragmentu (bp) | PCR | NanoString | |||
| Pikor i wsp. | 43 - 129 | Kwast deoksyrybonukleinowy (DNA) | Brak danych | Brak danych | Brak danych | Brak danych | |||||
| Montaser-Kouhsari it al. | 18 - 29.5 | RNA | 763 | 0-25 | 843 | Brak danych | |||||
| Niniejsza praca | 1.71 | DNA i RNA | >350 | 3-12 | 820 | 100 - 500 |  | 2270 | 100-500 | | |
| Przekroje tkanek | |||||||||||
| Materiał tkankowy | Wyekstrahowany kwas nukleinowy | Walidacja | Kontrola jakości: DNA | Kontrola jakości: RNA | |||||||
| (liczba próbek) | Wiek próbki (lata) | Całkowita wydajność (ng) | Wielkość fragmentu (bp) | PCR | Całkowita wydajność (ng) | Wielkość fragmentu (bp) | PCR (reakcja łańcuchowa polimerazy) | NanoString | |||
| Heikal i wsp. | 5 x 5 µm | Kwas deoksyrybonukleinowy (DNA) | 12 | 7-22 | 88-300 | 103-351 | | ||||
| Chung i inni | 1 x 20 µm | RNA | 9 | >5 | 16,000- 23,000 | 100-200 | | ||||
| Antica i in. | 2 x 4 µm | RNA | 18 | Brak danych | Nieznana próbka (621 ng/µl) | 80-202 + | | ||||
| Ghatak i wsp. | 5 x 5 µm | DNA i RNA | 5 | 1 | 14 256 | <1030 | | 16 000 | 109-400 + | | |
| Hennig it al. | 1 x 10 µm | Kwas DNA i RNA | 210 | 1-25 | Brak danych | Brak danych | | Brak danych | Brak danych | | |
| Laserowa mikrodysekcja wycinająca | |||||||||||
| Ilość tkanki wejściowej (mm2) | Wyizolowany kwas nukleinowy | Walidacja | Kontrola jakości: DNA | Kontrola jakości: RNA | |||||||
| (liczba próbek) | Wiek próbki (lata) | Całkowita wydajność (ng) | Wielkość fragmentu (bp) | PCR | Całkowita wydajność (ng) | Wielkość fragmentu (bp) | PCR | NanoString | |||
| Śnieg i in. | 1-2 | Kwas deoksyrybonukleinowy (DNA) | 110 | 0-2 | 430 | Brak danych | | ||||
Tabela 1: Porównanie opublikowanych protokołów ekstrakcji DNA i RNA dla rdzeni tkankowych, przekrojów oraz mikrodysekcji sterowanej laserem. Uwzględniono również kilka analiz punktów końcowych tych metod z wykorzystaniem testów PCR i Nanostring.
Dyskusja
Dla pomyślnej ekstrakcji DNA i RNA z obszarów tkanek będących przedmiotem zainteresowania, dokładne rdzeniowanie ma kluczowe znaczenie. Protokół ten opisuje użycie stempla tkankowego do izolowania rdzeni o średnicy 0,6 mm i przedstawia proces przenoszenia zapisów z szkiełek mikroskopowych do odpowiednich bloków FFPET. Modyfikacje protokołu producenta były konieczne, aby skutecznie ekstrahować kwasy nukleinowe z rdzeni, które są około 50 razy grubsze niż skrawki mikrotomu, dla których protokół był przeznaczony. Ponieważ rdzenie mogą zawierać więcej wosku parafinowego w stosunku do skrawków tkanki, konieczna była skuteczna deparafinowanie rdzeni poprzez wielokrotne etapy obróbki ksylenem i etanolem. Powodzenie etapów po deparafinowaniu zależało od prawidłowej mechanicznej homogenizacji rdzeni tkanek i wydajnego trawienia proteinazy K. Można przeprowadzić dalszą optymalizację trawienia proteinazy K.
Warto wspomnieć, że metoda ta identyfikuje obszary zainteresowania na powierzchni bloku, zidentyfikowane na odpowiednich szkiełkach histopatologicznych. Ponieważ rdzeń pobiera tkankę, która może mieć głębokość 3 lub 4 mm, użytkownicy tego protokołu mogą być zaniepokojeni tym, jakie komórki lub tkanki znajdują się pod powierzchnią bloku. Chociaż jest to uzasadniona obawa, wiele badań (dokonanych w piśmiennictwie27) wykazało, że rdzenie tkankowe wiernie reprezentują histologiczne i molekularne cechy patologicznych bloków tkankowych, szczególnie gdy z obszaru zainteresowania pobierane są próbki zduplikowanych lub potrójnych rdzeni.
Ponieważ zmodyfikowany komercyjny zestaw do ekstrakcji przyjęty w tym protokole umożliwia jednoczesną ekstrakcję zarówno DNA, jak i RNA z tej samej tkanki, protokół oszczędza cenny materiał biologiczny i umożliwia bezpośrednie porównanie dwóch otrzymanych kwasów nukleinowych z tej samej próbki. Jednoczesna ekstrakcja RNA i DNA zmniejsza o połowę nakład pracy i zubożenie tkanek oraz umożliwia precyzyjną, zintegrowaną analizę ekspresji genów, a także cech epigenetycznych i genetycznych występujących w DNA. Ponieważ wydajność zarówno RNA, jak i DNA z tych reprezentatywnych rdzeni tkankowych zwykle przekracza odpowiednio 600 i 300 ng, a większość obecnych zastosowań PCR i sekwencjonowania nowej generacji zwykle wymaga 10-100 ng, większość próbek oczyszczonych za pomocą tego protokołu powinna dostarczyć odpowiedniego materiału do kilku dalszych testów. Wykazano, że protokół ten jest powtarzalny w niezależnych laboratoriach (Selvarajah i wsp., In Prep.). RNA z tego protokołu było wystarczającej jakości do analizy ekspresji genów przy użyciu RT-PCR lub popularnej platformy multianalitowej, a DNA dobrze wypadało w testach PCR specyficznych dla metylacji. Uzasadnione są przyszłe badania mające na celu ocenę przydatności odzyskanych kwasów nukleinowych w sekwencjonowaniu nowej generacji.
W związku z tym wprowadzono kilka modyfikacji do dostępnego na rynku protokołu, zaprojektowanego dla cienkich odcinków FFPET, dzięki czemu nadaje się on do jednoczesnej ekstrakcji RNA i DNA z rdzeni FFPET o średnicy 0,6 mm. Protokół wykazał niezmiennie wysokie wyniki w dużej kohorcie próbek raka prostaty oraz w ograniczonym zestawie próbek z nowotworów piersi, mózgu i pęcherza moczowego. Ogólnie rzecz biorąc, protokół powinien umożliwić użytkownikom przeprowadzanie ukierunkowanych analiz genetycznych dużych, dobrze opisanych zbiorów tkanek. Co ważne, protokół umożliwia wydajne, skoncentrowane pobieranie próbek z regionów będących przedmiotem zainteresowania w FFPET, stosunkowo krótki czas pracy i wystarczająco wysoką wydajność dla większości dalszych zastosowań.
Oświadczenia
Autorzy deklarują brak sprzecznych interesów finansowych.
Podziękowania
To badanie było wspierane przez grant zespołu z Movember/Prostate Cancer Canada dla JMSB, DMB, PCP i JL, a także przez Ontario Institute of Cancer Research (JMSB, DMB i PCP) oraz Motorcycle Ride for Dad Kingston/University Hospitals Kingston Foundation/Kingston General Hospital (DMB, PCP).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Folia parafinowa z tworzywa sztucznego, "Parafilm 'M'" | Bemis | RK-06720-40 | Każda ogólna folia parafinowa będzie działać jako substytut |
| podchlorynu sodu, "Ultra Bleach" | Podobnie | 53-2879-2 | Każdy ogólny wybielacz będzie działał jako substytut. Materiał niebezpieczny, który może spowodować oparzenia w kontakcie. |
| Absolutny etanol klasy biologii molekularnej | Fisher BioReagents | BP2818-500 | Sigma-Aldrich E7023 wystarcza jako substytut |
| klasy molekularnej H2O | G-Biosciences | 786-293 | Sigma W4502, a także każda inna marka |
| zestawu dziurkacza H2O 0,6 mm klasy molekularnej do instrumentów Beecher | Estigen | MPO6[Żółty] | Upewnij się, że używasz czerwonego dziurkacza odbiorczego z zestawu |
| Marker permanentny Fine point | Sharpie | 10365796S | Używanie markera na tkankach FFPE powoduje ich szybkie wysychanie, więc może być wymaganych kilka |
| Blok | |||
| Barwione szkiełko tkankowe odpowiadające blokowi | |||
| 1,5 ml Probówki do mikrowirówek | Fisher BioOdczynniki | 05-408-137 | |
| 2,0 ml Probówki o niskiej zawartości wiązania (probówki do mikrowirówek LoBind) | Eppendorf | 22431048 | |
| 1,5 ml Probówki o niskim poziomie wiązania (probówki do mikrowirówek LoBind) | Eppendorf | 22431021 | |
| Histologia Ksylen | VWR | CA 95057-822 | Fisher Scientific X5-500 wystarczy jako substytut |
| Biologia molekularna Grade 2-Propanol | Sigma | I9516 | |
| Zestaw AllPrep FFPE DNA/RNA&NBSP; | Qiagen | 80234 | Przygotuj zgodnie z podręcznikiem AllPrep DNA/RNA FFPE Handbook21 |
| : RLT, FRN, RPE, ATL, AL, AW1, AW2, roztwór DNaseI | Qiagen | 80234 | Przygotuj zgodnie z podręcznikiem AllPrep DNA/RNA FFPE Handbook21 |
| Proteinaza stabilna temperaturowo K | Qiagen | 80234 | |
| Proteinaza o dużej sile działania K | Invitrogen | 25530-049 | Invitrogen 25530-015 wystarcza jako substytut |
| roztworu neutralizującego RNAzę (Rnase AWAY) | Molecular BioProducts | 7003 | |
| RNaseA 100 mg/ml | Qiagen | 19101 | |
| BD Integra Strzykawka 3 ml 21G x 1/2 | BD | ||
| Zmotoryzowany homogenizator tkanek (TissueRuptor) | Qiagen | 9001271 | Fisher Scientific 14-261-29 wystarczy jako substytut-20 |
| ° C oraz -80 ° C Zamrażarka laboratoryjna | |||
| Mikrowirówka z rotorem do probówek 2 ml Cyfrowy | |||
| mieszalnik | |||
| Pipety i końcówki | |||
| Bloki grzewcze lub łaźnie | |||
| Tris Chlorowodorek | Amresco | 0234 | |
| Chlorek sodu | Amresco | 0241 | |
| Bezwodny chlorek magnezu | Sigma | M8266 | |
| Dodecyl siarczan sodu | Sigma | L4509 | |
| Acrodisc 25 mm filtry strzykawkowe z 0,45 i #181; m Membrana Supor | Pall | PN 4614 | |
| Strzykawka z cofającą się igłą BD PrecisionGlide 3 ml | BD Integra | 305274 | |
| Kwas solny | BDH | 3026 | |
| Platfrom ekspresji genów wieloanalitowych (nCounter ® Zestaw kodów CAE i platforma Nanostring nCounter) | Platforma Nanostring nCounter, | ||
| (zestaw do oznaczania Qubit dsDNA HS i kubit ® Zestaw do oznaczania RNA BR) | Invitrogen |
Bibliografia
- Kern, S. E. Why your new cancer biomarker may never work: recurrent patterns and remarkable diversity in biomarker failures. Cancer Res. 72 (23), 6097-6101 (2012).
- Klopfleisch, R., Weiss, A. T. A., Gruber, A. D. Excavation of a buried treasure--DNA, mRNA, miRNA and protein analysis in formalin fixed, paraffin embedded tissues. Histol. Histopathol. 26 (6), 797-810 (2011).
- Beltran, H., et al. Targeted Next-generation Sequencing of Advanced Prostate Cancer Identifies Potential Therapeutic Targets and Disease Heterogeneity. Eur. Urol. 63 (5), 920-926 (2013).
- Hoppin, J. A., Tolbert, P. E., Taylor, J. A., Schroeder, J. C., Holly, E. A. Potential for selection bias with tumor tissue retrieval in molecular epidemiology studies. Ann. Epidemiol. 12 (1), 1-6 (2002).
- von Ahlfen, S., Missel, A., Bendrat, K., Schlumpberger, M. Determinants of RNA quality from FFPE samples. PLOS ONE. 2 (12), e1261(2007).
- Masuda, N., Ohnishi, T., Kawamoto, S., Monden, M., Okubo, K. Analysis of chemical modification of RNA from formalin-fixed samples and optimization of molecular biology applications for such samples. Nucleic Acids Res. 27 (22), 4436-4443 (1999).
- Pikor, L. A., Enfield, K. S. S., Cameron, H., Lam, W. L. DNA extraction from paraffin embedded material for genetic and epigenetic analyses. J. Vis. Exp. (49), (2011).
- Turashvili, G., et al. Nucleic acid quantity and quality from paraffin blocks: defining optimal fixation, processing and DNA/RNA extraction techniques. Exp. Mol. Pathol. 92 (1), 33-43 (2012).
- Espina, V., et al. Laser-capture microdissection. Nat. Protoc. 1 (2), 586-603 (2006).
- Hackler, L., Masuda, T., Oliver, V. F., Merbs, S. L., Zack, D. J. Use of laser capture microdissection for analysis of retinal mRNA/miRNA expression and DNA methylation. Methods Mol. Biol. 884, 289-304 (2012).
- Bonin, S., Stanta, G. Nucleic acid extraction methods from fixed and paraffin-embedded tissues in cancer diagnostics. Expert Rev. Mol. Diagn. 13 (3), 271-282 (2013).
- Bonin, S., et al. Multicentre validation study of nucleic acids extraction from FFPE tissues. Virchows Archiv. 457 (3), 309-317 (2010).
- Montaser-Kouhsari, L., et al. Image-guided Coring for Large-scale Studies in Molecular Pathology. Appl. Immunohistochem. Mol. Morphol. , (2015).
- van Eijk, R., Stevens, L., Morreau, H., van Wezel, T. Assessment of a fully automated high-throughput DNA extraction method from formalin-fixed, paraffin-embedded tissue for KRAS, and BRAF somatic mutation analysis. Exp. Mol. Pathol. 94 (1), 121-125 (2013).
- Ghatak, S., Sanga, Z., Pautu, J. L., Kumar, N. S. Coextraction and PCR Based Analysis of Nucleic Acids From Formalin-Fixed Paraffin-Embedded Specimens. J. Clin. Lab. Anal. , (2014).
- Hennig, G., et al. Automated extraction of DNA and RNA from a single formalin-fixed paraffin-embedded tissue section for analysis of both single-nucleotide polymorphisms and mRNA expression. Clin. Chem. 56 (12), 1845-1853 (2010).
- Snow, A. N., Stence, A. A., Pruessner, J. A., Bossler, A. D., Ma, D. A simple and cost-effective method of DNA extraction from small formalin-fixed paraffin-embedded tissue for molecular oncologic testing. BMC Clin. Pathol. 14 (1), 30(2014).
- Torrente, M. C., et al. DNA extraction from formalin-fixed laryngeal biopsies: Comparison of techniques. Acta Otolaryngol. 131 (3), 330-333 (2011).
- Okello, J. B. A., et al. Comparison of methods in the recovery of nucleic acids from archival formalin-fixed paraffin-embedded autopsy tissues. Anal. Bochem. 400 (1), 110-117 (2010).
- Abramovitz, M., et al. Optimization of RNA extraction from FFPE tissues for expression profiling in the DASL assay. BioTechniques. 44 (3), 417-423 (2008).
- AllPrep DNA/RNA FFPE Handbook. , (2012).
- Laurent, L. C., et al. Meeting report: discussions and preliminary findings on extracellular RNA measurement methods from laboratories in the NIH Extracellular RNA Communication Consortium. Journal of Extracell. Vesicles. 4, (2015).
- Wieczorek, D., Delauriere, L., Schagat, T. Methods of RNA Quality Assessment. , Available from: https://www.promega.ca/resources/pubhub/methods-of-rna-quality-assessment (2012).
- Herman, J. G., Graff, J. R., Myohanen, S., Nelkin, B. D., Baylin, S. B. Methylation-specific PCR: a novel PCR assay for methylation status of CpG islands. Proc. Natl. Acad. Sci. U.S.A. 93 (18), 9821-9826 (1996).
- Weisenberger, D. J., Campan, M., et al. Analysis of repetitive element DNA methylation by MethyLight. Nucleic acids research. 33 (21), 6823-6836 (2005).
- Yegnasubramanian, S. Hypermethylation of CpG Islands in Primary and Metastatic Human Prostate Cancer. Cancer Res. 64 (6), 1975-1986 (2004).
- Parsons, M., Grabsch, H. How to make tissue microarrays. Diagn. Histopathol. 15 (3), 142-150 (2009).
Przedruki i uprawnienia
