Danio pręgowany to doskonały model do badania funkcji mięśni i chorób. Podczas wczesnej embriogenezy danio pręgowany rozpoczyna regularne skurcze mięśni, powodując rytmiczne zachowanie podczas pływania, które zmienia się, gdy mięsień jest zakłócony. W tym miejscu opisujemy reakcję wywołaną dotykiem i test lokomocji, aby zbadać wydajność pływania jako miarę funkcji mięśni.
Artykuł metodologiczny
Wykorzystanie reakcji wywołanej dotykiem i testów lokomocji do oceny wydajności i funkcji mięśni u danio pręgowanego
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Rozwój mięśni danio pręgowanego jest wysoce konserwatywny dzięki systemom ssaków, co czyni je doskonałym modelem do badania funkcji mięśni i chorób. Wiele miopatii wpływających na funkcjonowanie mięśni szkieletowych można szybko i łatwo ocenić u danio pręgowanego w ciągu pierwszych kilku dni embriogenezy. Po 24 godzinach od zapłodnienia (hpf) danio pręgowany typu dzikiego spontanicznie kurczy mięśnie ogona, a po 48 hpf danio pręgowany wykazuje kontrolowane zachowania podczas pływania. Zmniejszenie częstotliwości lub inne zmiany w tych ruchach mogą wskazywać na dysfunkcję mięśni szkieletowych. Aby przeanalizować zachowania związane z pływaniem i ocenić wydajność mięśni we wczesnym rozwoju danio pręgowanego, wykorzystujemy zarówno reakcję ucieczki wywołaną dotykiem, jak i testy lokomocji.
Testy reakcji ucieczki wywołane dotykiem mogą być używane do oceny wydajności mięśni podczas krótkich ruchów eksplozywnych wynikających ze skurczu szybkokurczliwych włókien mięśniowych. W odpowiedzi na bodziec zewnętrzny, którym w tym przypadku jest stuknięcie w głowę, danio pręgowany typu dzikiego po 2 dniach od zapłodnienia (dpf) zazwyczaj wykazuje silne pływanie eksplozywne, któremu towarzyszą ostre zakręty. Nasza metoda określa ilościowo funkcję mięśni szkieletowych, mierząc maksymalne przyspieszenie podczas gwałtownego ruchu pływackiego, przy czym przyspieszenie jest wprost proporcjonalne do siły wytwarzanej przez skurcz mięśni.
Dla kontrastu, testy lokomocji podczas wczesnego rozwoju larwalnego danio pręgowanego są używane do oceny wydajności mięśni podczas długotrwałych okresów aktywności mięśni. Korzystając z systemu śledzenia do monitorowania zachowań związanych z pływaniem, uzyskujemy automatyczne obliczenie częstotliwości aktywności i odległości u 6-dniowego danio pręgowanego, odzwierciedlające funkcję ich mięśni szkieletowych. Pomiary wydolności pływackiej są cenne dla oceny fenotypowej modeli chorób i wysokoprzepustowych badań przesiewowych mutacji lub zabiegów chemicznych wpływających na funkcjonowanie mięśni szkieletowych.
Wprowadzenie
W ciągu ostatniej dekady danio pręgowany był coraz częściej wykorzystywany do badania biologii komórek mięśniowych i chorób. Szybki rozwój zewnętrzny zarodka danio pręgowanego, w połączeniu z jego przejrzystością optyczną, umożliwia bezpośrednią wizualizację tworzenia, wzrostu i funkcji mięśni. Proces rozwoju mięśni jest wysoce konserwatywny u danio pręgowanego, co pozwoliło na pomyślne modelowanie szeregu chorób mięśni, w tym dystrofii mięśniowych i wrodzonych miopatii1-8. Szczegółowe badania modeli danio pręgowanego nie tylko dostarczyły nowych informacji na temat patobiologii tych schorzeń, ale także stworzyły platformę do testowania odpowiednich terapii6,9-13.
Analiza modeli chorób mięśni ryb danio pręgowanego opiera się na wiarygodnych i powtarzalnych testach do pomiaru wydajności mięśni. Wcześniejsze badania z powodzeniem zmierzyły zdolność mięśnia tułowia danio pręgowanego u ryb w zakresie od 3 do 7 dpf poprzez elektryczne stymulowanie skurczu unieruchomionej ryby podłączonej do systemu transdukcji siły14. Może to zapewnić szczegółowe pomiary siły, ale nie nadaje się idealnie do eksperymentów o większej przepustowości, a pomiar wydajności mięśni podczas pływania ma swoje zalety. Przy 2 dpf mięsień danio pręgowanego jest w pełni funkcjonalny, a ryba może wywoływać gwałtowne ruchy pływackie w odpowiedzi na bodźce. Test reakcji ucieczki wywołanej dotykiem służy do pomiaru przyspieszenia podczas gwałtownego ruchu pływania, który może być używany jako miara siły skurczu.
Jednym z najczęściej stosowanych pomiarów funkcji mięśni u pacjentów z miopatią jest test 6-minutowego marszu, który rejestruje całkowity dystans przebyty na twardej, płaskiej powierzchni15,16. Zastosowaliśmy porównywalny test do pomiaru funkcji mięśni u 6 larw danio pręgowanego dpf, w którym monitorujemy całkowity przepłynięty dystans oraz całkowitą liczbę ruchów wykonanych przez każdą larwę w okresie 10 minut. Odbywa się to za pomocą zautomatyzowanego systemu śledzenia, który zapewnia wiarygodne i wysokowydajne pomiary wydajności mięśni. Oba testy mięśniowe są wysoce powtarzalne i zostały wykorzystane do ilościowego określenia różnic w wydajności mięśni w modelach miopatii danio pręgowanego8.
Protokół
1. Test reakcji wywołanej dotykiem
- Przygotowanie 2 zarodków dpf do oznaczania odpowiedzi wywołanej dotykiem
- Upewnij się, że pora dnia, w której przeprowadzany jest test, jest spójna między eksperymentami, ponieważ aktywność może się znacznie różnić w ciągu dnia17,18.
UWAGA: Eksperyment powinien być przeprowadzony w ślepej próbie, a kolejność testów powinna być losowa, aby zminimalizować artefakty eksperymentalne. - Przypisz szczepom ryb liczbę, która jest nieznana osobie przeprowadzającej eksperyment. Następnie za pomocą ogólnodostępnych narzędzi online wygeneruj losową listę, która dyktuje kolejność testów.
- Co najmniej godzinę przed badaniem należy usunąć zarodki, wyrywając dziurę w kosmówce i delikatnie rozsuwając kosmówkę za pomocą cienkiej pęsety. Usunąć wszelkie zanieczyszczenia z płytki Petriego przed powrotem do inkubatora w temperaturze 28 °C.
- Upewnij się, że pora dnia, w której przeprowadzany jest test, jest spójna między eksperymentami, ponieważ aktywność może się znacznie różnić w ciągu dnia17,18.
- Wykonywanie testu odpowiedzi wywołanej dotykiem
- Podgrzać do temperatury 28 °C co najmniej 15 minut przed rozpoczęciem badania.
UWAGA: Ten stage jest kontrolowany pod względem temperatury i pozostanie na poziomie 28 °C przez cały czas trwania testu. Temperatura będzie miała wpływ na aktywność, dlatego ważne jest, aby utrzymać stałą temperaturę. Jeśli podgrzewany stage nie jest dostępny, temperatura wody powinna być monitorowana, a wszystkie eksperymenty powinny być przeprowadzane w tej samej temperaturze. - Umieść szalkę Petriego wypełnioną pożywką dla zarodków (5 mM NaCl, 0,17 mM KCl, 0,33 mM CaCl2, 0,33 mMMgSO4 w wodzie) na oświetlonym stoliku i zamontuj szybką kamerę nad szalką Petriego.
- Uruchom oprogramowanie do nagrywania z kamery wideo (takie jak Stream Pix 5, opisane tutaj) i w zakładce "przestrzeń robocza" wybierz 1,000 klatek na sekundę (1,000 fps) jako prędkość przechwytywania, aby zapewnić rejestrowanie szybkiej pływania ryby.
- Pracując z jednym zarodkiem na raz, umieść zarodek na środku płytki Petriego, tak aby danio pręgowany był wyraźnie widoczny w polu widzenia.
UWAGA: Jeśli zarodek odpłynie przed rozpoczęciem eksperymentu, zastąp go innym, ponieważ ponowne schwytanie i ułożenie zarodka może spowodować jego niewrażliwość na bodziec, a powtarzające się reakcje wybuchowe mogą sprzyjać osłabieniu mięśni w niektórych modelach choroby. - Rozpocznij nagrywanie, klikając przycisk "nagrywaj" i dostarcz bodziec mechanosensoryczny do zarodka, delikatnie dotykając go igłą na czubku głowy.
- Zatrzymaj nagrywanie, gdy zarodek wypłynie poza pole widzenia lub powróci do spoczynku.
UWAGA: Przyspieszenie osiąga szczyt w ciągu pierwszych 0,2 sekundy reakcji ucieczki impulsowej po bodźcu mechanicznym. W związku z tym należy upewnić się, że co najmniej przez pierwsze 0,2 sekundy od zarejestrowania reakcji ucieczki ryba znajduje się w polu widzenia. Za pomocą oprogramowania opisanego w kroku 1.2.3 dane zostaną automatycznie zapisane jako .avi plik wideo. Można również skorzystać z alternatywnego oprogramowania do przechwytywania wideo, takiego jak Free Video Capture lub Softonic, z których oba są dostępne do bezpłatnego pobrania. - Umieść zarodek z powrotem na nowej szalce Petriego i wybierz inny zarodek do testów. Przeprowadź testy na co najmniej 15 rybach.
- Podgrzać do temperatury 28 °C co najmniej 15 minut przed rozpoczęciem badania.
- Kwantyfikacja zachowań związanych z pływaniem
- Aby określić ilościowo zachowanie podczas pływania, uruchom oprogramowanie i wybierz moduł "Lokomotywa pojedynczych larw bez odejmowania tła", aby otworzyć zapisany plik wideo .avi.
- Za pomocą narzędzia "odręczny" lub "wielokąt" z paska menu wybierz obszary filmu, które mają zostać użyte do analizy. Upewnij się, że region obejmuje zarówno pierwotną pozycję ryby, jak i obszar, do którego ryba będzie pływać. Upewnij się, że sonda jest wykluczona z obszaru, który ma być analizowany. Oprogramowanie automatycznie będzie śledzić trajektorię ryby w żądanym obszarze.
- Aby przeprowadzić analizę, kliknij "eksperyment" na pasku menu i wybierz "wykonaj". Po wyświetleniu monitu zapisz plik analizy danych pierwotnych (format .phr) w żądanej lokalizacji. Po zapisaniu kliknij "start", aby rozpocząć analizę. Zakończ analizę, klikając "zatrzymaj" w menu rozwijanym "eksperyment". Zostanie wyświetlone okno zawierające wyniki.
- Przewiń w prawo, aby uzyskać wartość "maksymalnego przyspieszenia". W razie potrzeby wyeksportuj te dane, zamykając okno wyników i klikając przycisk "eksportuj natychmiastowe wyniki" w menu rozwijanym "wyniki". Wybierz odpowiedni plik z analizą danych surowych i kliknij przycisk Otwórz. Plik tekstowy, który można otworzyć w programie do obsługi arkuszy kalkulacyjnych, zostanie zapisany w folderze docelowym.
- Powtórzyć ten proces dla każdej ryby z osobna i uśrednić, aby uzyskać średnie maksymalne przyspieszenie dla każdego szczepu (patrz rysunek 1).
UWAGA: Alternatywą dla korzystania z opisanego tutaj oprogramowania może być użycie podobnych pakietów, takich jak ogólnodostępne oprogramowanie ImageJ, w celu wyodrębnienia odpowiednich danych o ruchu. Wtyczka 3D Particle Tracker może być używana do śledzenia trajektorii pływania.
2. Test lokomocji — 10-minutowy test pływacki
- Przygotowanie 6 zarodków dpf do analizy pływackiej
- W razie potrzeby należy posortować zarodki według wymaganego genotypu, na przykład poprzez badanie ekspresji białka fluorescencyjnego lub według fenotypu, i umieścić na osobnej szalce Petriego (25-30 zarodków na szalkę). Alternatywnie, genotyp można określić po zakończeniu testu lokomocji.
- Przy 3 dpf ponownie zbadaj szalki Petriego i usuń wszelkie niewyklute zarodki i szczątki. Umieścić szalki Petriego w inkubatorze w temperaturze 28 °C do 6 dpf.
- Wykonaj testy wszystkich szczepów między 9 rano a 12 po południu, czyli w czasie, w którym larwy danio pręgowanego są najbardziej aktywne. Losowo uporządkuj kolejność testów i pozycję na płytce próbek dzikich i zmutowanych, aby zminimalizować skutki różnic okołodobowych i innych błędów eksperymentalnych.
UWAGA: Ważne jest, aby czas testowania był spójny między eksperymentami, ponieważ aktywność może się znacznie różnić w ciągu dnia. - Co najmniej 30 minut przed badaniem umieścić larwy na 48-dołkowej płytce z jedną larwą na studzienkę. Po przeniesieniu napełnij studnie tak, aby powierzchnia wody znajdowała się tuż poniżej górnej części studni, upewniając się, że nie ma pęcherzyków. Włożyć płytki do inkubatora o temperaturze 28 °C.
- Wyjąć płytki z inkubatora i zaaklimatyzować się w świetle przez pięć minut przed badaniem.
- Wykonywanie testu lokomocji
- Umieść 48-dołkową płytkę w komorze rejestracyjnej, która jest wyposażona w cyfrową kamerę na podczerwień, rejestrującą do 60 klatek/s, dzięki czemu larwy można wykryć w ciemności. Sprawdź, czy wszystkie studzienki są umieszczone wewnątrz okrągłej siatki w oprogramowaniu lokomocji i czy wszystkie larwy są wyraźnie wykrywalne.
- Uruchom oprogramowanie i wybierz moduł "śledzenie". W sekcji "plik" kliknij "wygeneruj nowy protokół" i edytuj liczbę odwiertów użytych w eksperymencie. Ustaw zarówno czas trwania eksperymentu, jak i okres integracji na 10 minut, klikając menu rozwijane "parametry" i wybierając "parametry protokołu", a następnie zakładkę "czas". W tym samym oknie dialogowym "parametry protokołu" kliknij zakładkę "opcje" i upewnij się, że kliknięto pole wyboru "Numeriscope", po czym można zamknąć okno dialogowe "parametry protokołu".
- Aby ustawić obszary nagrywania, podświetl całą siatkę i kliknij dwukrotnie jedną z studni. Kliknij przycisk "rysuj obszary" i rysuj wokół lewego górnego, prawego górnego i lewego dolnego dołka, a następnie kliknij "zbuduj", co pozwala oprogramowaniu automatycznie określić położenie każdej studni. Narysuj także pasek skali i kliknij "zastosuj do grupy". Po zakończeniu kliknij przycisk "rysuj obszary".
- Wizualnie określ próg wykrywalności, przesuwając pasek "próg wykrywania" do poziomu, przy którym podświetlone są tylko ruchy ryb bez sygnałów tła.
UWAGA: Próg wykrywalności będzie się różnił w zależności od szczepu, dlatego progi muszą być określane za każdym razem, gdy testowany jest nowy szczep. W przedstawionych reprezentatywnych danych zastosowano próg wykrywalności wynoszący 25 mm/s. - Przed rozpoczęciem testowania wprowadź progi ruchu w celu wykrycia braku aktywności oraz małych i dużych ruchów.
UWAGA: W prezentowanych reprezentatywnych danych zastosowano próg bezczynności wynoszący 6 mm/s oraz próg rozpędu aktywności wynoszący 30 mm/s. Progi określają minimalne ruchy, które należy uznać za aktywne, oraz poziom, który należy uznać za impulsową, a także umożliwiają klasyfikację aktywności na małe (aktywne, ale poniżej progów aktywności impulsowej) i duże (większe niż próg aktywności impulsowej). Progi mogą być zmieniane w zależności od aktywności poszczególnych analizowanych szczepów ryb.
UWAGA: Chociaż test można przeprowadzić zarówno w jasnych, jak i ciemnych warunkach, wykazano, że larwy danio pręgowanego są bardziej aktywne w ciemności18. - Ustaw natężenie światła wewnątrz komory na 0%, klikając przycisk "ustawienia lekkiej jazdy" w rozwijanym menu "parametry". W wyświetlonym oknie dialogowym dodaj wymagane ustawienia światła.
UWAGA: Natężenie światła wewnątrz komory można uruchamiać, aby włączać się i wyłączać w czasie testowania, aby stymulować aktywność larw - Zamknij drzwiczki komory nagrywania i rozpocznij nagrywanie wideo.
- Kwantyfikacja zachowań związanych z pływaniem
- Po zakończeniu eksperymentu kliknij "zatrzymaj" w menu rozwijanym "eksperyment". Zostanie wyświetlone okno dialogowe ze wszystkimi wynikami.
- Aby uzyskać dostęp do tych wyników w programie Excel, kliknij "otwórz folder zawierający" i otwórz plik Excela, który pojawia się w wynikowym folderze. Ważnymi parametrami są "smlct" (mała liczba ruchów), "larct" (duża liczba ruchów), "smldist" (całkowita odległość pokonana przez rybę w małych ruchach) i "lardist" (całkowita odległość pokonana przez rybę w dużych ruchach).
UWAGA: Po nagraniu oprogramowanie zwraca również dwa dodatkowe pliki wyjściowe w postaci pliku .avi (zawierającego wideo z 10-minutowego nagrania) oraz pliku obrazu .png (zawierającego wizualną reprezentację lokomocji podczas 10-minutowego eksperymentu; patrz rysunek 2). - Po obliczeniu wartości lokomocji odtwórz ponownie pliki .avi i .png, aby sprawdzić, czy obliczone wartości lokomocji dokładnie odzwierciedlają ruchy pływania ryb (patrz rysunek 3).
UWAGA: Jako alternatywę dla korzystania z opisanego tutaj oprogramowania, pakiety takie jak bezpłatne oprogramowanie ImageJ mogą być używane do śledzenia zachowania lokomotywy.
Wyniki
Test reakcji wywołanej dotykiem może być wykorzystany do określenia prędkości i przyspieszenia ruchów pływackich, co stanowi miarę proporcjonalną do siły mięśniowej. W odpowiedzi na bodziec mechaniczny, taki jak lekkie uderzenie w głowę, 2 dpf dzikiego typu danio pręgowany wykazują szybki odruch pływania. Nagrania wideo zostały zarejestrowane i przeanalizowane dla dwóch różnych modeli miopatii u danio pręgowanego: Tg(ACTA1D286G-eGFP), modelu miopatii nemalinowej, u którego wykazano znaczne osłabienie mięśni, oraz modelu dystrofii mięśniowej Duchenne'a, w którym ciężkie wady mięśni opisano w 5 dpf19,20. Obrazy z filmu typowego testu wywołanego dotykiem przedstawiono na Rysunku 1A. Zbadano przyspieszenie danio pręgowanego i stwierdzono, że osiąga ono szczyt w ciągu pierwszych 0,2 sec gwałtownej reakcji ucieczkowej w postaci pływania (Rysunek 1B). Ten maksymalny szczyt przyspieszenia dostarcza miary proporcjonalnej do zdolności generowania siły przez mięśnie szkieletowe. Wartości maksymalnego przyspieszenia uśredniono, aby uzyskać średnią wartość maksymalnego przyspieszenia (± błąd standardowy średniej) dla każdej linii: Tg(ACTA1D286G-eGFP): średnia = 276,0 ± 28,8 m/sec2, n = 3 niezależne powtórzenia eksperymentu obejmujące 15 pojedynczych ryb; kontrola typu dzikiego: średnia = 500,8 ± 50,28 m/sec2, n = 3 niezależne powtórzenia eksperymentu obejmujące 15 pojedynczych ryb; mutant dmdpc2-/-: średnia = 249,9 ± 19,1 m/sec2, n = 3 niezależne powtórzenia eksperymentu obejmujące 12-19 pojedynczych ryb; heterozygoty dmdpc2+/-: średnia = 235,9 ± 8,7 m/sec2, n = 3 niezależne powtórzenia eksperymentu obejmujące 16-27 pojedynczych ryb; homozygoty typu dzikiego dmdpc2+/+ : średnia = 230,9 ± 8,7 m/sec2, n = 3 niezależne powtórzenia eksperymentu obejmujące 8-27 pojedynczych ryb (Rysunek 1C). Zgodnie z oczekiwaniami, u ryb Tg(ACTA1D286G-eGFP) stwierdzono znaczny spadek maksymalnego przyspieszenia, co wskazuje na obniżoną funkcję mięśni, co jest spójne z modelami mysimi oraz danymi pacjentów8,21,22. Ryby mutanty dmdpc2-/- nie wykazały jednak różnic w maksymalnym przyspieszeniu w 2 dpf, co jest zgodne z wykrywaniem wad mięśniowych od 3 dpf20 (Rysunek 1D).
Testy lokomocyjne przeprowadzono w 6. dniu po zapłodnieniu (dpf), aby określić aktywność i dystans przepłynięty przez szczepy zebrafish jako wskaźnik wydajności mięśni. Po przeprowadzeniu testów wygenerowano schematyczne przedstawienie ruchów pływackich w ciągu dziesięciominutowego okresu badawczego, w którym linie czerwone i zielone reprezentują odpowiednio okresy powolnego i szybkiego ruchu, a linie czarne reprezentują okresy braku aktywności (Rycina 2). Pojedyncze osobniki zebrafish typu dzikiego wykazują wysoką aktywność z niemal całkowitym brakiem okresów bezruchu, w przeciwieństwie do ryb Tg(ACTA1D286G-eGFP), które są mniej aktywne w trakcie okresu badawczego (Rycina 2B).
Zachowanie pływackie określono ilościowo, wyciągając średnią z indywidualnych wartości liczby ruchów oraz dystansu przepłyniętego przez każdą rybę (Rysunek 3). Stwierdzono, że zarówno ryby Tg(ACTA1D286G-eGFP) (Rysunek 3A i 3B), jak i ryby mutanty dmdpc2-/- (Rysunek 3C i 3D) wykazały istotny spadek średniej liczby ruchów i dystansu przepłyniętego w porównaniu z ich odpowiednimi grupami kontrolnymi: ryby Tg(ACTA1D286G-eGFP): średnia liczba ruchów = 94.3 ± 13.6, średni dystans przepłynięty = 112.9 ± 18.4 mm, n = 3 niezależne powtórzenia eksperymentu obejmujące 45 ryb; kontrole typu dzikiego: średnia liczba ruchów = 177.4 ± 14.0, średni dystans przepłynięty = 300.2 ± 22.8 mm, n = 3 niezależne powtórzenia eksperymentu obejmujące 45 ryb; mutanty dmdpc2-/-: średnia liczba ruchów = 163.3 ± 30.0, średni dystans przepłynięty: 298.4 ± 60.37 mm, n = 3 niezależne powtórzenia eksperymentu obejmujące 12-20 ryb; heterozygoty dmdpc2+/-: średnia liczba ruchów = 362.3 ± 38.8, średni dystans przepłynięty: 660.3 ± 86.1mm n = 3 niezależne powtórzenia eksperymentu obejmujące 17-27 ryb; homozygoty typu dzikiego dmdpc2+/+ : średnia liczba ruchów = 341.9 ± 91.6, średni dystans przepłynięty = 574.3 ± 170.9mm n = 3 niezależne powtórzenia eksperymentu obejmujące 8-25 ryb.
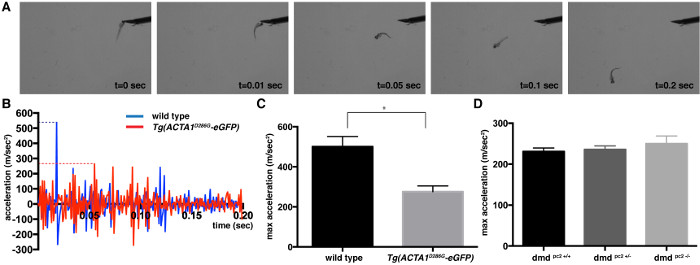
Rycina 1: Ilościowa analiza testu reakcji na bodziec dotykowy u embrionów zebrafish w 2. dniu po zapłodnieniu (dpf). (A) Zdjęcia migawkowe kontrolnego zebrafish podczas testów reakcji na bodziec dotykowy w 2. dpf. (B) Profil przyspieszenia dla pierwszych 0,2 s pojedynczego osobnika Tg(ACTA1D286G-eGFP) (kolor czerwony) i pojedynczego osobnika kontrolnego (kolor niebieski) po zastosowaniu bodźca dotykowego. Maksymalne przyspieszenie zaznaczono liniami przerywanymi. (C, D) Ilościowa analiza maksymalnego przyspieszenia (m/sec2) zarejestrowanego podczas testów reakcji na bodziec dotykowy u (C) zebrafish Tg(ACTA1D286G-eGFP) oraz (D) ryb mutantów dmdpc2-/- w porównaniu do kontrolnych zebrafish w 2. dpf. Słupki błędów reprezentują ± SEM dla 3 powtórzeń eksperymentu, *p <0.05. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
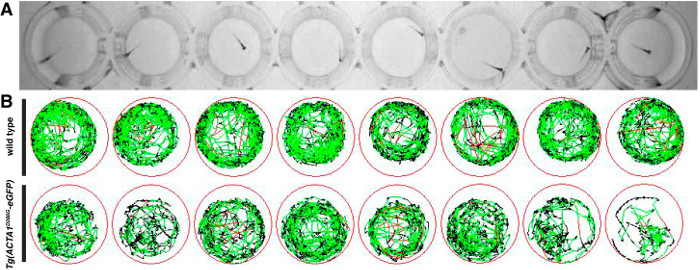
Rysunek 2: Przedstawienie testów lokomocyjnych dla zarodków danio pręgowanego. (A) Zarodki danio pręgowanego umieszcza się w płytkach 48-dołkowych, a lokomocję rejestruje się z góry za pomocą cyfrowej kamery na podczerwień. (B) Schemat ruchu danio pręgowanego podczas okresu testowego, gdzie czerwone linie przedstawiają ruchy szybkie, zielone linie ruchy wolne, a czarne linie brak aktywności (zgodnie z progami detekcji wprowadzonymi do oprogramowania). Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.

Rycina 3: Ilościowa analiza testów lokomocyjnych dla larw zebrafish w 6 dpf. Ilościowe oznaczenie (A) liczby ruchów oraz (B) przebytej odległości przez zebrafish Tg(ACTA1D286G-eGFP) w porównaniu do zebrafish kontrolnych w 6 dpf. Ilościowe oznaczenie (C) liczby ruchów oraz (D) przebytej odległości przez ryby mutanty dmdpc2-/- w porównaniu do zebrafish kontrolnych w 6 dpf. Słupki błędu reprezentują ± SEM dla 3 powtórzeń eksperymentu, *p <0.05, **p <0.01. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Wiele różnych modeli zwierzęcych, w tym myszy, psy, danio pręgowane, muchy i robaki, przyczyniło się do zrozumienia genetycznych i molekularnych podstaw chorób mięśni oraz pomogło w opracowaniu podejść terapeutycznych do ich zwalczania. Danio pręgowany ma kilka zalet w badaniu chorób mięśni. Danio pręgowany zapewnia genetycznie manipulowalny system do oceny złożonych wzorców mięśniowych w odpowiednim środowisku fizjologicznym, co nie jest możliwe w systemach hodowli in vitro . W przeciwieństwie do innych modeli kręgowców zwierzęcych, duża liczba wyprodukowanych ryb w połączeniu z ich przejrzystością optyczną ułatwia szybkie, wysokoprzepustowe badania chemiczne i genetyczne in vivo .
W tym miejscu opisujemy rozwój testów ruchu danio pręgowanego, aby zapewnić wysokowydajną i zautomatyzowaną metodę oceny wydajności mięśni podczas embriogenezy danio pręgowanego. W przypadku obu testów należy przyznać, że rytmy okołodobowe i zewnętrzne bodźce środowiskowe będą znacząco wpływać na zachowanie pływania danio pręgowanego17,18. Wielokrotne testowanie tego samego danio pręgowanego również doprowadzi do przyzwyczajenia powodującego zmniejszenie odpowiedzi na bodziec dotykowy23. Dlatego, aby osiągnąć powtarzalne wyniki między eksperymentami, każdy zarodek danio pręgowanego powinien być badany tylko raz, pora dnia i warunki oświetleniowe powinny być ustandaryzowane, a temperatura wody musi być ściśle regulowana.
Korzystając z analizy wywołanej dotykiem przy 2 dpf, możemy bezpośrednio zmierzyć maksymalne przyspieszenie pływania eksplozywnego, które jest proporcjonalne do siły mięśni. Wcześniejsze techniki na danio pręgowanym badały siłę mięśni poprzez przywiązanie obu końców zarodków do sprzętu eksperymentalnego, po czym stymulowany jest skurcz mięśni za pomocą pola elektrycznego i mierzona jest zdolność mięśnia do generowania siły14 . Chociaż metoda ta mierzy zdolność mięśnia larwalnego do generowania siły, nie mierzy rzeczywistej siły generowanej przez mięsień larwalny podczas pływania. W związku z tym opracowaliśmy metodę pośredniej oceny siły generowanej podczas normalnego ruchu larw podczas pływania, aby zapewnić ogólną miarę zdrowia mięśni. Szybki system wideo, zdolny do rejestrowania ruchów poszczególnych danio pręgowanego z szybkością 1000 klatek na sekundę, może być używany do identyfikacji niewielkich, ale istotnych różnic w funkcjonowaniu mięśni, które nie są bezpośrednio rozróżnialne gołym okiem. Interesujące będzie sprawdzenie, w jaki sposób wcześniej zgłaszane zmiany w generowaniu siły stymulowanej elektrycznie korelują ze zmianami w wydajności pływania.
Ponadto testy reakcji wywołanej dotykiem mogą być również wykorzystane do oceny kinematyki pływania, takiej jak kształt i prędkość fali ciała podczas ruchu pływania24, aby uzyskać ilościowy pomiar zachowania lokomotorycznego.
Ze względu na spontaniczny ruch larw danio pręgowanego po 3 dpf nie byliśmy w stanie przeprowadzić testów dotykowych w celu zmierzenia funkcji mięśni. I odwrotnie, mierzyliśmy wydajność mięśni w dłuższym okresie, określając dystans przepłynięty przez larwy danio pręgowanego przy 6 dpf. Test ten, choć jest pośrednią miarą funkcji mięśni, może być wykorzystany do identyfikacji ryb wykazujących upośledzonąwydajność mięśni8 lub neurodegenerację25,26. Test ten nie tylko zapewnia pomiar analogiczny do testu 6-minutowego marszu, ale nadaje się również do zautomatyzowanych, wysokoprzepustowych badań przesiewowych in vivo leków lub mutagenezy.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Dziękujemy Viewpoint za uprzejme wsparcie dla tego manuskryptu. Praca ta została sfinansowana z grantu projektowego (APP1010110) Australijskiej Narodowej Rady Zdrowia i Badań Medycznych (NHMRC).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 21 G x 1' igła | Terumo/Admiral Zaopatrzenie medyczne | TE2125 | |
| 48-dołkowe płytki | Sigma | M8937 | |
| 90 mm Szalki Petriego | Pacific Laboratory Products PT | S90001 | |
| Szybka kamera | Baumer | HXC20 | |
| http://www.randomization.com | Nie dotyczy | Kroki 1.1.2, 2.1.3 | |
| Inkubator | Thermoline Scientific | TEI-43L | |
| Pipeta plastikowa | VWR | 16001-188 | |
| StreamPix5 | NorPix | Krok 1.2.3 | |
| Jednostka kontroli temperatury | Pęseta z punktem | ||
| , styl 8 | ProSciTech | T04-821 | |
| System Zebrabox | Viewpoint | ||
| Punkt widokowy | Kroki 1.3.1, 2.2.1 |
Bibliografia
- Bassett, D. I., Bryson-Richardson, R. J., Daggett, D. F., Gautier, P., Keenan, D. G., Currie, P. D. Dystrophin is required for the formation of stable muscle attachments in the zebrafish embryo. Development. 130 (23), 5851-5860 (2003).
- Gupta, V. A., Kawahara, G., et al. A splice site mutation in laminin-α2 results in a severe muscular dystrophy and growth abnormalities in zebrafish. PLoS ONE. 7 (8), e43794(2012).
- Gupta, V., Kawahara, G., et al. The zebrafish dag1 mutant: a novel genetic model for dystroglycanopathies. Hum Mol Genet. 20 (9), 1712-1725 (2011).
- Kawahara, G., Karpf, J. A., Myers, J. A., Alexander, M. S., Guyon, J. R., Kunkel, L. M. Drug screening in a zebrafish model of Duchenne muscular dystrophy. Proc Natl Acad Sci. 108 (13), 5331-5336 (2011).
- Telfer, W. R., Nelson, D. D., Waugh, T., Brooks, S. V., Dowling, J. J. neb: a zebrafish model of nemaline myopathy due to nebulin mutation. Dis Model & Mech. 5 (3), 389-396 (2012).
- Ruparelia, A. A., Oorschot, V., Vaz, R., Ramm, G., Bryson-Richardson, R. J. Zebrafish models of BAG3 myofibrillar myopathy suggest a toxic gain of function leading to BAG3 insufficiency. Acta Neuropathol. 128 (6), 821-833 (2014).
- Sztal, T. E., Sonntag, C., Hall, T. E., Currie, P. D. Epistatic dissection of laminin-receptor interactions in dystrophic zebrafish muscle. Hum Mol Genet. 21 (21), 4718-4731 (2012).
- Sztal, T. E., Zhao, M., et al. Zebrafish models for nemaline myopathy reveal a spectrum of nemaline bodies contributing to reduced muscle function. Acta Neuropathol. 130 (3), 389-406 (2015).
- Pichler, F. B., Laurenson, S., Williams, L. C., Dodd, A., Copp, B. R., Love, D. R. Chemical discovery and global gene expression analysis in zebrafish. Nat Biotechnol. 21 (8), 879-883 (2003).
- Peterson, R. T., Shaw, S. Y., et al. Chemical suppression of a genetic mutation in a zebrafish model of aortic coarctation. Nat Biotechnol. 22 (5), 595-599 (2004).
- Kawahara, G., Serafini, P. R., Myers, J. A., Alexander, M. S., Kunkel, L. M. Characterization of zebrafish dysferlin by morpholino knockdown. Biochem Bioph Res Co. 413 (2), 358-363 (2011).
- Zon, L. I., Peterson, R. T. In vivo drug discovery in the zebrafish. Nat Rev Drug Discov. , (2005).
- Smith, L. L., Beggs, A. H., Gupta, V. A. Analysis of skeletal muscle defects in larval zebrafish by birefringence and touch-evoke escape response assays. J Vis Exp. (82), e50925(2013).
- Sloboda, D. D., Claflin, D. R., Dowling, J. J., Brooks, S. V. Force measurement during contraction to assess muscle function in zebrafish larvae. J Vis Exp. (77), (2013).
- McDonald, C. M., Henricson, E. K., et al. The 6-minute walk test as a new outcome measure in Duchenne muscular dystrophy. Muscle Nerve. 41 (4), 500-510 (2010).
- McDonald, C. M., Henricson, E. K., et al. The 6-minute walk test and other clinical endpoints in duchenne muscular dystrophy: reliability, concurrent validity, and minimal clinically important differences from a multicenter study. Muscle Nerve. 48 (3), 357-368 (2013).
- Hurd, M. W., Debruyne, J., Straume, M., Cahill, G. M. Circadian rhythms of locomotor activity in zebrafish. Physiol Behav. 65 (3), 465-472 (1998).
- MacPhail, R. C., Brooks, J., Hunter, D. L., Padnos, B., Irons, T. D., Padilla, S. Locomotion in larval zebrafish: Influence of time of day, lighting and ethanol. Neurotoxicology. 30 (1), 52-58 (2009).
- Berger, J., Berger, S., Jacoby, A. S., Wilton, S. D., Currie, P. D. Evaluation of exon-skipping strategies for Duchenne muscular dystrophy utilizing dystrophin-deficient zebrafish. J Cell Mol Med. 15 (12), 2643-2651 (2011).
- Berger, J., Sztal, T., Currie, P. D. Quantification of birefringence readily measures the level of muscle damage in zebrafish. Biochem Bioph Res Co. 423 (4), 785-788 (2012).
- Ravenscroft, G., Jackaman, C., et al. Mouse models of dominant ACTA1 disease recapitulate human disease and provide insight into therapies. Brain. 134 (4), 1101-1115 (2011).
- Ravenscroft, G., Wilmshurst, J. M., et al. A novel ACTA1 mutation resulting in a severe congenital myopathy with nemaline bodies, intranuclear rods and type I fibre predominance. Neuromuscular Disord. 21 (1), 31-36 (2011).
- Wolman, M. A., Jain, R. A., Liss, L., Granato, M. Chemical modulation of memory formation in larval zebrafish. Proc Natl Acad Sci. 108 (37), 15468-15473 (2011).
- Müller, U. K., van Leeuwen, J. L. Swimming of larval zebrafish: ontogeny of body waves and implications for locomotory development. J Exp Biol. 207 (Pt 5), 853-868 (2004).
- Cheng, W., Tian, J., Burgunder, J. M., Hunziker, W., Eng, H. L. Myotonia congenita-associated mutations in chloride channel-1 affect zebrafish body wave swimming kinematics. PLoS ONE. 9 (8), e103445(2014).
- Moggio, M., Colombo, I., et al. Mitochondrial disease heterogeneity: a prognostic challenge. Acta Myol. 33 (2), 86-93 (2014).
Przedruki i uprawnienia
