Opisane są protokoły wykorzystujące nieprzepuszczalne bariery do blokowania zdarzeń indukcyjnych między tkankami głównej osi ciała a bokiem zarodka pisklęcia, wymagane do tworzenia kończyn. Koraliki nasączone potencjalnymi sygnałami indukcyjnymi są wykorzystywane do przezwyciężenia efektu umieszczania bariery, a analiza ekspresji genów to potwierdza.
Artykuł metodologiczny
Zastosowanie nieprzepuszczalnych barier w połączeniu z kulkami nasączonymi czynnikiem kandydującym do badania sygnałów indukcyjnych w pisklątku
W tym artykule
Podsumowanie
Streszczenie
Zarodek pisklęcia stanowi doskonały model kręgowca, który może być wykorzystany do bezpośredniego analizowania zagadnień rozwojowych. Jego dostępność i wytrzymałość po interwencji chirurgicznej to kluczowe atuty eksperymentalne. Płytki mikowe były pierwszymi barierami stosowanymi w celu zapobiegania inicjacji pąków kończyn piskląt1. Opisano protokoły, które wykorzystują folię aluminiową jako nieprzepuszczalną barierę dla indukcji i/lub inicjacji zawiązków skrzydeł lub nóg. Łączymy tę technikę z umieszczaniem koralików bocznie do bariery, aby egzogennie dostarczyć kandydujące czynniki endogenne, które zostały zablokowane przez barierę. Wyniki są analizowane przy użyciu hybrydyzacji in situ późniejszej ekspresji genów. Koncentrujemy się głównie na roli sygnalizacji kwasu retinowego w indukcji, a następnie inicjacji zarodka pisklęcia kończyny przedniej i tylnej. Używamy namoczonych kulek BMS 493 (odwrotny agonista receptorów kwasu retinowego (RAR)) wszczepionych w mezodermę płytki bocznej (LPM), aby naśladować efekt bariery umieszczonej między somitami (źródło kwasu retinowego (RA)) a LPM, z którego wyrastają pąki kończyn. Zmodyfikowane wersje tych protokołów mogą być również wykorzystane do odpowiedzi na inne pytania dotyczące pochodzenia i czasu sygnałów indukcyjnych. Zakładając, że obszar zarodka pisklęcia jest dostępny na odpowiednim etapie rozwoju, można umieścić barierę między dwiema tkankami i w konsekwencji badać zmiany w rozwoju. Przykłady można znaleźć w rozwijającym się mózgu, wydłużeniu osi oraz w rozwoju narządów, takich jak indukcja wątroby lub nerek.
Wprowadzenie
Klasyczni embriolodzy tradycyjnie stosowali techniki fizyczne do badania mechanizmów kontrolujących rozwój embrionalny. W latach sześćdziesiątych i siedemdziesiątych XX wieku badacze opracowali techniki, które wykorzystywały nieprzepuszczalne bariery umieszczone między tkankami rozwijającego się zarodka, aby zademonstrować znaczenie sygnałów indukcyjnych podczas embriogenezy. Interesuje nas rozwój kończyn kręgowców, a w szczególności to, jakie wydarzenia poprzedzają wyrastanie pąków kończyn. Na przykład wprowadzenie bariery może zapobiec wyrastaniu pąków kończyn po jednej stronie zarodka pisklęcia, umożliwiając jednocześnie normalny przebieg po przeciwnej, nieoperowanej stronie. Materiały użyte do wykonania tych barier były różne; Na przykład płytki mikowe 1 i folia tantalowa 2. Bariery te skutecznie oddzielają mezodermę płytki bocznej (LPM), z której tworzy się pączek kończyny, od somitów powstałych z mezodermy przyosiowej. Techniki przeszczepu chirurgicznego pokazują, że ścisły związek z somitami jest niezbędny, jeśli inicjacja zawiązków kończyn ma nastąpić w LPM 34. W latach 80. i 90. biolodzy rozwojowi odkryli dyfuzyjne cząsteczki sygnałowe, które są niezbędne do kontrolowania procesów rozwojowych. Koraliki nasączone tymi cząsteczkami sygnałowymi mogą być zagnieżdżane w określonych obszarach zarodka i powodować zmiany w rozwoju embrionalnym. Na przykład kwas retinowy (RA) pobierany przez kulki jonowymienne jest uwalniany w ciągu 24 godzin po wszczepieniu do zarodka pisklęcia i może powodować lustrzane odbicie cyfr 5. Akrylowe kulki heparyny zawierające białko FGF mogą inicjować wyrastanie pąków kończyn z międzykończynowego LPM 6.
Ostatnio genetyka myszy i ryb przeniosła badania nad inicjacją kończyn kręgowców w nową erę (przejrzane w 7). Istnieją dobre dowody na to, że RZS obecne w somitach przed inicjacją pąków kończyn jest niezbędnym sygnałem dyfuzyjnym wymaganym przez LPM do zainicjowania pączkowania kończyn. Chcieliśmy wykorzystać dostępność i solidność eksperymentalną zarodka pisklęcia, aby przeanalizować wpływ implantacji bariery na ekspresję genów w LPM w czasie inicjacji zawiązków kończyn. Nowatorską adaptacją naszej metody jest połączenie bariery, która blokuje sygnały z tkanek osiowych, z umieszczeniem koralików bocznie do bariery, aby egzogennie dostarczyć kandydujące czynniki endogenne, które zostały zablokowane przez barierę. Poniższe protokoły są tymi, które zostały opracowane w celu poznania mechanizmów indukcji i inicjacji zawiązków kończyn.
Badanie inicjacji zawiązków kończyn oznacza wykorzystanie zarodków we wczesnym stadium. Wielu badaczy bada jaja kurze, usuwając najpierw część albuminy przez worek powietrzny za pomocą igły podskórnej. Zarodek, który leży na żółtku, będzie następnie leżał niżej w jaju. Jest to zaleta niektórych technik, takich jak elektroporacja, ale może być wadą, jeśli pożądana jest chirurgiczna manipulacja zarodkiem. Uważamy, że posiadanie zarodka jak najbliżej otworu w jaju jest zaletą.
Pozostają pytania dotyczące sygnałów, które kontrolują indukcję i inicjację zawiązków kończyn kręgowców, a następujące protokoły są odpowiednie, aby je rozwiązać. Jako pierwsi opracowaliśmy protokół wprowadzania barier zapobiegających wyrastaniu pąków kończyn piskląt na etapie wcześniejszym niż stadium 12 8. Zmodyfikowane wersje tych protokołów mogą być również wykorzystane do odpowiedzi na inne pytania dotyczące pochodzenia i czasu sygnałów indukcyjnych, w których dostępna tkanka indukująca leży w sąsiedztwie indukowanego zawiązka. Zakładając, że obszar zarodka jest dostępny na odpowiednim etapie rozwoju, można umieścić barierę między dwiema tkankami i w konsekwencji badać zmiany w rozwoju. Przykłady można znaleźć w rozwoju mózgu, rozszerzeniu osi i ewentualnie rozwoju narządów, takich jak indukcja wątroby lub nerek.
Protokół
Poniższy protokół wykorzystuje embriony kurcząt z okresu inkubacji krótszego niż dziesięć dni. Wszystkie eksperymenty zostały przeprowadzone zgodnie z wytycznymi dotyczącymi opieki nad zwierzętami King's College London w Wielkiej Brytanii oraz brytyjskiego Home Office.
1. Przygotowania wymagane przed operacją na zarodku kurczaka
- Przygotuj następujące instrumenty chirurgiczne niezbędne do przeprowadzenia operacji, pobrania i utrwalenia embrionów kurczaka: dwie pary pęset zegarmistrzowskich nr 5, jedną parę pęset mocnych, np.nożyczki zakrzywione typu AA z ostrzami o długości 2,5 cm, zakrzywioną pęsetę tępoką z końcówkami o długości około 0,5 cm, a także dwie pary pęset zegarmistrzowskich nr 4 do wykonania barier z folii (1.6.3).
- Wykonaj mikronóż ze stalowego pinu (o średnicy 0,3 mm), ostrząc go na kamieniu osełkowym z użyciem oleju. Korzystając z mikroskopu binokularnego, naostrz końcówkę pinu, nadając jej kształt płaskiego ostrza. Umieść pin w uchwycie do igieł i zabezpiecz jego ostry koniec przed uderzeniami oraz odkształceniami.
UWAGA: Chowanie noża w 1,000 µl do tego celu można wykorzystać końcówkę do pipety. - Przygotuj 70% etanol w plastikowej butelce z rozpylaczem. Przed i po użyciu nanieś niewielką ilość roztworu na ręcznik papierowy i przetrzyj nim narzędzia chirurgiczne oraz mikronóż w celu ich sterylizacji i oczyszczenia.
- Należy zakupić przezroczystą taśmę klejącą o szerokości 5 cm oraz odpowiedni dozownik. Należy znaleźć lub wykonać podstawkę umożliwiającą stabilne utrzymanie jajka kurzego w pozycji poziomej.
- Przygotowanie i przechowywanie roztworów do namaczania kulek.
- Przygotować roztwór białka czynnika wzrostu fibroblastów 4 (FGF4) o stężeniu 0,35 mg/ml z zamrożonego roztworu stokowego o stężeniu 1 mg/ml poprzez rozcieńczenie go wodą i przechowywać w temperaturze -20 °C w 30 µl alikwoty
- Przygotować roztwory kwasu all-trans-retinowego (RA) o stężeniu 0,05 lub 0,1 mg/ml, rozcieńczając roztwór zapasowy o stężeniu 5 mg/ml w dimetylosulfotlenku (DMSO) w ciemnych probówkach do mikrowirówki. Przechowywać roztwór zapasowy oraz 100 µl alikwoty w temperaturze -20 °C.
- Przygotować roztwory BMS 493 (odwrotnego agonisty RAR) o stężeniu 2,5 lub 5 mg/ml, rozcieńczając roztwór stokowy o stężeniu 10 mg/ml w DMSO w ciemnych probówkach do mikrocentryfugi. Przechowywać roztwór stokowy oraz 100 µl alikwoty w temperaturze -20 °C.
- Wykonaj bariery z folii aluminiowej.
UWAGA: Folia użyta do wykonania barier to standardowa folia gastronomiczna (grubość pomierzona mikrometrem wynosi 0,013 mm). Każda domowa folia aluminiowa powinna być odpowiednia.- Wytnij kwadratowy kawałek folii aluminiowej o boku 1 cm i wysterylizuj go, przecierając chusteczką nasączoną 70% etanolem. Umieść go w sterylnej plastikowej szalce Petriego o średnicy 6 cm. Usuń pokrywkę i wykonaj nową pokrywkę do szalki z folii.
UWAGA: Zapobiegnie to późniejszemu przywieraniu wyciętych barier do plastikowej pokrywy szalki na skutek działania sił elektrostatycznych. - Umieść szalkę Petriego na siatce przedmiotowej (o długości 1 cm, podzielonej na 100 sekcji) pod mikroskopem binokularnym z powiększeniem ustawionym na 1,6X. Za pomocą małego skalpela z ostrzem nr 15 wytnij paski folii o dokładnej szerokości, np., 0,7 mm lub 1,3 mm.
- Oddziel paski folii za pomocą dwóch par pincet zegarmistrzowskich nr 4. Następnie wykonaj w centrum bariery foliowej zgięcie pod kątem prostym, tak aby przypominała zawias o określonej szerokości.
UWAGA: Ten kształt bariery został zaczerpnięty z 9, 10Bariera zawiasowa utrzymuje się lepiej niż bariera prosta i płaska. Pinceta nr 4 jest stosunkowo tępą pęsetą i jest używana, ponieważ rzadziej powoduje wgniecenia lub zarysowania w barierach z folii. - Ustaw bariery w centrum szalki Petriego tak, aby jedna strona przylegała płasko do dna szalki, a druga była skierowana ku górze, przesuwając pozostałą nieociętą folię na bok. Przygotuj 20 lub więcej barier przed dniem operacji. Przykryj szalkę pokrywką z folii i przechowuj bariery w miejscu, w którym nie zostaną naruszone.
UWAGA: Nawet lekkie uderzenie może spowodować przewrócenie barier lub ich przywieranie do ścianek szalki wskutek działania ładunków elektrostatycznych.
- Wytnij kwadratowy kawałek folii aluminiowej o boku 1 cm i wysterylizuj go, przecierając chusteczką nasączoną 70% etanolem. Umieść go w sterylnej plastikowej szalce Petriego o średnicy 6 cm. Usuń pokrywkę i wykonaj nową pokrywkę do szalki z folii.
- Inkubować zapłodnione jaja kurze, ułożone na bokach w tekturowych wytłaczankach, w temperaturze 38 °C przez odpowiedni czas przed dniem operacji, tak aby zarodki osiągnęły pożądany 8 etap
2. Przygotowanie embrionów kurzych i kulek w dniu operacji
- Wykonanie „okienka” w inkubowanych jajach kurzych.
UWAGA: Poniższa metoda otwierania jaj została przekazana przez Dennisa Summerbella (niepublikowana).- Kładąc jajo na boku, przebij jego tępy koniec (koniec z komorą powietrzną) mocną pęsetą typu AA, upewniając się, że wewnętrzna błona skorupki została przerwana. Aby to zrobić, mocno zaciśnij pęsetę i wykonaj kontrolowany ruch kłujący, trzymając jajo wolną ręką.
- Chwyć jajo, wciąż leżące na boku, obiema rękami (po obu stronach), obróć je o 180° wzdłuż osi poziomej i umieść z powrotem w wytłaczance tak, aby strona, która była na górze, znajdowała się teraz przy dnie wytłaczanki.
UWAGA: Pozwala to poluzować embrion z błon skorupkowych, co zmniejszy prawdopodobieństwo jego uszkodzenia podczas usuwania fragmentu skorupki nad embrionem. - Odetnij kawałek przezroczystej taśmy o wymiarach około 5 cm x 5 cm i przyklej go ściśle do górnej powierzchni jaja, aby zapobiec osypywaniu się fragmentów skorupki na embrion podczas otwierania jaja.
- Używając zakrzywionych nożyczek, ostrożnie przebij skorupkę i jej błony w centrum górnej części jaja; wykonaj bardzo mały otwór jednym ostrzem nożyczek, aby powietrze mogło dostać się do jaja nad embrionem (który znajduje się tuż pod górną częścią skorupki).
UWAGA: Przebijając jedynie błony skorupkowe, a nie błony pokrywające embrion, wnikające do jaja powietrze oddzieli embrion od skorupki, w wyniku czego embrion spocznie na żółtku w odległości około 0.5-1 cm od skorupki. - Używając zakrzywionych nożyczek, powiększ otwór w skorupce do kształtu koła o średnicy około 1 cm. Usuń wycięty fragment skorupki i zakryj otwór w jajku kawałkiem przezroczystej taśmy o wymiarach około 5 cm x 5 cm. Aby ułatwić późniejsze usunięcie taśmy, dociśnij ją tak, by przylegała tylko do krawędzi otworu, pozostawiając resztę taśmy wolną. Wolny koniec taśmy będzie można chwycić, aby odsłonić jajo.
- Określanie stadium rozwoju embrionów
- Po inkubacji w 38 °C (patrz krok 1.7) i wykonaniu okienka (krok 2.1), użyj mikroskopu binokularnego, aby określić stadium rozwoju embrionów kurzych zgodnie z 8. Należy to zrobić bezpośrednio przed zamknięciem jaj po wykonaniu okienka. Zapisz stadium każdego embrionu na skorupce jaja. Umieść jaja z powrotem w inkubatorze.
UWAGA: Embriony w stadiach od 8 do 15 nadają się do eksperymentów z barierami i koralikami. Prawdopodobieństwo przeżycia embrionów jest większe, jeśli nie przebywały one poza inkubatorem zbyt długo przed zabiegiem.
- Po inkubacji w 38 °C (patrz krok 1.7) i wykonaniu okienka (krok 2.1), użyj mikroskopu binokularnego, aby określić stadium rozwoju embrionów kurzych zgodnie z 8. Należy to zrobić bezpośrednio przed zamknięciem jaj po wykonaniu okienka. Zapisz stadium każdego embrionu na skorupce jaja. Umieść jaja z powrotem w inkubatorze.
- Namaczanie koralików przed zabiegiem.
- FGF4
- Pobierz taką liczbę żelowych koralików do chromatografii powinowactwa (150-300 µm), jaka przylega do końcówki pipety 1 000 µl, i wypłucz je w 1 ml soli fizjologicznej z buforem fosforanowym (PBS) w probówce do mikrocentryfugi, aby usunąć azydki, w których są przechowywane. Wiruj przez 5 s, odrzuć PBS i powtórz ten proces dwukrotnie.
- Namaczaj koraliki żelowe w kropli 30 µl białka FGF4 o stężeniu 0.35 mg/ml na sterylnej szalce Petriego na lodzie przez 30 min. Wybierz koraliki o średnicy około 150 µm za pomocą mikropęsety nr 5 w celu wprowadzenia ich do embrionu.
UWAGA: Koraliki żywicy jonowymiennej używane w następnych krokach manipuluj za pomocą mikropęsety nr 5 i chwyć je bardzo delikatnie, ponieważ koraliki są kruche i mogą pęknąć przy zbyt mocnym ściśnięciu. Ostrzeżenie to dotyczy punktów 2.3.2-2.3.3 oraz wszystkich operacji z koralikami żywicznymi.
- RA
- Rozmroź alikwot all-trans-RA o stężeniu 0.05 lub 0.1 mg/ml rozpuszczonego w DMSO i nanieś kroplę 100 µl na sterylną szalkę Petriego (średnica 9 cm), która została wcześniej owinięta folią, aby chronić RA przed światłem. Użyj końcówki pipety 10 µl, aby nabrać kilka koralików żywicy jonowymiennej w formie chlorkowej i namaczaj je w kropli RA w ciemności, w temperaturze pokojowej przez 20 min.
- Przepłucz koraliki w trzech kolejnych kroplach po 100 µl modyfikowanej pożywki Eagle'a z dodatkiem Dulbecco (DMEM), umieszczonych na tej samej szalce Petriego w odstępach co najmniej 1 cm.
UWAGA: Koraliki absorbują barwnik czerwony fenol z DMEM. Metoda ta opiera się na 5. - Wybierz koraliki o średnicy około 100 µm (rozmiar koralików po namoczeniu waha się od 75-180 µm) do wprowadzenia do embrionu, korzystając z okularnika mikroskopowego pod szalką Petriego i mikropęsety nr 5 do trzymania koralików. Pobierając koralik z kropli 100 µl DMEM, połóż go najpierw na szalce Petriego i usuń pozostałe DMEM, wypychając koralik z kropli lub przykładając zamkniętą pęsetę obok koralika (siły kapilarne odciągną ciecz od koralika).
- BMS 493
- Podobnie jak w przypadku RA (2.3.2), namaczaj koraliki żywicy jonowymiennej w kropli 100 µl BMS 493 o stężeniu 2.5 lub 5.0 mg/ml w DMSO w temperaturze pokojowej przez 20 min, a następnie płucz w kroplach 100 µl DMEM. Wybierz koraliki o średnicy około 100 µm do wprowadzenia do embrionu.
- Kontrola DMSO
- Podobnie jak w przypadku RA (2.3.2), namaczaj koraliki żywicy jonowymiennej w kropli 100 µl DMSO w temperaturze pokojowej przez 20 min, a następnie płucz w kroplach 100 µl DMEM. Wybierz koraliki o średnicy około 100 µm do wprowadzenia do embrionu.
- FGF4
3. Operacje z barierą i kuleczkami
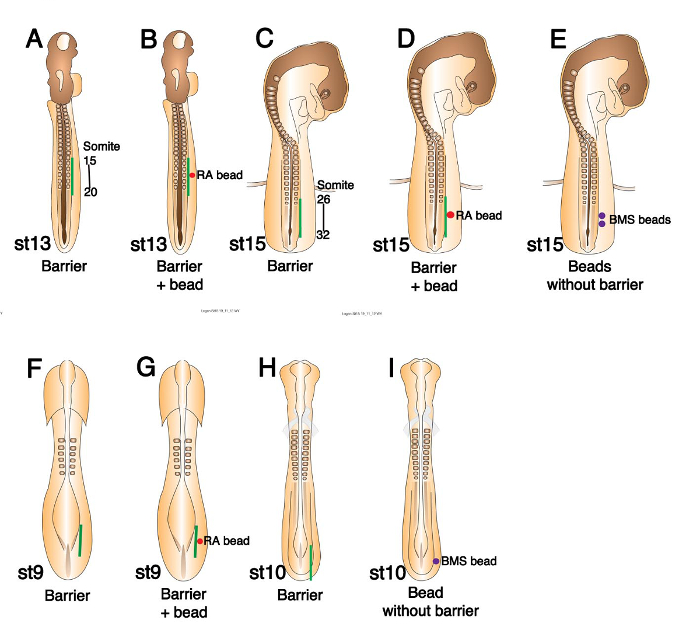
Rysunek 1. Schematy zarodków kurzych na różnych stadiach rozwoju, wskazujące miejsca rozmieszczenia barier i/lub koralików. (A) Schemat zarodka kurczego w stadium 13, pokazujący położenie bariery (zielona linia) pomiędzy somytami a LPM na poziomie przyszłego skrzydła (somyty 15-20). (B) Ten sam schemat co w (A), wskazujący miejsce, w którym należy umieścić koralik RA (czerwone koło) przed wprowadzeniem bariery. (C) Schemat pokazujący położenie bariery (zielona linia) na poziomie przyszłej nogi (somyty 26-32) w zarodku w stadium 15. (D) Ten sam schemat co w (C), wskazujący miejsce, w którym należy umieścić koralik RA (czerwone koło). (E) Schemat wskazujący miejsce, w którym należy umieścić koraliki BMS 493 (fioletowe koła) w LPM zarodka w stadium 15. (F) Schemat zarodka kurczego w stadium 9, wskazujący położenie bariery (zielona linia) pomiędzy mezodermą presomityczną a LPM na poziomie przyszłego skrzydła. (G) Schemat zarodka w stadium 9, pokazujący położenie bariery (zielona linia) i koralika RA (czerwone koło). (H) Schemat zarodka kurczego w stadium 10, pokazujący położenie bariery (zielona linia) na poziomie przyszłej nogi. (I) Schemat pokazujący położenie koralika BMS 493 (fioletowe koło) w LPM na poziomie nogi w stadium 10. Rysunek zmodyfikowany na podstawie 7. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
- Wstawienie bariery w stadium 13 w celu zapobiegania inicjacji pączka skrzydła.
- Wyjąć zarodek w stadium 13 z inkubatora i umieścić jajo na podstawce pod mikroskopem binokularowym ustawionym na powiększenie 3,2X lub wyższe, jeśli jest preferowane. Usunąć górną warstwę przezroczystej taśmy.
- Za pomocą stalowego mikronoża wykonać nacięcie przez błonę witelinową i mezodermę płytki bocznej (LPM) w sąsiedztwie somytów 15 do 20 (Rysunek 1A) po prawej stronie zarodka (w tym stadium nie wszystkie somyty jeszcze się uformowały). Przeciąć w sąsiedztwie ostatnich czterech uformowanych somytów i kontynuować cięcie w kierunku ogonowym na długość dwóch somytów.
- Chwycić barierę (o szerokości 0,7-1 mm) mikro pęsetą nr 5 za koniec wystający z szalki Petriego i obrócić dłoń, aby wsunąć wolny koniec bariery w nacięcie. Bariera w kształcie zawiasu leży płasko na błonie witelinowej nad LPM, przy czym jej połowa wystaje w dół przez nacięcie, dystalnie względem somytów. Jak najszybciej uszczelnić jajo przezroczystą taśmą i zwrócić je do inkubatora.
UWAGA: Mikronóż i pęseta stają się lepkie w kontakcie z błoną witelinową. Ważne jest, aby wytrzeć je do czysta 70% etanolem przed próbą wykonania kolejnej operacji. Dotyczy to wszystkich opisów następnych operacji oraz implantacji kuleczek. - Jeśli kuleczka ma zostać wstawiona wraz z barierą; najpierw chwycić kuleczkę mikro pęsetą nr 5 i wsunąć ją w przeciętą powierzchnię LPM po stronie dystalnej nacięcia, a następnie wsunąć barierę w nacięcie proksymalnie względem kuleczki (Rysunek 1B). Uszczelnić jajo i niezwłocznie zwrócić je do inkubatora.
- Wyjąć zarodek w stadium 13 z inkubatora i umieścić jajo na podstawce pod mikroskopem binokularowym ustawionym na powiększenie 3,2X lub wyższe, jeśli jest preferowane. Usunąć górną warstwę przezroczystej taśmy.
- Wstawienie bariery w stadium 15 w celu zapobiegania inicjacji pączka kończyny dolnej.
UWAGA: Przykład efektu tej operacji na ekspresję czynnika transkrypcyjnego Tbox 4 (Tbx4) pokazano na Rysunku 2D i 2E.- Wyjąć zarodek w stadium 15 z inkubatora i umieścić jajo na podstawce pod mikroskopem binokularnym ustawionym na powiększenie 3,2X lub wyższe, jeśli jest preferowane. Usunąć górną warstwę przezroczystej taśmy.
- Za pomocą stalowego mikronoża wykonać nacięcie przez błonę witelinową i LPM w sąsiedztwie somytów 26 do 32 (Rysunek 1C) po prawej stronie zarodka (w tym stadium nie wszystkie somyty jeszcze się uformowały). Przeciąć w sąsiedztwie ostatnich dwóch uformowanych somytów i kontynuować cięcie w kierunku ogonowym na długość pięciu somytów.
- Chwycić barierę (o szerokości 1,2-1,3 mm) mikro pęsetą nr 5 za jeden koniec i obrócić barierę, aby wsunąć wolny koniec w nacięcie. Jak najszybciej uszczelnić jajo przezroczystą taśmą i zwrócić je do inkubatora.
UWAGA: Bariera w kształcie zawiasu leży płasko na błonie witelinowej nad LPM, przy czym jej połowa wystaje w dół przez nacięcie, dystalnie względem somytów. - Jeśli kuleczka ma zostać wstawiona wraz z barierą, najpierw chwycić kuleczkę mikro pęsetą nr 5 i wsunąć ją w przeciętą powierzchnię LPM po stronie dystalnej nacięcia, a następnie wsunąć barierę w nacięcie proksymalnie względem kuleczki (Rysunek 1D). Uszczelnić jajo i niezwłocznie zwrócić je do inkubatora.
- Jeśli kuleczka lub kuleczki mają zostać wstawione bez bariery, np. kuleczki BMS 493 do regionu kończyny w stadium 15, nie wykonywać długiego nacięcia (3.2.2.1). Wykonać małe nacięcie przez błonę witelinową do LPM w miejscu, w którym ma zostać umieszczona kuleczka. Chwycić kuleczkę mikro pęsetą nr 5 i wsunąć ją w otwór w LPM. Wcisnąć ją nieco głębiej zamkniętymi końcówkami pęsety (Rysunek 1E).
- Wyjąć zarodek w stadium 15 z inkubatora i umieścić jajo na podstawce pod mikroskopem binokularnym ustawionym na powiększenie 3,2X lub wyższe, jeśli jest preferowane. Usunąć górną warstwę przezroczystej taśmy.
- Wstawienie bariery w stadium 9 w celu zapobiegania indukcji i inicjacji pączka skrzydła.
- Wyjąć zarodek w stadium 8 lub 9 z inkubatora i umieścić jajo na podstawce pod mikroskopem binokularnym ustawionym na powiększenie 3,2X lub wyższe, jeśli jest preferowane.
- Za pomocą stalowego mikronoża wykonać nacięcie przez błonę witelinową i LPM bocznie i rostralnie względem prążka pierwotnego, na końcu ogonowym zarodka w linii z somytami (Rysunek 1F), o długości około 5 somytów.
- Chwycić barierę (o szerokości 0,7-1 mm) mikro pęsetą nr 5 za koniec wystający z szalki Petriego i obrócić dłoń, aby wsunąć wolny koniec bariery w nacięcie. Jak najszybciej uszczelnić jajo przezroczystą taśmą i zwrócić je do inkubatora.
UWAGA: Bariera w kształcie zawiasu leży płasko na błonie witelinowej nad LPM, przy czym jej połowa wystaje w dół przez nacięcie. - Jeśli kuleczka ma zostać wstawiona wraz z barierą; najpierw chwycić kuleczkę mikro pęsetą nr 5 i wsunąć ją w przeciętą powierzchnię LPM po stronie dystalnej nacięcia, a następnie wsunąć barierę w nacięcie proksymalnie względem kuleczki (Rysunek 1G). Uszczelnić jajo i niezwłocznie zwrócić je do inkubatora.
- Wyjąć zarodek w stadium 8 lub 9 z inkubatora i umieścić jajo na podstawce pod mikroskopem binokularnym ustawionym na powiększenie 3,2X lub wyższe, jeśli jest preferowane.
- Wstawienie bariery w stadium 10 w celu zapobiegania indukcji i inicjacji pączka kończyny dolnej.
UWAGA: Przykład efektu tej operacji na ekspresję Tbx4 pokazano na Rysunku 2G.- Wyjąć zarodek w stadium 10 z inkubatora i umieścić jajo na podstawce pod mikroskopem binokularnym ustawionym na powiększenie 3,2X lub wyższe, jeśli jest preferowane.
- Za pomocą stalowego mikronoża wykonać nacięcie przez błonę witelinową i LPM bocznie względem prążka pierwotnego, na końcu ogonowym zarodka w linii z somytami (Rysunek 1H), o długości około 6 somytów.
- Chwycić barierę (o szerokości 1,2 mm) mikro pęsetą nr 5 za koniec wystający z szalki Petriego i obrócić dłoń, aby wsunąć wolny koniec bariery w nacięcie. Jak najszybciej uszczelnić jajo przezroczystą taśmą i zwrócić je do inkubatora.
UWAGA: Bariera w kształcie zawiasu leży płasko na błonie witelinowej nad LPM, przy czym jej połowa wystaje w dół przez nacięcie. - Jeśli kuleczka ma zostać wstawiona bez bariery, np. kuleczka BMS 493 do regionu kończyny w stadium 10, wykonać małe nacięcie przez błonę witelinową do LPM w miejscu, w którym ma zostać umieszczona kuleczka. Chwycić kuleczkę mikro pęsetą nr 5 i wsunąć ją w otwór w LPM. Wcisnąć ją nieco głębiej zamkniętymi końcówkami pęsety (Rysunek 1I).
- Wyjąć zarodek w stadium 10 z inkubatora i umieścić jajo na podstawce pod mikroskopem binokularnym ustawionym na powiększenie 3,2X lub wyższe, jeśli jest preferowane.
- Po 24 godzinach lub więcej od operacji sprawdzić położenie bariery w porównaniu z wyłaniającym się przeciwległym pączkiem kończyny. Odrzucić wszystkie zarodki, w których bariera wyraźnie nie znajduje się naprzeciwko lewego pączka kończyny. W takim przypadku bariera została błędnie rozmieszczona.
4. Pozyskiwanie embrionów, fiksacja i przygotowanie do hybrydyzacji in situ całych preparatów (WISH)
- Pozyskiwanie zarodków po operacji.
- Pozyskaj zarodki w stadium 19-23, tak aby morfologia pączka kończyny była wyraźnie widoczna zarówno po stronie operowanej, jak i po przeciwległej stronie kontrolnej.
- Używając zakrzywionych nożyczek, wytnij większy otwór w skorupce jaja. Wytnij obszar wokół zarodka, trzymając duże naczynie krwionośne po lewej stronie zarodka za pomocą mikropincety. Wykorzystaj ten uchwyt naczynia, aby usunąć zarodek i umieścić go w szalce Petri z fosforanem soli buforowej (PBS) o pH 7.3.
- Pod mikroskopem binokularnym odetnij pozazarodkowe naczynia i błony, używając kombinacji zakrzywionych nożyczek i mikropincety nr 5. Usuń głowę za pomocą nożyczek.
- Pozyskaj zarodki w stadium 19-23, tak aby morfologia pączka kończyny była wyraźnie widoczna zarówno po stronie operowanej, jak i po przeciwległej stronie kontrolnej.
- Fiksacja zarodków po pozyskaniu.
- Używając zakrzywionej pęsety tępej, podnieś zarodek i umieść go w 5 ml 4% paraformaldehydu (PFA) w PBS w temperaturze pokojowej przez dwie godziny w warunkach kołysania, a następnie w 4 °C przez noc w szklanej butelce o pojemności 20 ml z zakrętką.
Uwaga: PFA stanowi poważne zagrożenie dla zdrowia. Jest to szkodliwa, żrąca substancja drażniąca; należy zapobiec kontaktowi proszku ze skórą, oczami i płucami. Podczas przygotowywania roztworu należy używać odzieży ochronnej i dygestorium. Po przygotowaniu 4% roztworu należy nosić rękawice, ochronę oczu i fartuch laboratoryjny.
UWAGA: Ważne jest szybkie umieszczenie zarodków w utrwalaczu, aby jak najlepiej zachować integralność mRNA.
- Używając zakrzywionej pęsety tępej, podnieś zarodek i umieść go w 5 ml 4% paraformaldehydu (PFA) w PBS w temperaturze pokojowej przez dwie godziny w warunkach kołysania, a następnie w 4 °C przez noc w szklanej butelce o pojemności 20 ml z zakrętką.
- Usuwanie barier przed hybrydyzacją in situ całego preparatu.
UWAGA: Bariery są usuwane, ponieważ są ostre i mogą uszkodzić zarodki podczas protokołu hybrydyzacji in situ, zwłaszcza gdy barwi się kilka zarodków jednocześnie.- Po fiksacji umieść zarodek w szalce z PBS pod mikroskopem binokularnym.
- Używając dwóch par mikropincet nr 5, umieść lewą parę blisko obu stron bariery po stronie operowanej zarodka. Chwyć barierę prawą parą i delikatnie wyciągnij ją z zarodka, używając lewej pary do przytrzymania zarodka i zapobiegania przyleganiu jakiejkolwiek tkanki do usuwanej bariery.
- Przeprowadź WISH zgodnie z opisem w 11.
Wyniki
Powyższy protokół szczegółowo opisuje metody zastosowane przez Nishimoto i wsp., 2015. Artykuł analizuje indukcję i inicjację pączków kończyn przednich i tylnych zarodka kurca. Wyniki uzyskane po wprowadzeniu nieprzepuszczalnych barier w celu zapobieżenia wzrostowi pączka kończyny przedniej zostały opublikowane wcześniej 1, 2, 9 istnieje jednak tylko jedna praca opisująca bariery zapobiegające inicjacji pączka kończyny 1Dane dotyczące kończyn tylnych od Nishimoto i wsp., 2015 przedstawiono tutaj jako reprezentatywne wyniki badania ekspresji mRNA po wszczepieniu bariery.
Ekspresja Tbx4 w LPM nie jest wystarczająca do zainicjowania wzrostu kończyny tylnej:
Ryciny 2B i C (Tabela 2) pokazują, że wprowadzenie bariery w stadium 15 (Rycina 2A) (patrz protokół 3.2) prowadzi do braku ekspresji zarówno Fgf10, jak i Fgf8 w obszarze pączka kończyny (oznaczonym nawiasem) po operowanej prawej stronie. Porównaj z nieoperowaną lewą stroną. Jednakże ekspresja Tbx4 jest obserwowana zarówno w stadium 19, jak i w stadium 23 po stronie operowanej (Rycina 2D i E). Wnioskujemy, że sama ekspresja Tbx4 nie jest wystarczająca do zainicjowania wzrostu kończyny tylnej z LPM. Inne badania na kurczętach sugerowały, że ekspresja genów Tbx jest wystarczająca do zainicjowania formowania pączka kończyny przedniej 12, 13.
Rysunek 2C' został dołączony, aby zilustrować wygląd bariery osadzonej w obszarze kończyny embrionu po utrwaleniu. W większości przypadków bariery usunięto przed hybrydyzacją in situ (protokół 4.3).
RA z somytów jest niezbędny w LPM przed indukcją wzrostu pączka kończyn przez Fgf10:
Rycina 3A przedstawia schemat dodania koralika nasączonego RA dystalnie względem bariery wprowadzonej w stadium 15 (protokół 3.2.1.3). Po tym zabiegu wzrost pączka kończyny (oznaczony gwiazdką) jest obserwowany po zoperowanej prawej stronie, a Tbx4, Fgf10 i Fgf8 wykazują ekspresję w pączku, podobnie jak po kontrolnej lewej stronie (Rycina 3B, C i D, Tabela 2). Zatem dodanie RA do LPM znosi efekt bariery i następuje inicjacja pączka kończyny. Wyciągamy wniosek, że w normalnym rozwoju RA z somytów jest niezbędny w LPM przed możliwością zainicjowania wzrostu pączka kończyny. Powstałe pączki kończyn tylnych są zazwyczaj mniejsze niż te po stronie kontrolnej. Może to wynikać z faktu, że dawka RA w LPM nie jest równoważna sytuacji w typie dzikim. Jeśli dawka RA jest zbyt wysoka, grzebień ektodermalny apikalny (AER) może ulec skróceniu, co prowadzi do powstania mniejszych pączków 14, 15.
Aby potwierdzić, że RA (pochodzące z somitymów) w LPM jest niezbędne do prawidłowej inicjacji pączka kończyny, zastosowano BMS 493, będący odwrotnym agonistą RAR. Kuleczki implantuje się do LPM w obszarze kończyny dolnej w stadium 15 (patrz protokół 3.2.1.4) (Rysunek 3E). Ekspresja Fgf10 jest obniżona po zastosowaniu kuleczek z BMS 493 w LPM, co skutkuje powstaniem mniejszych pączków kończyn tylnych w porównaniu ze stroną kontrolną (Rysunek 3F; Tabela 3). Kontrolne kuleczki z DMSO nie wywołują tych wad (Rysunki 3G oraz 3H; Tabela 3). Wady zaobserwowane po zastosowaniu BMS 493 są łagodniejsze niż te wywołane operacją bariery; t.j. Fgf10 jest nadal ekspresowany, a pączki kończyn powstają. Prawdobnie wynika to z faktu, że działanie BMS 493 jest ograniczone lokalnie do obszaru wokół kuleczek i może nie być w stanie zneutralizować całego RA produkowanego przez tkanki osiowe.
Wczesne sygnały osiowe specyfikują komórki LPM, które później wykazują ekspresję Tbx4:
Zbadaliśmy, kiedy LPM nabywa zdolności do ekspresji Tbx4 w przyszłym regionie formowania kończyn dolnych. Najwcześniejszym etapem, na którym można wprowadzić barierę blokującą późniejszy wzrost pączka kończyny, jest etap 10. Jako pierwsi opracowaliśmy protokół wprowadzania barier na etapach wcześniejszych niż etap 12. Bariery wprowadzone między mezodermą paraksjalną a domniemanym LPM kończyny dolnej na etapie 10 (patrz protokół 3.4) blokują formowanie pączka kończyny oraz ekspresję Tbx4 w LPM formującej kończynę (Ryciny 2F i 2G, Tabela 2), co sugeruje, że sygnał z tkanek osiowych na etapie 10 jest niezbędny do późniejszej ekspresji Tbx4 w LPM kończyny tylnej. Wynik ten należy porównać z Rycynami 2D i E, gdzie późniejsze wprowadzenie bariery pozwala na ustanowienie ekspresji Tbx4. Ponadto zbadaliśmy, czy sygnałem osiowym tym może być RA, obserwując, czy odwrotny agonista RAR redukuje ekspresję Tbx4. Koralik BMS 493 umieszczony w LPM kończyny tylnej na etapie 10 (patrz protokół 3.4.1.3) obniża poziom ekspresji Tbx4 (Ryciny 2H i 2I), podczas gdy koraliki kontrolne namoczone w DMSO nie wpływają na ekspresję Tbx4 (Ryciny 2J i 2K). Razem wyniki te wspierają model, w którym sygnał RA z tkanek osiowych reguluje indukcję kończyn poprzez pozytywną regulację Tbx4 w LPM kończyny tylnej 7.
Zgony pooperacyjne:
Tabele 1, 2 i 3 zawierają szczegóły dotyczące wyników eksperymentów, w tym liczbę zarodków kurzych, które zginęły po operacji i przed pobraniem próbek. Pewna liczba zgonów jest spodziewana po mikrochirurgii tego rodzaju. Liczbę zgonów można zminimalizować, dbając o to, aby narzędzia były czyste, otwór w jajku miał minimalną wymaganą wielkość, zarodki pozostawały bez ochrony taśmy klejącej przez jak najkrótszy czas, a w powiązaniu z tym ostatnim punktem, aby operacja była przeprowadzona jak najszybciej. Żadna z tych operacji nie jest czasochłonna, jednak zabiegi z użyciem kulek i barier wymagają nieco więcej czasu. Mimo tych środków, operacje przeprowadzane na najwcześniejszych etapach oraz w obszarze skrzydła częściej kończą się śmiercią. W okolicach regionów formujących kończyny znajdują się duże naczynia krwionośne, a ich przypadkowe przerwanie może prowadzić do śmierci z powodu utraty krwi. Zauważono, że jajka otwarte w stadium 8 lub 9, których zarodki nie zostały poddane operacji, często giną do następnego dnia. W związku z tym jedynym rozwiązaniem tych problemów jest przeprowadzenie dużej liczby eksperymentów.
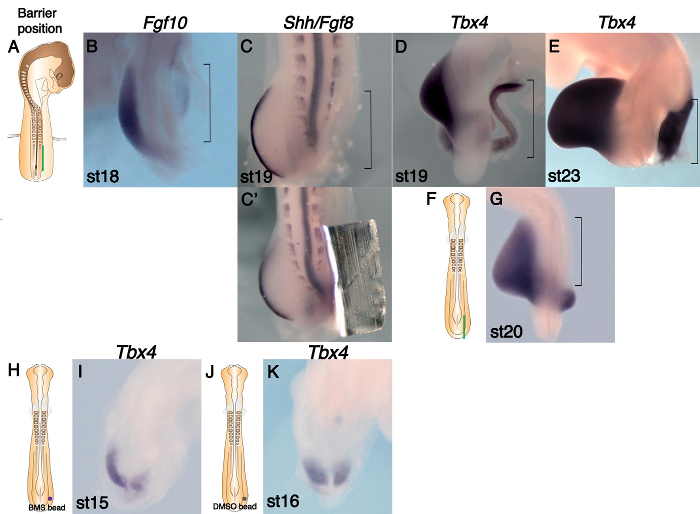
Rycina 2. Zmiany w ekspresji genów markerowych po wstawieniu bariery lub koralika na poziomie domniemanej kończyny dolnej. (A) Schemat przedstawiający położenie bariery (zielona linia) na poziomie domniemanej kończyny dolnej (somity 26-32) w embrionie w stadium 15. (B-E oraz G) Analiza WISH przeprowadzona na operowanych embrionach. Region kończyny jest obrysomowany (nawiasy). (B) Ekspresja Fgf10 nie występuje w operowanym LPM, natomiast silna ekspresja jest wykrywana w lewym pączku. (C) Ekspresja Fgf8 nie występuje po stronie operowanej, co sugeruje brak AER. (C') Ten sam embrion przed usunięciem bariery. (D) Tbx4 jest wyrażany w LPM na tym samym poziomie rostro-kaudalnym co w pączku kontrolnym. (E) Ekspresja Tbx4 jest utrzymana w prawym regionie kończyny mimo braku wzrostu kończyny. (F) Schemat embrionu kurczaka w stadium 10 przedstawiający położenie bariery (zielona linia) na poziomie domniemanej kończyny dolnej. (G) Ekspresja Tbx4 nie występuje w operowanym prawym LPM (nawias). (H) Schemat embrionu kurczaka w stadium 10 przedstawiający położenie koralika z BMS 493 (fioletowe koło) na poziomie domniemanej kończyny dolnej. (I) Ekspresja Tbx4 jest obniżona po operowanej prawej stronie po zastosowaniu BMS 493. (J) Schemat embrionu kurczaka w stadium 10 przedstawiający położenie kontrolnego koralika z DMSO (szare koło). (K) Tbx4 jest wyrażany po operowanej prawej stronie na poziomie zbliżonym do poziomu kontrolnej lewej strony po zastosowaniu samego DMSO. Rycina została zmodyfikowana na podstawie 7. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
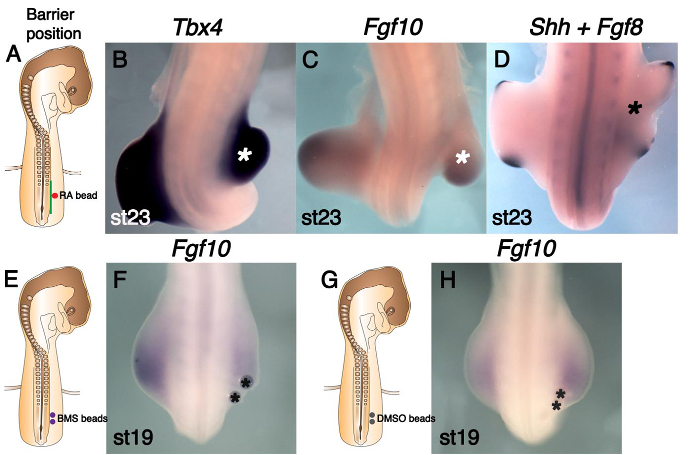
Figura 3. RA przywraca wzrost pączka kończyny po wstawieniu bariery i jest niezbędne w LPM przed wzrostem pączka kończyny dolnej. (A) Schematyczna ilustracja wskazująca pozycję bariery (zielona linia) na poziomie domniemanej kończyny dolnej (somity 26-32) oraz kuleczkę nasączoną RA (czerwone koło). (B-D) RA przywraca wzrost pączka kończyny dolnej (oznaczony gwiazdką). (B) Ekspresja Tbx4 występuje w odtworzonym pączku kończyny, podobnie jak po stronie nieoperowanej. (C) Fgf10 wykazuje ekspresję w odtworzonym pączku kończyny, podobnie jak po stronie nieoperowanej. (D) Fgf8 wykazuje ekspresję w AER odtworzonego prawego pączka kończyny. (E) Schemat wskazujący miejsce umieszczenia kuleczek z BMS 493 (fioletowe koła) w LPM domniemanej kończyny dolnej zarodków w stadium 15. (F) Ekspresja Fgf10 jest obniżona po operowanej stronie prawej, a pączek kończyny jest mały po zastosowaniu BMS 493. Kuleczki są oznaczone gwiazdkami. (G) Schemat analogiczny do (E), wskazujący pozycję kontrolnych kuleczek DMSO (szare koła). (H) Kuleczki DMSO (oznaczone gwiazdkami) nie wpłynęły na ekspresję Fgf10 ani na wielkość pączka kończyny. Figura została zmodyfikowana na podstawie 7. Kliknij tutaj, aby zobaczyć powiększoną wersję tej figury.
| Umieszczono barierę stolika (+ koralik) * | Liczba poddanych operacji | Brak skrzydła | Skrzydło obecne | Liczba martwych |
| Stadium 12-14 | 40 | 24 | 1 | 15 |
| Etap 8/9 | 65 | 23 | 0 | 42 |
| Stadium 12-13 (kulką FGF4) | 41 | 7 (brak koralika) | 17 | 17 |
| Stadium 12-13 (koralik z RA) | 75 | 9 (brak kuleczki) | 32 | 34 |
| Etap 13 (koralik kontrolny) | 5 | 3 | 0 | 2 |
| * Bariery z folii o grubości 0,7–1 mm umieszczone między somytami 15–20 a mezodermą płytki bocznej. Kuleczka z FGF4 o stężeniu 0,35 mg/ml. Kuleczka z RA o stężeniu 0,05–0,1 mg/ml. | ||||
| Koralik kontrolny DMSO. | ||||
| ** Zarodki kurczaka utrwalone w stadiach 21-23 | ||||
Tabela 1. Wyniki eksperymentu z barierą na poziomie skrzydła i koralikiem.
| Umieszczona bariera przedmiotowa (+ kuleczka) * | Liczba operowanych | Brak nogi | Noga obecna ** | Liczba martwych |
| Etap 12-15 | 43 | 39 | 0 | 4 |
| Etap 10/11 | 23 | 16 | 0 | 7 |
| Stadium 15 (koralik FGF4) | 8 | 0 | 5 | 3 |
| Stadium 15 (koralik z RA) | 18 | 0 | 18 | 0 |
| * Bariery z folii o grubości 0,7–1,3 mm umieszczone między somytami 26–32 a mezodermą płytki bocznej. Koralik z FGF4 o stężeniu 0,35 mg/ml. Koralik z RA o stężeniu 0,05–0,1 mg/ml. | ||||
| ** Zarodki kurczęt utrwalone w stadiach 18-24 | ||||
Tabela 2. Wyniki eksperymentu z barierą na poziomie nóg i koralikami.
| Liczba zoperowanych | Mały pączek kończyny | Zalążek nogi nieco za mały | Normalny rozmiar pryzmatu nogi | Liczba martwych osób |
| kuleczki BMS 493 | ||||
| 15 | 12 | 3 | 0 | 0 |
| Kuleczki DMSO | ||||
| 12 | 0 | 3 | 9 | 0 |
| * 2–3 kuleczki namoczone w 5 mg/ml BMS 493 umieszczone w prawym zarodku LPM w stadium 14–15 na poziomie kończyny. | ||||
| ** 2-3 kuleczki namoczone w samym DMSO umieszczone w prawej larwie LPM w stadium 15 na poziomie kończyny. | ||||
| Zarfiksowane zarodki kurczęta w stadiach 17-19. | ||||
Tabela 3. Wyniki eksperymentu z koralikami BMS 493 w zależności od poziomu nogi.
Dyskusja
Opisujemy zastosowanie nieprzepuszczalnych barier zapobiegających tworzeniu się zawiązków kończyn w zarodku pisklęcia. Ta technika składa się z kilku krytycznych kroków. Po wstępnych eksperymentach stwierdziliśmy, że bariery w kształcie zawiasów zastosowane w 9, 10 pozostają na swoim miejscu w zarodku znacznie lepiej niż bariery proste. Dystalna płaska strona bariery przylega do błony witelinowej i utrzymuje barierę na miejscu (rysunek 2C'). Staranne przygotowanie barier w kształcie zawiasów z folii aluminiowej, jak opisano w kroku 1.6 protokołu, ma zasadnicze znaczenie dla powodzenia operacji. Drugim ważnym krokiem jest upewnienie się, że jaja nie są pozostawione poza inkubatorem zbyt długo po oknierzeniu i ocenie stopnia zaawansowania przed operacją na zarodku. Z naszego doświadczenia wynika, że zarodki lepiej przeżywają operację, jeśli w momencie przeprowadzania operacji znajdują się w temperaturze inkubacji lub w jej pobliżu. W związku z tym operacje powinny być przeprowadzane tak szybko, jak to możliwe, a jaja powinny być niezwłocznie ponownie zamykane, aby zapewnić dobre wskaźniki przeżycia. Wielu badaczy dodaje kroplę antybiotyków do zarodka po mikrooperacji przed powrotem jaj do inkubatora. Obecność cieczy uniemożliwiała dobre przyleganie barier na miejscu. Dodanie antybiotyku może również usunąć kulki po umieszczeniu. Dlatego zaleca się niestosowanie antybiotyków, szybkie operacje i dobrą czystość narzędzi, aby uniknąć infekcji. Wycieranie narzędzi 70% etanolem po każdym etapie operacji jest niezbędne, aby zapobiec lepkości narzędzi w kontakcie z membraną witelinową, co może powodować przyleganie zarówno barier, jak i kulek do kleszczy (patrz krok protokołu 3.1.2.2). Obie odmiany użytych koralików mogą wypaść na miejsce po operacji. Kiedy następnego dnia sprawdzono położenie bariery, nie było możliwe zajrzenie przez barierę, aby upewnić się, czy stopka pozostała na swoim miejscu, czy nie. W przypadkach, gdy koralik wypadł, wyrostek pąka skrzydłowego nie został uratowany (tab. 1). Unikanie przenoszenia płynu wraz ze stopką podczas ich implantacji oznacza, że koraliki łatwiej przyklejają się do przeciętej powierzchni LPM (patrz protokół 2.3.2.3). Wreszcie, zapewnienie, że zarodki zostaną utrwalone natychmiast po pobraniu, ma kluczowe znaczenie dla prawidłowej późniejszej analizy ekspresji genów (patrz krok 4.2 protokołu).
Protokół ten modyfikuje wcześniej opublikowane eksperymenty, w których wykorzystywano bariery zapobiegające inicjacji pąków kończyn, określa określone optymalne szerokości barier i wprowadza łączenie umieszczania barier i koralików, a następnie analizę ekspresji genów. Odkryliśmy, że użycie konwencjonalnej folii aluminiowej, która jest tania i łatwo dostępna we wszystkich laboratoriach, daje wyniki równe tym, które wcześniej stosowano przy użyciu folii tantalowej. Folię można pozostawić w zarodku podczas przeprowadzania hybrydyzacji in situ (ryc. 2C'), ale zwykle usuwamy ją, jeśli przetwarzany jest więcej niż jeden zarodek, aby zapobiec uszkodzeniu zarodków przez ostre krawędzie folii. Badania pilotażowe wykazały, że szczególnie ważna jest szerokość barier w obszarze nóg. Początkowo testowane bariery były zbyt krótkie, a wyrastanie pąków nóg nie zostało zapobieżone. 1,2-1,3 mm to optymalna szerokość, aby bariera całkowicie zablokowała wyrastanie pąków nóg. Najwęższe bariery na skrzydłach, które można dokładnie umieścić, aby zapobiec wyrastaniu pąków, zapewniają najlepsze wskaźniki przeżycia. Może to być nawet 0,5-0,7 mm. Jednak bariery, które są nieco szersze, z większym prawdopodobieństwem spowodują całkowite zablokowanie wyrastania pąków skrzydeł, ponieważ pozwalają na niewielką niedokładność umieszczenia (użyliśmy 0,7-1 mm). Unikanie naczyń krwionośnych podczas wykonywania nacięcia ma kluczowe znaczenie dla barier na poziomie pąków skrzydeł. Bariery półprzepuszczalne były wcześniej używane do przecinania pąka kończyn piskląt. MacCabe i Parker, 1976 i Summerbell, 1979 używali filtrów o wielkości porów 0,45 μm i 0,8 μm, odpowiednio 16, 17. Stwierdzili, że sygnały dyfuzyjne mogą przechodzić przez pory w filtrach i że wyniki uzyskane przy użyciu barier półprzepuszczalnych znajdowały się w połowie drogi między pąkiem kończyny bez bariery a pąkiem z nieprzepuszczalnej folii tantalowej. Protokół ten można dostosować do wykorzystania półprzepuszczalnych barier o różnej wielkości porów w celu różnicowania sygnałów kandydujących na podstawie rozmiaru lub modyfikowania dynamiki dyfuzji sygnału.
Protokół ten ma różne ograniczenia, związane głównie z samym organizmem modelowym. Takie techniki mogą być wykorzystane do zbadania dalszych pytań dotyczących rozwoju kończyn, a także innych kwestii związanych z embriogenezą kręgowców. Zastrzeżenie jest takie, że dany narząd/obszar powinien się rozwijać, gdy zarodek pisklęcia jest dostępny do interwencji. Obecność dużych naczyń krwionośnych w obszarze, w którym należy umieścić barierę, sprawia, że umieszczenie bariery później niż na etapie 13 lub 14 jest technicznie trudne. Jeśli duże naczynia krwionośne zostaną przecięte podczas umieszczania bariery, może to spowodować śmiertelność zarodków. Nasze badanie tego, kiedy czynniki transkrypcyjne Tbx5 i Tbx4 są po raz pierwszy indukowane w LPM, było ograniczone przez najwcześniejszy etap, na którym mogliśmy umieścić barierę, która później znalazłaby się naprzeciwko odpowiednio pąka skrzydła lub nogi. Pouczająca może być próba zablokowania indukcji genu Tbx na wcześniejszych etapach, bliżej gastrulacji. Najwcześniej udało się umieścić barierę w przypuszczalnym obszarze skrzydła w stadium 8, a w obszarze nóg w stadium 10. Protokół ten prawdopodobnie nie nadaje się do badania ekspresji genów poza stadiami zawiązków kończyn, ponieważ późniejszy szybki wzrost spowodowałby przemieszczenie bariery, a wyniki odnosiłyby się tylko do początkowej pozycji bariery.
Odnosząc się w tym kontekście do ograniczeń zarodka pisklęcia, można stwierdzić, że jego zalety w porównaniu z innymi modelowymi organizmami kręgowców są liczne. Zarodek pisklęcia jest bardzo odpowiednim modelem zwierzęcym do tego typu fizycznej interwencji w zarodku kręgowców. Zarodki są stosunkowo duże i łatwo dostępne przez skorupkę jaja. Można wrócić do zarodka w celu dalszych eksperymentów (np. usunięcia koralika 18 lub nawet bariery) lub sprawdzić postępy, po prostu usuwając okienko taśmy. Możliwy jest zakres obrazowania na żywo lub obrazowania poklatkowego. Opisujemy metodę okienkowania jaj kurzych, która jest szczególnie odpowiednia do operacji na zarodkach we wczesnym stadium. W przypadku badań kończyn bardzo ważne i pomocne jest, aby dla każdego eksperymentu istniała przeciwległa kończyna kontrolna, która służy jako idealna kontrola wewnętrzna dla każdej repliki biologicznej.
Połączenie stosowania nieprzepuszczalnych barier zapobiegających rozrastaniu się kończyn i koralików nasączonych cząsteczkami sygnałowymi nie zostało wcześniej zgłoszone. Nasza analiza ekspresji mRNA po takich interwencjach jest również nowatorska. Techniki te pozwoliły nam przeanalizować trudny problem, kiedy czynniki transkrypcyjne specyficzne dla kończyn Tbx5 i Tbx4 są indukowane w LPM, a także wykazać, że później, przed inicjacją zawiązków kończyn, obecność tych genów Tbx w LPM nie jest wystarczająca do aktywacji transkrypcji Fgf10 i rozpoczęcia wzrostu pąków kończyn. Rysunki 2G, 2D i 2E dobrze ilustrują te ustalenia. Brak ekspresji Tbx4 po wstawieniu bariery na etapie 10 na rysunku 2G jest w wyraźnym kontraście z jej obecnością w 2D i 2E po indukcji bariery na etapie 15, po indukcji Tbx4. Implantacja kulek nasączonych RZS ułatwiła uratowanie inicjacji zawiązków kończyn po wprowadzeniu bariery, a zatem wskazuje na to, że RZS z somitów jest niezbędne w LPM, zanim zacznie się wyrastanie pąków kończyn. Takie techniki mogą być wykorzystane do rozwiązania dalszych problemów związanych z rozwojem kończyn, ale także innych kwestii związanych z embriogenezą kręgowców. Obszary mózgu, oka i tułowia mogą być odpowiednie.
Oświadczenia
Autorzy deklarują, że nie mają konkurencyjnych interesów finansowych.
Podziękowania
Ta praca została sfinansowana przez grant MRC MC.PC_13052.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Kleszcze zegarmistrzowskie Dumont nr 5, x2 | Narzędzia do nauki pięknej www.finescience.de | 11251-20 | |
| Kleszcze zegarmistrzowskie Dumont nr 4, x2 | Narzędzia do nauki pięknej www.finescience.de | 11241-30 | |
| Kleszcze mocne Dumont, typ AA | Narzędzia do nauki pięknej www.finescience.de | 11210-10 | |
| Nożyczki zakrzywione z ostrzami o długości | 2,5 cmNarzędzia naukowe www.finescience.de | 14061-11 | |
| Kleszcze zakrzywione z tępo zakończonym końcem, końce ok. 0,5 cm długości | Fine Science Tools www.finescience.de | 11065-07 | |
| Stalowy trzpień o szerokości 0,2 mm | Fine Science Tools www.finescience.de | 26002-20 | |
| Kamień do ostrzenia, kwadratowy | Fine Science Tools www.finescience.de | 29008-01 | |
| Olej | |||
| Uchwyt na igłę | Fine Science Tools www.finescience.de | 26016-12 | |
| Taśma przezroczysta, 50 mm x 66 m | www.5staroffice.com | 295985 | |
| Białko | Prezent od Cliffa Tabina. | ||
| kwas all-trans-retinowy | Sigma www.sigmaaldrich.com | R2625-50MG | Pamiętaj o ochronie przed światłem. |
| BMS 493 | Sigma www.sigmaaldrich.com | B6688-5MG | |
| Ostrze skalpela nr 15 | www.swann-morton.com | nr kat. 0105 | |
| Affi-Gel Blue, żel do chromatografii powinowactwa | Bio-Rad www.bio-rad.com | 153-7301 | Koraliki do dostarczania białka. |
| AG1-X2 Żywica jonowymienna | Bio-Rad www.bio-rad.com | 140-1251 | Koraliki do dostarczania RA lub BMS 493. |
| Inkubator do jaj | Memmert | www.hce-uk.com LAB128 | |
| Paraformaldehyd (PFA) | Sigma www.sigmaaldrich.com | P6148-1KG | Szkodliwy, drażniący,. Z proszkiem należy obchodzić się w oparach w pełnym ubraniu ochronnym. |
| Etanol | Sigma www.sigmaaldrich.com | 32221-2.5L | |
| DMEM, wysoka glukoza | Gibco www.thermofisher.com | 41965-039 | 500 ml |
| Dimetylosulfotlenek (DMSO) | Fisher Scientific webshop.fishersci.com | D/4121/PB08 | 500 ml |
| Mikroskop dwuokularowy | Leica www.leica-microsystems.com | MZ6 | zastąpiony przez M60 |
| Jaja kurze | Henry Stewart & Co Ltd sales@medeggs.com | Brązowe jaja |
Bibliografia
- Murillo-Ferrol, N. L. Causal study of the earliest differentiation of the morphological rudiments of the extremities. Experimental analysis on bird embryos. Acta Anat (Basel). 62 (1), 80-103 (1965).
- Sweeney, R. M., Watterson, R. L. Rib development in chick embryos analyzed by means of tantalum foil blocks). Am J Anat. 126 (2), 127-149 (1969).
- Kieny, M. On the relations between somatic and somatopleural mesoderm before and during primary induction of chick embryo limbs. C R Acad Sci Hebd Seances Acad Sci D. 268 (26), 3183-3186 (1969).
- Pinot, M. The role of the somitic mesoderm in the early morphogenesis of the limbs in the fowl embryo. J Embryol Exp Morphol. 23 (1), 109-151 (1970).
- Eichele, G., Tickle, C., Alberts, B. M. Microcontrolled release of biologically active compounds in chick embryos: beads of 200-microns diameter for the local release of retinoids. Anal Biochem. 142 (2), 542-555 (1984).
- Cohn, M. J., et al. Fibroblast growth factors induce additional limb development from the flank of chick embryos. Cell. 80 (5), 739-746 (1995).
- Nishimoto, S., et al. RA Acts in a Coherent Feed-Forward Mechanism with Tbx5 to Control Limb Bud Induction and Initiation. Cell Rep. 12 (5), 879-891 (2015).
- Hamburger, V., Hamilton, H. L. A series of normal stages in the development of the chick embryo. J Morphol. 88 (1), 49-92 (1951).
- Stephens, T. D., McNulty, T. R. Evidence for a metameric pattern in the development of the chick humerus. J Embryol Exp Morphol. 61, 191-205 (1981).
- Strecker, T. R., Stephens, T. D. Peripheral nerves do not play a trophic role in limb skeletal morphogenesis. Teratology. 27 (2), 159-167 (1983).
- Riddle, R. D., et al. Sonic hedgehog mediates the polarizing activity of the ZPA. Cell. 75 (7), 1401-1416 (1993).
- Ng, J. K., et al. The limb identity gene Tbx5 promotes limb initiation by interacting with Wnt2b and Fgf10. Devel. 129 (22), 5161-5170 (2002).
- Takeuchi, J. K., et al. Tbx5 and Tbx4 trigger limb initiation through activation of the Wnt/Fgf signaling cascade. Devel. 130 (12), 2729-2739 (2003).
- Lee, J., Tickle, C. Retinoic acid and pattern formation in the developing chick wing: SEM and quantitative studies of early effects on the apical ectodermal ridge and bud outgrowth. J Embryol Exp Morphol. 90, 139-169 (1985).
- Tickle, C., Crawley, A., Farrar, J. Retinoic acid application to chick wing buds leads to a dose-dependent reorganization of the apical ectodermal ridge that is mediated by the mesenchyme. Devel. 106 (4), 691-705 (1989).
- MacCabe, J. A., Parker, B. W. Evidence for a gradient of a morphogenetic substance in the developing limb. Dev Biol. 54 (2), 297-303 (1976).
- Summerbell, D. The zone of polarizing activity: evidence for a role in normal chick limb morphogenesis. J Embryol Exp Morphol. 50, 217-233 (1979).
- Wilde, S. M., Wedden, S. E., Tickle, C. Retinoids reprogramme pre-bud mesenchyme to give changes in limb pattern. Devel. 100 (4), 723-733 (1987).
Przedruki i uprawnienia
