Przedstawiamy protokół analizy naczyń wieńcowych w całych embrionalnych sercach myszy do E15.5, przy użyciu standardowych metod barwienia immunologicznego, a następnie klirensu optycznego i mikroskopii konfokalnej. Technika ta umożliwia wizualizację naczyń krwionośnych w całym sercu bez konieczności czasochłonnej analizy odcinków seryjnych.
Artykuł metodologiczny
Analiza naczyń wieńcowych w oczyszczonych sercach embrionalnych
W tym artykule
Podsumowanie
Streszczenie
Wizualizacja całego zarodka splotu wieńcowego, z którego uformują się sieci naczyń włosowatych i tętniczych, staje się problematyczna przy użyciu standardowych technik mikroskopowych, ze względu na rozpraszanie światła obrazowania przez grubą tkankę serca, ponieważ naczynia te są zlokalizowane głęboko w ścianach rozwijającego się serca. Ponieważ wykazano, że optyczne oczyszczanie tkanek za pomocą rozpuszczalników organicznych, takich jak BABB (1 część alkoholu benzylowego na 2 części benzoesanu benzylu) znacznie poprawia głębokość penetracji optycznej, którą można osiągnąć, połączyliśmy klirens całych, barwionych immunologicznie serc PECAM1 z laserową skaningową mikroskopią konfokalną, aby uzyskać obrazy naczyń o wysokiej rozdzielczości w całym sercu. Oczyszczanie zarodków serca przez BABB odbywa się szybko i również działa w celu zachowania sygnału fluorescencyjnego przez kilka tygodni; Ponadto próbki mogą być obrazowane wielokrotnie bez utraty sygnału. Ta prosta metoda ma również zastosowanie do obrazowania innych typów naczyń krwionośnych w całych zarodkach.
Wprowadzenie
Stworzenie działającej sieci wieńcowej jest kluczowe dla funkcjonowania serca i rozwoju embrionalnego, a analiza genetycznych mutantów myszy może dostarczyć cennych informacji na temat sygnałów molekularnych leżących u podstaw tego procesu rozwojowego. Zdolność do wizualizacji embrionalnego splotu wieńcowego jako całości, a nie przedstawionego w serii przekrojów histologicznych, jest niezbędna do ułatwienia analizy wzorca naczyń w mutantach genetycznych i pozwala uniknąć potencjalnej utraty informacji, która może wystąpić w wyniku mechanicznego krojenia tkanki. Naczynia, których przeznaczeniem jest tworzenie tętnic i naczyń włosowatych, są zlokalizowane głęboko w ścianach zarówno komór, jak i aorty1-3. Jednakże, podczas gdy znakowanie fluorescencyjne komórek w połączeniu z laserową skaningową mikroskopią konfokalną może zapewnić obrazy o wysokiej rozdzielczości powierzchownych naczyń żylnych/limfatycznychznakowanych całością 4,5, głębokość obrazowania jest ograniczona przez penetrację optyczną. Obrazowanie naczyń włosowatych i tętnic w wysokiej rozdzielczości na całej głębokości serca nie jest zatem możliwe bez jakiejś formy oczyszczania tkanek.
Słaba penetracja optyczna jest spowodowana wysokim współczynnikiem załamania światła wielu komórkowych i zewnątrzkomórkowych (np. kolagenu i włókien elastycznych) składników grubych tkanek. Powoduje to rozproszenie światła obrazowego, powodując rozmycie i zmniejszenie kontrastu. Środki czyszczące zazwyczaj odpowiadają wysokiemu współczynnikowi załamania światła takich tkanek, co oznacza, że światło może bez przeszkód przepływać przez próbkę i wnikać głębiej w tkankę. Przed oczyszczeniem tkanki są na ogół odwodnione, ponieważ woda ma stosunkowo niski współczynnik załamania światła. Ostatnio opracowano wiele nowych metod oczyszczania, jednak w zależności od zastosowanej techniki, proces oczyszczania może trwać dni lub tygodnie i może wymagać kosztownych odczynników6-9. BABB (mieszanina alkoholu benzylowego i benzoesanu benzylu w stosunku 1:2) jest niedrogim, powszechnie stosowanym środkiem czyszczącym, który ma tę zaletę, że niezwykle szybko usuwa próbki. Techniki oczyszczania i obrazowania oparte na BABB zostały opisane wcześniej dla próbek neurologicznych i różnych narządów10-13. Tutaj opisujemy solidną i prostą technikę usuwania BABB próbek barwionych immunologicznie, a następnie mikroskopii konfokalnej, ze szczególnym odniesieniem do badania naczyń krwionośnych w mysich sercach od E (dzień embrionalny) 11,5 - 15,5. Jednak, jak wykazano również, technika ta może być równie dobrze stosowana do analizy całych zarodków, jak również innych typów komórek, o ile dostępne są wysokiej jakości przeciwciała przeciwko markerom będącym przedmiotem zainteresowania.
Protokół
Wszystkie badania na zwierzętach zostały przeprowadzone zgodnie z wytycznymi instytucjonalnymi na licencji brytyjskiego Ministerstwa Spraw Wewnętrznych.
1. Sekcja i utrwalenie embrionalnych serc
- Poddać eutanazji mysz w ciąży w odpowiednim dniu przy użyciu etycznie zatwierdzonej techniki uboju, np. narkozy CO2 , a następnie zwichnięcia szyjki macicy, i usunąć woreczki embrionalne14, umieszczając je na 10-centymetrowej szalce Petriego wypełnionej solą fizjologiczną buforowaną fosforanami (PBS).
- Za pomocą mikroskopu preparacyjnego i kleszczy ostrożnie otwórz woreczki maciczne i usuń każdy zarodek, przecinając pępowinę i usuwając woreczek żółtkowy.
- W celu genotypowania należy usunąć ogon zarodkowy i umieścić w probówce mikrowirówkowej o pojemności 1,5 ml w celu późniejszej lizy/ekstrakcji DNA.
- Aby usunąć serce, należy umieścić każdy zarodek na plecach na wypełnionej PBS, pokrytej elastomerem silikonowym szalce Petriego o średnicy 35 mm, za pomocą szpilek ze stali nierdzewnej. Za pomocą cienkich kleszczy ostrożnie otwórz klatkę piersiową i odetnij duże naczynia przed sercem. Następnie sięgając kleszczami za serce, chwyć naczynia za sercem i delikatnie pociągnij, aby usunąć serce; W tym samym czasie mogą również odejść płuca.
- Przenieść serce na świeżą szalkę Petriego o średnicy 35 mm zawierającą PBS i w razie potrzeby użyć cienkich kleszczyków do odcięcia tkanki płucnej. Następnie przenieś serce do studzienki na 48-dołkowej płytce wypełnionej zimnym PBS.
- Po zebraniu wszystkich serc na 48-dołkowej płytce, odessać PBS plastikową pipetą Pasteura z cienką końcówką i zastąpić 0,5 ml 4% paraformaldehydu (PFA).
ostrożność: PFA jest znany jako alergizujący, rakotwórczy i toksyczny.- Napraw E11,5 - 12,5 serc przez 15 minut, serca E13,5 przez 20 minut i E14,5 - 15,5 serca przez 30 minut, w 4% PFA w temperaturze pokojowej.
- Zassać PFA plastikową pipetą Pasteura z cienką końcówką i opłukać serca 2x w zimnym PBS.
ostrożność: PFA jest niebezpieczny i musi być utylizowany zgodnie z przepisami instytucjonalnymi. - Jeśli nie zostanie natychmiast użyty do barwienia immunologicznego całego wierzchowca (patrz punkt 2), należy odwodnić serca, przeprowadzając kolejne 5-minutowe płukanie w następujących roztworach: 25% metanol/75% PBS, 50% metanol/50% PBS, 75% metanol/25% PBS.
ostrożność: Metanol jest toksyczny, nosić rękawice. Serca należy przechowywać w temperaturze -20 °C w 100% metanolu.
2. Barwienie immunologiczne całego serca embrionalnego za pomocą przeciwciała anty-PECAM1
UWAGA: Przeciwciała anty-PECAM1 działają dobrze do barwienia naczyń wieńcowych (patrz krok 2.4), ale odpowiedni byłby każdy marker śródbłonka, który daje silny sygnał.
- W przypadku użycia serc, które były przechowywane w 100% metanolu, przenieś do probówek do mikrowirówek o pojemności 1,5 ml i ponownie uwodnij, przeprowadzając kolejne 5-minutowe płukanie w następujących roztworach: 75% metanol/25% PBS, 50% metanol/50% PBS i 25% metanol/75% PBS.
- Przepuszczalność serca należy przeprowadzić 3 x 10 min mycia w 0,5 - 1,0 ml PBST (PBS/0,1% Tween-20), obracając w temperaturze pokojowej.
- Zablokuj serca, obracając przez 1 godzinę w temperaturze pokojowej w 1,0 ml 10% koziej surowicy w PBST.
- Usunąć bufor blokujący za pomocą plastikowej pipety Pasteura z cienką końcówką lub końcówki pipety o pojemności 1 000 μl i zastąpić nowym blokiem o pojemności 400 - 500 μl zawierającym przeciwciało pierwszorzędowe anty-PECAM1 rozcieńczone w stosunku 1:50. Obracać rurki przez noc w temperaturze 4 °C.
- Następnego dnia odessać przeciwciało blokowe/pierwszorzędowe za pomocą plastikowej pipety Pasteura z cienką końcówką lub końcówki do pipety o pojemności 1 000 μl i przeprowadzić co najmniej 6 płukań po 1 godzinie w 1,0 ml PBST, obracając probówki w temperaturze pokojowej.
- Zastąpić ostatnie płukanie świeżym buforem blokującym zawierającym sprzężone z fluoroforem przeciwciało drugorzędowe rozcieńczone w stosunku 1:500 i inkubować przez noc w temperaturze 4 °C, obracając się. Chronić przed światłem, owijając probówki folią.
- Następnego dnia odessać przeciwciało blokowe/drugorzędowe za pomocą plastikowej pipety Pasteura z cienką końcówką i przeprowadzić co najmniej 6 razy 1 godzinne płukanie w 1,0 ml PBST, obracając probówki w temperaturze pokojowej.
- Przechowywać serca w temperaturze 4 °C (chronione przed światłem) do czasu, gdy będą potrzebne.
3. Przygotowanie roztworów klarujących i naczyń mikroskopowych
UWAGA: Podczas obrazowania serca w BABB ważne jest, aby żaden z roztworów BABB nie miał kontaktu z elementami mikroskopu. W tym celu poniższy protokół zawiera instrukcje dotyczące przygotowania naczyń z elastomerem silikonowym nadających się do mikroskopii fluorescencyjnej, które można przygotować z dużym wyprzedzeniem. Elastomer silikonowy stanowi barierę zatrzymującą BABB i zapobiegającą jego potencjalnemu przedostawaniu się między szklane dno a poliwęglanowe boki naczynia.
- Aby przygotować naczynia pokryte elastomerem silikonowym, weź naczynia hodowlane ze szkłem optycznym i umieść nakrętkę z zakręcanej fiolki o pojemności 4 ml (o średnicy około 1,5 cm) na środku każdej naczynia.
UWAGA: Utworzy to studzienkę dla próbki, gdy elastomer zostanie nałożony na naczynie. - Napełnij naczynia elastomerem silikonowym na głębokość około 0,5 cm, używając wkładu z aplikatorem, aby wymieszać oba składniki podczas ich nakładania, zgodnie z instrukcjami producenta. Pozostawić do utwardzenia na co najmniej 24 godziny, upewniając się, że nakrętka fiolki pozostaje na środku każdego naczynia.
UWAGA: Używaj okularów ochronnych, aby uniknąć przypadkowego kontaktu elastomeru silikonowego z oczami. - Po utwardzeniu elastomeru zdejmij nakrętkę fiolki z każdej płytki, co pozostawi centralną studzienkę, w której próbka do obrazowania może być umieszczona w bezpośrednim kontakcie ze szklanym dnem naczynia.
UWAGA: po utwardzeniu elastomer powinien być twardy i suchy w dotyku. - Przygotuj roztwór BABB (1 część alkoholu benzylowego na 2 części benzoesanu benzylu). Należy go przechowywać w szklanej butelce i chronić przed światłem.
ostrożność: BABB jest toksycznym, roztworem. Przechowywać w dygestorium w odpowiedniej odzieży ochronnej. - Wymieszaj BABB i metanol, aby uzyskać roztwór w proporcji 50:50 (1 - 5 ml) w szklanej fiolce. Chronić przed światłem, np. owijając fiolkę w folię.
4. Odwodnienie, oczyszczanie i montowanie serc do mikroskopii konfokalnej
UWAGA: Większe próbki można oczyścić w szklanych fiolkach o pojemności 4 ml, jednak w przypadku małych próbek (np. serc do E13,5) lepiej jest przeprowadzić proces oczyszczania bezpośrednio w naczyniu mikroskopowym. Pomaga to zapobiec "utracie" próbek, ponieważ serca stają się bardzo przezroczyste po oczyszczeniu. W przypadku tych małych próbek oczyszczanie jest bardzo szybkie, następuje w ciągu kilku minut.
UWAGA: Chroń próbki przed światłem podczas wszystkich poniższych kroków, owijając/przykrywając probówki i naczynia folią.
- Przed oczyszczeniem należy odwodnić serca wybarwione immunologicznie przez serię metanolu, obracając serca w temperaturze pokojowej w probówce mikrowirówkowej o pojemności 1,5 ml w kolejnych zmianach następujących roztworów: 25% metanol/75% PBS, 50% metanol/50% PBS i 75% metanol/25% PBS (po 5 minut w każdym). Na koniec obracaj przez 3 x 5 minut w 100% metanolu.
- W przypadku serc do E13,5 umieść je na środku naczynia mikroskopowego; pod mikroskopem upewnij się, że serce jest zorientowane stroną grzbietową do góry. Usuń metanol z okolic serca za pomocą plastikowej pipety Pasteura z cienką końcówką.
- Za pomocą czystej, plastikowej pipety Pasteura z cienką końcówką dodaj roztwór BABB:metanol 50:50 w wystarczającej objętości, aby zanurzyć serce (około 300 - 400 μl). Ponieważ serca mogą czasami przewrócić się w roztworze, ponownie sprawdź orientację, gdy serca są nadal nieprzezroczyste. Pozostaw w roztworze na 5 minut.
- Usunąć roztwór w proporcji 50:50 do szklanej butelki na odpady w dygestorii i zastąpić roztworem BABB, ponownie używając plastikowej pipety Pasteura z cienką końcówką.
UWAGA: Duża objętość nie jest wymagana; Dodaj tyle, aby serce znalazło się w kropli roztworu. Serce powinno zniknąć w ciągu 5 minut. - W przypadku większych serc należy umieścić próbki w szklanych fiolkach.
UWAGA: Serce E15.5 powinno zniknąć w ciągu 30 minut do 1 godziny, ale w razie potrzeby można je pozostawić na noc. - Gdy próbka jest klarowna, usunąć roztwór i zastąpić go minimalną objętością BABB. Opcjonalnie przykryj próbkę szkiełkiem nakrywkowym, aby pomóc utrzymać ją na miejscu, jednak nie jest to absolutnie konieczne. Użyj serca do obrazowania.
5. Obrazowanie oczyszczonych serc za pomocą mikroskopii konfokalnej
UWAGA: Obrazy zostały wykonane za pomocą odwróconego mikroskopu konfokalnego przy użyciu suchych obiektywów 10X lub 20X. Chociaż możliwe jest używanie naczyń na pionowym konfokalu, należy zachować szczególną ostrożność, aby uniknąć kontaktu obiektywu z roztworem BABB.
- Zbierz skan z serca15. W zależności od wielkości serca, może być konieczne wykonanie skanu płytki, aby zobrazować całe serce16,
ostrożność: BABB jest roztworem, noś czyste rękawice i upewnij się, że zewnętrzna strona naczynia mikroskopowego jest wolna od BABB. Z naczyniem należy obchodzić się ostrożnie i trzymać pokrywkę na naczyniu, aby zminimalizować ryzyko przypadkowego rozlania na mikroskop. - Jeśli pozwala na to odległość robocza obiektywu, użyj większego powiększenia, aby uzyskać zdjęcia obszarów zainteresowania w wyższej rozdzielczości.
6. Analiza danych za pomocą oprogramowania Fidżi
- Otwórz stos obrazów z na Fidżi17.
- Aby wykonać projekcję z całego stosu lub jego części, kliknij Obraz i wybierz Stos, a następnie Projekt Z. Wprowadź numery wycinków Start i Stop i wybierz typ rzutowania z, np. średnia intensywność, maksymalna intensywność.
- Aby podświetlić poszczególne naczynia w stosie plasterków obrazu, użyj narzędzia Blow (z menu Plugins wybierz Segmentation, a następnie narzędzie Blow/Lasso) i kliknij obszary obrazu, które mają zostać wypełnione w każdym plasterku. Użyj polecenia Wypełnienie (kliknij Edytuj, a następnie wybierz Wypełnij), aby wypełnić wybrane obszary wybranym kolorem pierwszego planu (kliknij Edytuj, a następnie wybierz Opcje, a następnie Kolory i Pierwszy plan).
- Z wyświetla stos obrazów tak jak poprzednio.
7. 3D Renderowanie objętości powierzchni tętnic wieńcowych wygenerowane za pomocą Imaris
- Kliknij ikonę widoku Surpass u góry ekranu, a następnie przeciągnij i upuść plik obrazu do okna danych. Kliknij ikonę Widok 3D u góry ekranu.
- Wybierz ikonę powierzchni (niebieska ikona), a następnie kliknij kartę Utwórz. Kliknij okno dialogowe "Pomiń automatyczne tworzenie, edytuj ręcznie" i kliknij ikonę Rysuj (ikona cienkiego ołówka).
- Wybierz kartę Kontur, a następnie kartę Tryb. W trybie kliknij ikonę magicznej różdżki lub izolini. Wybierz tryb wskaźnika w polu Wskaźnik po prawej stronie ekranu, klikając obok "Wybierz", a następnie kliknij pole "Rysuj" (w lewym dolnym rogu ekranu).
- Użyj narzędzia izolina lub magiczna różdżka, aby zaznaczyć kontury tętnic w kolejnych plasterkach. Przechodzenie od plasterka do plasterka za pomocą suwaka Położenie plasterka.
- Po wybraniu wszystkich konturów kliknij pole Utwórz powierzchnię. Otaczająca objętość może stać się niewidoczna lub mniej lub bardziej nieprzezroczysta za pomocą trybu mieszania; kliknij Głośność, aby go podświetlić, a następnie wybierz kartę Ustawienia, a następnie kartę Tryb. Wybierz Mieszanie i użyj suwaka, aby zmienić krycie.
- Przechwytuj obrazy za pomocą funkcji migawki.
Wyniki
W miarę rozwoju serca mięsień komór znajduje się pod wpływem nacieku komórek śródbłonkowych (EC) pochodzących z różnych źródeł, co prowadzi do powstania splotu naczyniowego. Naczynia rozwijające się w obrębie mięśnia komór utworzą w дальнейшем sieci kapilarne i tętnicze dostarczające natlenowaną krew do tkanki serca18. Jednocześnie (około E11.5) pnie wieńcowe zaczynają rozwijać się niezależnie z oddzielnej sieci kapilarnej (znanej jako splot okołotrunkalny), która otacza światło aorty14,19,20. Komórki EC splotu okołotrunkalnego początkowo tworzą liczne połączenia ze światłem aorty na poziomie zatok zastawkowych, jednak ostatecznie po każdej stronie aorty przetrwa tylko jedno naczynie, które utworzy korzenie lewej i prawej tętnicy wieńcowej21. Od około E13.5 naczynia okołotrunkalne i naczynia mięśnia komór łączą się, tworząc połączoną sieć, co umożliwia przepływ krwi z aorty do naczyń wieńcowych14,22. Barwienie komórek EC przeciwciałem anty-PECAM-1, w połączeniu z przejaśnianiem całych serc metodą BABB, pozwala na analizę rozwijających się sieci wieńcowych od najwcześniejszych możliwych etapów. Na późniejszych etapach rozwoju można również badać wzorzec dojrzewających tętnic wieńcowych. Metodę tę można również wykorzystać do barwienia naczyń całych embrionów (przynajmniej do E11.5), stosując inne przeciwciała, np. anty-alfa aktynę mięśni gładkich (Sm22α) oraz Endomucynę.
Rysunek 1 przedstawia projekcje z o maksymalnej intensywności serca E11.5 wygenerowane przy użyciu oprogramowania Fiji. Funkcja Tile została wykorzystana do zebrania wielu częściowych obrazów serca i zszycia ich w jeden kompletny obraz; jest to przydatne dla uzyskania ogólnego przeglądu barwienia w całym preparacie. Na tym etapie przeciwciało PECAM1 barwi głównie wyściółkę śródbłonną serca i naczyń odpływowych, jednak kilka EC można zaobserwować również w ścianie lewej komory (obszar w ramce na Rysunku1A, powiększony na 1A'). Ponadto splot okołotrunkalny jest wyraźnie widoczny w ścianie odcinka odpływowego (OT) (obszar w ramce na Rysunku 1B). W tym ostatnim przypadku zmniejszenie liczby przekrojów w stosie z użytym do wygenerowania projekcji poprawiło klarowność obrazu, umożliwiając wyraźniejszą wizualizację połączeń z światłem aorty (Rysunek 1B'). Na Rysunku 2 widoczne jest zwiększone unaczynienie w sąsiedztwie aorty w sercu E12.5. Rysunek 3 przedstawia splot okołotrunkalny w sercu E12.5. Projekcja z 12 przekrojów na Rysunku 3A ukazuje cały splot, jednak ponieważ niektóre naczynia są zlokalizowane brzusznie względem światła aorty (które jest również intensywnie barwione przeciwciałem anty-PECAM1), podzielenie stosu z na liczbę podstosów (Rysunek 3B-D) dostarcza więcej informacji wizualnych. Na przykład podstos rzutowany na Rysunku 3B pokazuje naczynie okołotrunkalne łączące się z powierzchnią brzuszną światła aorty, co nie jest widoczne w pełnej projekcji. Rysunek 4 przedstawia część serca E15.5; tętnice wieńcowe są na tym etapie wyraźnie widoczne (Rysunek 4A, projekcja z 30 przekrojów). W projekcjach z 5 przekrojów pokazanych na Rysunkach 4B i C można również zwizualizować zastawki aortalną i płucną za pomocą barwienia PECAM1; odgałęzienia i połączenia sieci naczyń włosowatych wieńcowych są również wyraźniejsze w tych mniejszych projekcjach z podstosów. Techniki segmentacji manualnej zostały wykorzystane do wyróżnienia tętnic wieńcowych przy użyciu Fiji (Rysunek 4D) lub Imaris (Rysunek 4D i E). Trójwymiarowe renderowanie powierzchni objętościowej tętnic wieńcowych/światła aorty wygenerowane za pomocą Imaris można oglądać z otaczającym unaczynieniem lub bez niego (Rysunek 4E i F).
Układ naczyniowy całych zarodków można również badać, wykorzystując barwienie PECAM1 i przejaśnianie metodą BABB. Rysunek 4A i A' przedstawiają projekcje z, wygenerowane odpowiednio z podstosów z prawej strony (przekroje z 11-65) i lewej strony (przekroje z 66-110) zarodka. Porównanie obu obrazów wykazuje, że intensywność sygnału fluorescencyjnego nie zmniejszyła się znacząco wraz z głębszą penetracją tkanki. Na rysunku 4B przeciwciała PECAM1 (sygnał czerwony) i Endomucyna (sygnał zielony) zostały zastosowane łącznie, aby odpowiednio oznakować tętnice międzysomityczne (ISAs) i żyły zarodka w stadium E11.5. Rysunek 4C przedstawia barwienie SM22α (sygnał czerwony) i PECAM1 (sygnał zielony) tętnic ISAs w zarodku w stadium E11.5. Na rysunku 6 zarodki E11.5 barwione PECAM 1 obrazowano bezpośrednio po przejaśnianiu metodą BABB (rysunek4A) lub po przerwie wynoszącej około dwóch miesięcy (rysunek 4B). Sygnał fluorescencyjny był nadal wystarczająco silny, aby umożliwić pomyślne obrazowanie po długotrwałym przechowywaniu próbki w BABB.
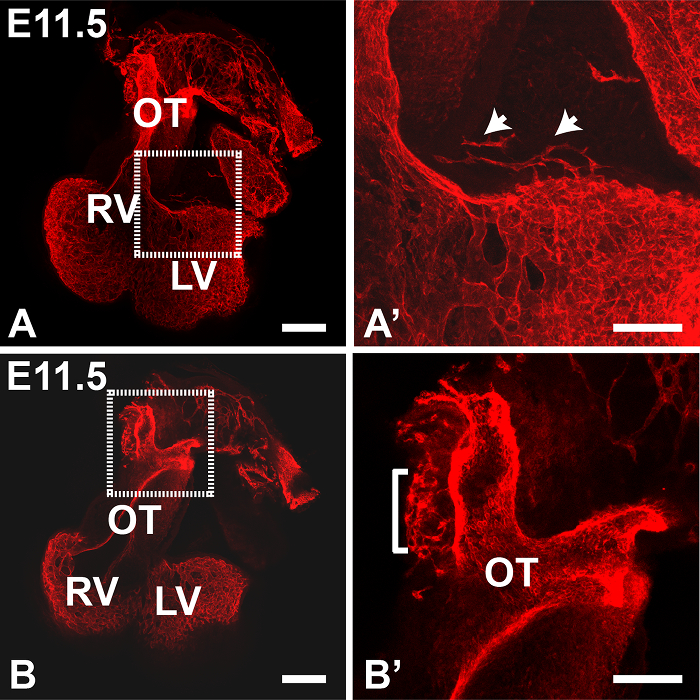
Rycina 1. Immunobarwienie serca E11.5 przeciwciałem anty-PECAM1 (wykrytym za pomocą anty-rat szczurzego IgG sprzężonego z Alexa 594). (A,B) obraz mozaikowy 2 x 2 został zebrany przy użyciu obiektywu 10X odwróconego mikroskopu konfokalnego. Przeciwciało PECAM1 barwi zarówno endokardialne, jak i naczyniowe EC. Projekcje (maksymalna intensywność) zostały wygenerowane z 22 (A) lub 5 (B) przekrojów z, każdy o grubości 4 μm, przy użyciu oprogramowania Fiji. A' i B' to powiększenia obszarów zaznaczonych ramką odpowiednio w A i B. Strzałki w A' wskazują naczynia krwionośne w ścianie komory; w B' nawias wskazuje splot okołopięciowy. OT, droga odpływowa; LV, lewa komora, RV prawa komora. Wszystkie obrazy przedstawiają widoki frontalne. Paski skali w A i B = 200 μm; paski skali w A' i B' = 100 μm. Panel 1B' został zaadaptowany z Ivins et al., 2015 19. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
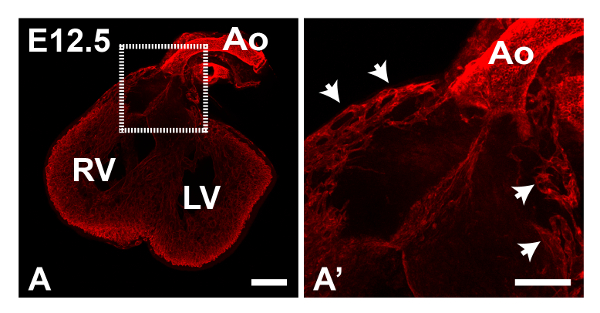
Rysunek 2. Immunobarwienie serca w stadium E12.5 z użyciem przeciwciała anty-PECAM1.Panel A przedstawia projekcję z (maksymalna intensywność) skanu z kafelkowaniem 2x2. Obszar zaznaczony ramką w A został powiększony w A'; strzałki wskazują liczne naczynia krwionośne proksymalnie względem aorty (Ao). LV – lewa komora, RV – prawa komora. Wszystkie obrazy przedstawiają widok frontalny. Pasek skali w A = 200 μm; pasek skali w A' = 100 μm. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
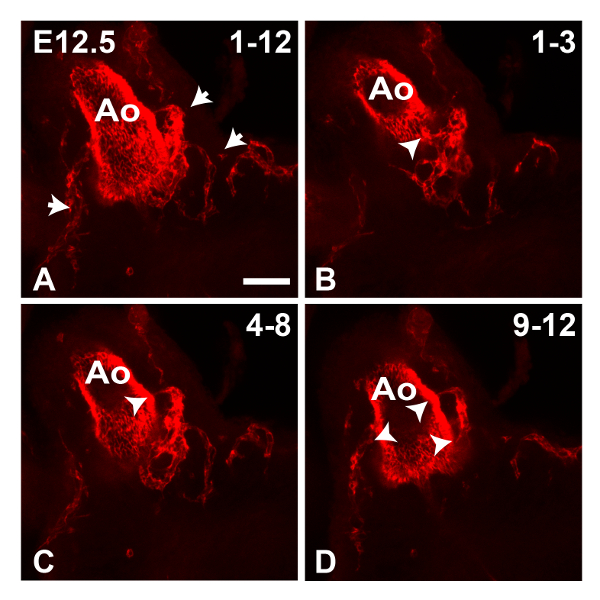
Rysunek 3. Obrazowanie splotu okołotrunkalnego w sercu w stadium E12.5. Obrazy konfokalne aorty (Ao) w stadium E12.5, zabarwione przeciwciałem anty-PECAM1, wykonano przy użyciu obiektywu 10X. Projekcja z (maksymalna intensywność) w A została wygenerowana z 12 przekrojów z (grubość 4 μm); strzałki wskazują naczynia splotu okołotrunkalnego. B-D 12 przekrojów z podzielono na trzy podstosy, jak wskazano, i wykorzystano do wygenerowania oddzielnych projekcji; groty strzałek wskazują połączenia splotu okołotrunkalnego z światłem aorty. Naczynia okołotrunkalne zlokalizowane brzusznie względem światła aorty widoczne są w B i C. Wszystkie obrazy przedstawiają widoki czołowe. Pasek skali = 50 μm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
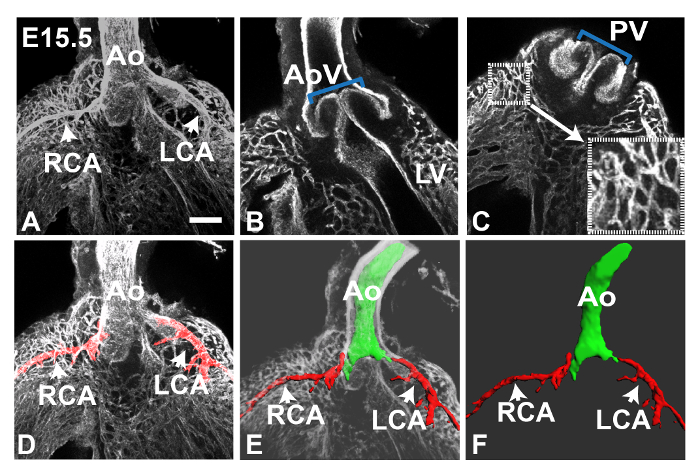
Rysunek 4. Tętnice wieńcowe i splot kapilarny w sercu w stadium E15.5. Obrazy konfokalne serca E15.5 barwionego przeciwciałem anty-PECAM1 wykonano przy użyciu obiektywu 10X. Panel A przedstawia projekcję maksymalnej intensywności z osi z wygenerowaną z 30 warstw (grubość 4 μm); strzałki wskazują lewą i prawą tętnicę wieńcową (LCA i RCA), które widać łączące się z aortą (Ao). Przy użyciu różnych podstosek składających się z 5 warstw z, zastawki aorty i płucne (AoV i PV) widoczne są odpowiednio w panelach B i C (niebieskie nawiasy). Splot kapilarny komór jest również wyraźniejszy w tych mniejszych projekcjach podstosek; naczynia krwionośne w pobliżu zastawki płucnej (mała ramka) przedstawiono w powiększeniu w prawym dolnym rogu panelu C (duża ramka). Do wyróżnienia poszczególnych naczyń krwionośnych wykorzystano program Fiji, np. w przypadku panelu D użyto narzędzia Blow/lasso, aby ręcznie wypełnić tętnice wieńcowe kolorem czerwonym w każdej warstwie z przed wykonaniem projekcji. Oprogramowanie Imaris posłużyło do stworzenia obrazów 3D tętnic (czerwone) i światła aorty (zielone) w panelach E i F; ponownie wykonano to ręcznie, używając narzędzia magicznej różdżki do tworzenia konturów obiektów w każdej warstwie z. Przezroczystość otaczającej objętości można zmienić w trybie Blend, jak pokazano w E. Alternatywnie można wyodrębnić obraz 3D, jak pokazano w F. LV, lewa komora. Wszystkie obrazy przedstawiają widok frontalny. Pasek skali w A = 100 μm. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
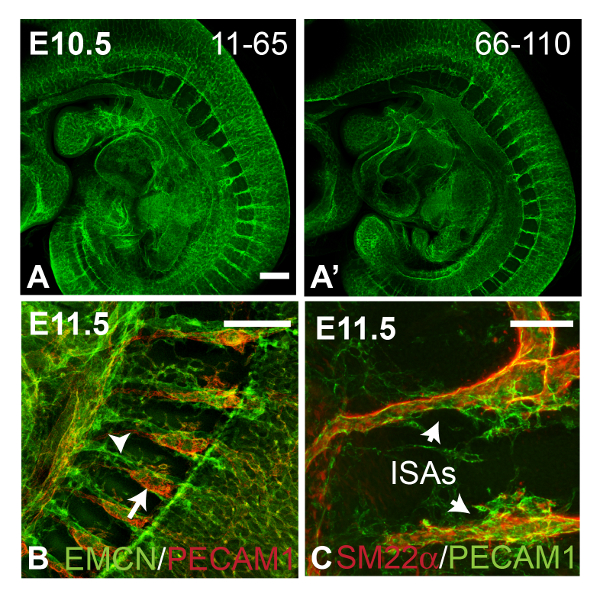
Rysunek 5. Obrazowanie naczyń krwionośnych zarodka. Panele A i A' przedstawiają obrazy konfokalne zarodka typu dzikiego w stadium E10.5, barwionego przeciwciałem anty-PECAM1, zebrane przy użyciu obiektywu 10X (skan mozaikowy). Projekcje z średnią intensywnością w osi z zostały wygenerowane z przekrojów z 11-65 (A) oraz 66-110 (A') skanu składającego się ze 120 przekrojów z w osi z (przekroje o grubości 4 μm), wykazując jedynie niewielki spadek intensywności fluorescencji w całej grubości zarodka. Panel B przedstawia naczynia międzysomityczne zarodka w stadium E11.5, barwione przeciwciałami przeciwko PECAM1 (sygnał czerwony z przeciwciała wtórnego sprzężonego z 594) oraz endomucynie (EMCN, sygnał zielony z przeciwciała wtórnego sprzężonego z 488), które barwią odpowiednio tętnice międzysomityczne (strzałka) i żyły międzysomityczne (grot strzałki) (projekcja z średnią intensywnością w osi z ze skanu mozaikowego). Panel C przedstawia tętnice międzysomityczne (ISA) zarodka typu dzikiego w stadium E11.5, barwione przeciwciałami przeciwko PECAM1 (sygnał zielony z przeciwciała wtórnego sprzężonego z 488) i SM22α (sygnał czerwony z przeciwciała wtórnego sprzężonego z 594). Obrazy konfokalne zebrano przy użyciu suchego obiektywu 20X i wykorzystano do wygenerowania projekcji z maksymalną intensywnością w osi z. Wszystkie obrazy przedstawiają widok strzałkowy. Paski skali w A i B = 250 μm, pasek skali w C = 100 μm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
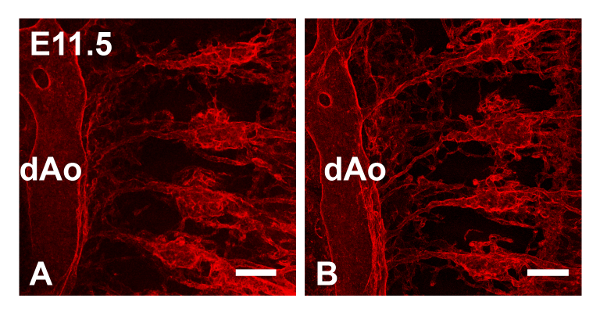
Rycina 6. Próbki barwione immunochemicznie i utrwalone metodą przejaśniania w BABB zachowują sygnał fluorescencyjny przez co najmniej dwa miesiące. Embriony w dniu E11.5 barwiono przeciwciałami przeciwko PECAM1 i poddano przejaśnianiu w BABB; embriony z tej samej partii obrazowano natychmiast lub po przerwie wynoszącej dwa miesiące. Panel A przedstawia tętnice międzysomityczne embrionu obrazowanego natychmiast, a panel B przedstawia embrion obrazowany dwa miesiące później. Obrazy konfokalne wykonano przy użyciu suchego obiektywu 10X i wykorzystano do wygenerowania rzutów z maksymalną intensywnością wzdłuż osi z. dAO, aorta grzbietowa. Obrazy przedstawiają widoki strzałkowe. Paski skali w A i B = 100 μm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Naczynia wieńcowe w całych sercach embrionalnych zobrazowano za pomocą barwienia immunologicznego za pomocą przeciwciała anty-PECAM1, a następnie klirensu optycznego i mikroskopii konfokalnej. Opisana tutaj prosta metoda usuwania embrionalnych serc myszy za pomocą BABB zwiększa penetrację optyczną i umożliwia uchwycenie obrazów o wysokiej rozdzielczości naczyń krwionośnych zlokalizowanych w aorcie i ścianach komór. Odczynniki montażowe na bazie glicerolu, takie jak Vectashield (współczynnik załamania światła 1,45), były również używane do obrazowania naczyń wieńcowych22 , jednak wyższy współczynnik załamania światła BABB (1,56) jeszcze bardziej zmniejsza rozpraszanie światła, umożliwiając głębszą penetrację tkanek. Klirens tkanek eliminuje potrzebę stosowania bardziej złożonych, kosztownych form mikroskopii, takich jak mikroskopia wielofotonowa i mikroskopia arkuszowa, które mogą być trudniej dostępne dla badaczy. Proces oczyszczania jest niezwykle szybki w porównaniu z innymi metodami6-9 i w przypadku małych próbek można go przeprowadzić przy użyciu małych objętości odczynników bezpośrednio na czaszy mikroskopowej. W celu uzyskania wysokiej jakości obrazów wymagane jest solidne barwienie naczyń krwionośnych; Wybrano przeciwciało anty-PECAM1, ponieważ oznacza ono wszystkie typy EC naczyń wieńcowych i stwierdzono, że wiele komercyjnych przeciwciał daje odpowiednio wysoki poziom barwienia. Ponadto barwienie fluorescencyjne wydaje się być wyjątkowo stabilne w BABB; próbki przechowywane w temperaturze pokojowej w systemie BABB (chronionym przed światłem) zachowywały swój sygnał fluorescencyjny przez kilka miesięcy. Fakt, że przeciwciało PECAM1 skutecznie znakuje wsierdzie wieńcowe, a także układ naczyniowy, był czasami problematyczny, zwłaszcza podczas wykonywania obrazów splotu okołorunkowego. Silniejsze zabarwienie światła aorty w porównaniu z EC okołorundowym powodowało ryzyko przesycenia w niektórych obszarach obrazów, co oznaczało, że konieczne było staranne dostosowanie parametrów obrazowania. Idealnie byłoby, gdyby zastosowano przeciwciało barwiące tylko naczyniowe EC; W praktyce jednak znalezienie odpowiednich przeciwciał, które zapewnią wymagany poziom barwienia WholeMount, może być trudne. Ostatnio wykazano, że białko wiążące kwasy tłuszczowe 4 (FABP4) jest markerem EC naczyń wieńcowych23 i dlatego może stanowić alternatywę dla PECAM1.
Aby zachować morfologię 3D aorty i komór serca, próbki nie były montowane płasko, ale zamiast tego zostały zobrazowane w naczyniach ze szklanym dnem. Głębokość próbków, które miały być zobrazowane, wykluczała stosowanie obiektywów o dużym powiększeniu, ze względu na ich krótkie odległości robocze. Jednak obrazy o wysokiej rozdzielczości były nadal osiągalne przy użyciu obiektywu 10X poprzez wydłużenie czasu przebywania pikseli i użycie rozmiaru tablicy pikseli co najmniej 1,024 x 1,024 do przechwytywania obrazu. Było to wystarczające do analizy struktury i rozmieszczenia naczyń wieńcowych, jednak dokładniejsza analiza struktury komórkowej może wymagać płaskiego montażu próbek. Może być również konieczne wypreparowanie poszczególnych części serca w celu montażu, np . ścian komór lub aorty. Alternatywnie można przeprowadzić nadpróbkowanie obrazu, a następnie dekonwolucję w celu zwiększenia rozdzielczości i czułości; Wymaga to jednak znacznie dłuższego czasu skanowania i tworzy niezwykle duże pliki obrazów, które wymagają dużej mocy obliczeniowej do przetworzenia.
Serca do E15,5 zostały z powodzeniem zobrazowane przy użyciu tej metody, a także możliwa jest analiza unaczynienia całych zarodków (do co najmniej E11,5) przy użyciu tego samego protokołu. Inne typy komórek, np. komórki mięśni gładkich, również zostały zobrazowane w naszym laboratorium przy użyciu tej techniki. W przypadku grubszych tkanek, np. serc starszych niż E15,5, penetracja przeciwciał może być czynnikiem ograniczającym; Może być wymagana dłuższa inkubacja i/lub zwiększona ilość detergentu. Ponadto, podczas zbierania dużego stosu obrazów, siła sygnału może zostać zmniejszona, ponieważ lasery wnikają w najdalsze części tkanki; Jednak ustawienia konfokalne można dostosować, aby zwiększać moc lasera wraz ze wzrostem odległości Z.
Metoda ta umożliwia konfokalną analizę mikroskopową zarówno najwcześniejszych etapów powstawania naczyń wieńcowych, jak i modelowania tętnic wieńcowych w późniejszych stadiach rozwojowych. Szczegółowe informacje na temat rozmieszczenia, rozgałęzień i struktury naczyń krwionośnych można uzyskać w krótkim czasie, co czyni je cennym narzędziem do badania genetycznych mutantów myszy ze specyficznymi defektami szlaków angiogenezy.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Praca została sfinansowana przez British Heart Foundation'i wspierana przez National Institute for Health Research Centre Biomedical Research w Great Ormond Street Hospital for Children, NHS Foundation Trust i University College London.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| PBS | Life Technologies | 14190-094 | |
| Kleszcze | FST | 11251-30 | |
| 10 cm szalki Petriego | Falcon | 351029 | |
| 35 mm szalki Petriego | Sigma | P5112 | |
| Szpilki minutienne ze stali nierdzewnej o średnicy 0,2 mm | FST | 26002-20 | |
| Pasetki z cienką końcówką | Alpha Laboratories | LW4061 | |
| Końcówki do pipet 1 000 ml | Sorenson | 34000 | |
| 48-dołkowa płytka | Falcon | 353078 | |
| Kwik-Gard | World Precyzyjny instrument | KWIKGARD | Elastomer silikonowy Sylgard184 zapakowany w kartusz do mieszania i dozowania wkładu |
| Kwik-Gard | Wkład World Precision Instrument | KWIKGLUE | Wkłady i końcówki dozujące |
| Paraformaldehyd | Sigma | P6148 | Uzupełnij w PBS i przechowuj w temperaturze -20 stopni; C |
| 100% metanol | VWR | 20847307 | |
| Tween® 20 | Sigma | P1379 | |
| Surowica kozia | Sigma | G9023 | |
| Przeciwciało anty-PECAM1, szczurze przeciwciało anty-mysie | BD Pharmingen | 553370 | Przeciwciało pierwszorzędowe, rozcieńczone 1 na 50 |
| Poliklonalne anty-CD31, poliklonalne królicze | Abcam | ab28364 | Przeciwciało pierwszorzędowe, rozcieńczone 1 do 50 |
| Klon anty-CD31/PECAM1 2H8, monoklonalny chomik ormiański | Thermo Fisher Scientific | MA3105 | Przeciwciało pierwszorzędowe, rozcieńczone 1 do 400 |
| Przeciwciało endomucyny (V.7C7), monoklonalne szczura | Santa Cruz Biotechnology | sc-65495 | Przeciwciało pierwszorzędowe, rozcieńczone 1 na 50 |
| Przeciwciało alfa anty-SM22, poliklonalne królicze | Abcam | ab14106 | Przeciwciało pierwszorzędowe, rozcieńczone 1 do 250 |
| Kozie przeciwciało anty-szczurze IgG (H + L)Alexa Fluor 594 | Thermo Fisher Scientific | A11007 | Przeciwciało drugorzędowe, rozcieńczone 1 na 500 |
| Kozia anty-królicza IgG (H+L)Alexa Fluor 594 | Thermo Fisher Scientific | Przeciwciało wtórne, rozcieńczone 1 na 500 | |
| Koza anty-ormiański chomik IgG (H+L)Alexa Fluor 488 | Abcam | ab173003 | |
| Koza anty-szczurza IgG (H+L)Alexa Fluor 488 | Thermo Fisher Scientific | A21208 | Przeciwciało drugorzędowe, rozcieńczone 1 na 500 |
| Zakrętka fenolowa | Wheaton | 240408 | |
| Alkohol benzylowy | Sigma | 402834 | |
| benzoesan benzylu | Sigma | B6630 | |
| Imaris | Bitplane Imaging | oprogramowanie | |
| Oprogramowanie | ImageJ NIH | Freeware |
Bibliografia
- Red-Horse, K., Ueno, H., Weissman, I. L., Krasnow, M. A. Coronary arteries form by developmental reprogramming of venous cells. Nature. 464 (7288), 549-553 (2010).
- Tian, X., et al. Subepicardial endothelial cells invade the embryonic ventricle wall to form coronary arteries. Cell Res. 23 (9), 1075-1090 (2013).
- Wu, B., et al. Endocardial cells form the coronary arteries by angiogenesis through myocardial-endocardial VEGF signaling. Cell. 151 (5), 1083-1096 (2012).
- Klotz, L., et al. Cardiac lymphatics are heterogeneous in origin and respond to injury. Nature. 522 (7554), 62-67 (2015).
- Nam, J., et al. Coronary veins determine the pattern of sympathetic innervation in the developing heart. Development. 140 (7), 1475-1485 (2013).
- Zhu, D., Larin, K. V., Luo, Q., Tuchin, V. V. Recent progress in tissue optical clearing. Laser Photon. Rev. 7 (5), 732-757 (2013).
- Chung, K., Deisseroth, K. CLARITY for mapping the nervous system. Nat. Methods. 10 (6), 508-513 (2013).
- Hama, H., et al. Scale: a chemical approach for fluorescence imaging and reconstruction of transparent mouse brain. Nat. Neurosci. 14 (11), 1481-1488 (2011).
- Ke, M. T., Fujimoto, S., Imai, T. SeeDB: a simple and morphology-preserving optical clearing agent for neuronal circuit reconstruction. Nat. Neurosci. 16 (8), 1154-1161 (2013).
- Dodt, H. U., et al. Ultramicroscopy: three-dimensional visualization of neuronal networks in the whole mouse brain. Nat. Methods. 4 (4), 331-336 (2007).
- Zucker, R. M., Hunter, E. S., Rogers, J. M. Confocal laser scanning microscopy of morphology and apoptosis in organogenesis-stage mouse embryos. Methods Mol. Biol. 135, 191-202 (2000).
- Erturk, A., et al. Three-dimensional imaging of solvent-cleared organs using 3DISCO. Nat. Protoc. 7 (11), 1983-1995 (2012).
- Erturk, A., Lafkas, D., Chalouni, C. Imaging cleared intact biological systems at a cellular level by 3DISCO. J. Vis.Exp : JoVE. (89), (2014).
- Dyer, L. A., Wu, Y., Patterson, C. Protein isolation from the developing embryonic mouse heart valve region. J. Vis.Exp s : JoVE. (91), e51911(2014).
- Wilsbacher, L. D., Coughlin, S. R. Analysis of cardiomyocyte development using immunofluorescence in embryonic mouse heart. J. Vis.Exp : JoVE. (97), (2015).
- StitchArt Guide for Zen 2010. , Zeiss. Available from: http://www.google.co.uk/url?sa=t&rct=j&q=&esrc=s&source=web&cd=1&ved=0ahUKEwjC6OPVnO7NAhVD7RQKHQzqALkQFggcMAA&url=ftp%3A%2F%2Fftp.sonic.net%2Fpub%2Fusers%2Flhund%2FMMP%2FBlurWin2012%2FHelpful Docs%2FTiling_and_Stitching in Zen.pdf&usg=AFQjCNH4C6dv8bdmKC651sp_CFz4C1Rq3g (2010).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nature methods. 9 (7), 676-682 (2012).
- Tian, X., Pu, W. T., Zhou, B. Cellular origin and developmental program of coronary angiogenesis. Circ. Res. 116 (3), 515-530 (2015).
- Ivins, S., et al. The CXCL12/CXCR4 Axis Plays a Critical Role in Coronary Artery Development. Dev. Cell. 33 (4), 455-468 (2015).
- Theveniau-Ruissy, M., et al. Coronary stem development in wild-type and Tbx1 null mouse hearts. Dev. Dyn : an official publication of the American Association of Anatomists. 245 (4), 445-459 (2016).
- Tomanek, R. J. Formation of the coronary vasculature during development. Angiogenesis. 8 (3), 273-284 (2005).
- Chen, H. I., et al. VEGF-C and aortic cardiomyocytes guide coronary artery stem development. J. Clin.Iinvest. 124 (11), 4899-4914 (2014).
- Tian, X., et al. Vessel formation. De novo formation of a distinct coronary vascular population in neonatal heart. Science. 345 (6192), 90-94 (2014).
Przedruki i uprawnienia
Tagi
Przezrocznienie tkanek metodą BABBanaliza naczyń wieńcowychobrazowanie zarodkowego sercakonfokalna mikroskopia skaningowaimmunostaining PECAM1wizualizacja całych preparatówmetoda przezrocznienia optycznegoprotokół odwadniania tkanekzachowanie sygnału fluorescencyjnegobadanie naczyń krwionośnych zarodka
