Tutaj opisane są eksperymentalne protokoły przygotowania Drosophila na różnych etapach rozwoju i wykonywania podłużnego optycznego obrazowania uderzeń serca Drosophila za pomocą niestandardowego systemu optycznej mikroskopii koherentnej (OCM). Zmiany morfologiczne i dynamiczne serca można scharakteryzować ilościowo, analizując parametry strukturalne i funkcjonalne serca na podstawie obrazów OCM.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Drosophila Przygotowanie i obrazowanie podłużne funkcji serca in vivo przy użyciu optycznej mikroskopii koherentnej (OCM)
W tym artykule
Podsumowanie
Streszczenie
Podłużne badanie bicia serca u małych zwierząt przyczynia się do zrozumienia zmian strukturalnych i funkcjonalnych podczas rozwoju serca. Wykazano, że optyczna mikroskopia koherentna (OCM) jest w stanie obrazować serca małych zwierząt z wysoką rozdzielczością przestrzenną i ultradużą szybkością obrazowania. Wysoki kontrast obrazu i nieinwazyjne właściwości sprawiają, że OCM idealnie nadaje się do wykonywania badań podłużnych bez konieczności preparowania tkanek lub barwienia. Drosophila jest szeroko stosowana jako organizm modelowy w badaniach rozwojowych serca ze względu na dużą liczbę ortologicznych genów chorób ludzkich, podobieństwo mechanizmów molekularnych i szlaków genetycznych do kręgowców, krótki cykl życia i niski koszt hodowli. W tym miejscu opisano protokoły eksperymentalne dotyczące przygotowania Drosophila i optycznego obrazowania bicia serca za pomocą niestandardowego systemu OCM przez cały cykl życia próbki. Postępując zgodnie z krokami przedstawionymi w tym raporcie, można uzyskać poprzeczne obrazy w trybie M i 3D OCM w celu przeprowadzenia badań podłużnych morfologii i funkcji serca Drosophila. Pokazano również, że obrazy OCM en face i osiowe oraz histogramy tętna (HR) i okresu aktywności serca (CAP) analizują zmiany strukturalne serca i określają ilościowo dynamikę serca podczas metamorfozy Drosophila, w połączeniu z filmami skonstruowanymi za pomocą obrazów w trybie M w celu intuicyjnego śledzenia aktywności serca. Ze względu na podobieństwo genetyczne między Drosophila a kręgowcami, podłużne badania morfologii i dynamiki serca u muszek owocowych mogą pomóc w ujawnieniu pochodzenia chorób serca u ludzi. Protokół ten stanowiłby skuteczną metodę przeprowadzania szerokiego zakresu badań w celu zrozumienia mechanizmów chorób serca u ludzi.
Wprowadzenie
Podłużne badanie serca u małych zwierząt przyczynia się do zrozumienia różnych chorób sercowo-naczyniowych związanych z ludźmi, takich jak wrodzone wady serca związane z genami1,2. W ostatnich dziesięcioleciach różne modele zwierzęce, takie jak mysz3,4, Xenopus5,6, danio pręgowany7,8, ptasi9 i Drosophila10-16, były wykorzystywane do prowadzenia badań związanych z rozwojem ludzkiego serca. Model mysi jest szeroko stosowany do badania prawidłowego i nieprawidłowego rozwoju serca oraz fenotypów wad serca ze względu na podobieństwa do ludzkiego serca3,4. Zarodek Xenopus jest szczególnie przydatny w badaniach nad rozwojem serca ze względu na łatwość obsługi i częściową przezroczystość5,6. Przezroczystość zarodka i wczesnej larwy modelu danio pręgowanego pozwala na łatwą obserwację optyczną rozwoju serca7,8. Model ptasi jest częstym przedmiotem badań rozwojowych serca, ponieważ serce jest łatwo dostępne po usunięciu skorupek jaj i podobieństwie morfologicznym ptasich serc do ludzkich9. Model Drosophila ma kilka unikalnych cech, które sprawiają, że idealnie nadaje się do wykonywania badań podłużnych serca. Po pierwsze, rurka serca Drosophila znajduje się ~ 200 μm poniżej powierzchni grzbietowej, co zapewnia wygodę dostępu optycznego i obserwacji serca. Ponadto wiele mechanizmów molekularnych i szlaków genetycznych jest zachowanych między Drosophila a kręgowcami. Ortologi ponad 75% ludzkich genów chorobowych znaleziono u Drosophila, co sprawiło, że jest on szeroko stosowany w badaniach transgenicznych11,13. Ponadto ma krótki cykl życia i niskie koszty utrzymania oraz jest powszechnie stosowany jako model próbny do badań biologii rozwojowej14-16.
Poprzednie raporty opisywały protokoły monitorowania funkcji serca Drosophila, takich jak bicie serca. Konieczne były jednak zabiegi preparacyjne17,18. Obrazowanie optyczne zapewnia skuteczny sposób wizualizacji rozwoju serca u zwierząt ze względu na jego nieinwazyjny charakter. W badaniach kardiologicznych na zwierzętach zastosowano różne metody obrazowania optycznego, takie jak mikroskopia dwufotonowa19, mikroskopia konfokalna20,21, mikroskopia arkuszy świetlnych22 i optyczna tomografia koherentna (OCT)16,23-26. Dla porównania, OCT jest w stanie zapewnić dużą głębię obrazowania w sercach małych zwierząt bez użycia środków kontrastowych, przy jednoczesnym zachowaniu wysokiej rozdzielczości i ultrawysokiej szybkości obrazowania, które są ważne dla obrazowania żywych zwierząt. Dodatkowo niski koszt opracowania systemu OCT spopularyzował tę technikę obrazowania optycznego próbek. OCT został z powodzeniem wykorzystany do badania podłużnego Drosophila. Za pomocą OCT przeprowadzono obrazowanie morfologiczne i funkcjonalne serca w celu zbadania struktur serca, funkcjonalnych ról genów oraz mechanizmów wad sercowo-naczyniowych w modelach zmutowanych podczas rozwoju serca. Na przykład zależne od wieku pogorszenie czynności serca zostało potwierdzone za pomocą obniżonego genu związanego z konwertasą angiotensyny (ACER) u Drosophila z OCT27. Fenotypowanie kardiomiopatii związanej z genami wykazano u Drosophila przy użyciu OCT28-33. Badania z wykorzystaniem OCT ujawniły również funkcjonalną rolę ludzkiego genu SOX5 w sercu Drosophila34. W porównaniu z OCT, OCM wykorzystuje obiektyw o większej aperturze numerycznej, aby zapewnić lepszą rozdzielczość poprzeczną. W przeszłości badano dysfunkcję serca spowodowaną wyciszeniem ortologicznego ludzkiego genu okołodobowego dCry/dClock przy użyciu niestandardowego systemu OCM15,16, a także wpływ diety wysokotłuszczowej na kardiomiopatie u Drosophila, aby zrozumieć choroby serca wywołane otyłością. 15
Tutaj protokół eksperymentalny jest podsumowany dla podłużnego badania morfologicznych i funkcjonalnych zmian serca u Drosophila w drugim stadium (L2), trzecim stadium (L3), poczwarce dnia 1 (PD1), poczwarki dnia 2 (PD2), poczwarki dnia 3 (PD3), poczwarki dnia 4 (PD4), poczwarki dnia 5 (PD5) i dorosłego (Rysunek 1) przy użyciu OCM w celu ułatwienia badania wrodzonych chorób serca związanych z człowiekiem. Parametry czynnościowe serca, takie jak HR i CAP, analizowano ilościowo na różnych etapach rozwoju, aby ujawnić cechy rozwoju serca.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Przygotowanie systemu OCM do obrazowania optycznego Drosophila16
- Wybierz spektrometr oraz szybką kamerę skanującą liniowo, która zapewnia częstotliwość odświeżania co najmniej 80 frame/sec, aby system OCM był w stanie rozdzielić bicie serca Drosophila.
- Użyj szerokopasmowego źródła światła, aby zapewnić rozdzielczość osiową na poziomie 2 µm w celu zidentyfikowania struktury serca Drosophila.
- Użyj obiektywu 10X, aby uzyskać wysoką rozdzielczość poprzeczną.
- Użyj lustra prętowego 45°, aby odbić wiązkę światła ramienia referencyjnego i wygenerować pierścieniową wiązkę światła ramienia próbki w celu zwiększenia głębokości ostrości w preparatach.
- Opracuj dedykowany program komputerowy do sterowania systemem OCM i przeprowadzania pomiarów.
2. Hodowla Drosophila
- Standardowe przygotowanie pożywki dla muszek
- Za pomocą papierowej rurki nasyp ok. 5 ml gotowej formuły dla Drosophila do polistyrenowej fiolki.
- Wlej ok. 8 ml wody do formuły, aby odpowiednio nasączyć pożywkę.
- W zależności od rodzaju eksperymentu dodaj do standardowej pożywki odpowiednie suplementy. Przygotowując pożywkę z all-trans-retinalem (ATR) do eksperymentu z rozrusznikiem optogenetycznym35, pobierz pipetą 100 mM ATR i rozpuść w ok. 8 ml wody, aby uzyskać stężenie ATR w pożywce równe 1 mM. Po jednorodnym wymieszaniu roztworu, wlej go do formuły i wystarczająco zamieszaj.
- Aby przygotować dietę wysokotłuszczową do badania dysfunkcji serca związanych z otyłością u Drosophila,10,15 wymieszaj w kubku ok. 10 ml formuły z 15 ml wody i podgrzewaj przez 30 s w kuchence mikrofalowej. Do innego kubka wlej organiczny olej kokosowy extra virgin i podgrzewaj go przez 90 s w kuchence mikrofalowej.
- Pobierz 7,5 ml oleju kokosowego i wymieszaj go wystarczająco z przygotowaną formułą, aby stosunek masy do objętości oleju kokosowego do pożywki wyniósł ok. 30/100, a następnie pobierz ok. 2 ml wymieszanej pożywki i umieść ją na dnie fiolki.
- Odczekaj 1 min, aż medium zostanie całkowicie nasycone. Ostrożnie ubij pożywkę płaską powierzchnią, aby zoptymalizować warunki bytowe dla Drosophila. Dodaj 6–8 ziaren drożdży do przygotowanej formuły i zamknij fiolkę czopem z waty.
- Krzyżowanie i hodowla muszek owocówek
- Weź fiolkę z przygotowaną standardową pożywką i usuń watowany czop. Ostrożnie przenieś dorosłe muchy (samce i samice) do fiolki i natychmiast zamknij ją watą. Sprawdź, czy między watą a ścianką fiolki nie ma szczelin, aby zapobiec ucieczce much z fiolki.
- Przechowuj muszki owocówki w inkubatorze w temperaturze 25 °C w celu krzyżowania. Większość genów jest aktywna, a białka komórkowe są syntetyzowane w temperaturze 25 °C36-39.
- Wyjmij fiolkę z inkubatora po 8 dniach i przenieś dorosłe muchy poza fiolkę, aby uzyskać jaja w podobnym wieku do kontroli eksperymentalnej.
- Kontynuuj hodowlę jaj w inkubatorze w temperaturze 25 °C, która jest standardową temperaturą rozwoju Drosophila przy okresie rozwoju wynoszącym 8,5 dnia40,41.
UWAGA: Temperatura wpływa na okres rozwoju (od jaja do dorosłego osobnika) oraz poziom ekspresji różnych genów.
3. Wykonywanie obrazowania optycznego za pomocą OCM
- Montaż larwy muchy do obrazowania optycznego
UWAGA: Jajo Drosophila wykluwa się w ciągu 22 - 24 hr w temperaturze 25 °C w postaci larwy pierwszego stadium (L1). Larwa drugiego stadium pojawia się po kolejnych 24 hr. Największą formą larwalną jest larwa trzeciego stadium, która przechodzi linienie po około 24 hr. Charakterystyka strukturalna larwy może być wykorzystana do rozróżnienia poszczególnych etapów rozwoju. Rozmiar części gębowych różni się między pierwszym a drugim stadium. Haczyki gębowe larwy pierwszego stadium są bardzo małe i wyglądają jak dwie pary maleńkich czarnych kropek, podczas gdy haczyki gębowe larwy drugiego stadium są większe, a ich struktura jest wyraźniejsza. Przetchlinki są zazwyczaj używane do identyfikacji drugiego i trzeciego stadium. Larwa drugiego stadium posiada maczugowate przetchlinki przednie, natomiast w trzecim stadium przetchlinki przednie są rozgałęzione. U larwy trzeciego stadium na końcach przetchlinków tylnych zacznie pojawiać się ciemnopomarańczowy pierścień.- Naklej kawałek dwustronnej taśmy na czyste szkiełko mikroskopowe. Usuń pęcherzyki powietrza spod taśmy, aby uniknąć refleksów spowodowanych przez pęcherzyki podczas obrazowania.
- Wyjmij z inkubatora jedną z probówek z hodowanymi muchami w stadium larwalnym.
- Zidentyfikuj larwę w pożywce, usuń ją z pożywki za pomocą miękkiego pędzla i umieść na czystej chusteczce. Usuń resztki pokarmu przyklejone do larwy za pomocą wilgotnego miękkiego pędzla i osusz ją na chusteczce.
- Przenieś oczyszczoną muchę na chusteczkę pod obiektyw mikroskopu szerokopolowego.
- Ustaw ostrość mikroskopu, aby uzyskać wyraźny obraz muchy. Zidentyfikuj właściwe stadium rozwojowe larwy na podstawie jej cech strukturalnych za pomocą mikroskopu.
- Ustaw muchę za pomocą miękkiego pędzla. Upewnij się, że ciało jest wyprostowane, a strona grzbietowa skierowana do góry, aby przygotować ją do montażu na szkiełku stroną grzbietową. Wykonaj ten krok pod mikroskopem.
- Upewnij się, że larwa jest całkowicie sucha przed przyklejeniem do taśmy. W przeciwnym razie larwa nie będzie przylegać do taśmy.
- Przyciśnij stronę grzbietową ustawionej muchy do dwustronnej taśmy na szkiełku z umiarkowaną siłą. Należy pamiętać, że zbyt silny nacisk może zabić muchę, a zbyt słaba siła doprowadzi do poruszania się muchy podczas obrazowania.
- Obrazowanie optyczne Drosophila w stadiach larwalnych (L2 i L3) za pomocą OCM
UWAGA: Szerokie światło rurki serca znajduje się w segmentach od A5 do A8 w stadiach larwalnych (Rycina 1). Poprzeczne obrazy OCM w trybie M (2D + czas) pozyskano w segmencie A7 rurki serca dla każdej larwy, aby ułatwić analizę skurczową i rozkurczową.- Umieść zamontowaną larwę na regulowanym stoliku z próbką systemu OCM wzdłuż kierunku y-poprzecznego, stroną grzbietową skierowaną do góry, pod obiektywem. Mały otwór w stoliku jest niezbędny do umieszczenia larwy, aby uniknąć jej kontaktu z płaszczyzną stolika.
- Wyreguluj stolik, aby przesunąć rurkę serca muchy owocówki do płaszczyzny ogniskowej wiązki obrazującej. Aby łatwo znaleźć segment A7, zlokalizuj tylny region rurki serca za pomocą obrazów OCM w przekroju poprzecznym w czasie rzeczywistym w oprogramowaniu do akwizycji obrazów. Następnie przesuń stolik do przodu, aż segment A7 stanie się widoczny.
- Ustaw parametry oprogramowania do akwizycji obrazów na 100 A-skanów na B-skan (klatkę), 100 B-skanów oraz napięcie skanera tak, aby objęło ~ 0.28 mm w kierunku x-poprzecznym i 0 V w kierunku y-poprzecznym. Kliknij przycisk „start” w oprogramowaniu, aby pozyskać dane szumu tła do odejmowania tła, blokując drogę wiązki próbki ciemną tkaniną.
UWAGA: Do odejmowania tła można wykorzystać 3 z 100 klatek. - Ustaw parametry oprogramowania do akwizycji danych na 128 A-skanów na B-skan, 4096 B-skanów oraz napięcie skanera tak, aby objęło ~ 0.28 mm w kierunku x-poprzecznym i 0 V w kierunku y-poprzecznym. Kliknij przycisk „start” w oprogramowaniu, aby pozyskać poprzeczne obrazy w trybie M przez segment A7 rurki serca muchy w obszarze o wymiarach 0.28 x 0.57 mm2 przez około 30 sec.
- Zablokuj wiązkę obrazującą ciemną tkaniną podczas procesu zapisu danych, aby uniknąć długotrwałej ekspozycji serca muchy na światło obrazujące.
- Powtórz pomiar 5 razy, aby uzyskać wiarygodny pomiar funkcji serca.
- Ustaw parametry oprogramowania do akwizycji obrazów na 400 A-skanów na B-skan, 800 B-skanów oraz napięcie skanera tak, aby objęło ~ 1.7 mm w kierunku x-poprzecznym i ~ 4 mm w kierunku y-poprzecznym. Przesuń stolik w obu kierunkach, aby upewnić się, że cała mucha owocówka może zostać obrazowana. Kliknij przycisk „start” w oprogramowaniu, aby pozyskać jeden zestaw danych w celu uzyskania obrazów muchy owocówki w 3 wymiarach. Uwaga: Strukturę 3D muchy można wyrenderować za pomocą oprogramowania Amira 3D
- Użyj wilgotnego miękkiego pędzla, aby zwilżyć badaną muchę i delikatnie usuń ją ze szkiełka. Przenieś ją do oddzielnej probówki do dalszego rozwoju. Oznacz probówkę w celu prowadzenia badania podłużnego przez kolejne etapy rozwojowe.
- Obrazowanie Drosophila w stadiach poczwarki
UWAGA: Wszystkie muchy owocówki były wyjmowane do obrazowania od PD1 do PD5. Jak pokazano na schemacie larwy na Rycynie 1b, szerokie światło pozostaje w segmentach od A5 do A8 rurki serca do PD1. Od PD2 zaczyna rozwijać się komora stożkowa między segmentami od A1 do A4. Aby uzyskać spójne obrazy i ułatwić analizę serca, poprzeczne obrazy w trybie M uzyskano z segmentu A7 w PD1 oraz z segmentu A1 po PD2, zgodnie z oznaczeniami na Rycynie 1b.- Obrazowanie Drosophila w PD1
UWAGA: Drosophila posiada białe puparium w krótkim oknie czasowym (0 - 1 hr) podczas PD1. To okno czasowe jest idealne do obrazowania optycznego wczesnej poczwarki, ponieważ wysoka przezroczystość prowadzi do lepszej penetracji światła w obrazowaniu OCM.- Ponieważ muchy owocówki w stadium poczwarki znajdują się na ściankach probówki, usuń poczwarki z poszczególnych probówek do obrazowania w PD1 za pomocą wilgotnego miękkiego pędzla i oczyść poczwarkę pędzlem, jeśli do ciała przyklejony jest pokarm.
- Zamontuj muchę owocówkę bezpośrednio na małym szkiełku za pomocą wilgotnego pędzla, stroną grzbietową skierowaną do góry (Rycina 1a). Upewnij się, że szkiełko jest wystarczająco małe, aby po zakończeniu obrazowania w tym stadium zmieścić się z powrotem w probówce.
- Usuń nadmiar wody z boku ciała muchy.
- Połóż szkiełko na stoliku z próbką systemu OCM, trzymając muchę owocówkę na górze. Uzyskaj wyraźny obraz w czasie rzeczywistym segmentu A7 serca muchy, stosując tę samą strategię, która została opisana przy pomiarze larwy.
- Ustaw te same parametry oprogramowania do akwizycji danych, co w sekcji 3.2, i obrazuj bicia serca w segmencie A7, aby uzyskać poprzeczne obrazy w trybie M oraz obrazy 3D.
- Po obrazowaniu użyj pęsety, aby umieścić szkiełko z poczwarką z powrotem w probówce do dalszej hodowli.
- Obrazowanie Drosophila w stadiach od PD2 do PD5
UWAGA: Ponieważ okaz staje się coraz bardziej nieprzezroczysty w stadiach poczwarki, głębokość penetracji systemu obrazowania ulegnie zmniejszeniu.- Użyj pęsety, aby ostrożnie wyjąć z probówki szkiełko z zamontowaną muchą w PD2 do obrazowania. W PD2 powłoka okazu staje się żółtawa, a ciało mniej przezroczyste w porównaniu z PD1 (Rycina 1).
- Umieść szkiełko na stoliku z próbką systemu OCM.
- Wyreguluj stolik, aby przesunąć muchę do płaszczyzny ogniskowej wiązki obrazującej systemu OCM. Znajdź przedni koniec rurki serca za pomocą obrazu OCM w przekroju poprzecznym w czasie rzeczywistym. Przesuń się o ~ 50 µm w kierunku tylnym, aby znaleźć segment A1 rurki serca.
UWAGA: Na tym etapie rozwoju serca (PD2) komora stożkowa będzie bardzo mała i może nie bić. - Zbierz poprzeczne zestawy danych w trybie M z segmentu A1, a także dane 3D, stosując tę samą metodę, co w poprzednich stadiach rozwojowych.
- Ostrożnie włóż szkiełko z powrotem do probówki do dalszej hodowli.
UWAGA: W PD3 kolor okazu w powłoce jest ciemniejszy niż w stadium PD2. W stadium PD4 wewnątrz powłoki okazów można zaobserwować czarne prążki. Niektóre muchy rozwiną się w dorosłe osobniki w następnym dniu, podczas gdy inne przejdą w PD5. W stadium PD5 czarne prążki są u much owocówek widoczne jeszcze wyraźniej. Muchy te staną się dorosłe w następnym dniu.
- Obrazowanie Drosophila w PD1
- Obrazowanie Drosophila w stadium dorosłym
UWAGA: W stadium dorosłym muchy samice i samce można odróżnić po wielkości ciała i kolorze dolnej części odwłoka. Dorosłe samice są większe, natomiast samce są mniejsze i mają ciemny kolor w dolnej części odwłoka.- Wyjmij probówkę z inkubatora, gdy mucha owocówka rozwinie się w osobnik dorosły, i przenieś dorosłą muchę do pustej fiolki o pojemności ~ 45 ml.
- Zanurz chłonny koniec (długość ~ 1 cm, średnica ~ 3 mm) patyczka w środ znieczulającym, włóż patyczek do fiolki i zakorkuj probówkę kępką waty tak, aby koniec znieczulający znajdował się tuż pod zakorkowaną watą, i znieczul muchę przez 3 min. Czas znieczulenia zależy od wielkości muchy i może wynosić od 2.5 do 3.5 min (na przykład: samiec przez 2.5 min, samica przez 3 lub 3.5 min).
- Przygotuj szkiełko z kawałkiem dwustronnej taśmy.
- Przenieś znieczuloną muchę na szkiełko stroną grzbietową skierowaną do góry za pomocą miękkiego pędzla.
- Rozdziel skrzydła za pomocą pęsety i przyklej je do taśmy pod mikroskopem, aby unieruchomić muchę i odsłonić region serca do obrazowania.
- Wykonaj obrazowanie muchy od segmentu A1 serca muchy (Rycina 1). Na koniec eksperymentu mucha może zostać uśmiercona.
4. Analiza obrazowania16
- Opracować programy w środowisku Matlab w celu konwersji plików binarnych 2D i 3D, zebranych za pomocą oprogramowania do akwizycji obrazu, na pliki obrazów.
- Wykorzystać program ImageJ do identyfikacji obszaru rurki serca na obrazach poprzecznych w trybie M oraz algorytm „magicznej różdżki” (magic wand) do stworzenia maski obszaru serca dla każdego poprzecznego obrazu w trybie M. Wysegmentować zamaskowany obszar i zastosować algorytm wyszukiwania szczytów w celu identyfikacji lokalizacji skurczowych i rozkurczowych. Obliczyć zależne od czasu zmiany średnicy serca na podstawie poprzecznych obrazów w trybie M.
- Na podstawie uzyskanych zależnych od czasu średnic serca obliczyć parametry kardiologiczne, takie jak HR, okres aktywności serca (CAP), średnicę w końcowej rozkurczu (EDD), średnicę w końcowym skurczu (ESD), pole w końcowej rozkurczu (EDA) oraz pole w końcowym skurczu (ESA). Obliczyć frakcję skrócenia (FS) zgodnie z
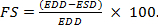
- Wykorzystać program ImageJ do analizy obrazów 3D OCM w celu wizualizacji rozwoju strukturalnego serca muchy.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Podłużne obrazowanie serca przeprowadzono z wykorzystaniem muszek owocowych szczepu 24B-GAL4/+ w temperaturze pokojowej przy użyciu OCM. Pomiary wykonywano w stadiach L2, L3 oraz w odstępach 8-godzinnych od PD1 do PD4, a także w 1. dniu życia imago (AD1), aby śledzić proces metamorfozy (Tabela 1). Larwy, wczesne poczwarki, późne poczwarki oraz dorosłe muchy zamocowano na szkiełkach przedmiotowych, jak pokazano na Ryc. 1A. Cechy segmentów serca larw i dorosłych much przedstawiono na schem...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Szybkie bicie serca Drosophila, z maksymalnym HR około 400 uderzeń na minutę w stadiach larwalnych i dorosłych, wymaga dużej szybkości obrazowania w celu rozwiązania rozkurczów i skurczów serca (nie mniej niż 80 klatek na sekundę w oparciu o doświadczenia). Ze względu na mały rozmiar komory serca i grubość ścianki serca w skali mikronowej (5 - 10 μm), do rozdzielczości struktur rurki serca wymagana jest wysoka rozdzielczość przestrzenna (lepsza niż 2 μm). W tym badaniu opracowano system OCM o wysokiej rozdzielcz...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy deklarują brak konfliktu interesów w związku z niniejszym badaniem.
Podziękowania
Ta praca była wspierana przez Lehigh University Start-Up Fund, NIH (R00EB010071 do C.Z., R15EB019704 do C.Z. i A.L., R03AR063271 do A.L., oraz R01AG014713 i R01MH060009 do R.E.T.), NSF (1455613 do C.Z. i A.L.), Cure Alzheimer's Fund (do R.E.T.) oraz Massachusetts General Hospital (Nagroda Komitetu Wykonawczego ds. Badań dla A.L.). M.C. i Y.M. były wspierane przez National Key Basic Research Program Chin (Program 973) w ramach grantu nr 2014CB340404.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Niestandardowy system obrazowania OCM | Opracowany w naszym laboratorium | ||
| mój Temp Mini Cyfrowy inkubator | Benchmark | H2200-HC | |
| Szkło osłonowe | AmScope | 200 sztuk Bawełniana kulka | |
| RITE AID | |||
| Instant Drosophila Formuła | CAROLINA | Formuła 4-24 | |
| Drożdże | ActiveDry | ||
| Mikroskop | SONY | WILD M420 | |
| Szczotka | Loew-Cornell | 245B | służy do przenoszenia próbek |
| Oprogramowanie Labview | |||
| ImageJ | National Institutes of Health | ||
| Matlab | Mathworks | ||
| Pęseta | Wiha | AA SA | do mocowania owoców skrzydła latające |
| FlyNap | Carolina Biological Supply Company | 4,224,898 | |
| dwustronna szkocka, 3-metrowa | szkocka | ||
| Fisherbrand | MU18837 | ||
| Organiczny ekstra olej kokosowy | Spring Valley | 13183 | |
| Szkiełko mikroskopowe | CapitolBrand | M3504-E | |
| Drosophila Fiolki | SEOH | 8401SS | |
| All-trans-retinal | Sigma-Aldrich Co. | Czynnik R2500 |
Bibliografia
- Liberatore, C. M., Searcy-Schrick, R. D., Yutzey, K. E. Ventricular expression of tbx5 inhibits normal heart chamber development. Dev. Biol. 223 (1), 169-180 (2000).
- Christoffels, V. M., et al. Chamber formation and morphogenesis in the developing mammalian heart. Dev. Biol. 223 (2), 266-278 (2000).
- Wessels, A., Sedmera, D. Developmental anatomy of the heart: a tale of mice and man. Physiol. Genomics. 15 (3), 165-176 (2003).
- Savolainen, S. M., Foley, J. F., Elmore, S. A. Histology atlas of the developing mouse heart with emphasis on E11.5 to E18.5. Toxicol. Pathol. 37 (4), 395-414 (2009).
- Yang, V. X. D., et al. High speed, wide velocity dynamic range Doppler optical coherence tomography (Part II): Imaging in vivo cardiac dynamics of Xenopus laevis. Opt. Express. 11 (14), 1650-1658 (2003).
- Yelin, R., et al. Multimodality optical imaging of embryonic heart microstructure. J. Biomed. Opt. 12 (6), 064021(2007).
- Bakkers, J. Zebrafish as a model to study cardiac development and human cardiac disease. Cardiovasc. Res. 91 (2), 279-288 (2011).
- Staudt, D., Stainier, D. Uncovering the molecular and cellular mechanisms of heart development using the zebrafish. Annu. Rev. Genet. 46, 397-418 (2012).
- Drake, V. J., Koprowski, S. L., Lough, J. W., Smith, S. M. Gastrulating chick embryo as a model for evaluating teratogenicity: a comparison of three approaches. Birth Defects Res. A. 76 (1), 66-71 (2006).
- Birse, R. T., et al. High-fat-diet-induced obesity and heart dysfunction are regulated by the TOR pathway in Drosophila. Cell Metab. 12 (5), 533-544 (2010).
- Bodmer, R. Heart development in Drosophila and its relationship to vertebrates. Trends in Cardiovas. Med. 5 (1), 21-28 (1995).
- Harvey, R. P. Nk-2homeobox genes and heart development. Dev. Biol. 178 (2), 203-216 (1996).
- Bodmer, R., Venkatesh, T. V. Heart development in Drosophila and vertebrates: conservation of molecular mechanisms. Dev Genet. 22 (3), 181-186 (1998).
- Cripps, R. M., Olson, E. N. Control of cardiac development by an evolutionarily conserved transcriptional network. Dev. Biol. 246 (1), 14-28 (2002).
- Men, J., et al. Optical coherence tomography for brain imaging and developmental biology. J. Sel. Top. Quantum Electron. 22 (4), 6803213(2016).
- Alex, A., et al. A circadian clock gene, Cry, affects heart morphogenesis and function in Drosophila as revealed by optical coherence microscopy. PloS one. 10 (9), e0137236(2015).
- Vogler, G., Ocorr, K. Visualizing the beating heart in Drosophila. J Vis Exp. (31), e1425(2009).
- Cooper, A. S., Rymond, K. E., Ward, M. A., Bocook, E. L., Cooper, R. L. Monitoring heart function in larval Drosophila melanogaster for physiological studies. J Vis Exp. (33), e1425(2009).
- Yalcin, H. C., et al. Two-photon microscopy-guided femtosecond-laser photoablation of avian cardiogenesis: noninvasive creation of localized heart defects. Am. J. Physiol. Heart C. 299 (5), H1728-H1735 (2010).
- Dolber, P. C., Spach, M. S. Conventional and confocal fluorescence microscopy of collagen fibers in the heart. J. Histochem. Cytochem. 41 (3), 465-469 (1993).
- Mao, H., Gribble, M., Pertsov, A. M., Wang, L., Shi, P. Understanding embryonic heart morphogenesis through automatic segmentation and confocal imaging with optical clearing. ISBI. , 1303-1306 (2014).
- Bouchard, M. B., et al. Swept confocally-aligned planar excitation (SCAPE) microscopy for high-speed volumetric imaging of behaving organisms. Nat. Photonics. 9 (2), 113-119 (2015).
- Boppart, S. A., et al. Noninvasive assessment of the developing Xenopus cardiovascular system using optical coherence tomography. Proc. Natl. Acad. Sci. 94 (9), 4256-4261 (1997).
- Kagemann, L., et al. Repeated, noninvasive, high resolution spectral domain optical coherence tomography imaging of zebrafish embryos. Molecular Vision. 14, 2157-2170 (2008).
- Jenkins, M. W., et al. Ultrahigh-speed optical coherence tomography imaging and visualization of the embryonic avian heart using a buffered Fourier Domain Mode Locked laser. Opt. Express. 15 (10), 6251-6267 (2007).
- Larin, K. V., Larina, I. V., Liebling, M., Dickinson, M. E. Live imaging of early developmental processes in mammalian embryos with optical coherence tomography. J. Innov. Opt. Health Sci. 2 (03), 253-259 (2009).
- Liao, F. -T., Chang, C. -Y., Su, M. -T., Kuo, W. -C. Necessity of angiotensin-converting enzyme-related gene for cardiac functions and longevity of Drosophila melanogaster assessed by optical coherence tomography. J. Biomed. Opt. 19 (1), 011014(2014).
- Wolf, M. J., et al. Drosophila as a model for the identification of genes causing adult human heart disease. Proc. Natl. Acad. Sci. 103 (5), 1394-1399 (2006).
- Choma, M. A., Izatt, S. D., Wessells, R. J., Bodmer, R., Izatt, J. A. In vivo imaging of the adult Drosophila melanogaster heart with real-time optical coherence tomography. Circulation. 114 (2), e35-e36 (2006).
- Li, A., et al. Changes in the expression of the Alzheimer's disease-associated presenilin gene in drosophila heart leads to cardiac dysfunction. Curr. Alzheimer Res. 8 (3), 313(2011).
- Choma, M. A., Suter, M. J., Vakoc, B. J., Bouma, B., Tearney, G. J. Heart wall velocimetry and exogenous contrast-based cardiac flow imaging in Drosophila melanogaster using Doppler optical coherence tomography. J. Biomed. Opt. 15 (5), 056020(2010).
- Choma, M. A., Suter, M. J., Vakoc, B. J., Bouma, B. E., Tearney, G. J. Physiological homology between Drosophila melanogaster and vertebrate cardiovascular systems. Dis. Model. Mech. 4 (3), 411-420 (2011).
- Tsai, M. T., et al. Noninvasive imaging of heart chamber in Drosophila with dual-beam optical coherence tomography. J. Biophotonics. 6 (9), 708-717 (2013).
- Li, A., et al. Silencing of the Drosophila ortholog of SOX5 in heart leads to cardiac dysfunction as detected by optical coherence tomography. Hum. Mol. Genet. 22 (18), 3798-3806 (2013).
- Alex, A., Li, A., Tanzi, R. E., Zhou, C. Optogenetic pacing in Drosophila melanogaster. Sci. Adv. 1 (9), e1500639(2015).
- Mirault, M. E., Goldschmidt-Clermont, M., Moran, L., Arrigo, A. P., Tissieres, A. The effect of heat shock on gene expression in Drosophila melanogaster. IEEE T. Med. Imaging. 42, 819-827 (1978).
- Boothroyd, C. E., Wijnen, H., Naef, F., Saez, L., Young, M. W. Integration of Light and Temperature in the Regulation of Circadian Gene Expression in Drosophila. PLoS Genet. 3 (4), (2007).
- McGuire, S. E., Roman, G., Davis, R. L. Gene expression systems in Drosophila: a synthesis of time and space. Trends Genet. 20 (8), 384-391 (2004).
- Ashburner, M., Bonner, J. J. The induction of gene activity in drosophila by heat shock. Cell. 17 (2), 241-254 (1979).
- Ashburner, M., Thompson, J. N. Jr Laboratory culture of Drosophila. 2a, Academic Press. London. 1-109 (1978).
- Ashburner, M. Drosophila: a laboratory handbook. , Cold Spring Harbor Laboratory Press. (1978).
- Molina, M. R., Ostia Cripps, R. M. the inflow tracts of the Drosophila heart, develop from a genetically distinct subset of cardial cells. Mech. Dev. 109 (1), 51-59 (2001).
- Monier, B., Astier, M., Sémériva, M., Perrin, L. Steroid-dependent modification of Hox function drives myocyte reprogramming in the Drosophila heart. Development. 132 (23), 5283-5293 (2005).
- Liu, L., et al. Imaging the subcellular structure of human coronary atherosclerosis using micro-optical coherence tomography. Nat. Med. 17 (8), 1010-1014 (2011).
- Ahsen, O. O., et al. Swept source optical coherence microscopy using a 1310 nm VCSEL light source. Opt. Express. 21 (15), 18021-18033 (2013).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
