Ten protokół pokazuje metodę przygotowania próbek roślinnych do mikroskopii świetlnej. Konfiguracja charakteryzuje się zamontowaniem rośliny pionowo na powierzchni żelu i pozwoleniem jej rosnąć w kontrolowanych jasnych warunkach. Pozwala to na długotrwałą obserwację rozwoju organów roślinnych w znormalizowanych warunkach.
Artykuł metodologiczny
Mikroskopia fluorescencyjna arkusza świetlnego korzeni roślin rosnących na powierzchni żelu
W tym artykule
Podsumowanie
Streszczenie
Jednym z kluczowych pytań w zrozumieniu rozwoju roślin jest to, jak zachowują się pojedyncze komórki w szerszym kontekście tkanki. W związku z tym wymaga obserwacji całego narządu z wysoką rozdzielczością przestrzenną i czasową przez dłuższy czas, co może powodować efekty fototoksyczne. Protokół ten przedstawia metodę przygotowania próbki roślinnej do mikroskopii arkuszowej, która charakteryzuje się pionowym zamontowaniem rośliny na powierzchni żelu. Roślina jest zamontowana w taki sposób, że korzenie są zanurzone w płynnym podłożu, podczas gdy liście pozostają w powietrzu. Aby zapewnić aktywność fotosyntetyczną rośliny, liście oświetla wykonany na zamówienie system oświetlenia. Aby utrzymać korzenie w ciemności, powierzchnia wody pokryta jest arkuszami czarnej folii plastikowej. Metoda ta pozwala na długoterminowe obrazowanie rozwoju organów roślinnych w znormalizowanych warunkach.
Wprowadzenie
Jednym z kluczowych pytań w zrozumieniu rozwoju roślin jest to, jak zachowują się pojedyncze komórki podczas różnicowania i wzrostu organów. Idealnie byłoby, gdyby zdarzenia komórkowe, takie jak wzorce ekspresji genów i lokalizacja białek wewnątrzkomórkowych, można zobaczyć w świetle szerszego kontekstu tkanki. Cel ten stanowi wyzwanie techniczne i wymaga obserwacji całego narządu z wysoką rozdzielczością przestrzenną i czasową w dłuższych okresach czasu, co może powodować efekty fototoksyczne. Ponieważ rośliny szybko przystosowują się do zmian środowiskowych, warunki wzrostu muszą być ściśle kontrolowane. Aby przeprowadzić długoterminowe obrazowanie bez ingerencji w stan fizjologiczny rośliny, należy zapewnić trzy rzeczy: 1) warunki wzrostu w komorze próbki, 2) stabilne mocowanie próbki przez długi czas oraz 3) obrazowanie przy niskim natężeniu światła, aby uniknąć fotouszkodzeń i warunków niefizjologicznych.
Fizjologiczne warunki wzrostu w komorze na próbki mikroskopu są kluczowe dla długoterminowych eksperymentów. Dostępnych jest wiele protokołów, które opisują obrazowanie komór wzrostowych dla mikroskopów konfokalnych 1-3. Jednak mikroskopia konfokalna wprowadza do rośliny duże natężenie światła, które może powodować reakcje stresowe i zwykle hamuje wzrost4. Ponadto większość konwencjonalnych mikroskopów pozwala tylko na poziome ustawienie próbki, co nie jest optymalne dla roślin, ponieważ próbują one zmienić orientację i rosnąć w kierunku wektora grawitacji. W ciągu ostatnich dziesięciu lat mikroskopia arkuszowa stała się potężnym narzędziem do uchwycenia rozwoju dużych próbek w rozdzielczości komórkowej w okresach do kilku dni 5-9. Mikroskopia arkuszowa światła umożliwia ustawienie próbki w pionie i jest coraz częściej stosowana w badaniach roślin nad rozwojem korzeni10-21, ostatnio zrecenzowanych przez Bertheta i Maizela22. Wiele z wymienionych badań10,13-18,21 zostało zoptymalizowanych i przeprowadzonych w laboratorium Ernsta H.K. Stelzera przy użyciu specjalnego sposobu mocowania próbki, charakteryzującego się hodowaniem korzenia na powierzchni żelu17. W badaniach tych wykorzystano wykonany na zamówienie mikroskop, w którym roślina jest trzymana od dołu. W przeciwieństwie do tego, większość powszechnie dostępnych mikroskopów z arkuszami świetlnymi utrzymuje próbkę od góry. W związku z tym ta konkretna metoda przygotowania nie może być łatwo zastosowana. Przedstawiona tutaj metoda stanowi protokół dla dobrze znanej metody montażu na powierzchni mającej zastosowanie do OpenSPIM23, platformy otwartego dostępu do stosowania i ulepszania selektywnej mikroskopii oświetlenia płaskiego (SPIM).
Ogólnym celem tego protokołu jest umożliwienie długoterminowego obrazowania korzeni rzodkiewnika w mikroskopie OpenSPI. Osiąga się to poprzez wyhodowanie rośliny w pozycji pionowej na powierzchni żelu z korzeniami w płynnym podłożu, podczas gdy liście pozostają w powietrzu. Aby zapewnić aktywność fotosyntetyczną rośliny, wykonany na zamówienie system oświetlenia oświetla liście, ale nie korzenie (ryc. 1).
Protokół
1. Hodowla rzodkiewnika przed obrazowaniem
- Przygotować 1/2 MS pożywki (pożywka o połowie mocy Murashige i Skoog), dodając 2,15 g pożywki MS, 10 g sacharozy, 0,97 g MES (kwas 2-(N-morfolino)etanosulfonowy) i 1 l ddH2O (podwójnie destylowana woda) do butelki o pojemności 1 litra. Dostosuj pH do 5,8 za pomocą KOH.
- Dodać 15 g/l gumy gellan do pożywki 1/2 MS i sterylizować w autoklawie przez 20 minut w temperaturze 121 °C.
- Wlej 30 ml gorącej pożywki do kwadratowych szalek Petriego (245 x 245 x 25 mm), aby utworzyć warstwę żelu o grubości około 2 mm. Pozwól naczyniom ostygnąć do temperatury pokojowej, aby podłoże zastygło.
- Umieść wysterylizowane nasiona rzodkiewnika w 1,5 ml probówki reakcyjnej zawierającej 1 ml sterylnegoH2O. Zbierz nasiona za pomocą szklanej pipety lub końcówki pipety o pojemności 1000 μl i wysiewaj je na powierzchnię żelu. Umieść nasiona oddzielnie w odległości około 10 mm od siebie. Uszczelnij płytkę taśmą.
- Inkubować płytkę przez 24 godziny w temperaturze 4 °C (rozwarstwienie).
- Hodować płytkę w inkubatorze wzrostu, np. w temperaturze 22 °C w cyklu dzień/noc 16/8 godzin przy natężeniu światła 120-140 μmol/m²/s przez 6 dni. Można stosować rośliny w wieku do 10 dni.
2. Metoda przygotowania próbek roślinnych
Uwaga: Uchwyt na próbkę może być wydrukowany w 3D lub wykonany ręcznie w warsztacie maszynowym przy użyciu wymiarów przedstawionych na rysunku 2C. Plik modelu 3D znajduje się w materiale uzupełniającym (Supplemental_File_-_3D_Sample_Holder.stl). Zobacz link do zamówienia wydruku 3D w liście materiałów.
- Dodać 5 g niskotopliwej agarozy do 50 ml butelki zawierającej 50 ml 1/2 MS pożywki i sterylizować w autoklawie przez 20 minut w temperaturze 121 °C.
- Podwielokrotność 1% niskotopliwego roztworu agarozy rozprowadzić w probówkach reakcyjnych o pojemności 1,5 ml. Przechowywać w temperaturze 4 °C (można używać przez co najmniej dwa miesiące).
- Rozpuść podwielokrotność 1% niskotopliwej agarozy w temperaturze 80 °C i pozwól jej ostygnąć do 33 °C.
- Wyczyść uchwyt próbki w urządzeniu ultradźwiękowym. Wysterylizuj uchwyt próbki 70% etanolem i umyj sterylną wodą.
- Pokrój żel wokół rośliny za pomocą skalpela.
- Podnieś blok płaską szpatułką i ostrożnie nasuń go na uchwyt próbki za pomocą drugiej szpatułki.
- Przykleić żel do uchwytu próbki z 1% agarozą (w temperaturze 33 °C) za pomocą pipety o pojemności 100 μl.
- Przyklej roślinę do żelu z 1% agarozą za pomocą pipety o pojemności 10 μl. Użyj mikroskopu stereoskopowego, aby sprawdzić, czy liście nie są pokryte żelem. Nie umieszczaj żelu bezpośrednio w obszarze zainteresowania.
- Aby zapobiec wysychaniu rośliny, pracuj nieprzerwanie. Jeśli to możliwe, należy włożyć uchwyt na próbkę do końcówki pipety o pojemności 1 000 μl. Użyj końcówki pipety jako nasadki i ostrożnie nasuń ją na jeden koniec uchwytu na próbkę, w którym znajduje się roślina.
- Umieść uchwyt na próbkę w pudełku z końcówkami do pipet i w razie potrzeby przygotuj więcej roślin. Rośliny można bezpośrednio obrazować lub umieścić z powrotem w inkubatorze wzrostu.
3. Ustaw mikroskop
UWAGA: System oświetlenia LED to lampa zbudowana na zamówienie. Szczegóły techniczne wymagane do budowy pierścienia LED można znaleźć na rysunku 3 oraz na liście materiałów. Zobacz plik z materiałami uzupełniającymi (Supplemental_File_-_LED_Ring_Board.brd), aby zapoznać się z projektem płytki.
- Przykręć lub przyklej (np. taśmą dwustronną) pierścień LED na dolnej stronie ramienia OpenSPIM x/y/z/θ-stage.
- Podłącz pierścień LED do regulowanego zasilacza (0-30 V, max 2 A).
- Dostosuj napięcie do żądanego natężenia światła (dla Arabidopsis, 120-140 μmol/m2/s, rysunek 3D).
- Wysterylizuj komorę próbki 70% etanolem i umyj sterylną wodą.
- Wyczyść soczewkę obiektywu benzyną i chusteczką do czyszczenia soczewek. Wysterylizuj soczewkę obiektywu 70% etanolem.
- Podłącz rurki perfuzyjne do komory próbki w układzie jednokierunkowym. Umieść butelkę o pojemności 1 l zawierającą świeżą pożywkę 1/2 MS i drugą pustą butelkę obok pompy perfuzyjnej perystaltycznej. Połączyć butelkę z pożywką z dolnym wlotem komory próbki za pomocą jednej rurki perfuzyjnej. Połącz górny wylot komory na próbkę z pustą butelką, aby usunąć zużyte podłoże za pomocą innej rurki perfuzyjnej.
- Ustaw prędkość przepływu na 1 ml/min.
UWAGA: Aby nie przelać komory na próbkę, ważne jest, aby odpływ był wyższy niż dopływ. Zwiększ szybkość pompowania lub użyj rurki o większej średnicy wewnętrznej do odpływu. - Pokrój czarną folię plastikową na małe kwadraty o średnicy 3 mm, umyj 70% etanolem i pozostaw do wyschnięcia przed umieszczeniem w komorze na próbki na powierzchni wody.
- Wyjąć końcówkę pipety z uchwytu na próbkę i włożyć uchwyt próbki do komory na próbkę. Jeśli nowo wyprodukowany uchwyt na próbkę nie pasuje do ramienia stolika, użyj drobnego papieru ściernego, aby był cieńszy lub użyj pierścienia uszczelniającego o przekroju okrągłym (∅ 6 mm), jeśli jest zbyt cienki.
- Aby stworzyć pokrywki, pokrój czarną folię aluminiową na dwa kawałki o wymiarach 50 x 25 mm. Wykonaj nacięcie o średnicy 5 mm na środku jednej strony każdego kawałka. Złóż, aby utworzyć wcięcie trójkąta (Rysunek 1D). Zamknąć komorę na próbkę dwiema pokrywkami, kładąc pokrywki na górze komory na próbkę tak, aby trójkątne wgłębienia były skierowane w stronę uchwytu próbki. Upewnij się, że liście roślin nie znajdują się w cieniu powiek i otrzymują światło z systemu oświetlenia.
- Znajdź obszar zainteresowania za pomocą etapu x/y/z i obrotu, aby ustawić wyłaniający się korzeń boczny w polu widzenia.
- Przed rozpoczęciem nagrywania należy odczekać, aż system osiągnie równowagę przez co najmniej 15 minut.
- Skonfiguruj pobieranie obrazu.
- Ustaw stos 217 obrazów z odstępem 3 μm (650 μm) i ustaw upływ czasu z 15-minutowym interwałem obrazowania na łączny okres 17 h.
UWAGA: Szczegółową dokumentację dotyczącą obsługi oprogramowania OpenSPIM można znaleźć na stronie (http://openspim.org/Acquisition#Acquiring_a_Stack).
- Ustaw stos 217 obrazów z odstępem 3 μm (650 μm) i ustaw upływ czasu z 15-minutowym interwałem obrazowania na łączny okres 17 h.
- Rozpocznij nagrywanie.
Wyniki
Ta metoda przygotowania próbki umożliwia hodowlę rośliny wewnątrz komory pomiarowej mikroskopu przy jednoczesnej obserwacji systemu korzeniowego za pomocą mikroskopu arkuszowego (Rysunek 1). Roślina rośnie na powierzchni warstwy żelu (pożywka ½ MS zawierająca 1,5% gumy gellanowej) zamontowanej na specjalnie zaprojektowanym uchwycie do próbek (Rysunek 2). Uchwyt do próbek jest drukowany w technologii 3D z wykorzystaniem przezroczystej żywicy. Wersja wykonana, z zaznaczeniem wymiarów, przedstawiona jest na Rysunku 2C. Korzenie są zanurzone w cieczy (pożywka ½ MS), która jest stale odświeżana przez system perfuzji. Liście pozostają w powietrzu i są nieustannie oświetlane światłem o natężeniu 130 µmol/m²/s emitowanym przez niebieskie i czerwone diody LED, które są rozmieszczone w pierścieniu nad rośliną (Rysunek 1A, B oraz Rysunek 3A-C). Pierścień LED został wykonany w naszym warsztacie maszynowym; szczegóły techniczne dotyczące budowy pierścienia LED podano na Rysunku 3 oraz w liście materiałów. Natężenie światła może być płynnie regulowane w zakresie od 30-250 µmol/m2/s (Rysunek 3D). System korzeniowy jest zacieniony za pomocą małych arkuszy czarnej folii plastikowej pokrywającej powierzchnię wody (Rysunek 1). Wszelkie rozproszone światło z oświetlenia, które zostanie zebrane przez soczewkę detekcyjną, jest filtrowane przez filtr GFP (Rysunek 3E).
Przy użyciu tej konfiguracji zarejestrowano sekwencję poklatkową wzrostu korzenia bocznego Arabidopsis przez 17 h, wykorzystując obiektyw 20X/0.5 (Rysunek 4). Korzeń boczny powstaje z warstwy komórek perycyklu, która znajduje się głęboko wewnątrz korzenia głównego. Aby zademonstrować możliwości obrazowania jeszcze głębiej w tkance przez dłuższe okresy czasu, zastosowano większe powiększenie (40X/0.75), aby uchwycić proces formowania się korzenia bocznego od stadium pierwszego primordium aż do jego wyłonienia się z korzenia głównego w ciągu 38 h (Rysunek 5). Przykładowy przekrój 2D zestawu danych przedstawiono na Rys. 5B. Nagranie to pozwala na śledzenie dynamiki powstawania korzenia bocznego w 3D (Rysunek 5A) z rozdzielczością komórkową.
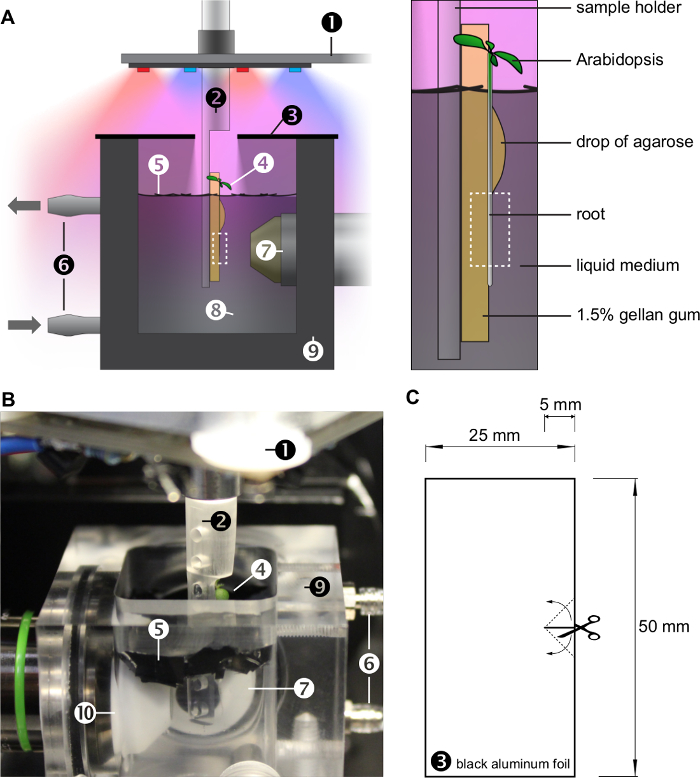
Rycina 1: Warunki hodowli wewnątrz komory z próbką OpenSPIM. A) Szkic komory obrazowania. Roślina rośnie pionowo na powierzchni żelu, zamocowana na specjalnie zbudowanym uchwycie do próbek (patrz również Rycina 2). Korzenie rosną w medium ciekłym, które jest stale wymieniane przez system perfuzyjny. Liście rośliny rosną w powietrzu i są oświetlane czerwonymi i niebieskimi diodami LED (patrz również Rycina 3). System korzeniowy jest zacieniony małymi arkuszami czarnej folii plastikowej pokrywającej powierzchnię wody. Pokrywa wykonana z dwóch kawałków czarnej folii aluminiowej dodatkowo ogranicza ilość światła poniżej powierzchni wody i utrzymuje wilgotność w komorze z próbką. Powiększony panel po prawej stronie przedstawia roślinę rosnącą na powierzchni bloku żelu zanurzonego w medium ciekłym. Kropla agarozy mocuje korzeń do żelu. Przerywana ramka wskazuje obszar zainteresowania obserwowany przez mikroskop. B) Fotografia komory obrazowania (bez pokrywy). Numery (1)-(10) na rysunkach A i B oznaczają: (1): stół x/y/z/θ z pierścieniem LED, (2): uchwyt do próbek, (3): pokrywa, (4): Arabidopsis thaliana, (5): arkusze czarnej folii plastikowej, (6): system perfuzyjny, (7): obiektyw detekcyjny, (8): medium ciekłe, (9): komora z próbką, (10): obiektyw oświetlający. C) Pokrywa wykonana z dwóch kawałków czarnej folii aluminiowej. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
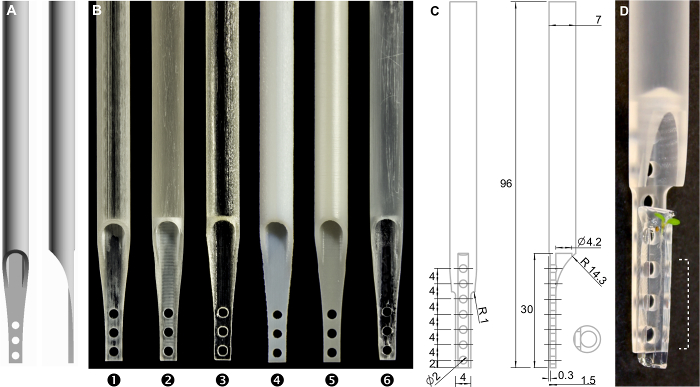
Rycina 2: Uchwyt do próbek. A) Model 3D. Plik z modelem 3D znajduje się w materiałach uzupełniających. B) Fotografie wydruków 3D z zastosowaniem różnych materiałów (1)-(3): przezroczyste tworzywa akrylowe, (4) i (5): żywica, (6): żywica przezroczysta. C) Rysunek techniczny uchwytu do próbek, liczby oznaczają milimetry. D) Fotografia wykonanego uchwytu do próbek z zamontowaną rośliną. Obszar zaznaczony linią przerywaną można obserwować pod mikroskopem. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
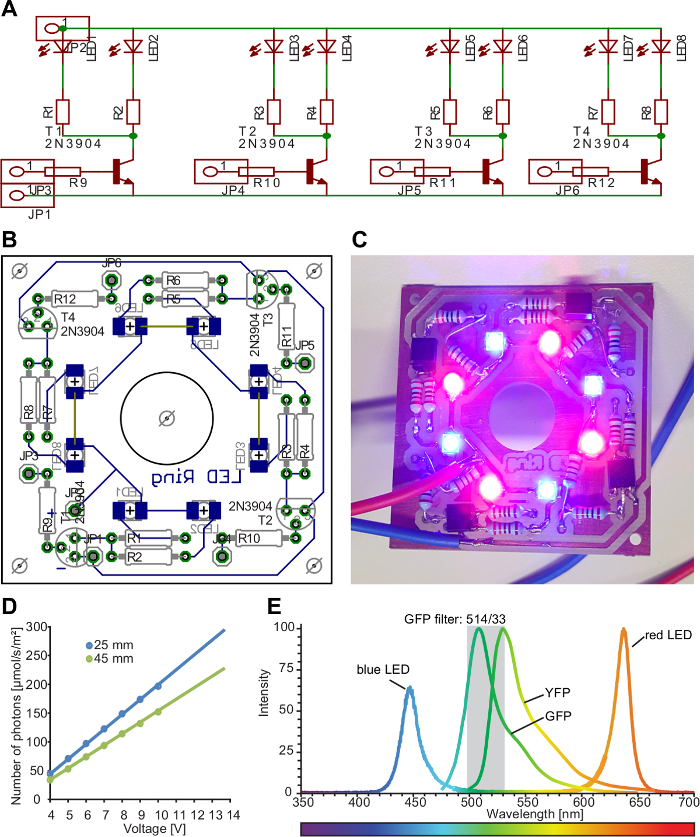
Rycina 3: Układ oświetlenia roślin. A) Schemat ideowy lampy. Pary diod LED mogą być włączane/wyłączane indywidualnie w celu uzyskania oświetlenia kierunkowego. LED: dioda emitująca światło, R: rezystancja, T: tranzystor, JP: złącze pinowe. B) Końcowy projekt lampy oświetlającej został sporządzony przy użyciu oprogramowania do PCB (PCB: drukowana płytka obwodowa). Plik z projektem płytki udostępniamy w materiałach uzupełniających. Płytka została następnie wykonana i zmontowana w warsztacie maszynowym MIBA naszego instytutu. C) Fotografia włączonego pierścienia LED. Cztery pary czerwonych i niebieskich diod LED są rozmieszczone w pierścieniu. D) Zakres napięcia można regulować od 3,5 V do 14,0 V. Rezystorów użyto w celu uzyskania natężenia światła w zakresie 30-250 µmol/m2/s (R1-8: 220 Ohm, R9-12: 1,220 Ohm). E) Widmo emisji lampy, GFP i YFP. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
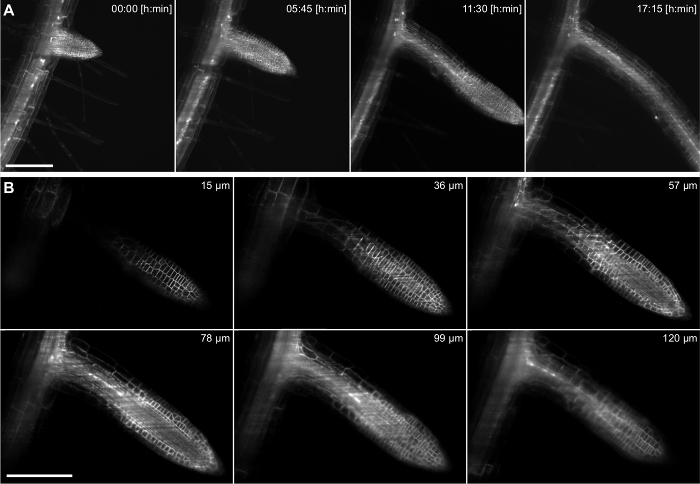
Rysunek 4: Rejestracja time-lapse korzenia bocznego Arabidopsis thaliana. 5-dniowa siewka wykazuje ekspresję markera błonowego (pUBQ10::YFP-PIP1;4) oraz reportera jądrowego (pGATA23::nls-GUS-GFP) specyficznie znakującego komórki perycyklu, z których rozwija się korzeń boczny. Serię 217 obrazów (odstęp z = 3 µm) rejestrowano co 15 min przez 17 h przy użyciu obiektywu 20X/0,5. A) Cztery punkty czasowe z 69 przedstawiono w rzucie maksymalnej intensywności. B) Przedstawiono sześć z 217 pojedynczych przekrojów stosu z jednego punktu czasowego. Paski skali na A i B reprezentują 100 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
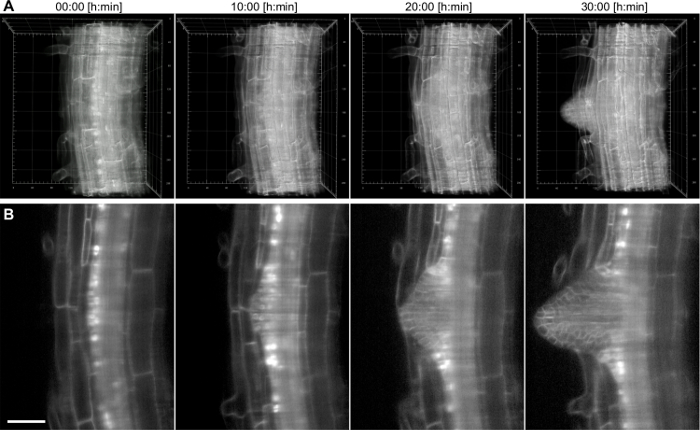
Rycina 5: Nagranie time-lapse Arabidopsis thaliana korzenia bocznego. 6-dniowa siewka wykazuje ekspresję markera błonowego (pUBQ10::YFP-PIP1;4) oraz reportera jądrowego (pGATA23::nls-GUS-GFP) specyficznie znakujących komórki perycyklu, z których rozwija się korzeń boczny. Serię 200 obrazów (odstępy z wynoszące 1.5 µm) rejestrowano co 15 min przez 38 h przy użyciu obiektywu 40X/0.75. A) rendering 3D czterech punktów czasowych, liczby w siatce reprezentują µm, B) pojedynczy przekrój przez płaszczyznę centralną korzenia głównego. Pasek skali reprezentuje 50 µm. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
Supplemental_File_-_3D_Sample_Holder.stl. Dostarczono plik modelu 3D. Aby pobrać ten plik, należy kliknąć tutaj.
Plik uzupełniający LED Ring Board.brd. Udostępniono plik projektu płytki. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Mikroskopia fluorescencyjna z lekkim arkuszem ma tę wielką zaletę, że łączy niską fototoksyczność i ultraszybką szybkość akwizycji, co można wykorzystać do uchwycenia dużej objętości z wysoką rozdzielczością czasoprzestrzenną przy jednoczesnym utrzymaniu próbki w stanie fizjologicznym. Rozdzielczość mikroskopu arkuszowego światła można porównać do rozdzielczości mikroskopu konfokalnego9. Jednak rozpraszanie i absorpcja światła zachodzi indywidualnie wzdłuż ścieżki wzbudzenia i emisji, a ogólna jakość obrazu może być znacznie niższa wewnątrz nieprzezroczystych tkanek w porównaniu z powierzchnią. Aby obejść tę komplikację, można skorzystać z możliwości obracania próbki wzdłuż osi pionowej i obserwowania tej samej objętości z różnych kierunków. Nie zawsze jest to jednak korzystne, np. korzenie boczne wyłaniają się po jednej stronie korzenia, a obrazowanie od tyłu skutkuje niską jakością obrazu bez uzyskania większej ilości informacji. Jednak rotacja może być głównie wykorzystana do jak najlepszego pozycjonowania próbki. Klasyczny poziomy układ soczewek obiektywu pozwala na nowe sposoby mocowania próbki. Rośliny czerpią korzyści z pozycji pionowej. Przedstawiona tutaj metoda montażu "na powierzchni żelu" ma kilka zalet w porównaniu z innymi metodami montażu, takimi jak osadzenie korzenia wewnątrz żelu24,25. 1) System korzeniowy ma bezpośredni kontakt z płynnym podłożem. Komora na próbkę jest podłączona do systemu perfuzyjnego, który zapewnia stale świeżą pożywkę. Może być również używany do szybkiej wymiany całej objętości komory na próbki w celu nałożenia różnych pożywek lub leków. 2) Przed przygotowaniem próbki rośliny rosną tak, jak są używane do uprawy w laboratoriach. Rośliny można wybierać pod mikroskopem fluorescencyjnym i należy przygotować tylko te pożądane. 3) Roślina jest przenoszona z szalki Petriego do uchwytu próbki bez dotykania. W ten sposób roślina może dalej rozwijać się na tym samym żelu, na którym rosła w inkubatorze wzrostu, a naprężenia mechaniczne są zredukowane do minimum. 4) Widok na próbkę jest niezakłócony, a aberracje optyczne są zminimalizowane, ponieważ przestrzeń między próbką a celem wykrywania jest wypełniona wyłącznie medium i nie ma innych materiałów o różnych współczynnikach załamania światła.
W celu wykonania długotrwałego obrazowania niezbędny jest system oświetlenia rośliny, aby zapewnić aktywność fotosyntetyczną rośliny. W większości laboratoriów rośliny rosną na przezroczystym żelu, czyli korzenie są wystawione na działanie światła. Może to powodować różne reakcje na ich środowisko i indukować zmiany w ich biochemii i rozwoju26,27. W celu zmniejszenia ilości światła padającego na system korzeniowy, do przykrycia powierzchni wody użyto czarnej folii z tworzywa sztucznego, a komorę próbki pokryto pokrywką wykonaną z czarnej folii aluminiowej. Światło może docierać do liści rośliny przez środkowy otwór w pokrywie. W tej konfiguracji nie zaobserwowano wzrostu światła tła, co sugeruje, że ilość światła rozproszonego z czerwonych i niebieskich diod LED została znacznie zmniejszona przez filtr GFP i zbliża się zacienienie. Pozwoliło to na utrzymanie włączonego światła podczas robienia zdjęcia bez zwiększania szumów tła kamery.
Uchwyt na próbki przeznaczony jest do druku 3D. Jednak wybór materiału ma kluczowe znaczenie, ponieważ kilka testowanych tworzyw sztucznych nie było w 100% stabilnych, co skutkowało dryftem próbki. Dlatego zaleca się użycie zamiast tego żywic lub zbudowanie uchwytu na próbkę poprzez frezowanie pręta z polietylenu (PEP). W przypadku korzystania z mikroskopu z arkuszami świetlnymi z dwustronnym systemem oświetlenia, uchwyt próbki może zakłócać działanie jednego z arkuszy świetlnych w zależności od kąta obrotu. Aby zmniejszyć naprężenia mechaniczne podczas nabierania rośliny z talerza, użyj płaskiego kąta szpatułki. Roślina może szybko wyschnąć i po raz pierwszy doświadczyć przepływu powietrza. Należy unikać przeciągów powietrza (gwałtowne ruchy, przepływ powietrza), pracować nieprzerwanie i w miarę możliwości wsuwać uchwyt na próbkę do końcówki pipety o pojemności 1 000 μl. Wewnątrz mikroskopu ważne jest, aby nie zanurzać całej rośliny w płynie i utrzymywać liście w suchości.
Technika ta jest idealna do obrazowania wczesnych etapów tworzenia się korzeni bocznych. Wykonując długoterminowe obrazowanie dojrzałych wierzchołków korzeni, należy pamiętać, że korzenie rzodkiewnika rosną z prędkością 100-300 μm/h szybko poza polem widzenia. Bardzo przydatną implementacją w przyszłości może być zautomatyzowany algorytm śledzenia, który pozwoliłby śledzić wzrost wierzchołków korzeni przez dłuższy czas. Możliwość kontrolowania warunków środowiskowych, takich jak światło i skład odżywczy pożywki podczas procesu akwizycji, pozwala na badanie, w jaki sposób rośliny przystosowują się do zmian. Korzeń ma bezpośredni kontakt z płynnym podłożem, które może być używane do stosowania leków w celu chemicznej aktywacji ekspresji genów, na przykład przy użyciu deksametazonuindukowanego 28 lub systemu indukowanego β-estradiolem29. Jednak wymiana całej objętości komory na próbkę w celu wypłukania leku wymaga czasu. Konfigurację można ulepszyć, minimalizując objętość komory na próbkę w celu przyspieszenia wymiany medium. Niemniej jednak ta technika ma ogromny potencjał. Połączenie procedury montażu, ustandaryzowanych warunków wzrostu i delikatnej akwizycji obrazu za pomocą mikroskopii arkuszowej pozwala na długoterminowe badania rozwoju roślin z wysoką rozdzielczością na poziomie fizjologicznym. Pomoże to naukowcom w zbadaniu podstawowych mechanizmów rozwoju roślin.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Dziękujemy Matyášowi Fendrychowi za krytyczną lekturę/oglądanie oraz Stephanowi Stadlbauerowi za sprzęt audio. Podziękowania dla Miba Machine Shop w IST Austria za ich wkład w OpenSPIM. Badania, które doprowadziły do uzyskania tych wyników, otrzymały finansowanie z programu "Ludzie" (działania Marie Curie) siódmego programu ramowego Unii Europejskiej (7PR/2007-2013) w ramach umowy o grant REA nr [291734] oraz Europejskiej Rady ds. Badań Naukowych (projekt ERC-2011-StG-20101109-PSDP).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Agaroza, niskotopliwa | VWR | AFFY3282125GM | |
| folia aluminiowa | Thorlabs | BKF12 | |
| folia plastikowa | Carl Roth | HT83.2 | |
| LED niebieska (453 nm) | OSRAM | LD CN5M-1R1S-35-1 | |
| LED czerwona (625 nm) | Tablica LED OSRAM | LR T66F-ABBB-1-1 | |
| - oprogramowanie do projektowania PCB | Cadsoft Eagle | ||
| MES monohydrat | Duchefa | M1503.0100 | |
| Taśma chirurgiczna Micropore | 3M | 1530-1 | |
| Murashige & Skoog Medium (MS-Medium) | Duchefa | M0221 | |
| Phytagel | Sigma-Aldrich | P8169 | |
| Uchwyt na próbki Druk 3D | i.materialise | https://i.materialise.de/shop/item/sampleholder-openspim-zeisslightsheetz1 | |
| Kwadratowe szalki Petriego (245 x 245 x 25 mm) | VWR | 734-2179 | |
| Sacharoza | Sigma-Aldrich | 84097-1KG |
Bibliografia
- Grossmann, G., Guo, W. -J., et al. The RootChip: an integrated microfluidic chip for plant science. Plant Cell. 23 (12), 4234-4240 (2011).
- Busch, W., Moore, B. T., et al. A microfluidic device and computational platform for high-throughput live imaging of gene expression. Nat Methods. 9 (11), 1101-1106 (2012).
- Calder, G., Hindle, C., Chan, J., Shaw, P. An optical imaging chamber for viewing living plant cells and tissues at high resolution for extended periods. Plant Methods. 11 (1), 22(2015).
- Dixit, R., Cyr, R. Cell damage and reactive oxygen species production induced by fluorescence microscopy: effect on mitosis and guidelines for non-invasive fluorescence microscopy. Plant J. 36 (2), 280-290 (2003).
- Huisken, J., Swoger, J., Del Bene, F., Wittbrodt, J., Stelzer, E. H. K. Optical Sectioning Deep Inside Live Embryos by Selective Plane Illumination Microscopy. Science. 305 (5686), 1007-1009 (2004).
- Keller, P. J., Schmidt, A. D., Wittbrodt, J., Stelzer, E. H. K. Reconstruction of Zebrafish Early Embryonic Development by Scanned Light Sheet Microscopy. Science. 322 (5904), 1065-1069 (2008).
- Keller, P. J., Schmidt, A. D., et al. high-contrast imaging of animal development with scanned light sheet-based structured-illumination microscopy. Nat Methods. 7 (8), 637-642 (2010).
- Höckendorf, B., Thumberger, T., Wittbrodt, J. Quantitative Analysis of Embryogenesis: A Perspective for Light Sheet Microscopy. Dev Cell. 23 (6), 1111-1120 (2012).
- Stelzer, E. H. K. Light-sheet fluorescence microscopy for quantitative biology. Nat Methods. 12 (1), 23-26 (2015).
- Maizel, A., Von Wangenheim, D., Federici, F., Haseloff, J., Stelzer, E. H. K. High-resolution live imaging of plant growth in near physiological bright conditions using light sheet fluorescence microscopy. Plant J. 68 (2), 377-385 (2011).
- Sena, G., Frentz, Z., Birnbaum, K. D., Leibler, S. Quantitation of Cellular Dynamics in Growing Arabidopsis Roots with Light Sheet Microscopy. PLoS ONE. 6 (6), e21303(2011).
- Costa, A., Candeo, A., Fieramonti, L., Valentini, G., Bassi, A. Calcium Dynamics in Root Cells of Arabidopsis thaliana Visualized with Selective Plane Illumination Microscopy. PLoS ONE. 8 (10), (2013).
- Šamajová, O., Takáč, T., von Wangenheim, D., Stelzer, E. H. K. Update on methods and techniques to study endocytosis in plants. Endocytosis in Plants. , 1-36 (2012).
- Rosquete, M. R., Von Wangenheim, D., et al. An auxin transport mechanism restricts positive orthogravitropism in lateral roots. Curr Biol. 23 (9), 817-822 (2013).
- Lucas, M., Kenobi, K., et al. Lateral root morphogenesis is dependent on the mechanical properties of the overlaying tissues. Proc Natl Acad Sci USA. 110 (13), 5229-5234 (2013).
- Vermeer, J., von Wangenheim, D., et al. A Spatial Accommodation by Neighboring Cells Is Required for Organ Initiation in Arabidopsis. Science. 343 (6167), 178-183 (2014).
- Von Wangenheim, D., Daum, G., Lohmann, J. U., Stelzer, E. H. K., Maizel, A. Live Imaging of Arabidopsis Development. Arabidopsis Protocols. 1062, 539-550 (2014).
- Berson, T., von Wangenheim, D., et al. Trans-Golgi network localized small GTPase RabA1d is involved in cell plate formation and oscillatory root hair growth. BMC Plant Biol. 14 (1), 252(2014).
- Langhans, M., Meckel, T. Single-molecule detection and tracking in plants. Protoplasma. 251 (2), 277-291 (2014).
- Novak, D., Kucharova, A., Ovecka, M., Komis, G., Samaj, J. Developmental nuclear localization and quantification of GFP-tagged EB1c in Arabidopsis root using light-sheet microscopy. Front Plant Sci. 6, (2015).
- Von Wangenheim, D., Fangerau, J., et al. Rules and Self-Organizing Properties of Post-embryonic Plant Organ Cell Division Patterns. Curr Biol. 26 (4), 439-449 (2016).
- Berthet, B., Maizel, A. Light sheet microscopy and live imaging of plants. J Microsc. , (2016).
- Pitrone, P. G., Schindelin, J., et al. OpenSPIM: an open-access light-sheet microscopy platform. Nat Methods. 10 (7), 598-599 (2013).
- de Luis Balaguer, M. A., et al. Multi-sample Arabidopsis Growth and Imaging Chamber (MAGIC) for long term imaging in the ZEISS Lightsheet Z.1. Dev Biol. 419 (1), (2016).
- Ovečka, M., Vaškebová, L., Komis, G., Luptovčiak, I., Smertenko, A., Šamaj, J. Preparation of plants for developmental and cellular imaging by light-sheet microscopy. Nat Protoc. 10 (8), 1234-1247 (2015).
- Yokawa, K., Kagenishi, T., Kawano, T., Mancuso, S., Baluška, F. Illumination of Arabidopsis roots induces immediate burst of ROS production. Plant Signal Behav. 6 (10), 1460-1464 (2011).
- Silva-Navas, J., et al. D-Root: a system for cultivating plants with the roots in darkness or under different light conditions. Plant J. 84 (1), 244-255 (2015).
- Aoyama, T., Chua, N. -H. A glucocorticoid-mediated transcriptional induction system in transgenic plants. Plant J. 11 (3), 605-612 (1997).
- Brand, L., et al. A versatile and reliable two-component system for tissue-specific gene induction in Arabidopsis. Plant Physiol. 141 (4), 1194-1204 (2006).
Przedruki i uprawnienia
