Przedstawiona tutaj jest prosta technika konfokalnego obrazowania poklatkowego o wysokiej rozdzielczości rozwoju korzeni i hipokotylu przez okres do 3 dni przy użyciu obiektywów o dużej aperturze numerycznej i perfluorodekaliny jako medium immersyjnego.
Artykuł metodologiczny
Prosta komora do długoterminowego obrazowania konfokalnego rozwoju korzeni i hipokotylu
W tym artykule
Podsumowanie
Streszczenie
Kilka aspektów rozwoju roślin, takich jak morfogeneza korzeni bocznych, występuje w odstępach kilku dni. Aby zbadać podstawowe procesy komórkowe i subkomórkowe, potrzebne są strategie mikroskopii poklatkowej o wysokiej rozdzielczości, które zachowują warunki fizjologiczne. Tkanki roślinne muszą mieć odpowiednie zaopatrzenie w składniki odżywcze i wodę z ciągłą wymianą gazową, ale po zanurzeniu i unieruchomieniu pod szkiełkiem nakrywkowym są szczególnie podatne na anoksję. Jedną ze strategii, która została z powodzeniem zastosowana, jest zastosowanie systemu perfuzyjnego w celu utrzymania stałego dopływu tlenu i składników odżywczych. Jednak takie układy mogą być skomplikowane, uciążliwe i wymagać specjalistycznego sprzętu. Przedstawiono alternatywną strategię dla prostego systemu obrazowania wykorzystującego perfluorodekalinę jako medium immersyjne. System ten jest łatwy w konfiguracji, wymaga minimalnego sprzętu i można go łatwo zamontować na stoliku mikroskopowym, co pozwala na ustawienie i obrazowanie kilku komór obrazowania równolegle. W tym systemie tempo wzrostu korzeni bocznych jest nie do odróżnienia od tempa wzrostu w standardowych warunkach na płytkach agarowych przez pierwsze dwa dni, a wzrost korzeni bocznych trwa w zmniejszonym tempie przez co najmniej kolejny dzień. Tkanki roślinne są zaopatrywane w składniki odżywcze za pośrednictwem płyty agarowej, która może być również używana do podawania szeregu związków farmakologicznych. System został stworzony do monitorowania rozwoju korzeni bocznych, ale można go łatwo dostosować do obrazowania innych organów roślinnych, takich jak hipokotyle i korzenie pierwotne.
Wprowadzenie
Aby badać procesy komórkowe i subkomórkowe, które leżą u podstaw rozwoju roślin, rośnie zapotrzebowanie na długoterminowe strategie obrazowania poklatkowego w wysokiej rozdzielczości. Kluczowym wyzwaniem w takich eksperymentach obrazowych jest utrzymanie warunków fizjologicznych, w tym wystarczającej wymiany gazowej oraz zaopatrzenia w wodę i składniki odżywcze1,2,3. Aby wykorzystać obiektywy o dużych aperturach numerycznych w celu uzyskania optymalnej rozdzielczości optycznej, próbki powinny być umieszczone w bliskiej odległości i zorientowane równolegle do szkiełka nakrywkowego. Ruch w kierunkach x, y i z powinien być idealnie minimalny podczas obrazowania.
Podczas gdy siewki są często montowane w wodzie lub roztworze wodnym do krótkotrwałego obrazowania, woda ma niską zdolność do rozpuszczania CO2 i O2 (odpowiednio 1,54 mg/ml i 0,04 mg/ml w temperaturze 20 °C, 0,1 MPa)4, co czyni ją nieodpowiednią do długich eksperymentów poklatkowych. Jednym z rozwiązań tego problemu są systemy perfuzyjne, które utrzymują stały poziom tlenu i składników odżywczych, a zostały opracowane zarówno dla konfokalnej laserowej mikroskopii skaningowej (CLSM)1,2,3, jak i mikroskopii z użyciem lekkiej blachy (LSM)5. Systemy takie jak RootChip2 i RootArray3 zostały zaprojektowane specjalnie do obrazowania poklatkowego rozwijających się korzeni i obejmują kiełkowanie nasion w specjalnie zbudowanym urządzeniu z wieloma próbkami. Układy te zapewniają minimalne zakłócenia mechaniczne i są przeznaczone do równoległej analizy wielu siewek, ale nie są zoptymalizowane pod kątem obrazowania struktur subkomórkowych. Calder i współpracownicy zaprojektowali bardziej skomplikowaną komorę obrazowania opartą na perfuzji, zoptymalizowaną do obrazowania struktur subkomórkowych, w których próbka jest utrzymywana w pozycji przez siatkę, aby umożliwić użycie soczewek zanurzeniowych o dużym powiększeniu1.
Przedstawione tutaj jest alternatywne, proste rozwiązanie tego problemu, które nie opiera się na systemach perfuzyjnych, ale wykorzystuje perfluorodekalinę (PFD), perfluorowęglowodór, który ostatnio zyskał popularność jako podłoże montażowe do obrazowania Arabidopsis6,7,8. W takich zastosowaniach wysoka zdolność PFD do rozpuszczania CO2 i O2 (1,9 g / ml dla O2 w PFD w porównaniu do 0,04 mg / ml w wodzie) 9, umożliwia wymianę gazową przez zanurzoną tkankę. Ponadto PFD jest niefluorescencyjny, a jego współczynnik załamania światła (1,313) jest porównywalny z indeksem wody (1,333) i jest bliższy cytozolowi (~1,4) niż powietrzu (1,000)6. Doniesiono, że perfluorowęglowodory mają minimalny wpływ fizjologiczny na różne rośliny i tkanki roślinne6, przy czym nasiona rzodkiewki łatwo kiełkują po zanurzeniu w PFD i wykazują normalny wzrost i rozwój przez co najmniej dwa pełne dni, gdy są dostarczane z wodą10. Podobne obserwacje poczyniono w odniesieniu do kiełkujących nasion rzodkiewnika (Arabidopsis6. Opierając się na stymulowanym rozpraszaniu Ramana w celu bezpośredniego zobrazowania rozmieszczenia PFD w tkankach liści Arabidopsis po infiltracji, Littlejohn i współpracownicy doszli do wniosku, że PFD prawdopodobnie nie jest pobierany przez żywe komórki8. PFD był wcześniej używany głównie do obrazowania tkanek powietrznych, gdzie znacznie zwiększa głębokość obrazowania, ponieważ łatwo infiltruje przestrzenie powietrzne ze względu na niskie napięcie powierzchniowe6. W tym przypadku PFD jest stosowany do długoterminowego obrazowania konfokalnego rozwijających się korzeni bocznych. W tej konfiguracji jedną lub więcej sadzonek umieszcza się na płycie pożywki wzrostowej zestalonej agarem i zanurza w PFD. PFD umożliwia wymianę gazową w komorze obrazowania, zapobiegając anoksji. PFD jest wysoce lotny, więc jest zatrzymywany przez uszczelkę z gumy poli(dimetylosiloksanowej), która ma również wysoką przepuszczalność gazów (1,5 x 10⁻¹² pmol m-1 s-1 Pa-1 dla CO2)11. Składniki odżywcze i woda są dostarczane przez płytę pożywki zestaloną z agarem. W tym samym czasie ta płyta agarowa delikatnie dociska korzeń do szkiełka nakrywkowego, ustalając w ten sposób jego względne położenie w komorze obrazowania i umożliwiając stosowanie soczewek zanurzeniowych w wodzie o wysokiej rozdzielczości. Ponadto płyta agarowa może być używana do podawania szeregu zabiegów farmakologicznych, w tym deksametazonu, oryzaliny i izoksabenu. Komory obrazowania można montować w dużych ilościach ze standardowych szkiełek mikroskopowych przy użyciu minimalnego sprzętu. Komory obrazowania zostały opracowane i scharakteryzowane w celu badania rozwoju korzeni bocznych, ale można je przystosować do obrazowania innych narządów siewek, takich jak pierwotne wierzchołki korzeni i hipokotyle.
Protokół
1. Tworzenie komory
- Za pomocą noża do szkła wytnij paski o szerokości 3 mm od końca szkiełka mikroskopowego o grubości 1 mm. Używając super-kleju cyjanoakrylowego lub taśmy dwustronnej, przyklej te szklane paski w odległości około 45 mm od siebie na szerokości drugiego szkiełka mikroskopowego (Rysunek 1A). Wymagane jest jedno szkiełko na komorę oraz dodatkowe szkiełka do nalewania płyt agarowych (z jednego szkiełka można uzyskać 2-3 płytki agarowe). Slajdy mogą być ponownie wykorzystane.
- Pomiędzy szklanymi paskami uformuj uszczelkę o identycznej wysokości z gumy poli(dimetylosiloksanowej) przepuszczanej przez gaz. Umieść kulkę gumy poli(dimetylosiloksanowej) na szkiełku (Rysunek 1B), zwilż drugie szkiełko niewielką ilością 100% bezwzględnego etanolu i spłaszcz kulkę gumy poli(dimetylosiloksanowej) drugim szkiełkiem, aż osiągnie wysokość pasków szkła (Rysunek 1C).
- W razie potrzeby odetnij nadmiar gumy poli(dimetylosiloksanowej) żyletką i powtórz spłaszczanie.
- Za pomocą odpowiedniego noża lub żyletki zwilżonej absolutnym etanolem usuń wewnętrzną część gumy poli(dimetylosiloksanowej), aby utworzyć wgłębienie, w którym później znajdzie się sadzonka i płyta agarowa (Rysunek 1D).
- Ostrożnie przytnij żel żyletką, aby utworzyć uszczelkę o końcowej grubości ścianki około 2 mm (Rysunek 1E). Przepuszczalność gazów przez barierę z poli(dimetylosilaksanu) jest niezależna od grubości powyżej 50 μm11.
2. Tworzenie zastygłej płyty z agarem
- Na szkiełku mikroskopowym z dwoma szklanymi paskami umieścić szkiełko nakrywkowe (22 mm x 50 mm) tak, aby spoczywało na obu paskach szkła.
- Stopioną pipetą pożywkę wzrostową Murashige i Skoog o połowie mocy zawierającą 1% sacharozy i 1,5% agaru (1/2 MS) należy umieścić pipetą w powstałej przestrzeni poniżej szkiełka nakrywkowego, aż to ostatnie zostanie całkowicie wypełnione (około 1 ml całkowitej objętości) i pozostawić do zastygnięcia agaru (około 5 min).
Uwaga: Związki farmakologiczne można podawać przez płytę agarową, dodając odpowiednie stężenia do płynnego podłoża przed wylaniem płyty. Zostało to pomyślnie przetestowane dla deksametazonu12, izoksabenu, 2,6-dichlorobenzonitrylu (DCB), oryzaliny i latrunkuliny B.
3. Kończenie konfiguracji komory
- Powietrze równoważy PFD, potrząsając niewielką objętością PFD w rurce7. Dodać niewielką ilość (około 200 μl) PFD o równowadze powietrznej do studzienki uszczelki żelowej, ale nie napełniać całkowicie komory. Ten PFD pomoże uniknąć uwięzienia pęcherzyków powietrza pod płytą agarową podczas jej umieszczania w komorze.
- Usuń szkiełko nakrywkowe z płyty agarowej (w kroku 2.2 powyżej) i użyj żyletki, aby odciąć część o pożądanym rozmiarze i kształcie. Następnie umieść go w studzience uszczelki żelowej (Rysunek 1F). Wokół uszczelki powinna być szczelina 2-4 mm.
- Całkowicie napełnij komorę PFD równoważonym powietrzem.
- Umieść jedną lub więcej sadzonek A. thaliana (do 3 sadzonek do obrazowania przez 2-3 dni) na płycie agarowej z liścieniami i hipokotylem zwisającymi z krawędzi, unoszącymi się w PFD (Rysunek 1G).
- Aby uzyskać sadzonki, wysterylizuj nasiona 70% etanolem, posadź na 1/2 MS pożywki uzupełnionej 1% sacharozy i 0,8% agaru, rozwarstwiaj przez 2-4 dni w temperaturze 4 °C i hoduj na pionowo ustawionych płytkach w temperaturze 22 °C w 16 godzin światła / 8 godzin ciemności. W przypadku obrazowania korzeni bocznych hoduj rośliny przez 7-10 dni przed przeniesieniem do komór obrazowania.
- Aby zamknąć komorę, nałóż szkiełko nakrywkowe dopasowane do układu optycznego obiektywu, delikatnie dociskając je krawędzią szkiełka mikroskopowego, aż szkiełko nakrywkowe oprze się na obu paskach szkła (Rysunek 1H).
- W razie potrzeby zabezpiecz szkiełko nakrywkowe paskami taśmy chirurgicznej z mikroporami o szerokości 1,25 cm, przeciętymi na pół wzdłuż na każdym końcu (Rysunek 1I). Pozostawić próbkę do osiadania przez około 30 minut przed obrazowaniem. Minimalizuje to ruch próbki podczas obrazowania.
- Wykonaj obrazowanie za pomocą mikroskopu pionowego, aby utrzymać kontrolowane podłoże do wzrostu. Używaj obiektywów 20X/0,7NA lub 63X/1,2NA CS2.
Wyniki
Korzenie boczne rosną w tempie fizjologicznym w komorach obrazowania.
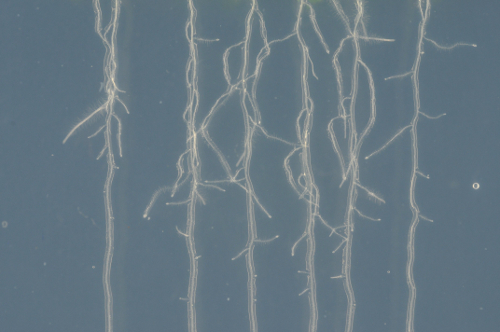
Długości korzeni bocznych roślin w komorach obrazowania mierzono w odstępach godzinnych (Rycina 2A, lewa, Film 1, n = 23), a tempo wzrostu porównano z tempem wzrostu korzeni bocznych hodowanych na standardowych szalkach Petri zawierających to samo medium utwardzone agarem (Rycina 2A, prawa, Film 2, n = 23). Tempo wzrostu może znacznie różnić się między poszczególnymi korzeniami bocznymi, przy czym jednym z czynników determinujących jest długość korzenia, ze względu na coraz dłuższe strefy wzrostu i proliferacji13. Dlatego też wybrano zestawy korzeni bocznych reprezentujące korzenie o różnych długościach początkowych (od 50 µm do 1150 µm) zarówno w komorze obrazowania, jak i na szalce z agarem. Średnia długość korzeni bocznych na początku eksperymentu była podobna w każdym zestawie (odpowiednio 439 i 442 µm dla komór obrazowania i szalek). W analizowanym przedziale czasowym wynoszącym 27 h wzrost korzeni bocznych był w przybliżeniu liniowy zarówno w komorach obrazowania, jak i na szalkach, przy średnim tempie wzrostu wynoszącym 52 µm/h (R2 = 0,997) na szalkach i 51 µm/h w komorach obrazowania (R2 = 0,993) (Rycina 2B). Tempa wzrostu poszczególnych korzeni bocznych były bardzo zróżnicowane zarówno na szalkach, jak i w komorach obrazowania (Rycina 2C), wynosząc od 17 µm/h do 82 µm/h w komorach obrazowania i od 13 µm/h do 87 µm/h na szalkach. Chociaż tempo wzrostu ogólnie zwiększało się wraz z długością korzenia, nadal występowały znaczne różnice między korzeniami o podobnej długości, jednak wariancja była podobna w komorach obrazowania i na szalkach.
Korzenie boczne namnażają się w komorach obrazujących i mogą być obrazowane przy użyciu obiektywów o wysokiej aperturze numerycznej.
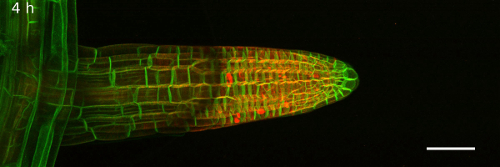
Korzenie boczne koekspresujące marker błony komórkowej NPSN12-YFP14 oraz marker mikrotubul UBQ1::mRFP-TUBULIN BETA6 (RFP-TUB6)15 obrazowano za pomocą CLSM10 w odstępach 1 h, aby udokumentować zachowanie mikrotubul podczas proliferacji komórek w komorach obrazowania (Rysunek 2D, Film 3). W komorach tych korzenie boczne pozostawały bardzo stabilne w swojej pozycji na osiach x, y i z, co umożliwiło akwizycję ciągłych serii konfokalnych time-lapse przez kilka godzin. Komórki merystematyczne nieustannie proliferowały, co wynika z formowania się pasm przeprofazowych (Rysunek 2D, zielone strzałki), wrzecion mitotycznych (Rysunek 2D, białe strzałki) oraz fragmoplastów (Rysunek 2D, niebieskie strzałki). Podobnie jak w przypadku siewek na płytkach Petri, w pełni wydłużone komórki korzenia w komorach obrazowania inicjowały włosy korzeniowe (Rysunek 2A, Rysunek 2D, groty strzałek), co dodatkowo wskazuje, że rozwój w komorach obrazowania przebiegał zgodnie z oczekiwaniami. Aby uzyskać szerokie pole widzenia, obrazy na Rysunku 2D wykonano przy użyciu obiektywu 20x/0,7 NA. Możliwe było również uzyskanie obrazów korzeni bocznych o wysokiej rozdzielczości przy użyciu obiektywu imersyjnego w wodzie o wysokiej aperturze numerycznej 63x/1,2 NA (Rysunek 2E).
Wzrost korzeni bocznych jest utrzymywany w komorach obrazujących przez maksymalnie trzy dni.
Aby zbadać, jak długo komory obrazowania mogą wspierać wzrost korzeni bocznych w tempie fizjologicznym, zmierzono długość korzeni bocznych w komorach obrazowania (n = 27) oraz na płytkach (n = 33) w czasie 0 h, 24 h, 48 h i 72 h. Wybrane korzenie miały w czasie 0 h długość mniejszą niż 200 µm, przy średniej długości korzenia bocznego wynoszącej 117 µm w komorach obrazowania i 121 µm na płytkach. Ponieważ krótsze korzenie rosną średnio wolniej (Rycina 2C), rzadziej przerastały krawędź bloku agaru i były łatwiejsze do obrazowania. Średni przyrost wszystkich korzeni bocznych w ciągu pierwszych 48 h nie różnił się znacząco w komorach obrazowania w porównaniu z płytkami Petriego (Rycina 3A). Jednakże średni przyrost był znacząco zredukowany między 48 h a 72 h (Rycina 3A). Chociaż tempo wzrostu w komorach obrazowania zazwyczaj spada po 48 h, tempo wzrostu między poszczególnymi osobnikami pozostaje bardzo zróżnicowane (Rycina 3B, 3C), co oznacza, że istnieje znaczna grupa korzeni bocznych, które rosną w podobnym tempie na płytkach i w komorach przez cały 72-godzinny okres wzrostu. 23 z 33 korzeni bocznych hodowanych na płytkach (69,7%) osiągnęło w 72 h długość mieszczącą się w przedziale jednego odchylenia standardowego od średniej długości (między 927 a 3 163 µm, Rycina 3B, kolor czerwony). 10 z 27 (37,0%) korzeni bocznych w komorach obrazowania osiągnęło długość w tym przedziale (Rycina 3B, kolor czerwony).
Komory obrazujące można łatwo dostosować do starszych korzeni bocznych, korzeni głównych oraz podkotyledonów.
Jednym z ograniczeń pierwotnej konstrukcji komory obrazowania było to, że mimo iż sztywna płyta agaru zapewniała pewien opór mechaniczny, korzenie rosnące grawitropowo z czasem przenikały przez płytę agarową, co prowadziło do utraty jakości obrazu (Rysunek 4B>) oraz wzrostu poza odległość roboczą obiektywów o wysokiej aperturze numerycznej (NA), nawet w przypadku obiektywu 63X/1.3 NA CS2 o stosunkowo długiej odległości roboczej (0,3 mm). Młode korzenie boczne nie posiadają komórek kolumelli zawierających statolity, które są niezbędne do grawitropizmu17, dlatego początkowo rosły one równolegle do szkiełka nakrywkowego w komorach obrazowania (Rysunek 2E>). W miarę wydłużania się korzeni oraz formowania się kolumelli i statolitów, korzenie boczne wykazują coraz silniejszy pozytywny grawitropizm, podczas gdy korzenie główne wykazują silną odpowiedź grawitropową już od momentu kiełkowania. Ogranicza to do zaledwie kilku godzin okres, w którym można obrazować korzenie główne, oraz drastycznie ogranicza początkową długość korzeni bocznych, które można obrazować w sposób ciągły przez 48 h lub dłużej. Aby przezwyciężyć to ograniczenie, zmodyfikowano komorę w taki sposób, aby wzrost równolegle do szkiełka nakrywkowego był utrzymywany przez celulozową membranę celofanową, która pełni rolę bariery przed penetracją na powierzchni płyty agarowej (Rysunek 4A>). Pierwsze próby z zastosowaniem płyty z 1,5% agaru spowodowały zahamowanie wzrostu korzeni w ciągu pierwszych 24 h, co mogło wynikać z naprężeń mechanicznych. Przetestowano niższe stężenia agaru w płycie i stwierdzono, że w komorach z płytą zawierającą 0,8% agaru i folią celulozową tempo wzrostu młodych korzeni bocznych w ciągu pierwszych 48 h nie różniło się istotnie od tempa wzrostu w konwencjonalnych komorach. W przedziale 0-24 h średni wzrost korzeni w komorach celulozowych i konwencjonalnych wynosił odpowiednio 242 µm i 262 µm (p = 0,78 test t Studenta), a w przedziale 24-48 h wynosił odpowiednio 330 µm i 355 µm1 (p = 0,67 test t Studenta); odpowiednio n = 12 i n = 11. Taka konfiguracja skutecznie zapobiegła odrastaniu korzeni bocznych od szkiełka nakrywkowego w głąb agaru, a także umożliwiła obrazowanie korzeni głównych przez okres do 48 h (Rysunek 4C>).
Aby sprawdzić, czy komory obrazowania można dostosować do organów innych niż korzenie, wybrano podlistwia Arabidopsis. Podlistwia są znacznie grubsze od korzeni, więc w konwencjonalnej komorze obrazowania najwyżej położone komórki były ściśnięte przeciwko szkiełku nakrywkowe, co prowadziło do ich deformacji. Opracowano zatem alternatywną konstrukcję z wykorzystaniem szkiełek z wgłębieniem, które posiadają owalny otwór w centrum (Ryc. 4D). W tej konfiguracji plaster agaru o grubości 1 mm (przygotowany zgodnie z sekcją 2.2 powyżej) został umieszczony tak, aby jeden koniec wystawał o kilka mm do wnętrza wgłębienia szkiełka (Ryc. 4D). Podlistwia umieszczono nad wgłębieniem w szkiełku, natomiast korzeń nad częścią poziomą. Zapewniło to unieruchomienie siewki w przestrzeni za pomocą korzenia, przy jednoczesnym uniknięciu zmiażdżenia podlistwia. Choć tempo wzrostu w komorach w porównaniu z płytkami nie zostało systematycznie ilościowo określone, podlistwia w komorach obrazowania wykazywały dobrze opisaną falę wzrostu podłużnego migrującą w górę podlistwia (Ryc. 4E, 4F)16.
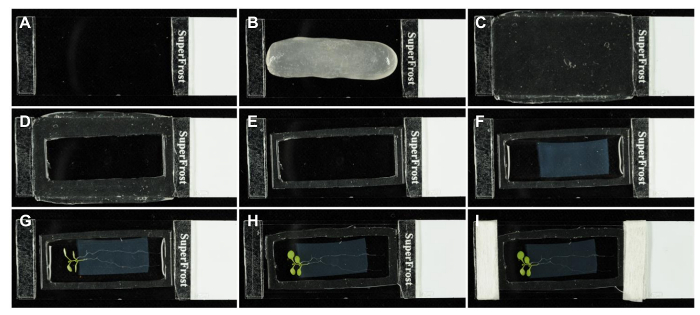
Rysunek 1: Montaż komory obrazowania. Wszystkie szczegóły opisano w tekście. Aby wyświetlić powiększoną wersję tego rysunku, kliknij tutaj.
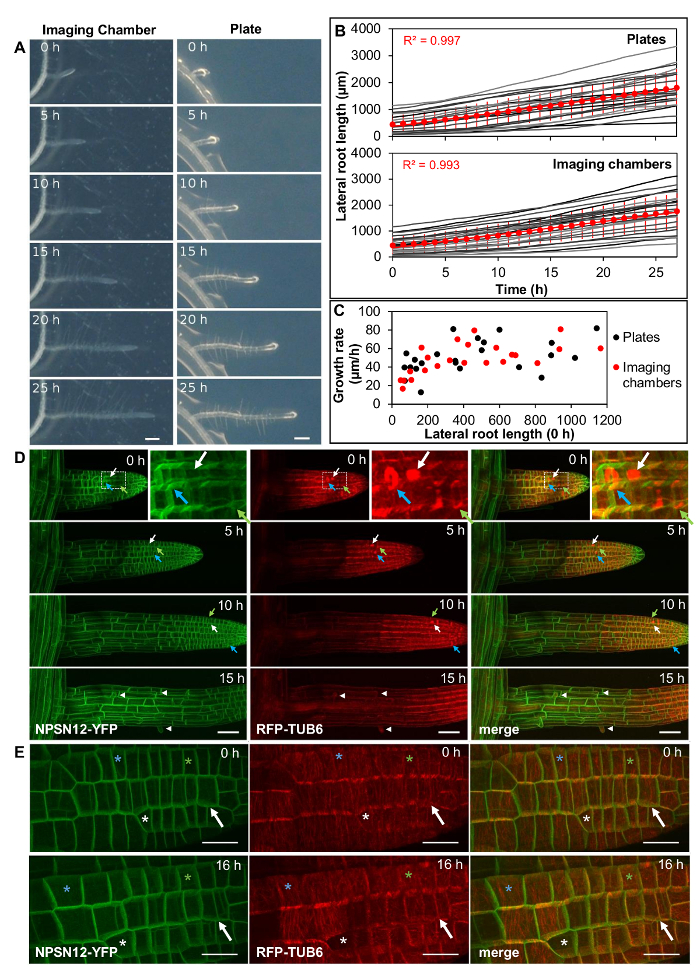
Rysunek 2: Korzenie boczne rosną w warunkach fizjologicznych w komorach obrazowania. (A) Rozwój korzeni bocznych Arabidopsis w komorze obrazowania (lewo) oraz na płytce (prawo) w ciągu 25 h (stałe oświetlenie, inkubacja pozioma, jednoczesne obrazowanie). Paski skali = 200 µm. (B) Wykres przedstawiający długości korzeni bocznych w ciągu 27 h (pomiar w odstępach 1 h) dla korzeni bocznych pokazanych na (A). Pojedyncze korzenie naniesiono w kolorze szarym (n = 23 dla płytek i komór obrazowania), średnia długość zaznaczona czerwonymi kółkami. Słupki błędu = 1 SD. Czerwona linia to dopasowanie liniowe dla średnich długości. (C) Wykres przedstawiający średnią szybkość wzrostu wszystkich korzeni bocznych pokazanych w (B) w stosunku do ich długości początkowej. (D) Projekcje maksymalnej intensywności z trójwymiarowych stosów konfokalnych uzyskanych z korzeni bocznych ekspresujących NPSN12-YFP i RFP-TUB6 w kolejnych punktach czasowych. Wstawka: Powiększenie zaznaczonego obszaru. Zielone strzałki: pierścienie przedprofazowe; białe strzałki: wrzeciona mitotyczne; niebieskie strzałki: fragmoplasty; groty strzałek: wgłobki korzeniowe. (E) Projekcje maksymalnej intensywności obrazów o wysokiej rozdzielczości uzyskanych z młodego korzenia bocznego linii transgenicznej pokazanej w (D) przy użyciu obiektywu 63X/1.2 NA i próbkowania Nyquista (wymiary piksela 77 nm x 77 nm) w 0 h i 16 h; gwiazdki wskazują identyczne komórki w każdym punkcie czasowym; strzałka wskazuje komórkę, która dzieli się między 0 h a 16 h. Paski skali = 50 µm (A-C); 20 µm (E). Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
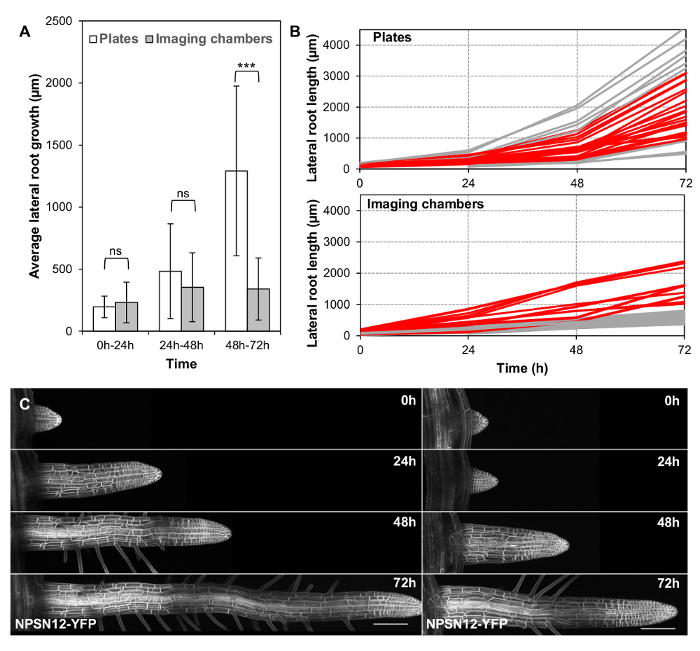
Rysunek 3: Długoterminowy rozwój korzeni bocznych w komorach obrazowania. (A) Wykres przedstawiający średni bezwzględny wzrost korzeni w trzech kolejnych interwałach 24 h w komorach obrazowania w porównaniu do płytek. n.s. oznacza p >0,05; *** oznacza p <0,001 (test t-Studenta). n = 33 (płytki) oraz n = 27 (komory obrazowania). (B) Wykres przedstawiający długości korzeni bocznych w kolejnych punktach czasowych dla wszystkich korzeni użytych w (A). Kolor czerwony: wszystkie korzenie boczne o końcowej długości mieszczącej się w obrębie 1 SD od średniej wszystkich korzeni bocznych hodowanych na płytkach (między 927 a 3163 µm). (C) Maksymalne projekcje intensywności reprezentatywnych trójwymiarowych stosów konfokalnych markera błony plazmatycznej NPSN12-YFP w korzeniach bocznych, pozyskane w kolejnych punktach czasowych w ciągu 72 h. Paski skali = 100 µm. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.

Rysunek 4: Komory obrazowania mogą być dostosowane do innych organów roślinnych. (A-C) Adaptacja komory obrazowania dla korzeni głównych. (A) Schemat konstrukcji komory obrazowania. Jest on identyczny ze standardową konstrukcją (Rysunek 1), z wyjątkiem dwóch modyfikacji: blok pożywki MS zawiera 0,8% agaru zamiast 1,5% agaru, a między agarem a rośliną umieszczono folię celulozową (czerwona), aby zapobiec wrastaniu w agar. (B) Projekcje maksymalnej intensywności w płaszczyznach XY (góra) i XZ (dół) reprezentatywnych 3D stosów konfokalnych markera błony plazmatycznej NPSN12-YFP w korzeniu głównym siedmiodniowej siewki, obrazowanej w 0 h i 48 h w konwencjonalnej komorze obrazowania. Zauważ, że korzeń wrasta w agar z powodu odpowiedzi gravitropicznej. (C) Projekcje maksymalnej intensywności w płaszczyznach XY (góra) i XZ (dół) reprezentatywnych 3D stosów konfokalnych markera błony plazmatycznej NPSN12-YFP w korzeniu głównym siedmiodniowej siewki, obrazowanej w 0 h i 48 h w komorze obrazowania z folią celulozową. Przed zastosowaniem folia celulozowa została wysterylizowana w 80% etanolu i namoczona w płynnej pożywce ½ MS. Zauważ, że wzrost gravitropiczny korzenia w agar został zablokowany. (D-F) Adaptacja komory obrazowania dla podkiełków. (D) Schemat przedstawiający konstrukcję komory obrazowania podkiełków. Uszczelka z gumy poli(dimetylosiloksanowej) (szara) jest wykonana na szkiełku z wgłębieniem między dwoma paskami szklanymi (żółte). Na szkiełku umieszczono blok 1,5% agaru o równomiernej grubości (beżowy), który częściowo wchodzi w wgłębienie. Komora jest wypełniona PFD (niebieski). Siewki są umieszczane na bloku agaru w taki sposób, aby podkiełek znajdował się w obszarze nachyłym bloku agaru w wgłębieniu, podczas gdy korzeń znajduje się na poziomej części agaru. Komora jest zamykana szkiełkiem nakrywką. (E) Projekcje maksymalnej intensywności reprezentatywnych 3D stosów konfokalnych markera błony plazmatycznej NPSN12-YFP w podkiełku dwudniowej siewki, obrazowanej przez 48 h w kolejnych punktach czasowych. (F) Wzrost podłużny w dwóch następujących po sobie odstępach czasu poszczególnych komórek wzdłuż osi od podstawy do wierzchołka (pozycje względne w 0 h wzdłuż osi pokazanej w E) podkiełka przedstawionego na (E). Zwróć uwagę na wcześniej opisaną falę wzrostu migrującą w górę podkiełka16. Paski skali = 100 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
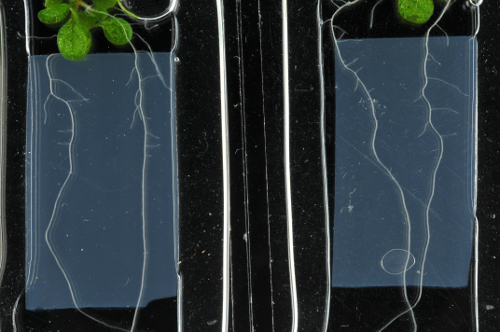
Film 1: Kliknij tutaj, aby pobrać ten film.
Dyskusja
Przedstawiona tutaj metoda jest prostą strategią obrazowania konfokalnego w wysokiej rozdzielczości rozwijających się korzeni bocznych przez dwa i do trzech dni. Przez okresy do 48 h nie zaobserwowano niekorzystnego wpływu systemu obrazowania na rozwój korzeni bocznych. Po 48 godzinach średni wzrost korzeni bocznych zaczął zwalniać, chociaż znaczna część korzeni (37%) nadal rosła w tempie porównywalnym ze średnim wzrostem korzeni na płytkach. Dlatego poprzez obrazowanie wystarczająco dużej liczby korzeni można wykluczyć korzenie, których wzrost spowalnia po 48 godzinach. Nie przeprowadzano systematycznych badań komór obrazowych przez okres dłuższy niż 72 godziny, ale w przypadku pożądanych dłuższych okresów obrazowania zalecane są alternatywne strategie. Komory obrazowania mogą być pozostawione na stoliku mikroskopu w sposób ciągły, jeśli zapewnione są odpowiednie warunki środowiskowe, lub przeniesione do urządzenia do hodowli i okresowo zwracane do mikroskopu. Pozwala to na równoległe obrazowanie wielu komór.
Jedną z zalet opisywanych tutaj komór jest to, że korzenie boczne są zamocowane w swojej pozycji i mogą być obrazowane za pomocą soczewek zanurzeniowych o wysokiej rozdzielczości. Stabilność przestrzenna zależy krytycznie od stężenia agaru zastosowanego w nośnej płycie agarowej. Początkowo przetestowano zakres różnych stężeń od 0,8% agaru do 2% agaru, ujawniając, że wysokie stężenia w tym zakresie stabilnie unieruchomiły korzenie w przestrzeni, ale wzrost korzeni spowolnił szybciej, a niektóre korzenie wykazywały oznaki naprężeń mechanicznych, w tym zmniejszone wydłużenie komórek. W przeciwieństwie do tego, niskie stężenia agaru nie zapewniały wymaganego wsparcia, a korzenie dryfowały w x, y i z podczas obrazowania. Optymalna 1,5% płyta agarowa ustala pozycję próbki bez niekorzystnych skutków mechanicznych. W tych warunkach, po osiedleniu się w ciągu pierwszych 30 minut, korzenie są stabilne przez wiele godzin, co pozwala na nocne pozyskiwanie danych. Podczas pozyskiwania danych 4D, zakresy stosów z były zwykle ujęte w nawiasy przez dodatkowe 5-10 μm, ale miało to głównie na celu dostosowanie się do wzrostu korzeni bocznych poza płaszczyzną, a nie dryfu z lub chybotania. Chociaż standardowe stężenie agaru zapewnia pewną odporność na penetrację, korzenie rosnące grawitropowo w końcu przenikną do agaru. Jednak dzięki niewielkiej modyfikacji komory obrazowania, wzrost korzeni mógł być utrzymany równolegle do szkiełka nakrywkowego, co pozwoliło na obrazowanie starszych korzeni bocznych i korzeni pierwotnych. Co więcej, podstawową komorę obrazowania można łatwo dostosować do hipokotylów. Hipokotyle swobodniej unoszą się w tym układzie, dlatego wspornik osi Z do akwizycji obrazu został zwiększony zwykle do około 20 μm. W tym badaniu przez cały czas używano mikroskopu pionowego, który pozwolił na kontrolowanie właściwości podłoża. Komora obrazowania może być przystosowana do konfiguracji mikroskopu odwróconego, ale konieczne będzie oszacowanie zależnego od czasu wpływu sztywnego szkiełka nakrywkowego na narządy przechwytujące.
Littlejohn i współpracownicy zwrócili uwagę, że PFD sam w sobie nie rozpuszcza łatwo cząsteczek biologicznych, co oznacza, że nie może być używany bezpośrednio do dostarczania związków farmakologicznych. Problem ten został rozwiązany poprzez dostarczanie takich związków przez płytę zestalonej pożywki wzrostowej, na której spoczywa płyta agarowa. Podczas gdy systemy perfuzyjne pozostaną metodą z wyboru w eksperymentach z wymywaniem, komora obrazowania jest z powodzeniem stosowana do podawania deksametazonu12 i innych związków. Jedna uwaga, podczas gdy ten artykuł był w przygotowaniu, von Wagenheimi współpracownicy opisali komorę do obrazowania rozwoju korzeni bocznych za pomocą mikroskopii świetlnej.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Dziękujemy Prof. Geoffreyowi Wasteneysowi, University of British Columbia, za wyrażenie ziarna RFP-TUB6 oraz anonimowemu recenzentowi za pomocne poprawki. Jesteśmy wdzięczni prof. Hugh Dickinsonowi za zwrócenie uwagi na możliwość stosowania folii celulozowej jako podpory mechanicznej oraz Johnowi Bakerowi za fotografię. Praca ta była wspierana przez granty badawcze BBSRC BB/G013993/1 i BB/D004055/1 dla I.M. oraz nagrodę BBSRC Doctoral Training Award i stypendium Clarendon dla C.K.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Perfluorodekalina | F2 Chemicals, F2 Chemicals Ltd., Lea Town, Lancashire, Wielka Brytania | FLUTEC PP6 | |
| Guma poli(dimetylosiloksan) | Zaopatrzenie biologiczne Karoliny; Burlington, NC, USA | Pozycja # 132700 | Carolina |
| Szkiełka mikroskopowe z żelem obserwacyjnym | VWR International Ltd, Lutterworth, UK | 10118-600 | Wnęka ma średnicę 13 mm i głębokość 0,2-0,4 mm. Prawdopodobnie wystarczy dowolny szkiełko wnękowe |
| Klej cyjanoakrylowy | Loctite | 604753 | Prawdopodobnie wystarczy dowolny "super-klej" odpowiedni do szkła |
| Celulozowa membrana celofanowa | AA Packaging Limited, Preston, Wielka Brytania | Folia celulozowa 325P; Tarcza 80 mm |
Bibliografia
- Calder, G., Hindle, C., Chan, J., Shaw, P. An optical imaging chamber for viewing living plant cells and tissues at high resolution for extended periods. Plant Meth. 11, 22(2015).
- Grossmann, G., et al. The RootChip: An Integrated Microfluidic Chip for Plant Science. Plant Cell. 23, 4234-4240 (2011).
- Busch, W., et al. A microfluidic device and computational platform for high throughput live imaging of gene expression. Nat Meth. 9, 1101-1106 (2012).
- Baranenko, V., et al. Solubility of oxygen and carbon dioxide in water. Atomic Energy. 68, 342-346 (1990).
- Sena, G., Frentz, Z., Birnbaum, K. D., Leibler, S. Quantitation of Cellular Dynamics in Growing Arabidopsis Roots with Light Sheet Microscopy. Plos One. 6, (2011).
- Littlejohn, G. R., Gouveia, J. D., Edner, C., Smirnoff, N., Love, J. Perfluorodecalin enhances in vivo confocal microscopy resolution of Arabidopsis thaliana mesophyll. New Phytol. 186, 1018-1025 (2010).
- Littlejohn, G. R., Love, J. A simple method for imaging Arabidopsis leaves using perfluorodecalin as an infiltrative imaging medium. J Vis Exp. , (2012).
- Littlejohn, G. R., et al. An update: improvements in imaging perfluorocarbon-mounted plant leaves with implications for studies of plant pathology, physiology, development and cell biology. Front Plant Sci. 5, 140(2014).
- Dias, A., Freire, M., Coutinho, J. A., Marrucho, I. Solubility of oxygen in liquid perfluorocarbons. Fluid Phase Equilibria. 222, 325-330 (2004).
- Sukumaran, N. P., Quamme, H., Weiser, C. J. Use of Fluid Fluorocarbons to Study Freezing in Plant Tissues. Plant Physiol. 50, 632-634 (1972).
- Firpo, G., Angeli, E., Repetto, L., Valbusa, U. Permeability thickness dependence of polydimethylsiloxane (PDMS) membranes. J Membrane Sci. 481, 1-8 (2015).
- Kirchhelle, C., et al. The Specification of Geometric Edges by a Plant Rab GTPase Is an Essential Cell-Patterning Principle During Organogenesis in Arabidopsis. Dev Cell. 36, 386-400 (2016).
- Beemster, G. T. S., Baskin, T. I. Analysis of cell division and elongation underlying the developmental acceleration of root growth in Arabidopsis thaliana. Plant Physiol. 116, 1515-1526 (1998).
- Geldner, N., et al. Rapid, combinatorial analysis of membrane compartments in intact plants with a multicolor marker set. Plant J. 59, 169-178 (2009).
- Ambrose, C., Allard, J. F., Cytrynbaum, E. N., Wasteneys, G. O. A CLASP-modulated cell edge barrier mechanism drives cell-wide cortical microtubule organization in Arabidopsis. Nat Commun. 2, 430(2011).
- Kiss, J. Z., Miller, K. M., Ogden, L. A., Roth, K. K. Phototropism and Gravitropism in Lateral Roots of Arabidopsis. Plant Cell Physiol. 43, 35-43 (2002).
- Gendreau, E., et al. Cellular basis of hypocotyl growth in Arabidopsis thaliana. Plant Physiol. 114, 295-305 (1997).
- von Wangenheim, D., Hauschild, R., Friml, J. Light Sheet Fluorescence Microscopy of Plant Roots Growing on the Surface of a Gel. J. Vis. Exp. (119), e55044(2017).
Przedruki i uprawnienia
Przeglądaj więcej artykułów
