Prezentujemy model tkanki więzadła, w którym trójwymiarowe konstrukty są traktowane ludzką surowicą kondycjonowaną wysilaniem i analizowane pod kątem zawartości kolagenu, funkcji i biochemii komórkowej.
Artykuł metodologiczny
Leczenie konstruktów więzadeł surowicą kondycjonowaną wysiłkowo: translacyjny model inżynierii tkankowej
W tym artykule
Podsumowanie
Streszczenie
Eksperymenty in vitro są niezbędne do zrozumienia mechanizmów biologicznych; jednak różnica między jednowarstwową hodowlą tkanek a fizjologią człowieka jest duża, a tłumaczenie wyników jest często słabe. W związku z tym istnieje wiele możliwości dla alternatywnych podejść eksperymentalnych. Tutaj przedstawiamy podejście, w którym ludzkie komórki są izolowane z resztek tkanki ludzkiego więzadła krzyżowego przedniego, namnażane w hodowli i wykorzystywane do tworzenia zmodyfikowanych więzadeł. Ćwiczenia zmieniają środowisko biochemiczne we krwi w taki sposób, że poprawia się funkcjonowanie wielu tkanek, narządów i procesów zachodzących w organizmie. W tym eksperymencie pożywki hodowlane konstruujące więzadła zostały uzupełnione eksperymentalną ludzką surowicą, która została "uwarunkowana" przez ćwiczenia. W związku z tym interwencja jest bardziej istotna z biologicznego punktu widzenia, ponieważ tkanka doświadczalna jest wystawiona na działanie pełnego endogennego środowiska biochemicznego, w tym białek wiążących i związków pomocniczych, które mogą być zmieniane w tandemie z aktywnością nieznanego czynnika będącego przedmiotem zainteresowania. Po leczeniu zmodyfikowane więzadła można przeanalizować pod kątem funkcji mechanicznych, zawartości kolagenu, morfologii i biochemii komórkowej. Ogólnie rzecz biorąc, istnieją cztery główne zalety przedstawionego tutaj modelu fizjologicznego tkanki więzadłowej w porównaniu z tradycyjną hodowlą jednowarstwową i modelami zwierzęcymi. Po pierwsze, konstrukcje więzadłowe są trójwymiarowe, co pozwala na ilościowe określenie właściwości mechanicznych (tj. funkcji), takich jak końcowe naprężenie rozciągające, maksymalne obciążenie rozciągające i moduł. Po drugie, przyczep ścięgnisty, czyli interfejs między elementami kostnymi i ścięgnistami, może być badany szczegółowo i w kontekście funkcjonalnym. Po trzecie, przygotowanie pożywki z surowicą powysiłkową pozwala na bezstronne zbadanie wpływu środowiska biochemicznego wywołanego wysiłkiem fizycznym, które jest odpowiedzialne za szeroki zakres korzyści zdrowotnych płynących z ćwiczeń. Wreszcie, ten eksperymentalny model naprzód badania naukowe w sposób humanitarny i etyczny, zastępując wykorzystywanie zwierząt, co jest podstawowym mandatem National Institutes of Health, Center for Disease Control oraz Food and Drug Administration.
Wprowadzenie
Urazy ścięgien i więzadeł są powszechne i mogą mieć destrukcyjne konsekwencje dla normalnej mobilności i jakości życia. Interwencja chirurgiczna jest często konieczna, ale może mieć ograniczony i zróżnicowany sukces4,5. Obecna wiedza na temat tego, jak ścięgna i więzadła rozwijają się, dojrzewają i reagują na urazy, jest niekompletna, dlatego potrzebne są skuteczne modele badawcze, które zapewnią wgląd w rozwój skuteczniejszych metod leczenia5. Aby wypełnić tę lukę w wiedzy, można wykorzystać modele zwierzęce, ale badania in vivo są z natury skomplikowane i mają trudności z kontrolowaniem środowiska i bezpośrednim ukierunkowaniem interwencji na zamierzoną tkankę. W przeciwieństwie do tego, środowisko eksperymentalne może być łatwo kontrolowane i monitorowane in vitro za pomocą tradycyjnej jednowarstwowej hodowli komórkowej. Jednak technika ta może nadmiernie uprościć środowisko chemiczne i mechaniczne, a tym samym może nie odzwierciedlać zachowania komórek in vivo. Inżynieria tkankowa jest w stanie połączyć zalety złożonego środowiska in vivo w modelach zwierzęcych z kontrolą środowiska in vitro i zapewnia dodatkowe narzędzie do badania fizjologii. Ponadto, dzięki lepszemu zrozumieniu rozwoju więzadeł, inżynieria tkankowa może również stanowić źródło przeszczepu tkanki, gdy wymagana jest rekonstrukcja chirurgiczna6. W ten sposób opisana tutaj metoda weryfikuje tkankę inżynieryjną 3D in vitro, którą można wykorzystać do badania funkcji więzadeł i morfologii.
Konstrukty ścięgien lub więzadeł oparte na fibrynie zostały użyte jako model in vitro do badania procesów fizjologicznych, w tym fibrylogenezy kolagenu7 i rozwoju ścięgien8, a także aplikacji translacyjnych, w których ich użyteczność jako tkanki do przeszczepu została oceniona w owczym modelu rekonstrukcji więzadła krzyżowego przedniego (ACL) u owiec9. Nasze laboratorium wcześniej stworzyło model więzadłowy 3D obejmujący dwa szczotkyty, materiał zastępujący kości fosforan wapnia, kotwy cementowe. Model ten można z łatwością poddać różnym warunkom eksperymentalnym, po prostu uzupełniając pożywkę biologiczną czynnikami biologicznymi10 lub stosując stymulację mechaniczną11. Co ważne, ten model więzadła kostno-kostnego pozwala na dogłębną analizę przyczepu ścięgnistego, czyli granicy faz między elementami kostnymi i ścięgnistymi, która jest podatna na urazy.
W badaniu wyróżnionym1 tutaj, aby przedstawić tę metodologię, byliśmy zainteresowani wpływem wywołanych ćwiczeniami zmian w środowisku biochemicznym na funkcję więzadeł. Ćwiczenia poprawiają funkcjonowanie komórek i narządów w różnych tkankach w całym ciele2,3,12, efekt, który można przypisać uwolnieniu różnych znanych (np. IL-613, IL-1514, Meteorin-like15, exosomes16,17) i inne nieznane, biochemiczne czynniki uwalniane do krążenia ogólnoustrojowego. Ponadto środowisko biochemiczne po wysiłku jest wzbogacone o hormony reagujące na wysiłek fizyczny, których uwalnianie jest stymulowane przez stymulację współczulnego układu nerwowego gruczołów wydzielniczych (np. kortyzol i katecholaminy z nadnerczy18, oraz hormon wzrostu z przedniego płata przysadki mózgowej19). Jednakin vivo niemożliwe jest odróżnienie skutków bodźca mechanicznego związanego z wysiłkiem fizycznym od zmian biochemicznych wywołanych wysiłkiem fizycznym. Podczas gdy niektóre badania charakteryzowały oczekiwany wzrost niektórych krążących hormonów i cytokin w odpowiedzi na ćwiczenia, jak wspomniano powyżej, istnieje zbyt wiele czynników, zarówno znanych, jak i nieznanych, aby wiernie podsumować in vitro. Oznacza to, że wyizolowanie kilku czynników w badaniu in vitro w niewystarczający sposób rozwiązuje problem złożoności odpowiedzi biochemicznej. W tym badaniu zbadaliśmy, w jaki sposób zmiany w środowisku biochemicznym surowicy, wywołane ćwiczeniami, wpływają na zmodyfikowaną funkcję więzadeł. Aby wyizolować skutki zmian biochemicznych, uzyskaliśmy surowicę od uczestników przed i po treningu oporowym i zastosowaliśmy ją do leczenia więzadeł 3D utworzonych przy użyciu ludzkich fibroblastów więzadła krzyżowego przedniego (ACL). Korzystając z tego modelu, możemy uzyskać dane funkcjonalne, w tym wpływ na właściwości mechaniczne i zawartość kolagenu, a także określić ilościowo wpływ na sygnalizację molekularną.
Protokół
Poniższe procedury są zgodne z protokołem zatwierdzonym przez Instytucjonalną Komisję Rewizyjną (Institutional Review Board) Uniwersytetu Kalifornijskiego w Davis; przed rozpoczęciem badań należy skonsultować się z lokalną komisją etyki.
1. Izolacja pierwotnych fibroblastów z fragmentów ludzkiego ACL
UWAGA: Należy zachować sterylność i przeprowadzić wszystkie etapy w komorze z laminarnym przepływem powietrza (BSC).
- Uzyskać zgodę odpowiedniej komisji etycznej na pobieranie i wykorzystywanie tkanek ludzkich zgodnie z poniższym opisem.
- Przygotować 5-krotny roztwór antybiotyków i środków przeciwgrzybiczych (ABAM), rozcieńczając 10-krotny roztwór antybiotyków i środków przeciwgrzybiczych w 1X soli fizjologicznej buforowanej fosforanowo (PBS).
- Fragmenty tkanki ACL zebrać do probówki stożkowej o pojemności 50 mL zawierającej 5X roztwór ABAM; przechowywać w temperaturze 4 °C do momentu trawienia. W razie potrzeby pociąć tkankę żyletką na mniejsze fragmenty o maksymalnych wymiarach 1 x 1 x 1 cm3.
OSTROŻNIE: Przestrzegać lokalnych przepisów dotyczących zagrożeń biologicznych w zakresie właściwego obchodzenia się z materiałami biologicznymi oraz dekontaminacji i utylizacji odpadów niebezpiecznych biologicznie. - Przygotować objętość roztworu kolagenazy wystarczającą do całkowitego zanurzenia fragmentów tkanki. Rozpuścić kolagenazę typu II (1 mg/mL) w pożywce DMEM (Dulbecco's modified Eagle medium) z wysoką zawartością glukozy, zawierającej 1x penicylinę/streptomycynę oraz 20% płodowej surowicy bydlęcej (FBS), a następnie przefiltrować przez membranę 0,2 µm.
- Przepłukać tkankę ACL trzykrotnie w PBS.
- Przeprowadzić trawienie tkanki. Przenieść tkankę ACL do nowej probówki stożkowej o pojemności 50 mL i dodać objętość roztworu kolagenazy wystarczającą do zanurzenia tkanki. Inkubować w temperaturze 37 °C przez noc (~17 h).
- Przed zakończeniem czasu trawienia przygotować pożywkę wzrostową (GM), uzupełniając pożywkę DMEM z wysoką zawartością glukozy o 10% FBS i 10 U/mL penicyliny.
- Na 15 min przed zakończeniem czasu trawienia krótko wymieszać probówkę 50 mL z tkanką na vortexie 3 razy co 5 min.
- Za pomocą pipety serologicznej o pojemności 25 mL energicznie triturować strawioną tkankę, aby dalej ją rozbić i uwolnić komórki.
- Odwirować przy 1 50 x g przez 5 min. Odessać supernatant i resuspendować osad w 10 mL GM.
- Powtórzyć kroki 1.8-1.9 jeszcze trzy razy.
- Po ostatnim wirowaniu resuspendować osad w 5-10 mL GM. Wykorzystać niewielką próbkę zawiesiny komórkowej do wykonania liczenia komórek za pomocą hemocytometru i oceny żywotności komórek przy użyciu błękitu trypanu (Trypan Blue).
- Wysiać zawiesinę komórkową na 15-centymetrowe płytki do hodowli tkankowych w zagęszczeniu 3-4 x 10⁵ komórek na płytkę.
- Hodować do osiągnięcia 70% konfluencji w sterylnym inkubatorze w temperaturze 37 °C i przy 5% CO2, wymieniając GM co trzy dni. Wykorzystać lub zarchiwizować (patrz poniżej) komórki przed 5. pasażem.
- Zamrażanie komórek do późniejszego użycia.
- Trypsynizować komórki przy 70% konfluencji w następujący sposób: odessać pożywkę i przemyć komórki PBS. Dodać odpowiednią ilość podgrzanej wcześniej (37 °C) 0,05% trypsyny, tak aby ledwo pokryła dno płytek do hodowli tkankowej. Umieścić płytki w inkubatorze na ~5 min, aż komórki się odkleją (zweryfikować pod mikroskopem świetlnym, czy komórki unosi się w zawiesinie). Zebrać komórki pipetą i przelać do probówki Falcona.
- Odwirować w celu zebrania osadu komórkowego, a następnie resuspendować komórki w pożywce DMEM z wysoką zawartością glukozy, zawierającej 20% FBS i 10% dimetylosulfoksydu (DMSO). Rozdzielić zawiesinę komórkową do krio probówek i schładzać w temp. -1 °C/min przez co najmniej 24 h. Przechowywać zamrożone krio probówki w ciekłym azocie.
2. Przygotowanie płytek pokrytych silikonem
- Przygotuj płytki hodowlane o średnicy 35 mm: zdejmij pokrywki i ułóż otwarte płytki na płaskiej powierzchni.
- Wymieszaj zestaw elastomeru silikonowego zgodnie z instrukcją producenta.
- Użyj strzykawki 10 mL, aby nanieść około 2 mL na każdą płytkę 35 mm.
- Pozostaw silikon do utwardzenia w temperaturze pokojowej przez 2-3 dni.
3. Przygotowanie kotwic z cementu brushytowego
- Wcześniej należy przygotować silikonowe formy odwrócone zawierające cylindryczne otwory do formowania kotwic. Formy odwrócone można wykonać zgodnie ze specyfikacją pożądanego kształtu i rozmiaru kotwicy.
- Określ pożądaną wysokość i średnicę końcowej kotwicy. W niniejszym protokole zastosowano formę wykonaną z silikonu modelarskiego w 35 mm szalce do hodowli tkanek, w której umieszczono plastikowe cylindry o średnicy około 3,25 mm, co pozwoliło uzyskać końcową wysokość formy około 6,5 mm. Końcowe wymiary kotwic to w przybliżeniu 3-3,5 mm wysokości i około 3,4 mm średnicy, z 1,5 mm wystającym trzpieniem u podstawy kotwicy.
- Wlej nieutwardzony silikon do 35 mm szalce, w której powstanie forma. Odpowiednio umieść plastikowe cylindry.
UWAGA: Rozmiar plastikowych cylindrów określi średnicę końcowych kotwic. Rozmieszczenie plastikowych cylindrów oraz ilość użytego silikonu można zmodyfikować, aby uzyskać kotwice o różnych wysokościach. Odległość między dnem otworów w formie a dnem samej formy określi, jak bardzo trzpień może wystawać z podstawy kotwicy, co umożliwi późniejsze bezpieczne przymocowanie kotwicy w szalce pokrytej silikonem. - Po utwardzeniu silikonu wyjmij plastikowe cylindry i wyjmij formę z 35 mm szalce.
- Przygotuj roztwór kwasu ortofosforowego 3,5 M / kwasu cytrynowego 10 mM. Rozpuść 0,961 g kwasu cytrynowego w 1,5 mL kwasu ortofosforowego. Uzupełnij objętość roztworu do 50 mL wodą MilliQ. Przechowuj roztwór w temperaturze pokojowej, chroniąc przed światłem.
- Przygotuj formy: Umieść jeden trzpień minutien w centrum każdego cylindrycznego otworu w formie.
- Połącz β-fosforan trójwapniowy i roztwór kwasu ortofosforowego/cytrynowego w stężeniu 1 g/mL w plastikowej łódce wagowej na lodzie.
- Intensywnie wymieszaj cement za pomocą plastikowego skrobaka do komórek.
- Utriej cement, aby kontynuować mieszanie, a następnie pipetą przelej mieszaninę do formy.
- Wiruj wypełnioną formę przez 1 min przy 2,250 ×g.
- Pozostaw kotwice z cementu brushytowego do zastygnięcia w temperaturze pokojowej przez noc.
- Wyjmij kotwice z formy i zamocuj dwie kotwice w odstępach 12 mm w każdej płytce pokrytej silikonem.
- Sterylizuj płytki z zamocowanymi kotwicami, spryskując je 70% etanolem (zarówno płytki, jak i pokrywki) i umieszczając w BSC. Po co najmniej 30 min odessij zawartość płytek i załóż pokrywki, przechowując w BSC do momentu użycia.
4. Pozyskiwanie surowicy ludzkiej
- Należy upewnić się, że dla niniejszego protokołu uzyskano zgodę odpowiedniej komisji etycznej.
- Należy upewnić się, że od osób badanych uzyskano pisemną świadomą zgodę na udział w danej interwencji (np. ćwiczeniach, interwencji żywieniowej lub farmakologicznej), która wywoła pożądane zmiany w surowicy. W niniejszym opisie przedstawiono pobieranie próbek w spoczynku oraz 15 min po ćwiczeniach oporowych.
- Przy pomocy wykwalifikowanego flebotomisty należy pobrać od uczestnika próbkę krwi spoczynkowej drogą wenipunkcji do odpowiedniego probówki próżniowej.
- Próbkę krwi po wysiłku należy pobrać 15 min po przeprowadzeniu przez uczestników pożądanego protokołu ćwiczeń. Zgodnie z wcześniejszym opisem1, w tym eksperymencie zastosowano protokół ćwiczeń oporowych w celu stymulacji endogennej odpowiedzi biochemicznej.
- Uczestnicy powinni wykonać pięć serii wyprostów nóg na maszynie (leg press) z jednominutową przerwą między seriami. Następnie uczestnicy powinni wykonać serię wyprostów kolan oraz serię ugięć nóg w leżeniu brzuchem do góry (hamstring curls) jedna po drugiej, bez przerwy, a następnie powtórzyć te ćwiczenia sekwencyjnie trzy razy z 1 min przerwą między seriami.
- Należy pozwolić krwi skrzepnąć przed wirowaniem przy 1,50 x g przez 10 min. W warunkach sterylnych surowicę należy przenieść do sterylnych probówek w celu późniejszego uzupełniania pożywek (surowica przechowywana w 4 °C) oraz analizy biochemicznej (mała alikwota surowicy przechowywana w -20 °C).
5. Formowanie sztucznie wyhodowanych więzadeł
UWAGA: Wcześniej należy namnożyć pierwotne fibroblasty oraz przygotować płytki powlekane silikonem z przypiętymi kotwicami z brushytu.
- Przygotowanie odczynników:
- Przygotuj trombinę. Rozpuść trombinę bydlęcą w stężeniu 20 U/mL w pożywce DMEM z wysoką zawartością glukozy. Przefiltruj przez filtr 0,2 µm, podziel na alykwoy i przechowuj w temperaturze -20 °C.
- Przygotuj fibrynogen. Rozpuść fibrynogen bydlęcy w stężeniu 20 mg/mL w pożywce DMEM z wysoką zawartością glukozy. Inkubuj przez 3-4 h w kąpieli wodnej o temperaturze 37 °C, mieszając co 30 min w celu ułatwienia rozpuszczania. Przefiltruj przez filtr 0,2 µm (może być konieczne użycie kilku filtrów), podziel na alykwoy i przechowuj w temperaturze -20 °C.
- Przygotuj aprotininę. Rozpuść aprotininę w wodzie do uzyskania stężenia 10 mg/mL. Przefiltruj przez filtr 0,2 µm, podziel na alykwoy i przechowuj w temperaturze -20 °C.
- Przygotuj kwas aminonokapronowy. Rozpuść kwas aminonokapronowy w wodzie w stężeniu 0,1g/mL. Przefiltruj przez filtr 0,2 µm, podziel na alykwoy i przechowuj w temperaturze 4 °C.
- Przygotuj kwas askorbinowy. Rozpuść kwas askorbinowy w pożywce DMEM z wysoką zawartością glukozy do stężenia 50 mM. Przefiltruj przez filtr 0,2 µm i przechowuj w temperaturze 4 °C.
- Przygotuj L-prolinę. Rozpuść L-prolinę w PBS do stężenia 50 mM. Przefiltruj przez filtr 0,2 µm i przechowuj w temperaturze 4 °C.
- Przygotuj czynnik wzrostu transformującego-β1 (TGF-β1). Zrekonstytuuj TGF-β1 zgodnie z instrukcją producenta do stężenia 10 µg/mL. Podziel na alykwoy i przechowuj w temperaturze -20 °C.
- Określ liczbę konstruktów wymaganych do eksperymentu i upewnij się, że przygotowano odpowiednią liczbę płytek z pinami. Zaleca się stosowanie powtórzeń biologicznych i technicznych. W omawianym tutaj badaniu1 zastosowano dwa powtórzenia techniczne oraz 12 powtórzeń biologicznych (surowica od 12 osób w stanie spoczynku i po wysiłku).
UWAGA: Następujące kroki należy wykonywać w warunkach sterylnych w komorze z laminarnym przepływem powietrza (BSC). - Namnóż komórki, hodując je na płytkach 15 cm do uzyskania 70% konfluencji. Do jednego konstruktu wymagane jest 2,5 x 10⁵ komórek.
- Poddaj komórki trypsynizacji i resuspenduj w pożywce wzrostowej (GM) w stężeniu 3,67 x 10⁵ komórek/mL.
- Przygotuj master mix dla wymaganej liczby konstruktów: dla 1 konstruktu master mix zawiera 681 µL zawiesiny komórkowej (zawierającej 2,5 x 10⁵ komórek), 29 µL trombiny, 2 µL aprotininy i 2 µL kwasu aminonokapronowego.
- Po dokładnym wymieszaniu master mixu nanieś 714 µL na każdą płytkę z pinami, prowadząc pipetę ruchem przypominającym cyfrę 8 wokół kotwic z cementu brushytowego. Upewnij się, że master mix bezpośrednio styka się z bokami kotwic.
- Lekko postukaj każdą płytkę, aby równomiernie rozprowadzić master mix po całej powierzchni.
- Dla każdej płytki z osobna szybko dodaj 286 µL fibrynogenu, nanosząc go kroplami równomiernie na całą powierzchnię, a następnie natychmiast przesuwaj płytkę przód-tył i na boki po powierzchni BSC, aby rozprowadzić fibrynogen w celu utworzenia żeli fibrynowych z zatopionymi komórkami. Przejdź do kolejnej płytki.
- Umieść konstrukty w sterylnym inkubatorze w temperaturze 37 °C i przy 5% CO2 i inkubuj przez co najmniej 15 min, aby umożliwić polimeryzację fibrynogenu.
- Przygotuj odpowiednią ilość pożywki do karmienia (FM) w ilości 2 mL na konstrukt. Uzupełnij GM o 20 µM kwasu askorbinowego, 50 µM proliny i 5 ng/mL TGF-β1.
- Dodaj 2 mL FM, aby przykryć każdy konstrukt. Hoduj konstrukty w sterylnym inkubatorze w temperaturze 37 °C i przy 5% CO2 przez łącznie 14 dni lub do uzyskania pożądanego punktu końcowego, wymieniając pożywkę co drugi dzień na 2 mL FM.
6. Badanie wytrzymałości na rozciąganie zaprojektowanych więzadeł
UWAGA: Badania rozciągania przeprowadzono przy użyciu specjalnie skonstruowanego urządzenia do pomiaru wytrzymałości na rozciąganie w kąpieli z PBS; uchwyty odlewane w odwróconej formie, połączone z przetwornikiem siły, stabilizują kotwice z cementu brushytowego podczas testu.
- Wyznaczyć długość i szerokość konstruktów więzadeł za pomocą suwmiarki cyfrowej; obliczyć powierzchnię przekroju poprzecznego tkanki.
- Odczep konstrukt więzadłowy od płytki i umieść kotwice w odwróconych uchwytach formowanych, upewniając się, że konstrukt jest zanurzony w PBS.
- Dostosuj odległość między uchwytami, ustawiając długość preparatu na jego długość początkową.
- Rozpocząć badanie: poddać konstrukcję rozciąganiu do momentu zniszczenia z prędkością odkształcania 0,4 mm/s (lub ~3%/s).
- Po zakończeniu badania należy poddać pozostałości tkanek analizie zawartości kolagenu (patrz sekcja 7).
- Na podstawie uzyskanych danych obciążenie-odkształcenie obliczyć wartości naprężenia i odkształcenia oraz określić interesujące właściwości mechaniczne; na przykład maksymalne obciążenie rozciągające, wytrzymałość na rozciąganie oraz moduł (t.j., właściwość sprężystości w obszarze liniowym krzywej naprężenie-odkształcenie).
7. Ilościowe oznaczenie zawartości kolagenu w wyhodowanych więzadłach
- Usunąć zaprojektowane więzadła z kotwic z cementu brushytowego i wysuszyć w temperaturze 120 °C przez 25 min.
- Wyznacz masę suchego materiału konstruktów i umieść go w oddzielnych probówkach o pojemności 1,5 ml. Wysuszone konstrukty można przechowywać w temperaturze pokojowej do czasu dalszej obróbki.
- Do każdego konstruktu dodać 200 µL 6 M HCl. Gotować w temperaturze 120 °C w bloku grzewczym przez 2 h w dygestorium.
UWAGA: HCl jest substancją silnie korozyjną i kwasową; zaleca się stosowanie probówek odpornych na wrzenie / z bezpiecznym zamknięciem lub innej metody zabezpieczania probówek. - Krótko odwiruj probówki, aby zebrać ciecz, a następnie pozostaw je bez zakrętek w celu odparowania w 120 °C w bloku grzejnym przez 1,5 h pod wyciągiem.
- Resuspenduj otrzymany osad w 200 µL bufor hydroksyprolinowy. Przechowywać w temperaturze -20 °C do momentu użycia.
- Przygotuj bufor do oznaczania hydroksyproliny. Do 300 ml wody dodaj 16,6 g kwasu cytrynowego, 4 ml kwasu octowego oraz 1,4 g NaOH i mieszaj do całkowitego rozpuszczenia. Dostosuj pH do wartości 6–6,5 i uzupełnij objętość do 50 ml. Dodaj 250 µL toluen jako konserwant i przechowywać w 4 °C chronić przed światłem.
- Przygotuj odczynniki.
- Przygotować trans-4-hydroksy-L-prolinę. Rozpuścić w wodzie, aby przygotować roztwór o stężeniu 4 mg/ml.
- Przygotuj chloraminę T. Rozpuść ją w wodzie, aby otrzymać roztwór o stężeniu 14,1 mg/ml.
- Przygotuj aldehyd-nadchlorowy. Rozpuść 1,5 g 4-dimetyloaminobenzaldehydu w 6 ml 1-propanolu, 2,6 ml kwasu nadchlorowego (OSTRZEŻENIE: substancja żrąca, silny utleniacz, stosować odpowiednie środki ostrożności) i 0,5 ml wody.
- W zestawie nowych probówek o pojemności 1,5 ml rozcieńczyć próbkę każdego zawieszonego osadu w buforze do hydroksyproliny do objętości 200 µL.
UWAGA: Rozcieńczenia próbek w buforze mogą wynosić od 1:4 do 1:50, w zależności od przewidywanej zawartości kolagenu w próbce; w związku z tym może być konieczne przeprowadzenie testów metodą prób i błędów w celu ustalenia współczynnika rozcieńczenia odpowiedniego dla danego zestawu próbek (tak, aby wartości z próbek mieściły się w środkowym zakresie krzywej wzorcowej). - Przygotuj standardy hydroksyproliny. Rozcieńcz hydroksyprolinę w buforze do hydroksyproliny (patrz sekcja 7.5.1) do 80 µg/mLWykonaj rozcieńczenia seryjne, aby przygotować 6–8 200 µL standardy w zakresie 0-20 µg/mL.
- Dodaj 150 µL Do każdego standardu i rozcieńczonej próbki dodać roztwór Chloraminy T o stężeniu 14,1 mg/ml. Wymieszać w wortexie i inkubować w temperaturze pokojowej przez 20 min.
- Dodaj 150 µL roztwór aldehydowo-nadchlorzanowy do każdej próbki i próbki rozcieńczonej. Wymieszać wstrząsarzu wortexowym i inkubować w bloku grzejnym w temperaturze 60 °C przez 15 min. Nadmiar roztworu aldehydu i nadchloranu należy zutylizować jako odpady niebezpieczne zgodnie z lokalnymi przepisami (zawiera kwas nadchlorowy).
- Należy pozwolić standardom i próbkom ostygnąć przed podzieleniem ich na aliquoty. 200 µL po dwie kopie każdego z nich do płytek 96-dołkowych.
- Odczytać wartości z płytki przy 50 nm w spektrofotometrze. Płytkę oraz pozostałą objętość w probówkach 1,5 ml zutylizować jako odpady niebezpieczne zgodnie z lokalnymi przepisami (zawierają kwas nadchlorowy).
- Obliczanie całkowitej zawartości kolagenu i frakcji kolagenu.
- Przelicz wartość absorbancji dla każdej próbki na mikrogramy hydroksyproliny, korzystając z krzywej wzorcowej dla hydroksyproliny.
- Pomnóż wartość dla każdej dołki przez 2,5, aby obliczyć ilość hydroksyproliny w rozcieńczonej próbce. Przypomnijmy, że tylko 20 z 500 µL całkowita mieszanina (200 µL rozcieńczona próbka + 150 µL chloramin T +150 µL roztwór AP) dodaje się do każdego dołka próbki.
- Pomnożyć przez czynnik rozcieńczenia (rozdział 7.7), aby obliczyć ilość hydroksyproliny w oryginalnej próbce.
- Podzielić przez 0,137, aby obliczyć ilość kolagenu (zakładając, że kolagen zawiera 13,7% hydroksyproliny)20).
UWAGA: Zawartość hydroksyproliny w kolagenie ssaków różni się nieznacznie w zależności od tkanki i gatunku; na przykład ścięgno Achillesa świni i owcy zawiera odpowiednio 13,5 i 13,7% (masa hydroksyproliny/masa suchej tkanki)21W tym przypadku należy przyjąć wartość 13,7% do oszacowania procentowej zawartości hydroksyproliny w kolagenie, co służy do obliczenia zawartości kolagenu w próbce tkanki przy użyciu następującego równania:
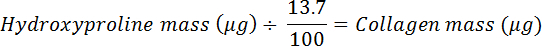
- Podziel przez masę suchą, aby obliczyć frakcję kolagenu, a następnie przelicz wynik na procenty.
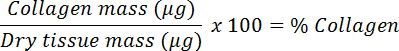
8. Ilościowe oznaczanie punktów końcowych molekularnych
UWAGA: Oprócz głównych wyników badania wytrzymałości na rozciąganie oraz zawartości kolagenu, w celu uzyskania wglądu w mechanizmy działania można mierzyć punkty końcowe na poziomie molekularnym w tkance 2D lub 3D. Do określenia molekularnych punktów końcowych można wykorzystać analizy biologiczne (kontekst znajduje się w poniższej sekcji: Wpływ środowiska surowiczego po wysiłku fizycznym na funkcję więzadeł in vitro).
- W przypadku tkanki 3D:
- Przygotować konstrukty zgodnie z powyższym krokiem 5.
- Po potraktowaniu lub interwencji w konstrukcie, zamrozić konstrukty gwałtownie w ciekłym azocie.
- Używając moździerza i tłuczka chłodzonych na suchem lodzie, rozetrzeć konstrukty na proszek. Kontynuować od kroku 8.4/5).
- W przypadku tkanki 2D:
- Hodować ludzkie fibroblasty ACL do osiągnięcia konfluencji w monowarstwie w płytkach sześciodołkowych zawierających DMEM.
- Odssać DMEM i dodać pożywkę z substancją testową zgodnie ze strategią eksperymentalną (np. w badaniach przebiegu czasowego lub odpowiedzi na dawkę).
- Odssać pożywkę z substancją testową i przemyć komórki PBS.
- Zebrać komórki poprzez zeskrobnięcie, używając odpowiedniego buforu lub odczynnika do ekstrakcji (patrz dalej).
- Analiza ekspresji białek: Użyć buforu do ekstrakcji cytozolowej (np. 250 mM sacharozy, 50 mM Tris pH 7.4, 5 mM MgCl2 oraz koktajlu inhibitorów proteaz i fosfataz) w celu otrzymania lizatów białkowych. Wykonać pomiar stężenia białka i kontynuować analizę zgodnie ze standardowymi procedurami western blot.
- Analiza ekspresji genów: Wyizolować całkowity RNA, używając 50 µL odczynnika do izolacji RNA zgodnie z instrukcjami producenta, aby uzyskać wysokiej jakości RNA. Wykonać odwrotną transkrypcję oraz analizę ilościową real-time PCR zgodnie ze standardowymi procedurami.
- Izolacja DNA: Wyizolować i określić ilość genomowego DNA, używając odczynnika do izolacji DNA zgodnie z instrukcjami producenta. Określić stężenie DNA za pomocą spektrofotometru, mierząc absorbancję próbki przy 260 nm.
Wyniki
Przegląd procesu tworzenia zmodyfikowanego więzadła oraz interwencji eksperymentalnej
Rysunek 1 przedstawia schemat powstawania inżynieryjnych więzadeł. Cement brushytowy, materiał zastępczy dla kości22, jest przygotowywany poprzez połączenie roztworu kwasu ortofosforowego i kwasu cytrynowego z β-fosforanem trójwapniowym w studzienkach cylindrycznych. Alternatywnie, w przypadku, gdy nie dokonuje się bezpośredniego pomiaru funkcji mechanicznych tkanek, w procesie tworzenia tkanki jako kotwic można zastosować jedwabne nici chirurgiczne 3-0. Są one mocowane w odstępach 12 mm w naczyniach 35 mm pokrytych silikonem i sterylizowane poprzez namaczanie w 70% etanolu. Fibroblasty są izolowane z pozostałości więzadła krzyżowego przedniego uzyskanych podczas operacji rekonstrukcji ACL. Po ekspansji 2,5 x 10⁵ komórek jest zamykanych w żelu fibrynowym utworzonym w naczyniu z kotwicami z cementu brushytowego. Po uformowaniu konstrukty więzadłowe mogą być badane pod kątem zmian właściwości mechanicznych, zawartości kolagenu, proliferacji komórek, ekspresji genów, poziomu białek oraz morfologii tkanki.
W trakcie hodowli komórki kurczą żel fibrynowy i tworzą liniową tkankę pomiędzy dwoma punktami zakotwiczenia (Rysunek 2A). Po 1-2 dniach hodowli komórki przylegają do żelu fibrynowego, wysuwają wypustki komórkowe i zaczynają wywierać siły trakcyjne (Rysunek 2B). W miarę jak żel fibrynowy jest kurczony przez siły trakcyjne i rozkładany przez enzymy komórkowe, pomiędzy dwoma punktami zakotwiczenia powstaje napięcie, a komórki ustawiają się równolegle do tej osi (Rysunek 2B) i zaczynają odkładać kolagen. Po 4-5 dniach konstrukty kurczą się wokół punktów zakotwiczenia, tworząc liniową tkankę cylindryczną (Rysunek 2A); w tym momencie do układu można zastosować bodźce zewnętrzne (interwencja w tym czasie pozwala uniknąć zakłócenia procesu formowania się tkanki liniowej). Interwencje mogą polegać na uzupełnianiu pożywki hodowlanej surowicą ludzką lub zwierzęcą po danej interwencji, egzogennymi cytokinami i czynnikami wzrostu, stosowaniu stymulacji mechanicznej lub zmianie innych czynników środowiskowych, takich jak napięcie tlenowe. Stosując pożywkę wzrostową (DMEM z 10% FBS i 100 U/mL penicyliny) uzupełnioną o 200 µM kwasu askorbinowego, 50 µM L-proliny oraz 5 ng/mL TGF-β1, ustalono, że proliferacja komórek trwa przez cały 2-tygodniowy okres hodowli (Rysunek 2C), a mikroskopia świetlna wykazuje obecność gęstej tkanki zawierającej silnie uporządkowane komórki w 14. dniu hodowli (Rysunek 2B).
Ocena zaprojektowanych więzadeł
Po zakończeniu okresu hodowli inżynieryjnie wytworzone więzadła można ocenić na różne sposoby. Główną zaletą tego systemu jest możliwość określenia zmian funkcjonalnych tkanki za pomocą testów mechanicznych, co jest kluczową oceną, biorąc pod uwagę mechaniczną rolę naturalnego więzadła. Do pomiaru właściwości mechanicznych, w tym obciążenia do zerwania, maksymalnej wytrzymałości na rozciąganie oraz modułu Younga, można wykorzystać jednowymiarowe badanie rozciągania. Właściwości lepkosprężyste można również zmierzyć za pomocą testów relaksacji naprężeń i pełzania. Rycina 3A przedstawia inżynieryjnie wytworzone więzadło zamocowane w uchwytach z odwracaną formą w dedykowanym jednowymiarowym testerze rozciągania. Prawy uchwyt jest połączony z przetwornikiem siły, aby mierzyć obciążenie więzadła w miarę rozciągania tkanki aż do zerwania. Rycina 3B przedstawia reprezentatywny wykres naprężenie-odkształcenie dla testu do zerwania. Po badaniu mechanicznym te same konstrukty można wysuszyć i poddać analizie na obecność hydroksyproliny23 w celu oceny całkowitej zawartości kolagenu, a także przeprowadzić inne analizy biochemiczne. Przy zastosowaniu odpowiedniej liczby dodatkowych próbek dla każdego wariantu można przeprowadzić dokładne badanie interwencji eksperymentalnej, w tym jej wpływu na proliferację komórek, ekspresję genów i białek oraz morfologię histologiczną. Chociaż 14 dni jest typowym punktem końcowym w naszych badaniach, właściwości mechaniczne i zawartość kolagenu w inżynieryjnie wytworzonych więzadłach nadal poprawiają się przez 28 dni hodowli, co pokazano na Rycynie 3C, a tkanki te mogą przetrwać w hodowli przez co najmniej 3 miesiące24.
Zmienność między dawcami jest istotnym czynnikiem w kontekście powtarzalności eksperymentalnej. Rysunek 4 przedstawia reprezentatywny eksperyment opisany przez Lee et al.25, w którym porównano 7 różnych dawców ACL (n = 3 mężczyzn i n = 4 kobiet), wykazując typowe właściwości rozciągania oraz zawartość kolagenu po 2-tygodniowej hodowli w wcześniej opisanych uzupełnionych mediach wzrostowych. Przy zastosowaniu komórek z podobnych zbiorów ACL, uwzględniając wiek dawcy, czas od urazu, płeć itp., wytworzone więzadła wykazują niską zmienność między dawcami oraz podobne charakterystyki u dawców płci męskiej i żeńskiej, z wyjątkiem różnicy w frakcji kolagenu. W wyżej wspomnianym badaniu wytworzone więzadła posłużyły jako model in vitro do zbadania przyczyn znacznie większego ryzyka urazu ACL u kobiet niż u mężczyzn; wykazano, że fibroblasty ACL wyizolowane od dawców płci żeńskiej nie tworzą z natury słabszych i uboższych w kolagen wytworzonych więzadeł25.
Wpływ środowiska surowiczego po wysiłku fizycznym na funkcję więzadła in vitro
Wcześniej wykazaliśmy możliwość wykorzystania zaprojektowanych więządek do badania procesów fizjologicznych1,25. W poniższym reprezentatywnym eksperymencie opisanym przez West i wsp.1, określiliśmy biochemiczne skutki wysiłku fizycznego dla funkcji więządek oraz przedstawiamy tutaj zastosowaną metodologię i wyniki. Utworzyliśmy zaprojektowane więzadka z wykorzystaniem ludzkich komórek ACL, a w 7. dniu hodowli zastosowaliśmy interwencję polegającą na użyciu pożywki warunkowanej ludzką surowicą pobraną przed lub po wysiłku fizycznym. W skrócie, zrekrutowaliśmy zdrowych młodych mężczyzn i pobraliśmy próbki krwi przed i po jednorazowym wysiłku oporowym, który zwiększa poziom krążących hormonów i cytokin, w tym ludzkiego hormonu wzrostu (GH). Ludzką surowicę wyizolowano z próbek krwi pobranych przed i po wysiłku i zastosowano ją zamiast płodowej surowicy bydlęcej w pożywkach hodowlanych w drugim tygodniu hodowli zaprojektowanych więządek (Rysunek 5A). Próbki surowicy przed i po wysiłku przeanalizowano za pomocą testu ELISA pod kątem zmian w poziomach GH oraz insulinopodobnego czynnika wzrostu 1 (IGF-1), którego stężenie może ulec zmianie pod wpływem wysiłku (Rysunek 5B). Informacje te posłużyły do skorelowania wpływu surowicy na zaprojektowane więzadka ze zmianami w surowicy w odpowiedzi na wysiłek. Po 14-dniowym okresie hodowli konstrukcje więzadłowe oceniono za pomocą testów mechanicznych oraz oznaczenia poziomu hydroksyproliny w celu określenia zawartości kolagenu; wykazano istotny wzrost zarówno maksymalnego obciążenia rozciągającego, jak i zawartości kolagenu w odpowiedzi na surowicę pobraną po wysiłku. W celu oceny, czy efekt ten był związany z indukowanym wysiłkiem wydzielaniem GH lub IGF-1, w osobnym eksperymencie utworzono zaprojektowane więzadka i poddano je działaniu różnych dawek ludzkiego rekombinowanego GH lub IGF-1. Co ciekawe, podczas gdy poziom GH w surowicy wzrósł we krwi (Rysunek 5B-i), progresywne zwiększanie stężenia rekombinowanego GH w pożywkach hodowlanych nie zwiększyło zawartości kolagenu (Rysunek 5D-i) ani właściwości mechanicznych (dane niepokazane) w zaprojektowanych więzadkach. Przeciwnie, poziomy IGF-1 w surowicy nie wzrosły po wysiłku, ale eksperyment z zależnością dawka-odpowiedź wykazał, że zwiększenie stężeń w pożywkach hodowlanych poprawiło zawartość kolagenu w konstrukcjach więzadłowych (Rysunek 4D-ii). Zatem, choć wysiłek fizyczny doprowadził do wyraźnego wzrostu poziomu GH po wysiłku, eksperyment z zależnością dawka-odpowiedź z użyciem rhGH budzi wątpliwości co do tego, czy GH jest bezpośrednio odpowiedzialne za poprawę fenotypową zaprojektowanych więządek (przynajmniej sama izoforma 22 kDa nie wydaje się być za to odpowiedzialna). Z kolei, mimo że poziom IGF-1 w surowicy nie uległ zmianie 15 min po wysiłku, testowanie rhIGF-1 w szerokim zakresie stężeń wykazało, że IGF-1 jest w stanie poprawić zawartość kolagenu; należy jednak zauważyć, że zwiększanie stężeń rhIGF-1 w zakresie odpowiadającym szacowanym poziomom fizjologicznym nie zwiększyło istotnie zawartości kolagenu. Tym samym wyjątkowe środowisko surowicy po wysiłku fizycznym było istotne dla poprawy parametrów mechanicznych i zawartości kolagenu w zaprojektowanych więzadkach.
W opisanym badaniu1 objętość surowicy eksperymentalnej była ograniczona ze względów etycznych, dlatego w celu dalszego zbadania molekularnych mechanizmów odpowiedzialnych za zaobserwowany wzrost poziomu kolagenu zastosowano krótkotrwałe bioanalizy 2D, które wymagały mniejszej ilości surowicy. Fibroblasty ACL hodowano do stanu konfluencji w płytkach 6-dołkowych, a następnie inkubowano przez 1 godzinę z surowicą spoczynkową lub po wysiłku. Wyniki zestawiono z odpowiedziami dawkowymi na rekombinowany GH, IGF-1, TGF-β1 oraz określono aktywację celów w szlakach sygnałowych PI3K/mTORC1, ERK1/2 i Smad. W obecności surowicy po wysiłku szlaki PI3K/mTORC1 oraz ERK1/2 wykazały silniejszą aktywację, ocenianą odpowiednio poprzez fosforylację S6K (Rysunek 5D-i) oraz ERK1/2 (Rysunek 5D-ii). W porównaniu z odpowiedziami dawkowymi na hormony i cytokiny, choć GH wywarł niewielki pozytywny wpływ na sygnalizację mTOR (Rysunek 5D-i), a IGF-1 wykazał pozytywny efekt przy najniższej dawce, trzy rodzaje terapii (GH, IGF-1 i TGF-β1) nie wyjaśniały wzrostu sygnalizacji PI3K/mTORC1 i ERK1/2. Podsumowując, dane z naszego inżynieryjnego modelu więzadła 3D oraz bioanaliz 2D sugerują, że środowisko surowicy po wysiłku jest w stanie poprawić funkcję i zawartość kolagenu w inżynieryjnym więzadle poprzez aktywację szlaków PI3K/mTORC1 i ERK1/2.
Podsumowując, wykorzystując model inżynierowanego więzadła w połączeniu z surowicą kondycjonowaną wysiłkiem fizycznym, byliśmy w stanie: i) zbadać wpływ środowiska surowiczego po wysiłku na funkcję oraz kolagen inżynierowanego więzadła, ii) skorelować zmiany fenotypu więzadła ze zmianami stężenia hormonów w surowicy, w celu ustalenia, które zmiany w surowicy doprowadziły do zmian w inżynierowanych więzadłach, oraz iii) rozszerzyć zakres prac, wykorzystując bioanalizy 2D do badania celów molekularnych biochemicznego środowiska surowiczego, aby określić mechanizmy molekularne aktywowane przez surowicę po wysiłku, które prowadzą do poprawy funkcji więzadła.
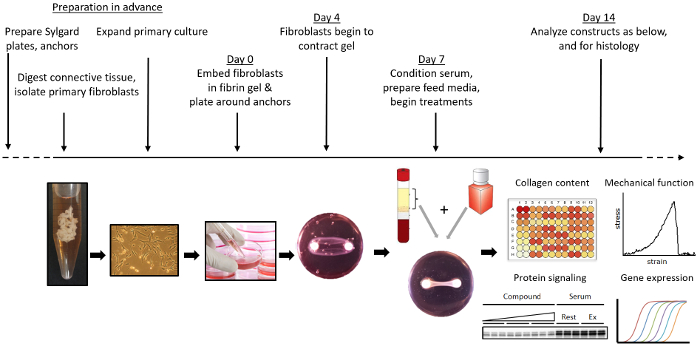
Rysunek 1: Przegląd procesu tworzenia i zastosowania konstruowanych więzadeł. Kotwice z cementu brushytowego są produkowane i mocowane do płyt pokrytych silikonem. Pierwotne fibroblasty są izolowane i namnażane z pozostałości ACL. Konstruowane więzadła powstają poprzez enkapsulację fibroblastów w żelu fibrynowym wokół dwóch kotwic z cementu brushytowego. Konstruowane więzadła są hodowane i poddawane wybranym chemicznym lub mechanicznym stymulacjom (np. za pomocą bioreaktora). Po osiągnięciu pożądanego punktu końcowego konstruowane więzadła mogą zostać pobrane i poddane ocenie pod kątem właściwości mechanicznych, ekspresji genów, zawartości kolagenu, ekspresji białek oraz analizy histologicznej. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
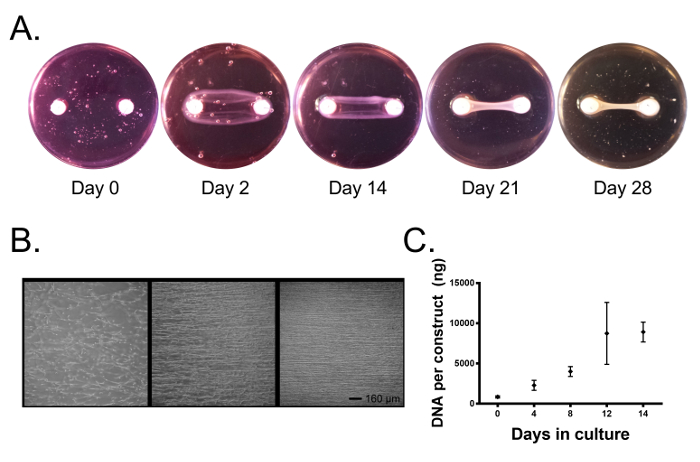
Rycina 2. Pierwotne fibroblasty więzadłowe tworzą opartą na fibrynie inżynieryjną strukturę więzadła łączącą kość z kością, rozpiętą między dwoma kotwicami z cementu brushitowego. (A) W czasie fibroblasty kurczą żel fibrynowy wokół kotwic z cementu brushitowego, tworząc tkankę liniową. (B) W ciągu pierwszych trzech dni komórki przytwierdzają się do żelu fibrynowego i wywierają siły trakcyjne, ustawiając się wzdłuż osi podłużnej konstrukcji. W ciągu 14 dni komórki tworzą silnie zorientowaną tkankę. Pasek skali = 160 µm. (C) Zawartość DNA w inżynieryjnych więzadłach stale wzrasta w ciągu 14 dni hodowli w miarę proliferacji komórek. Dane przedstawiono jako średnia ± SD przy n = 3-4 konstrukcjach na grupę. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
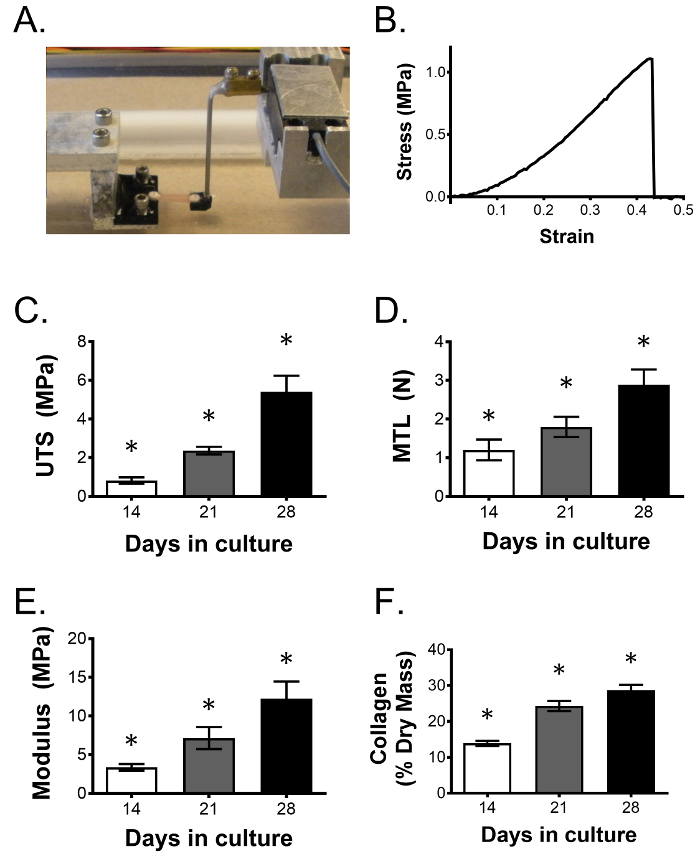
Rycina 3: Właściwości mechaniczne i zawartość kolagenu w inżynieryjnych więzadłach poprawiają się w czasie. (A) Konstrukcje więzadłowe są poddawane jednowymiarowej próbie rozciągania w celu określenia wpływu danej interwencji na funkcję więzadła. Jak pokazano, dwa odlewane w odwróconej formie, wydrukowane w technologii 3D uchwyty trzymają wzajemnie dopasowane kotwice, które są połączone inżynieryjną tkanką ścięgnistą. Kotwice są sprzężone z silnikiem krokowym i przetwornikiem siły w celu generowania krzywych naprężenie/odkształcenie badanej tkanki, co pozwala na wyznaczenie właściwości mechanicznych. (B) Reprezentatywna krzywa naprężenie-odkształcenie inżynieryjnego więzadła rozciągniętego do zerwania. W ciągu 28 dni (C) graniczna wytrzymałość na rozciąganie (UTS), (D) maksymalne obciążenie rozciągające (MTL), (E) moduł Younga oraz (F) frakcja kolagenu wykazują dalszą poprawę. Dane przedstawiono jako średnia ±SD przy n = 5 konstrukcji na grupę. * oznacza istotną różnicę w stosunku do wszystkich pozostałych grup. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
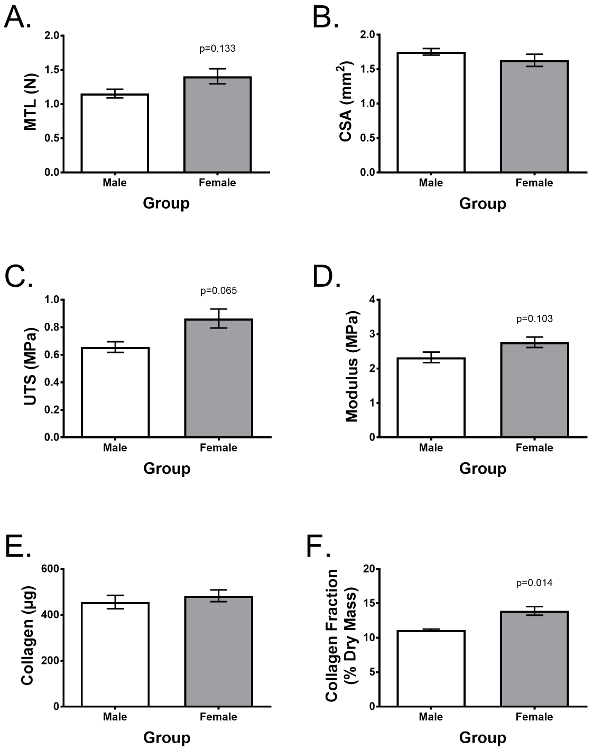
Rycina 4: Inżynieryjne więzadła można ocenić pod kątem funkcjonalności i zawartości biochemicznej, co wykazuje niską zmienność między dawcami. Inżynieryjne więzadła utworzono z 7 różnych dawców (n = 3 mężczyzn, n = 4 kobiet). Po 2 tygodniach hodowli oceniono różnice w (A) maksymalnym obciążeniu rozciągającym, (B) wytrzymałości na rozciąganie (UTS), (C) module Younga, (D) powierzchni przekroju poprzecznego (CSA), (E) całkowitej zawartości kolagenu na konstrukt oraz (F) ułamku kolagenu w masie suchej. Dane przedstawiono jako średnia ± SD, a istotność statystyczną określono za pomocą testu t Studenta. * oznacza istotną różnicę w stosunku do innych grup (p <0.05). Rycina zaadaptowana z Lee et al.25 Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
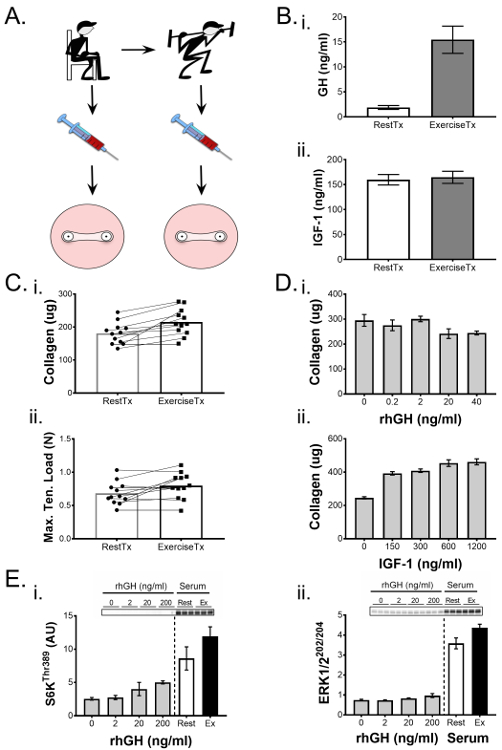
Rysunek 5. Inżynieryjne więzadła wykazują zmiany mechaniczne i biochemiczne w odpowiedzi na interwencje biologiczne. (A) Surowicę wyizolowano z krwi pobranej od badanych przed (RestTx) i po wysiłku fizycznym (ExTx), a następnie wykorzystano ją do traktowania inżynieryjnych więzadeł podczas drugiego tygodnia hodowli. (B) Poziomy (i) hormonu wzrostu człowieka (GH) oraz (ii) insulinopodobnego czynnika wzrostu (IGF)-1 w surowicach z grupy spoczynku i grupy wysiłku określono za pomocą testu ELISA. (C) Inżynieryjne więzadła traktowane ExTx wykazały poprawę (i) zawartości kolagenu oraz (ii) maksymalnego obciążenia rozciągającego. Istotność statystyczną porównań parzystych (RestTx i ExTx) analizowano za pomocą testu t przy poziomie istotności p <0,05. (D) Zależność dawka-odpowiedź dla (i) GH i (ii) IGF-1 została wykorzystana do określenia możliwego wpływu tych czynników na zmiany w zawartości kolagenu wywołane przez ExTx. E) Dwuwymiarowe bioanalizy wykorzystano do porównania efektów zwiększających dawek GH, RestTx i ExTx na cele sygnalizacji molekularnej, takie jak fosforylacja (i) S6KThr389 oraz (ii) ERK1/2Thr202/Tyr204. Porównanie statystyczne więcej niż dwóch grup eksperymentalnych przeprowadzono za pomocą analizy ANOVA i testu Tukey's HSD. Dane przedstawiono jako średnia ± SD. * oznacza istotną różnicę w stosunku do kontroli (p <0,05), a § oznacza istotną różnicę w stosunku do 150 ng/mL i 300 ng/mL IGF-1. Rysunek zaadaptowany z West et al.1 Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dyskusja
Niniejszy manuskrypt opisuje model tkanki więzadła, który jest użyteczną platformą eksperymentalną dla badaczy o szerokim spektrum tematów badawczych, od rozwoju tkanek po pytania translacyjne/kliniczne. Opisany tutaj model więzadłowy oparty jest na wszechstronnym protokole, który można dostosować w różnych momentach całego przepływu pracy (rysunek 1 i sekcja dyskusji). Co więcej, z natury redukcjonistyczny charakter środowiska in vitro może być przybliżony do sfery fizjologicznej poprzez uzupełnienie pożywek paszowych kondycjonowaną surowicą ludzką lub zwierzęcą.
Konstrukty mogą być tworzone przy użyciu fibroblastów z różnych źródeł
Podczas gdy przedstawiona tutaj metodologia i reprezentatywne wyniki opierają się na użyciu pierwotnych fibroblastów ACL, protokół izolacji komórek można dostosować do zbierania innych typów pierwotnych fibroblastów. Jak opisano na rycinie 4, zmodyfikowane więzadła utworzone z komórek pierwotnych wyizolowanych od młodych ludzkich dawców wykazują niską zmienność dawcy. Komórki pierwotne są ograniczone przez początkową izolację i ograniczenie przejścia; Wykorzystanie linii komórkowych może poprawić odtwarzalność eksperymentów. Stosowanie innych typów komórek może wymagać modyfikacji pożywek do hodowli komórkowych i preparatu żelu fibrynowego. Na przykład zaobserwowaliśmy, że ludzkie mezenchymalne komórki macierzyste (MSC) nie są w stanie tworzyć liniowych tkanek między kotwicami cementu szczotkitowego w ciągu 2 tygodni, podczas gdy fibroblasty ścięgien zginaczy palców koni górnych, komórki zrębu szpiku kostnego koni, fibroblasty ścięgien zarodkowych piskląt i mysie C3H10T1/2 MSC szybko kurczą się i trawią żel fibrynowy, tworząc tkankę liniową (niepublikowane obserwacje). Kontrast ten może być konsekwencją różnic w kurczliwości komórek, proliferacji i produkcji enzymów fibrynolitycznych.
Zastosowanie stymulacji chemicznej i mechanicznej
W opisanej tu metodzie tkanka na bazie fibryny tworzy się wokół kotew z cementu szczotkowego, co pozwala na zastosowanie stymulacji mechanicznej za pomocą bioreaktora rozciągającego11, a także na próbę rozciągania w punkcie końcowym. Obecność granicy między cementem szczotkowym a tkanką miękką (przyczepy ścięgniste) również stanowi okazję do dalszych badań i ulepszeń22,26 (patrz sekcja Zastosowania kliniczne poniżej). W tym środowisku in vitro można łatwiej zidentyfikować wpływ czynników chemicznych i mechanicznych; Przykład tego pokazano na rycinie 5, gdzie wpływ środowiska surowicy po wysiłku został oddzielony od bodźców mechanicznych związanych z wysiłkiem. Badania pilotażowe mogą być konieczne w celu określenia ram czasowych interwencji eksperymentalnych, składu leczenia i odpowiednich punktów końcowych, aby oczekiwać obserwowalnej zmiany. Na przykład w badaniu1 surowicy po wysiłku długość eksperymentalnego leczenia była ograniczona przez dostarczanie surowicy używanej do uzupełniania pożywki, z której konstrukty podawano co drugi dzień. Ponadto, w drugim tygodniu hodowli, pożywki hodowlane uzupełniono surowicą spoczynkową lub powysiłkową z kwasem askorbinowym i L-proliną, utrzymując się, podczas gdy TGF-β1 został usunięty. TGF-β1 jest znanym pro-zwłóknieniowym czynnikiem wzrostu, który zwiększa się w surowicy po wysiłku27. Dlatego, aby uniknąć zaciemnienia związanych z TGF-β1 efektów surowicy powysiłkowej, cytokina ta nie była utrzymywana w pożywkach hodowlanych.
Ten zmodyfikowany model więzadła może być również używany do testowania wpływu rozciągania mechanicznego. Poprzez inżynierię odwróconych modelowanych uchwytów do przytrzymywania końców kotew z cementu szczotkowego (podobnie jak jednoosiowy tester rozciągania przedstawiony na rysunku 1), bioreaktory rozciągane można zaprojektować tak, aby pomieścić więzadła inżynieryjne. Nasze laboratorium wcześniej wykorzystywało ten model do badania odpowiedzi sygnalizacji molekularnej zmodyfikowanych więzadeł na jednoosiowe rozciąganie w specjalnie wykonanym bioreaktorze11 , co zapewni lepsze zrozumienie racjonalnego projektowania paradygmatu rozciągania in vitro , a nawet, potencjalnie, zastosowań rozciągliwych/aktywności/terapeutycznych in vivo.
Ocena więzadeł inżynieryjnych
Podobnie jak w przypadku tradycyjnej hodowli jednowarstwowej, konstrukty 3D mogą być testowane pod kątem ekspresji genów/białek; ponadto ich morfologia 3D daje również możliwość oceny zmian funkcjonalnych i morfologicznych, a konstrukty mogą być utrzymywane w kulturze do długoterminowych badań (ryc. 3). Chociaż zmodyfikowane więzadła nie są równoważne z natywnymi, dojrzałymi więzadłami, są podobne do rozwijających się ścięgien / więzadeł i zachowują się podobnie do tkanki natywnej w odpowiedzi na składniki odżywcze26, czynniki wzrostu10, hormony25 i ćwiczenia11,28. Tak więc, chociaż należy zachować ostrożność przed dokonaniem szerokich uogólnień na podstawie jakiegokolwiek modelu in vitro, wyniki testów konstrukcji więzadeł mogą ujawnić lub poinformować o określonym mechanizmie fizjologicznym, który w przeciwnym razie mógłby być niemożliwy do zbadania in vivo.
Uzupełniające podłoże paszowe z kondycjonowaną surowicą dla elastycznego i dynamicznego modelu o szerokim zastosowaniu
Metabolom ludzkiej surowicy to środowisko ~ 4,500 związków, w tym między innymi glikoprotein, lipoproteiny, pochodne lipidów, substraty energetyczne, metabolity, witaminy, enzymy, hormony, neuroprzekaźniki i mnóstwo bloków budulcowych / półproduktów. 29 Dalsza kontrola metabolomu surowicy ludzkiej według klas związków29 ujawnia dodatkowe korzyści płynące z włączenia surowicy doświadczalnej do doświadczeń in vitro. Oznacza to, że większość z ~4500 związków w surowicy jest hydrofobowa lub pochodząca z lipidów, co podkreśla znaczenie białek wiążących do transportu/rozpuszczania. Wynika z tego, że eksperymentalne podsumowanie endogennej dynamiki transportu związków, a co za tym idzie biodostępności i interakcji związek-cel, byłoby prawie niemożliwe. Tak więc surowica eksperymentalna jest szczególnie skuteczna w badaniu związków, o których wiadomo, że zależą od cząsteczek pomocniczych do rozpuszczania, transportu, wiązania celu i mechanizmu działania.
Nasze laboratorium od dawna interesuje się korzyściami zdrowotnymi płynącymi z ćwiczeń. Ćwiczenia poprawiają funkcjonowanie komórek i narządów w różnych tkankach w całym ciele12, efekt, który można przypisać różnym czynnikom (np. IL-613, IL-1514, Meteoryny15, egzosomy16,17), które są uwalniane do krążenia ogólnoustrojowego. Środowisko biochemiczne po wysiłku fizycznym odzwierciedla czynniki uwalniane zarówno w wyniku skurczu hormonów reagujących na wysiłek mięśni szkieletowych, jak i czynników, które są uwalniane w wyniku stymulacji gruczołów wydzielniczych przez współczulny układ nerwowy (np. kortyzol i katecholaminy z nadnerczy18 oraz hormon wzrostu z przedniej części przysadki mózgowej19). Niedawno użyliśmy modelu surowicy przed i po wysiłku, aby zbadać wpływ środowiska biochemicznego wywołanego wysiłkiem fizycznym na zmodyfikowane tkanki. 1 Chociaż pozostaje wiele ważnych pytań badawczych związanych z ćwiczeniami, model nie jest w żaden sposób ograniczony. Na przykład surowicę można uzyskać ze źródeł zwierzęcych lub ludzkich, po interwencjach dietetycznych lub farmakologicznych, lub z różnych grup wiekowych lub populacji klinicznych30. W ten sposób egzogenne lub endogenne związki będące przedmiotem zainteresowania będą obecne w surowicy i pożywkach zabiegowych, w ilościach biodostępnych i będą wchodzić w interakcje z tkanką docelową w porozumieniu ze środowiskiem endogennym (tj. w bardziej fizjologicznym kontekście). Podejście to jest dynamiczne, ponieważ istnieje duże prawdopodobieństwo, że dana interwencja wywrze efekt wielonarządowy (i wieloskładnikowy), a tym samym środowisko fizjologiczne będzie współmodyfikowane. Chociaż podejście to wiąże się z pewnymi wyzwaniami, ponieważ wiele systemowych zmiennych biochemicznych jest zmienianych jednocześnie, jest to podejście, które może pomóc przezwyciężyć wady czysto redukcjonistycznej metodologii eksperymentalnej31,32. Podsumowując, wdrożenie kondycjonowanej surowicy wraz z tkanką zmodyfikowaną tkankowo (biomimetycznie in vitro) może być wykorzystane jako narzędzie do badań klinicznych w zakresie fizjologii, odżywiania i badań klinicznych.
Zastosowań klinicznych jest wiele
Przedstawiony tutaj model inżynierii tkankowej może być wykorzystany do zbadania anatomicznych i klinicznych pytań badawczych, których tradycyjne modele in vitro nie są w stanie rozwiązać. Więzadło lub ścięgno in vivo zawiera obszar przejściowy tkanki miękkiej do twardej zwany przyczepem ścięgnistym. Przyczep ścięgnisty, który jest podatny na urazy związane ze stresem mechanicznym33, można badać w przekroju za pomocą technik mikroskopii histochemicznej i elektronowej 22,26. Ten unikalny interfejs jest podwójnie ważny dla osób o niskiej lub ograniczonej mobilności, ponieważ brak aktywności fizycznej upośledza zdolność tkanki łącznej do przenoszenia obciążenia do obszarów o niskiej lub wysokiej podatności34, co ostatecznie prowadzi do ogólnego spadku podatności tkanek i zwiększonego ryzyka urazów.
Nasze laboratorium wykorzystało ostatnio ten model inżynierii tkankowej25 do modelowania innej populacji, sportsmenek, które są narażone na urazy tkanki łącznej: częstość występowania uszkodzeń ACL jest około pięciokrotnie większa niż u mężczyzn35. Potencjalne mechanizmy leżące u podstaw tej rozbieżności w urazach związanych z płcią zbadano poprzez leczenie konstruktów więzadeł fizjologicznymi stężeniami żeńskiego hormonu płciowego, estrogenu, w stężeniach naśladujących etapy cyklu miesiączkowego. Co ciekawe, wysokie stężenia estrogenu hamowały ekspresję genów i aktywność oksydazy lizylowej, głównego enzymu odpowiedzialnego za tworzenie wiązań krzyżowych lizyna-lizyna w macierzy kolagenowej więzadeł i ścięgien. Co ważne, 48 godzin wysokiego estrogenu (w celu symulacji fazy folikularnej) zmniejszyło sztywność konstrukcji więzadeł bez zmiany gęstości kolagenu w konstruktach. Z fizjologicznego punktu widzenia sugeruje to, że wzrost wiotkości więzadeł u kobiet może być spowodowany, przynajmniej częściowo, zmniejszonym tworzeniem usieciowania. Z perspektywy eksperymentalnej odkrycia te25 podkreślają użyteczność modelu konstrukcji 3D, który pozwolił na zbadanie funkcjonalnej aktywności sieciowania. Z klinicznego punktu widzenia model ten może być teraz wykorzystany do szybkiego badania przesiewowego pod kątem interwencji, które mogą zapobiec negatywnym skutkom estrogenu na funkcję więzadeł.
Uwagi końcowe
W tym miejscu przedstawiliśmy szczegółową metodykę tworzenia więzadeł inżynieryjnych i ich użyteczność jako model tkankowy 3D in vitro . Model można w dużym stopniu dostosować do szerokiego zakresu celów, zapewniając elastyczność w zakresie typu komórki, interwencji i miar wyników. Uzupełnienie pożywek paszowych kondycjonowaną surowicą dodaje kontekst fizjologiczny, którego nie można osiągnąć w tradycyjnym środowisku in vitro , poprawiając modelowanie fizjologii in vivo . Krótko mówiąc, uważamy, że jest to model o szerokim zastosowaniu, który może mieć ekscytujące implikacje dla rozwoju zarówno dziedzin fizjologii, jak i inżynierii tkankowej.
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnych interesów finansowych.
Podziękowania
Ta praca była wspierana przez stypendium podoktorskie NSERC (DWDW), stypendium Fundacji ARCS (AL) oraz grant UC Davis College of Biological Sciences (KB).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Austerlitz Szpilki do owadów, stal nierdzewna minutien, rozmiar 0,20 | Entomoravia | N/A | Do kotew cementowych brushite |
| i beta-fosforanu trójwapniowego | Plasma Biotal Ltd (Derbyshire, Wielka Brytania) | Nie dotyczy | Do kotew cementowych szczotkitowych |
| Kwas o-fosforowy, 85% (w/w) | EMD Millipore | PX0995 | Do kotew cementowych |
| brushite Kwas cytrynowy | Sigma-Aldrich | 251275-500g | Do kotew cementowych |
| szczotkowych Falcon 35 mm Naczynia do hodowli tkankowych | Fisher Scientific | 08-772A | Do płyt pokrytych silikonem |
| Zestaw elastomerów silikonowych Sylgard 184 | Ellsworth Adhesives | 4019862 | Do płyt pokrytych silikonem |
| 1x sól fizjologiczna buforowana fosforanami (PBS) | Fisher Scientific | SH3002802 | Do izolacji i ekspansji komórek |
| 100x antybiotyk/ roztwór przeciwgrzybiczy | VWR | 45000-616 | Do izolacji komórek |
| Kolagenaza typu II | Thermo Fisher Scientific | 17101015 | Do izolacji komórek |
| 100x roztwór penicyliny/streptomycyny | Thermo Fisher Scientific | 15140122 | Do izolacji komórek |
| Steriflip-GP, 0,22 &mikro; m pore, polieterosulfon, napromieniowany | promieniami gamma EMD Millipore | SCGP00525 | Do sterylizacji odczynnikami |
| DMEM wysoka glukoza z pirogronianem sodu i L-glutaminą | VWR | 10-013-CV | Do hodowli komórkowych i tkankowych |
| Płodowa surowica bydlęca | Biosurowica | FBS2000 | Składnik pożywki do trawienia tkanek i pożywki wzrostowej |
| Penicylina G Sól potasowa | MP Biomedicals | 0219453680 - 100 MU | Składnik pożywki wzrostowej. Rozpuścić w wodzie do 100 000 U/ml, wysterylizować filtrem, porcjować i przechowywać w temperaturze -20 stopni Celsjusza. |
| Polistyrenowe szalki do hodowli tkankowych CELLSTAR (145 mm x 20 mm) | VWR | 82050-598 | Do hodowli komórkowych |
| Błękit trypanowy | Thermo Fisher Scientific | T10282 | Do izolacji komórek |
| Trypsyna-EDTA (0,25%) | Thermo Fisher Scientific | 25200056 | Do hodowli komórkowych. Rozcieńczyć do 0,05% w PBS |
| Dimetylosulfotlenek | Sigma-Aldrich | 472301 | Do pożywek do zamrażania komórek |
| Nalgene Mr. Frosty Kriogeniczny pojemnik do zamrażania | Thermo Fisher Scientific | 5100-0001 | Do zamrażania komórek |
| BD Vacutainer Czerwony plastik 10 ml | Fisher Scientific | 367820 | Do zbierania surowicy |
| ludzkiej Cewniki Bound Tree Insyte Autoguard IV, igła | 22 G x 1 calFisher Scientific | 354221 | Do pobierania surowicy ludzkiej |
| Trombina, pochodzenia bydlęcego | Sigma-Aldrich | T4648-1KU | Do inżynieryjnego tworzenia więzadeł. Rozpuścić w stężeniu 200 j./ml w pożywce DMEM o wysokiej zawartości glukozy. Filtruj przy 0,22 μ m, podwielokrotność i przechowywać w temperaturze -20 stopni Celsjusza. |
| Fibrynogen pochodzenia bydlęcego | Sigma-Aldrich | F8630-5G | Do inżynieryjnego tworzenia więzadeł. Rozpuścić w stężeniu 20 mg/ml w pożywce DMEM o wysokiej zawartości glukozy. Filtruj przy 0,22 μ m, podwielokrotność i przechowywać w temperaturze -20 stopni Celsjusza. |
| Aprotynina z płuc bydlęcych | Sigma-Aldrich | A3428 | Do inżynieryjnego tworzenia więzadeł. Rozpuścić w stężeniu 10 mg/ml w wodzie. Filtruj przy 0,22 μ m, podwielokrotność i przechowywać w temperaturze -20 stopni Celsjusza. |
| Kwas 6-aminoheksanowy | Sigma-Aldrich | 07260-100g | Do tworzenia więzadeł inżynieryjnych. Rozpuścić w 0,1 g/ml w wodzie. Filtruj przy 0,22 μ m, podwielokrotność i przechowywać w temperaturze 4 stopni Celsjusza. |
| Kwas L-askorbinowy, 2-fosforan sól seskwimagnezowa, hydrat | Sigma-Aldrich | A8960-5G | Składnik pożywek paszowych. Rozpuścić w pożywce DMEM o wysokiej zawartości glukozy w stężeniu 50 mM. Filtruj przy 0,22 μ m i przechowywać w temperaturze 4 stopni Celsjusza. |
| L-proline | Sigma-Aldrich | P5607-25G | Składnik pożywek paszowych. Rozpuścić w PBS w stężeniu 50 mM. Filtruj przy 0,22 μ m i przechowywać w temperaturze 4 stopni Celsjusza. |
| Transformujący czynnik wzrostu-β 1 | Peprotech | 100-21 | Składnik pożywek paszowych. Rozpuścić zgodnie z instrukcjami producenta w stężeniu 10 μ g/ml. Podwielokrotność i przechowywać w temperaturze -20 stopni Celsjusza. |
| Stericup-GP, 0,22 &mikro; M, polieterosulfon, 250 mL, sterylizowany radioaktywnie | EMD Millipore | SCGPU02RE | Do sterylizacji odczynnikami |
| Kwas solny | Fisher Scientific | A144-212 | Rozcieńczyć w wodzie do 6 M |
| 4-Dimetyloaminobenzaldehyd | Sigma-Aldrich | 39070-50g | Do oznaczania hydroksyproliny |
| Trójwodny chloramina-T | Sigma-Aldrich | 402869-100g | Do oznaczania |
| hydroksyprolinytrans-4-Hydroxy-L-proline | Sigma-Aldrich | H54409-100g | Do oznaczania hydroksyproliny |
| 1-propanol | Sigma-Aldrich | 279544-1L | Do oznaczania hydroksyproliny |
| Kwas nadchlorowy | Sigma-Aldrich | 311421-250ml | Do oznaczania hydroksyproliny |
| Kwas octowy, lodowaty | EMD Millipore | AX0073-9 | Do testu hydroksyproliny |
| Wodorotlenek | soduFisher Scientific | S318-500 | Do oznaczania hydroksyproliny |
| Toluen, bezwodny | Sigma-Aldrich | 244511-1L | Do oznaczania hydroksyproliny |
| Corning Costar Przezroczyste 96-dołkowe płytki z polistyrenu | Fisher Scientific | 07-200-656 | Do testu hydroksyproliny |
Bibliografia
- West, D. W., et al. The exercise-induced biochemical milieu enhances collagen content and tensile strength of engineered ligaments. J Physiol. 593 (20), 4665-4675 (2015).
- Booth, F. W., Laye, M. J. Lack of adequate appreciation of physical exercise's complexities can pre-empt appropriate design and interpretation in scientific discovery. J Physiol. 587 (Pt 23), 5527-5539 (2009).
- Booth, F. W., Hargreaves, M. Understanding multi-organ pathology from insufficient exercise. J Appl Physiol (1985). 111 (4), 1199-1200 (2011).
- Shearn, J. T., et al. Tendon tissue engineering: progress, challenges, and translation to the clinic. J Musculoskelet Neuronal Interact. 11 (2), 163-173 (2011).
- Liu, C. F., et al. What we should know before using tissue engineering techniques to repair injured tendons: a developmental biology perspective. Tissue Eng Part B Rev. 17 (3), 165-176 (2011).
- Vunjak-Novakovic, G., Altman, G., Horan, R., Kaplan, D. L. Tissue engineering of ligaments. Annu Rev Biomed Eng. 6, 131-156 (2004).
- Bayer, M. L., et al. The initiation of embryonic-like collagen fibrillogenesis by adult human tendon fibroblasts when cultured under tension. Biomaterials. 31 (18), 4889-4897 (2010).
- Guerquin, M. J., et al. Transcription factor EGR1 directs tendon differentiation and promotes tendon repair. J Clin Invest. 123 (8), 3564-3576 (2013).
- Ma, J., et al. Three-dimensional engineered bone-ligament-bone constructs for anterior cruciate ligament replacement. Tissue Eng Part A. 18 (1-2), 103-116 (2012).
- Hagerty, P., et al. The effect of growth factors on both collagen synthesis and tensile strength of engineered human ligaments. Biomaterials. 33 (27), 6355-6361 (2012).
- Paxton, J. Z., Hagerty, P., Andrick, J. J., Baar, K. Optimizing an intermittent stretch paradigm using ERK1/2 phosphorylation results in increased collagen synthesis in engineered ligaments. Tissue Eng Part A. 18 (3-4), 277-284 (2012).
- Safdar, A., et al. Endurance exercise rescues progeroid aging and induces systemic mitochondrial rejuvenation in mtDNA mutator mice. Proc Natl Acad Sci U S A. 108 (10), 4135-4140 (2011).
- Pedersen, B. K., Febbraio, M. A. Muscles, exercise and obesity: skeletal muscle as a secretory organ. Nat Rev Endocrinol. 8 (8), 457-465 (2012).
- Crane, J. D., et al. Exercise-stimulated interleukin-15 is controlled by AMPK and regulates skin metabolism and aging. Aging Cell. 14 (4), 625-634 (2015).
- Rao, R. R., et al. Meteorin-like is a hormone that regulates immune-adipose interactions to increase beige fat thermogenesis. Cell. 157 (6), 1279-1291 (2014).
- Aswad, H., et al. Exosomes participate in the alteration of muscle homeostasis during lipid-induced insulin resistance in mice. Diabetologia. 57 (10), 2155-2164 (2014).
- Safdar, A., Saleem, A., Tarnopolsky, M. A. The potential of endurance exercise-derived exosomes to treat metabolic diseases. Nat Rev Endocrinol. 12 (9), advance online publication 504-517 (2016).
- Maling, H. M., Stern, D. N., Altland, P. D., Highman, B., Brodie, B. B. The physiologic role of the sympathetic nervous system in exercise. J Pharmacol Exp Ther. 154 (1), 35-45 (1966).
- Pritzlaff, C. J., et al. Impact of acute exercise intensity on pulsatile growth hormone release in men. J Appl Physiol (1985). 87 (2), 498-504 (1999).
- Creemers, L. B., Jansen, D. C., van Veen-Reurings, A., van den Bos, T., Everts, V. Microassay for the assessment of low levels of hydroxyproline. Biotechniques. 22 (4), 656-658 (1997).
- Neuman, R. E., Logan, M. A. The determination of hydroxyproline. J Biol Chem. 184 (1), 299-306 (1950).
- Paxton, J. Z., Donnelly, K., Keatch, R. P., Baar, K., Grover, L. M. Factors affecting the longevity and strength in an in vitro model of the bone-ligament interface. Ann Biomed Eng. 38 (6), 2155-2166 (2010).
- Woessner, J. F. Jr The determination of hydroxyproline in tissue and protein samples containing small proportions of this imino acid. Arch Biochem Biophys. 93, 440-447 (1961).
- Paxton, J. Z., Wudebwe, U. N., Wang, A., Woods, D., Grover, L. M. Monitoring sinew contraction during formation of tissue-engineered fibrin-based ligament constructs. Tissue Eng Part A. 18 (15-16), 1596-1607 (2012).
- Lee, C. A., et al. Estrogen inhibits lysyl oxidase and decreases mechanical function in engineered ligaments. J Appl Physiol (1985). 118 (10), 1250-1257 (2015).
- Paxton, J. Z., Grover, L. M., Baar, K. Engineering an in vitro model of a functional ligament from bone to bone. Tissue Eng Part A. 16 (11), 3515-3525 (2010).
- Heinemeier, K., Langberg, H., Kjaer, M. Exercise-induced changes in circulating levels of transforming growth factor-beta-1 in humans: methodological considerations. Eur J Appl Physiol. 90 (1-2), 171-177 (2003).
- Mackey, A. L., Heinemeier, K. M., Koskinen, S. O., Kjaer, M. Dynamic adaptation of tendon and muscle connective tissue to mechanical loading. Connect Tissue Res. 49 (3), 165-168 (2008).
- Psychogios, N., et al. The human serum metabolome. PLoS One. 6 (2), e16957(2011).
- Nguyen, T., et al. The effects of resting and exercise serum from children with cystic fibrosis on C2C12 myoblast proliferation in vitro. Physiol Rep. 2 (6), e12042(2014).
- Joyner, M. J., Pedersen, B. K. Ten questions about systems biology. J Physiol. 589 (Pt 5), 1017-1030 (2011).
- Joyner, M. J. Giant sucking sound: can physiology fill the intellectual void left by the reductionists? J Appl Physiol (1985). 111 (2), 335-342 (2011).
- Benjamin, M., et al. Where tendons and ligaments meet bone: attachment sites ('entheses') in relation to exercise and/or mechanical load. J Anat. 208 (4), 471-490 (2006).
- Arruda, E. M., Calve, S., Dennis, R. G., Mundy, K., Baar, K. Regional variation of tibialis anterior tendon mechanics is lost following denervation. J Appl Physiol (1985). 101 (4), 1113-1117 (1985).
- Arendt, E., Dick, R. Knee injury patterns among men and women in collegiate basketball and soccer. NCAA data and review of literature. Am J Sports Med. 23 (6), 694-701 (1995).
Przedruki i uprawnienia
