Woreczek amerykańskiej żaby (Rana catesbeiana) pozwala na bezpośrednie badanie fizjologii komórek rzęsatych. Opisano tutaj sekcję i przygotowanie worka żaby do badań biofizycznych. Pokazujemy reprezentatywne eksperymenty z tymi komórkami rzęsa, w tym obliczenie relacji siła-przemieszczenie wiązki i pomiar jej niewymuszonego ruchu.
Artykuł metodologiczny
Fizjologiczne przygotowanie komórek rzęsatych z worka żaba białopłetwego (Rana catesbeiana)
W tym artykule
Podsumowanie
Streszczenie
Badanie słuchu i równowagi opiera się na wglądach pochodzących z badań biofizycznych systemów modelowych. Jeden z takich modeli, woreczek amerykańskiej żaby, stał się podstawą badań słuchowych i przedsionkowych. Badania tego narządu ujawniły, w jaki sposób włosy komórek czuciowych mogą aktywnie wykrywać sygnały z otoczenia. Dzięki tym badaniom lepiej rozumiemy mechaniczne bramkowanie i lokalizację kanałów transdukcji komórek rzęsatych, rolę wapnia w adaptacji mechanicznej oraz tożsamość prądów komórek rzęsatych. Ten wysoce dostępny narząd nadal dostarcza informacji na temat funkcjonowania komórek rzęsatych. Tutaj opisujemy przygotowanie worka żaby do badań biofizycznych na jej komórkach rzęsatych. Uwzględniamy pełną procedurę preparacji i zapewniamy konkretne protokoły przygotowania woreczka w określonych kontekstach. Dodatkowo dołączamy reprezentatywne wyniki przy użyciu tego preparatu, w tym obliczenie chwilowej relacji siła-przemieszczenie pęczka włosa oraz pomiar spontanicznej oscylacji pęczka włosa.
Wprowadzenie
Narządy akustyczno-boczne ssaków mają złożoną architekturę i leżą w anatomicznej niszy, która może być trudno dostępna. Na przykład ślimak ssaków składa się ze spiralnego błędnika i jest osadzony w grubej kości skroniowej. Izolacja ślimaka często powoduje mechaniczne uszkodzenia leżących w nim komórek czuciowych i dlatego okazała się trudnym zadaniem1. Neurobiolodzy zwrócili się więc ku systemom modelowym, które łatwiej wydobyć z sanktuarium ucha.
Jeden z tych modelowych systemów, woreczek amerykańskiej żaby (Rana catesbeiana), przez dziesięciolecia dostarczał uogólnionych informacji na temat funkcji układu słuchowego i przedsionkowego. Woreczek jest narządem o mieszanej funkcji, pełniącym role sensoryczne zarówno w słyszeniu o niskiej częstotliwości, jak i w odczuwaniu sejsmicznym. Komórki czuciowe worka to jego komórki rzęsate, wyspecjalizowane przetworniki, które przekształcają energię mechaniczną w sygnały elektryczne w naszych narządach słuchowych i przedsionkowych. Z wierzchołkowej powierzchni każdej komórki rzęsatej wystaje mechanowrażliwy pęczek włosów, który składa się z stopniowanej kępki powiększonych mikrokosmków zwanych stereociliami. Końcówki sąsiednich stereocilii są połączone nitkowatymi białkami łączącymi końcówkę, które mechanicznie bramują kanały jonowe w odpowiedzi na bodźce mechaniczne2,3. Chociaż narządy słuchu i przedsionkowe reagują na różne rodzaje bodźców, mają wspólny mechanizm wykrywania. Ta wspólna cecha leży u podstaw wielu spostrzeżeń uzyskanych na temat mechanotransdukcji komórek rzęsatych dzięki badaniom worka żaby. Na przykład, aktywny proces komórki włosa został szeroko zbadany w tym organie4,5,6,7, a wiązka włosów wykorzystuje energochłonny proces do wykonywania pracy mechanicznej. Nie tylko wykazano, że komórki rzęsate generują aktywną pracę6, ale także ujawniono odrębne mechanizmy leżące u podstaw aktywnego procesu i charakterystyki strojenia komórki rzęsatej dzięki badaniom narządów akustyczno-bocznych żaby rzęsatej. Należą do nich aktywna ruchliwość wiązki włosa8 i rezonans elektryczny komórek rzęsatych9,10,11 w woreczku i selektywność częstotliwości w synapsie wstęgowej komórki rzęsa12 w brodawce.
Woreczek żaby przemawia do neurobiologów sensorycznych z wielu powodów. W przeciwieństwie do ślimaka ssaków, narząd ten znajduje się w łatwo dostępnej torebce usznej. Po drugie, komórki rzęsate w tym narządzie mogą pozostać zdrowe przez kilka godzin w odpowiednich warunkach13,14. Pozwala to na eksperymentowanie na tych komórkach w długich skalach czasowych w porównaniu z ich ssaczymi odpowiednikami. Po trzecie, narząd ma niewielką krzywiznę, co pozwala na łatwą manipulację. Po czwarte, każdy narząd składa się z tysiąca lub więcej komórek rzęsatych15, co zapewnia zarówno wysoką przepustowość, jak i wysokie prawdopodobieństwo zlokalizowania odpowiedniego zestawu komórek rzęsatych dla danego eksperymentu. Wreszcie, woreczek żaby jest łatwy do uwidocznienia ze względu na cienkość tego narządu i duży rozmiar jego komórek rzęsatych.
Te właściwości zapewniają dużą wszechstronność w badaniu komórek czuciowych w worku żaby. W zależności od zadanego pytania, z woreczka można uzyskać jeden z kilku preparatów eksperymentalnych. Najprostszym z nich jest przygotowanie jednokomorowe. Tutaj woreczek jest unieruchomiony w komorze wypełnionej sztuczną perylimfą, bogatą w sód i wysokowapniową solą fizjologiczną. Preparat ten umożliwia badanie prądów komórek rzęsatych oraz podstawowej mechaniki pęczka włosa. Druga konfiguracja, preparat dwukomorowy, może być wykorzystana do badania spontanicznych ruchów pęczka włosów. W tym przypadku wierzchołkowa strona komórek rzęsatych jest wystawiona na działanie bogatej w potas i ubogiej w wapń soli fizjologicznej zwanej sztuczną endolimfą, podczas gdy strona podstawno-boczna jest skąpana w sztucznej perylimfie. Te dwie komory naśladują układ soli fizjologicznej in vivo i zapewniają środowisko, które umożliwia spontaniczne oscylacje wiązek włosów.
Opisujemy w tym artykule przygotowanie worka żaby do biofizycznych badań jej czuciowych komórek rzęsatych. Najpierw przedstawiamy szczegółowy obraz izolacji tego narządu od ucha wewnętrznego żaby. Następnie opisujemy zarówno jedno-, jak i dwukomorowe preparaty doświadczalne i zamieszczamy reprezentatywne wyniki dla każdej konfiguracji.
Protokół
Oświadczenie etyczne: Wszystkie procedury zostały zatwierdzone przez Instytucjonalny Komitet ds. Opieki i Użytkowania Zwierząt (IACUC) na Uniwersytecie Rockefellera.
1. Pre-Eksperymentalne przygotowanie
- Rozwiązania
- Przygotować roztwór eugenolu (2,5 g·L-1·kg-1 żaba). Przygotować roztwory soli fizjologicznej (tabela 1).
UWAGA: Do przygotowania jednokomorowego należy przygotować sztuczną perylimfę; Do przygotowania dwukomorowego należy przygotować zarówno sztuczną perylimfę, jak i sztuczną endolimfę.
- Przygotować roztwór eugenolu (2,5 g·L-1·kg-1 żaba). Przygotować roztwory soli fizjologicznej (tabela 1).
2. Narzędzia eksperymentalne
- Przygotowanie włókna szklanego stymulacyjnego
- Zwęź kapilarę ze szkła borokrzemianowego za pomocą ściągacza elektrod w jednym pociągnięciu z dużą temperaturą i dużą prędkością. Załaduj wyciągniętą kapilę do ściągacza napędzanego elektromagnesem.
- Skieruj końcówkę kapilary w kierunku żarnika z stopionym na nim szklanym koralikiem, aż kapilar zetknie się ze szklanym koralikiem.
- Włącz żarnik, aby stopić końcówkę kapilary w szklanym koraliku. Gdy między kapilarą a koralikiem utworzy się cienki mostek szkła, wyłącz filament i mniej więcej w tym samym czasie aktywuj ściągacz elektromagnesu.
UWAGA: Spowoduje to pociągnięcie szklanej kapilary pod kątem prostym do jej długiej osi i utworzenie solidnego włókna. - Upewnij się, że średnica włókna nie przekracza 0,5 - 1 μm i aby jego długość nie przekraczała 100 - 300 μm. Jeśli długość włókna przekracza ten wymiar, przytnij je nożyczkami do przysłony. Używaj nożyczek, które są już, aby uniknąć uszkodzenia narzędzi do preparowania.
- Aby zwiększyć kontrast optyczny, napyl włókno. Użyj napylarki do natryskiwania ze źródłem złoto-palladowym. Załaduj pionowo każde włókno do powlekarki napylającej zwężającym się końcem w kierunku źródła. Umieść końcówkę włókna w odległości 1-2 cm od źródła złoto-palladowego.
- Zamknij komorę powlekarki napylającej, aby utworzyć uszczelkę i włącz ją. Kilkakrotnie wypłucz powietrze z otoczenia argonem. Po przepłukaniu powietrza należy zmniejszyć ciśnienie w komorze do 10 Pa (70 mTorr).
- Napylanie w ciągu 10 s impulsów z 10-sekundowym opóźnieniem w ciągu 120 s.
UWAGA: Końcówka włókna ciemnieje w czasie trwania tego protokołu, jeśli powłoka napylająca zakończyła się sukcesem.
- Przygotowanie ostrych mikroelektrod
- Pociągnij szklaną kapilę z wewnętrznym żarnikiem za pomocą jednoliniowego ściągania w wysokiej temperaturze. Elektrody powinny mieć rezystancję 100 - 300 MΩ po napełnieniu 3 M KCl. Napełnij każdą elektrodę 3 M KCl.
- Zegnij końcówkę każdej elektrody za pomocą mikrokuźni, aby ustawić ją prostopadle do powierzchni wierzchołkowej komórki rzęsatej po zamontowaniu w headstage wzmacniacza16.
- Przygotowanie pipet jonoforetycznych
- Pociągnij szklaną kapilarnę z wewnętrznym żarnikiem do końcówki 50 MΩ. Wypełnić stężoną substancją rozpuszczoną (np. 500 mM siarczanu gentamycyny).
- Przygotowanie aluminiowego kątownika montażowego
- Wytnij kwadrat folii aluminiowej o wymiarach 1 cm x 1 cm. Przebij folię pośrodku końcówką pręta do wbijania lub innego ostrego przedmiotu. Uformuj perforację tak, aby była okrągła i miała około 1 mm średnicy.
- Przygotowanie próżniowej strzykawki wypełnionej smarem.
- Wyjąć tłok ze strzykawki o pojemności 5 ml. Napełnić strzykawkę od tyłu smarem próżniowym. Wymienić tłok.
- Przygotowanie aplikatora kleju z politetrafluoroetylenu
- Wykonaj osiowe nacięcie o długości 2 mm na końcu drewnianego aplikatora w sztyfcie. Szczelina powinna znajdować się na środku aplikatora, gdy jest oglądana od końca.
- Ostrymi nożyczkami lub żyletką wytnij prostokąt o wymiarach 2 mm x 4 mm z politetrafluoroetylenu z arkusza o grubości 1 mm.
- Użyj żyletki, aby pocienić jedną z 2-milimetrowych krawędzi prostokąta z politetrafluoroetylenu. Zaczynając od środka prostokąta, zmniejsz grubość prostokąta, przecinając go na zewnątrz, aby utworzyć skos na końcu prostokąta.
- Włóż prostokąt z politetrafluoroetylenu do drewnianej szczeliny aplikatora tak, aby ścięta krawędź była skierowana od patyczka. Nałóż 5-minutową żywicę epoksydową na podstawę prostokąta z politetrafluoroetylenu, aby zabezpieczyć go na miejscu. Pozostaw aplikator kleju do utwardzenia przez 1 godzinę w temperaturze pokojowej.
- Przygotowanie dolnej połowy mocowania dwukomorowego
- Wydrukuj maszynowo lub 3D dolną połowę mocowania dwukomorowego (plik uzupełniający 2). Zidentyfikuj wgłębiony okrąg o średnicy 20 mm na dolnej powierzchni komory.
- Nałóż cienką warstwę żywicy epoksydowej na boczne 3 mm zagłębionego koła. Nałóż jedno okrągłe szkiełko nakrywkowe o średnicy 18 mm na żywicę epoksydową. Pozostaw żywicę epoksydową do utwardzenia przez 1 godzinę.
3. Pobieranie narządów ucha wewnętrznego
- Znieczul amerykańską żabę, umieszczając ją w małym wiadrze zawierającym eugenol roztwór znieczulający na 10 minut. Dostosuj objętość roztworu tak, aby staw ramienno-łopatkowy żaby leżał tuż nad granicą faz ciecz-powietrze.
- Poddaj eutanazji znieczuloną żabę przez podwójne wciskanie.
- Chwyć znieczuloną żabę jednym palcem na czubku jej nosa, a drugim poniżej szczęki i obróć głowę żaby do przodu.
- Szybko zanurz pręt do wbijania w sklepienie czaszki przez otwór wielki, który znajduje się na linii środkowej między wyrostkami potylicznymi żaby.
- Powoli wycofaj i obracaj pręt, aż jego końcówka odejdzie od otworu wielkiego. Przepchnij pręt doogonowo przez otwór kręgowy, aby zniszczyć rdzeń kręgowy.
- Upewnij się, że żaba została prawidłowo podwójnie wygładzona, obserwując, że jej dolne kończyny są wydłużone.
- Chwyć żabę kciukiem na czubku nosa i pierwszym palcem chwytając zęby lemieszowe, aby poprawić stabilność. Odetnij żabę, przecinając obustronnie staw skroniowo-żuchwowy, a następnie przecinając prostopadle do osi ostroogonowej. Aby upewnić się, że narządy ucha wewnętrznego w czaszce pozostają nienaruszone, upewnij się, że nacięcie jest ogonowe do obu bębenków.
- Za pomocą mikroskopu stereodykcyjnego wykonaj linię środkową przeciętą przez tkankę podniebienną od zębów lemieszowych do najbardziej tylnego zakresu tkanki (ryc. 1A).
- Odetnij i oczyść poziomymi cięciami skalpela każdy mięsień leżący poniżej tkanki podniebiennej, aby odsłonić tylną chrząstkę. Po usunięciu mięśnia obserwuj kształt lizaka chrząstki skroniowej tworzącej granicę torebki usznej.
- Przeciąć kolumellę w miejscu jej styku z chrząstką torebki usznej.
- Wielokrotnie gol cienkie warstwy tej chrząstki, wykonując przez nią płytkie poziome nacięcia. Unikaj głębokich nacięć, aby zapobiec uszkodzeniu narządów ucha wewnętrznego. To otwiera torebkę uszną znajdującą się w strukturze lizaka chrząstki skroniowej (ryc. 1B). W torebce usznej znajdują się narządy ucha wewnętrznego żaby (ryc. 1C).
- Przyciąć tylną i boczną krawędź torebki usznej, uważając, aby nie uszkodzić narządów ucha wewnętrznego. Podczas sekcji często przelewaj sól fizjologiczną na narządy ucha wewnętrznego, aby upewnić się, że pozostają one zanurzone i nawilżone.
- Zlokalizuj dwa okrągłe otwory w kości skroniowej w przyśrodkowym połączeniu chrząstki z linią środkową. Przeciąć w dół przez najbardziej przyśrodkowy otwór, aby rozerwać kość skroniową.
- Wykonaj drugie cięcie w dół przez torebkę uszną na jej tylno-bocznej krawędzi. Usuń kawałek chrząstki między tym a poprzednim cięciem, aby zapewnić dostęp do narządów ucha wewnętrznego.
- Podważ chrząstkę między nacięciami z kroków 3.8 i 3.9 i odetnij ją od torebki usznej. Działanie to powoduje przecięcie najbliższego kanału półkolistego, który może być następnie wykorzystany jako uchwyt do dalszych manipulacji.
- Uważając, aby nie dotknąć worka, przeciąć VIII nerw czaszkowy.
- Przytrzymaj bańkę najbliższego kanału półkolistego. Delikatnie obróć ucho wewnętrzne, aby odsłonić pozostałe dwa kanały półkoliste. Po odsłonięciu każdego kanału przetnij go.
- Trzymając nerw lub bańkę kanału półkolistego, wyjmij ucho wewnętrzne z głowy i umieść je w naczyniu wypełnionym schłodzoną natlenioną sztuczną perylimfą. Usunięcie ucha wewnętrznego pozwala na uwidocznienie przejść w obrębie kości skroniowej, przez które kiedyś przechodziły kanały półkoliste (ryc. 1D).
UWAGA: Powtórz te kroki, aby wyjąć drugie ucho.
4. Przygotowanie jednokomorowe
- Izolacja woreczka
- Zlokalizuj woreczek, identyfikując jego dużą białą masę otokonii i nerw woreczny, który leży na nim (ryc. 1E). Uważaj, aby nie uszkodzić fizycznie woreczka podczas poniższych kroków, aby zachować integralność komórek rzęsatych worka workowego.
- Przytnij kanały półkoliste, aby ucho wewnętrzne było bardziej zwrotne.
- Usuń cysternę perylimfatyczną pokrywającą nerwową stronę worka. Wykonuj delikatne nacięcia na obwodzie spłuczki. Następnie odetnij małe filary tkanki, które łączą błonę cysterny z nerwową stroną worka.
- Usuń lagenę i związany z nią nerw.
- Trzymając nerw woreczny, delikatnie unieś woreczek i przetnij cienką błonę worka otoconial. Gdy otoconia wyleje się z worka, uwolnij woreczek, przecinając go na jego obwodzie.
UWAGA: Po wyizolowaniu woreczka w razie potrzeby można uratować pozostałe narządy ucha wewnętrznego. Usunięcie woreczka ułatwia identyfikację innych struktur, takich jak i brodawki podstawne. - Użyj nożyczek lub kleszczy, aby ostrożnie wytrzeć otokonię pozostałą na woreczku. Uważaj, aby nie dotykać woreczka podczas tego procesu.
- Przyciąć pozostałą błonę worka stoczno-stożkowego od krawędzi worka. Membrana ta ma tendencję do przylegania do powierzchni plastikowych i szklanych, a jej usunięcie minimalizuje wyzwania związane z obchodzeniem się z tkanką.
- Delikatnie przelej sól fizjologiczną na woreczek za pomocą pipety Pasteura, aby usunąć pozostałą otokonię (ryc. 1F).
UWAGA: Powtórz tę procedurę dla drugiego woreczka, który jest lustrzanym odbiciem pierwszego.
- Trawienie i montowanie
- Używając tylnego końca pipety Pasteura ze złamaną końcówką, przenieś wyizolowane woreczki na szalkę Petriego zawierającą 3 ml proteazy XXIV 67 mg∙L-1 w sztucznym perylimfie.
UWAGA: Ta terapia proteazą trawi ogniwa łączące każdą cebulkę kinorzęskową z błoną otolityczną, umożliwiając usunięcie błony bez uszkadzania czuciowych wiązek włosów. - Inkubować tkankę przez 30 minut w temperaturze 22 °C (lub 35 minut w temperaturze 21 °C). Przenieś każdy strawiony woreczek do otwartej komory doświadczalnej i zabezpiecz tkankę szpilkami magnetycznymi.
- Plamka żółta workowata leży bezpośrednio pod błoną otolityczną i jest częścią woreczka zawierającą komórki rzęsate. Zidentyfikuj go i ostrożnie usuń leżącą nad nim błonę otolityczną za pomocą cienkiej rzęsy, uważając, aby nie dotknąć plamki workowej.
- Używając tylnego końca pipety Pasteura ze złamaną końcówką, przenieś wyizolowane woreczki na szalkę Petriego zawierającą 3 ml proteazy XXIV 67 mg∙L-1 w sztucznym perylimfie.
5. Przygotowanie dwukomorowe
- Izolacja woreczka
- Odizolować woreczek od narządów ucha wewnętrznego, jak opisano w sekcji 4.1.
- Montowanie i trawienie
- Napełnij blok montażowy (plik uzupełniający 3) sztuczną perylimfą i umieść perforowaną folię aluminiową na jednym otworze, używając dwóch miejsc smaru próżniowego, aby utrzymać ją na miejscu i utworzyć słabe uszczelnienie.
- Przenieś jeden woreczek na folię i wyśrodkuj go na górze otworu z plamką żółtą skierowaną w dół i kikutem nerwu skierowanym do góry.
- Usuń sól fizjologiczną otaczającą woreczek kawałkiem skręconej tkanki. Schylić sól fizjologiczną, aby wysuszyć powierzchnię aluminiowego kwadratu otaczającego woreczek.
- Użyj aplikatora z politetrafluoroetylenu, aby nałożyć klej cyjanoakrylowy, aby uzyskać szczelne uszczelnienie wzdłuż granicy między krawędzią worka a aluminiowym kwadratem. Upewnij się, że cały obwód worka jest pokryty klejem.
UWAGA: Postępowanie zbyt wolno pozwala klejowi cyjanoakrylowemu pełzać po nerwowej stronie worka i ostatecznie go pokryć. Dlatego konieczne jest szybkie wykonanie tego zadania. - Umieść kroplę soli fizjologicznej na zamontowanej chusteczce, aby utwardzić klej. Na kropli soli fizjologicznej może utworzyć się cienka warstwa kleju; Usuń go kleszczami.
- Ostrożnie zdejmij folię z bloku montażowego. Odwróć zamontowaną tkankę tak, aby plamkowa strona woreczka była skierowana do góry i umieść ją na sztucznej szalce Petriego wypełnionej perylimfą.
- Dodać kroplę roztworu proteazy XXIV na wierzch plamki żółtej i inkubować przez 30 minut w temperaturze 22 °C (lub 35 minut w temperaturze 21 °C). Napełnij dolny kanał aparatu dwukomorowego (plik uzupełniający 2) perylimfą i umieść smar próżniowy wokół środkowej komory.
- Umieść woreczek zamontowany na folii w dolnej komorze tak, aby jego nerw był skierowany w stronę powierzchni komory. Dodaj smar na obwodzie folii.
- Umieść górną komorę (plik uzupełniający 1) preparatu na folii, uważając, aby utworzyć pełne uszczelnienie ze smarem próżniowym. Wypełnij górną komorę bąbelkową sztuczną endolimfą i delikatnie usuń błonę otolityczną rzęsą.
Wyniki
Nabłonek sensoryczny sakulusu żaby rżewki może być wykorzystywany w różnych konfiguracjach do badania fizjologii komórek rzęskowych. Ze względu na względnie płaski kształt tkanki, może ona być montowana zarówno w preparatach jednokomorowych, jak i dwukomorowych. Konfiguracja jednokomorowa stanowi prosty układ do elektrofizjologicznych i mikromechanicznych pomiarów komórek rzęskowych. Preparat dwukomorowy symuluje natomiast przedziały endolimfatyczny i perilimfatyczny odpowiednio po stronie apikalnej i bazalnej komórek rzęskowych. Przedziały te wspólnie zapewniają fizjologicznie istotne środowisko do badania mechanotransdukcji w komórkach rzęskowych.
Czułość i charakterystyka transdukcji komórek rzęsek stanowią podstawę ich odpowiedzi elektrycznej na stymulację mechaniczną. Aby zbadać te cechy, jednocześnie rejestrowaliśmy pozycję wiązki pojedynczej komórki rzęsek oraz potencjał receptorowy tej komórki (Rysunek 2). Najpierw przymocowaliśmy elastyczne włókno szklane do cebulki kinocili wiązki rzęsek, aby przyłożyć impulsy siły. Następnie zmierzyliśmy przemieszczenie wiązki rzęsek, korzystając z systemu dwóch fotodiod2 (Rysunek 2A). Równocześnie rejestrowaliśmy potencjał komórki rzęsek, wprowadzając do niej ostrą mikroelektrodę. Uzyskano krzywą zależności odpowiedzi od przemieszczenia, nanosząc szczytową odpowiedź napięciową wywołaną przez każdy bodziec mechaniczny w funkcji odpowiadającego mu przemieszczenia wiązki rzęsek (Rysunek 2B). Odpowiedź elektryczna komórki rzęsek nasyca się zarówno dla ekstremów przemieszczenia dodatniego, jak i ujemnego. Spadek potencjału błonowego przy ujemnych skokach przemieszczenia wskazuje na obecność spoczynkowego wewnątrzkomórkowego prądu mechanotransdukcyjnego. Prąd spoczynkowy ten jest modulowany przez działanie Ca2+ na szybką i wolną adaptację17,18,19,20,21.
Zachowanie komórki rzęsnej zależy nie tylko od jej właściwości elektrycznych, ale także od mikromechaniki wiązki rzęsek sensorycznych. Konfiguracja dwukomorowa naśladuje rozdział endolimfy i perilimfy in vivo, zapewniając optymalne warunki do badania mechaniki wiązki rzęsek. W tych warunkach, po usunięciu błony otolitycznej, wiązki rzęsek mogą oscylować spontanicznie6. W niniejszej pracy zastosowano preparat dwukomorowy do oceny mikromechaniki poszczególnych wiązek. Rejestrowaliśmy spontaniczne oscylacje wiązki rzęsek poprzez rzutowanie jej cienia na dwufotodiodowy monitor przemieszczeń (Rycina 3). Aby ocenić wpływ antybiotyku aminoglikozydowego, gentamycyny, na mechanotransdukcję, uwalniano gentamycynę jonoforetycznie bezpośrednio na wiązkę rzęsek (Rycina 3). Stężenie uwalnianej gentamycyny rośnie proporcjonalnie do prądu przepływającego przez mikropipetę. Gentamycyna hamuje oscylacje wiązki rzęsek i indukuje statyczne przesunięcie wiązki w stronę jej wysokiej strony. Efekty te odzwierciedlają rolę gentamycyny jako blokera otwartych kanałów, który utrzymuje stan otwarty kanałów mechanotransdukcyjnych, jednocześnie blokując ich por przenikania. Jonoforeza naładowanych chemikaliów umożliwia lokalne i mierzalne uwalnianie substancji w różnych stężeniach bez mechanicznych zakłóceń wywołanych przepływem cieczy, przez co jest idealnie dostosowana do badania organelli mechanosensytywnych, takich jak wiązka rzęsek22.
Spontaniczny ruch pęczka rzęsek wynika z oddziaływania między adaptacją a nieliniową sztywnością pęczka7,8,23,24. Ten spontaniczny ruch jest sygnaturą aktywnego procesu pęczka rzęsek, który przekształca energię sygnału w pracę mechaniczną w celu pokonania oporu lepkości. Wykazano, że pęczki rzęsek wykazują nieliniową sztywność chwilową w systemach przedsionkowych2, słuchowych25 i linii bocznej26.
Bezpośrednio zmierzyliśmy chwilową sztywność pojedynczego pęczka rzęsek z sacculus żaby wołianki (Ryc. 4). Aby to osiągnąć, końcówkę elastycznego włókna szklanego połączyliśmy z opuszkiem kinocylarnym pęczka rzęsek (Ryc. 4A). Siły przyłożyliśmy do pęczka rzęsek poprzez przemieszczanie podstawy włókna. Siła wywierana na pęczek rzęsek przez włókno stymulujące odpowiada różnicy między przemieszczeniami podstawy i końcówki włókna, pomnożonej przez sztywność włókna2,27. Podawanie impulsów w zakresie różnych sił ujawnia zależność między siłą wywieraną na pęczek a wynikającym z niej przemieszczeniem pęczka. Nachylenie tej relacji siła-przemieszczenie odpowiada chwilowej sztywności pęczka rzęsek (Ryc. 4A).
Ta metoda pozwoliła nam zmierzyć chwilową sztywność pojedynczego wiązka w funkcji jej odchylenia (Rycina 4B). Chwilowa krzywa siła-przesunięcie wykazuje nieliniową zależność, ujawniając nieliniową sztywność wiązki w zakresie około 20 nm wokół jej pozycji spoczynkowej. Poza tym zakresem wiązka rzęsek zachowuje się jak materiał hookowski, a jej sztywność jest liniowa przy odchyleniach o dużej wartości.
Wyniki te demonstrują wszechstronność woreczka (sacculus) rzekotki w badaniach nad fizjologią komórek rzęsatych. Wykorzystując ten i inne preparaty, można badać mechanotransdukcję na wielu etapach przesyłania informacji z wiązki rzęsek w kierunku mózgu.
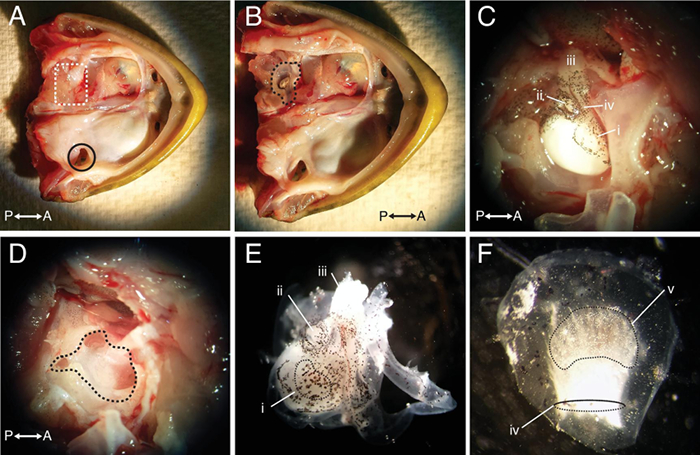
Rysunek 1: Disekcja ucha wewnętrznego żaby ryczącej. (A) Widok górnego podniebienia żaby bydlętej od strony brzusznej pozwala na zidentyfikowanie trąbki słuchowej (okrąg). Odchylenie na bok skóry pokrywającej prawą stronę górnego podniebienia ujawnia położenie ucha wewnętrznego (przerywany prostokąt). (B) Usunięcie chrząstki z brzusznej strony kości skroniowej żaby odsłania torebkę błędnika (linia przerywana). (C) Przedstawiono obraz otoczki słuchowej przy większym powiększeniu, na którym można łatwo zidentyfikować sacculus, lagena, VIII nerw czaszkowy oraz nerw saccularny. (DWidok torebki błędnika po usunięciu narządów ucha wewnętrznego ukazuje położenie kanałów półkolistych.E) Po usunięciu wyizolowanego ucha wewnętrznego, woreczek, lagena i VIIIth nerw czaszkowy (NC VIII) można łatwo zidentyfikować. (F) Wyizolowany sacculus posiada krótki kikut nerwu saccularnego oraz błonę otolitową spoczywającą na jego nabłonku sensorycznym. Etykiety odpowiadają kolejno: (i) sacculus, (ii) lagena, (iii) CN VIII, (iv) nerw saccularny oraz (v) błona otolitowa. Oznaczenia osi P i A odpowiadają odpowiednio kierunkowi tylnemu i przedniemu. Paski skali reprezentują 1 cm (A, B), 1 mm (C, D, E) oraz 400 μm (F).
Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Kliknij tutaj, aby pobrać wersję wektorową tej ryciny.
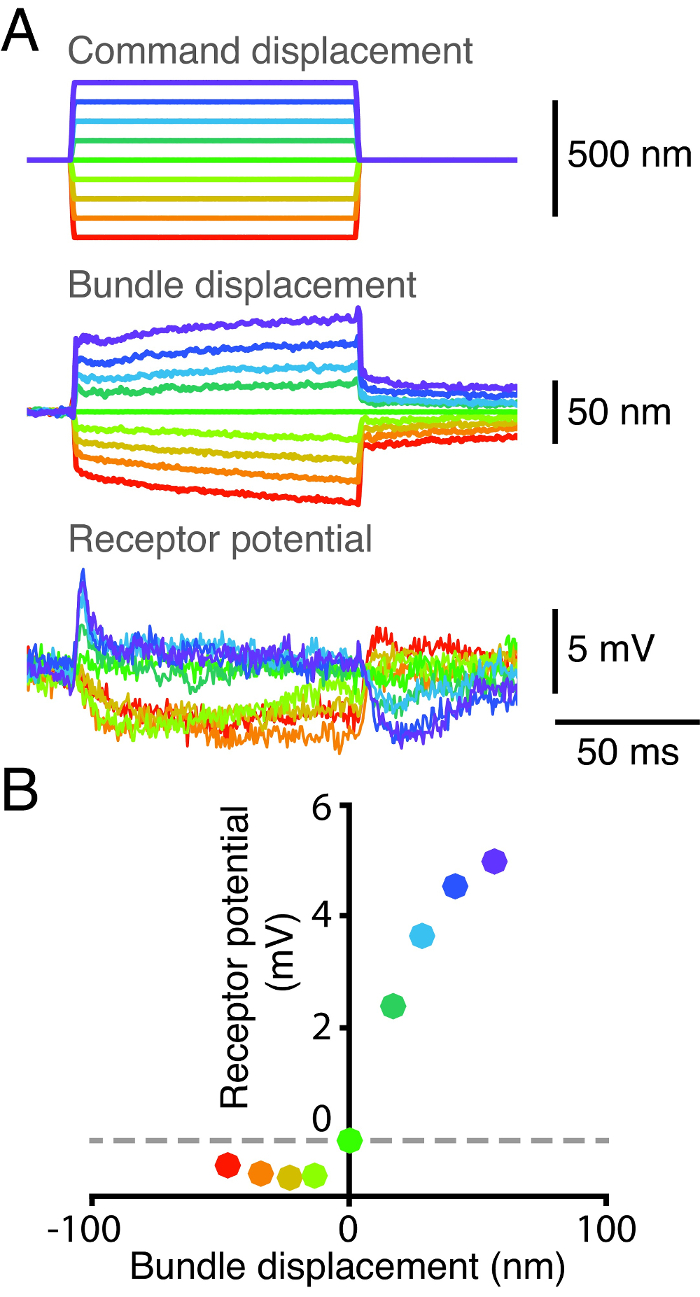
Rycina 2: Krzywa odpowiedzi na przemieszczenie dla pojedynczej komórki rzęsnej. (A) Końcówka szklanego włókna stymulującego została sprzężona z opuszką kinocylarną wiązki rzęsek, a następnie podstawa włókna była przemieszczana w dziewięciu dyskretnych krokach. Położenie wiązki śledzono za pomocą systemu z podwójną fotodiodą, a jej potencjał receptorowy mierzono jednocześnie za pomocą mikroelektrody, której sygnał wyjściowy był przekazywany przez wzmacniacz w trybie mostkowym. Rezystancja końcówki elektrody wynosiła 95 MΩ, a spoczynkowy potencjał błonowy wiązki wynosił -47 mV. (B) Wykres potencjału receptorowego wiązki w funkcji jej przemieszczenia wykazuje nieliniową zależność między odpowiedzią wiązki a jej położeniem. Każdy punkt odpowiada średniemu potencjałowi i średniemu przemieszczeniu w oknie czasowym 2,5 ms, rozpoczynającym się 2,5 ms po rozpoczęciu stymulacji mechanicznej. Każdy kolor reprezentuje zestaw szeregów czasowych odpowiadających temu samemu impulsowi przemieszczenia.
Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Kliknij tutaj, aby pobrać wersję wektorową tej ryciny.
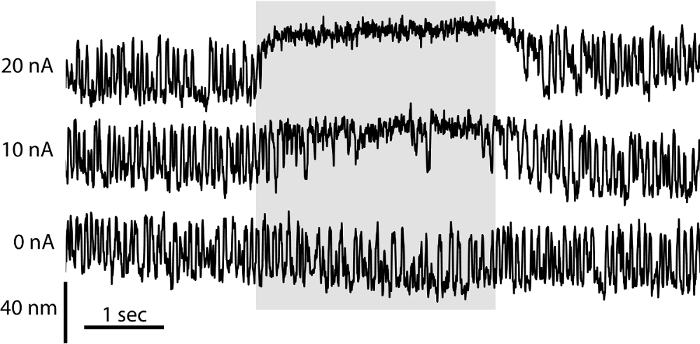
Rysunek 3: Wpływ gentamycyny na spontaniczne oscylacje pęczków rzęsek. Spontaniczny ruch pęczka rzęsek w preparacie dwukomorowym rejestrowano za pomocą systemu dwóch fotodiod. W przypadku braku jontophoretycznego uwalniania gentamycyny (0 nA), pęczek rzęsek wykazuje symetryczne oscylacje. Wraz ze wzrostem natężenia prądu przepływającego przez pipetę jontophoretyczną wypełnioną 500 mM siarczanu gentamycyny (10 nA, 20 nA), częstotliwość wychyleń pęczka rzęsek spada w sposób zależny od dawki, a pęczek jest przesunięty w stronę swojej wysokiej krawędzi przez dłuższe okresy czasu.
Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Kliknij tutaj, aby pobrać wersję wektorową tego rysunku.
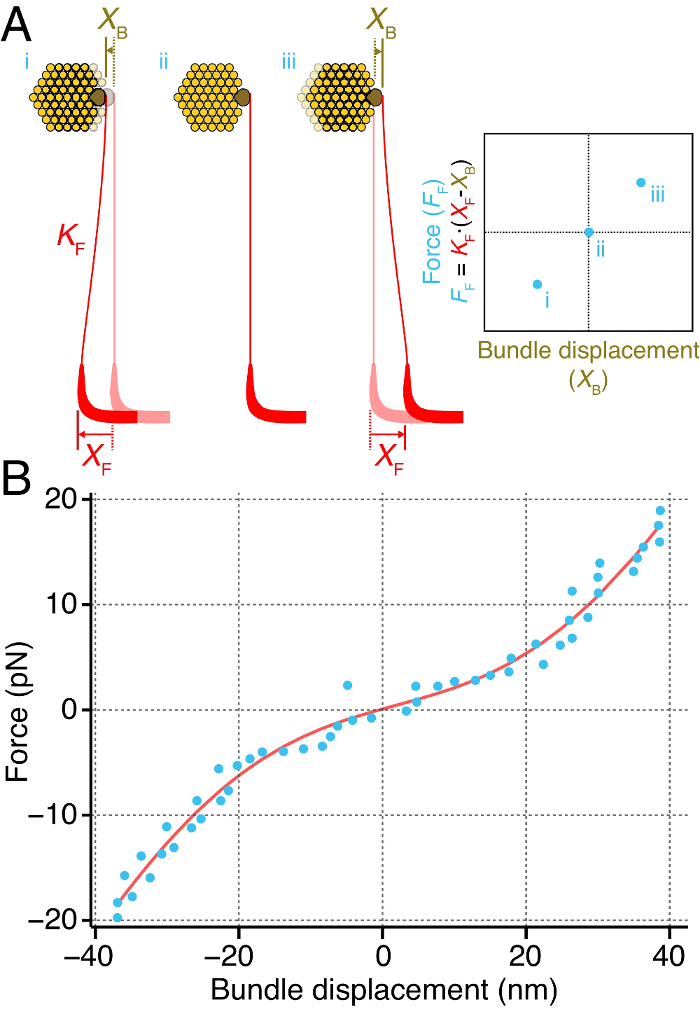
Rysunek 4. Obliczanie chwilowej sztywności wiązki rzęsek. (A) Włókno stymulujące (czerwone) o sztywności KF jest połączone z cebulką kinocylarną (brązowa) pojedynczej wiązki rzęsek (żółta). Przesunięcie podstawy włókna o znaną odległość XF powoduje przemieszczenie wiązki o odległość XB. Różnica między przemieszczeniami włókna i wiązki jest proporcjonalna do siły wywieranej na wiązkę przez włókno stymulujące, FF. Powtórzenie tego procesu dla zakresu sił pozwala uzyskać chwilową zależność siła-przemieszczenie (po prawej), której nachylenie odpowiada chwilowej sztywności wiązki rzęsek. (B) Pojedyncza wiązka była poddawana impulsom siły o rosnącej wartości, a jej przemieszczenie w ciągu pierwszych 50 ms po rozpoczęciu impulsu było mierzone (niebieskie punkty). W tym przypadku wiązka rzęsek wykazuje nieliniową chwilową sztywność w zakresie około 20 nm wokół pozycji spoczynkowej. Czerwona krzywa odpowiada dopasowaniu do zależności F = k*X - 60*z*(1/(1+exp(-z*(X-X0)/(kB*T))) + F0, gdzie F to siła przyłożona do wiązki, X to przemieszczenie wiązki, k = 790 ± 51 µN∙m-1 to stała sztywność wiązki, gdy wszystkie kanały są albo zamknięte, albo otwarte, z = 0.43 ± 0.04 pN to siła pojedynczej sprężyny bramkującej, X0 = 2 ± 1.9 nm to pozycja wiązki, przy której otwartych jest 50% jej kanałów, kB to stała Boltzmanna, T to temperatura, a F0 = 11.7 ± 1.3 pN to siła przesunięcia (offset). Dopasowanie posiada współczynnik determinacji wynoszący 0,98. Włókno stymulujące miało sztywność 107 µN∙m-1.
Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
Kliknij tutaj, aby pobrać wektorową wersję tego rysunku.
| Substancja rozpuszczona | Masa molowa (g/mol) | Dodać do 1 L | |
| Sztuczny perilymph | Sztuczna endolimfa | ||
| NaCl | 58.4 | 6,54 g | 0,117 g |
| KCl | 0.149 | 0,149 g | 8,62 g |
| CaCl₂2 ⦁ 2H2O | 147 | 2 ml 1 M CaCl22 stok | 250 µL 1 M CaCl22 roztwór zapasowy |
| HEPES | 238.3 | 1,19 g | 1,19 g |
| D-(+)-glukoza | 180.2 | 0,541 g | 0,541 g |
Tabela 1. Roztwory do dysekcji i przygotowań eksperymentalnych. W tabeli przedstawiono receptury roztworów sztucznej perilimfy i sztucznej endolimfy stosowanych podczas dysekcji oraz w przygotowaniach jedno- lub dwukomorowych. Roztwory należy doprowadzić do pH 7,2 - 7,4, dodając około 2 mL NaOH (perilimfa) lub 2 mL KOH (endolimfa). Siła osmotyczna powinna wynosić około 230 mmol·kg-1 ze względu na niepełną dysocjację jonową.
Dyskusja
W woreczku żaby znajduje się kilka tysięcy łatwo dostępnych czuciowych komórek rzęsatych. Tutaj pokazujemy ekstrakcję i przygotowanie worka do nagrań jedno- i dwukomorowych. Te dwa preparaty umożliwiają zarówno badania mikromechaniczne, jak i elektrofizjologiczne komórek rzęsatych i związanych z nimi wiązek. Ponieważ tkanka może przetrwać kilka godzin przy częstej wymianie natlenionej soli fizjologicznej, eksperymenty mogą trwać przez długi czas. Komórki rzęsate w tych preparatach zazwyczaj zachowują żywotność do rejestracji mikroelektrod do 6 godzin po rozwarstwieniu, podczas gdy wiązki włosów oscylują spontanicznie do 24 godzin po ekstrakcji.
Pomyślne wydobycie i zamontowanie worka zależy od pokonania kilku typowych wyzwań. Po pierwsze, przez cały czas trwania procedury przygotowania należy unikać bezpośredniego kontaktu z powierzchnią wierzchołkową plamki workowej. Nerw woreczkowy zapewnia wygodny uchwyt do bezpiecznej manipulacji woreczkiem. Po uwolnieniu od reszty narządów ucha wewnętrznego, woreczek powinien być przenoszony za pomocą pipety o dużej średnicy, pozostając zanurzony w płynie, aby uniknąć mechanicznego uszkodzenia nabłonka czuciowego. Usuwanie otokonii z powierzchni plamki żółtej musi odbywać się bez mechanicznego uszkodzenia komórek rzęsatych. Ponieważ otokonia leży bezpośrednio na plamce żółtej, komórki rzęsate mogą zostać uszkodzone przez przypadkowy kontakt narzędzi preparacyjnych z błoną otolityczną podczas usuwania otokonii. Aby uniknąć uszkodzeń, zalecamy, aby galaretowata masa otokonii była trzymana w miejscu daleko od plamki żółtej i usuwana jako pojedyncza masa. Pozwala to uniknąć rozdrobnienia masy otostocznej na liczne skupiska, z których każde byłoby indywidualnie ekstrahowane. Jeśli pozostaną małe skupiska otokonii, można je usunąć za pomocą delikatnego ciśnienia płynu dostarczanego przez pipetę Pasteura. Ostatnim wyzwaniem jest stworzenie szczelnego uszczelnienia między woreczkiem a aluminiowym kwadratem montażowym w dwukomorowym preparacie. Zastosowanie kwadratu z perforacją wystarczająco małą, aby umożliwić zachodzenie na siebie około 100 μm między woreczkiem a otaczającym go aluminium, pozwala na całkowite uszczelnienie tkanki. Klej powinien zetknąć się z około 100 μm tkanki workowej na obwodzie plamki żółtej, aby uzyskać szczelne uszczelnienie.
Stężenie wolnegoCa2+ jest ważnym czynnikiem w badaniu komórek rzęsatych. Ca2+ reguluje zarówno szybką, jak i wolną adaptację, określając w ten sposób kinetykę aparatu mechanotransdukcji i charakterystykę zjawisk procesu aktywnego pęczka włosa, w tym spontaniczny ruch pęczkawłosa 8,23. Wapń endolimfatyczny in vivo jest obecny w ilości 250 μM, dlatego przy tym stężeniu ocenia się najbardziej fizjologicznie istotną kinetykę (Maunsell J. H. R., R. Jacobs i A. J. Hudspeth. Uwagi niepublikowane(16). Jednak zapisy mikroelektrod z komórek rzęsatych wymagają zewnętrznego stężenia wapnia przekraczającego 2 mM do prawidłowego uszczelnienia błony komórkowej wokół mikroelektrody. Dlatego do tych eksperymentów konieczne jest użycie soli fizjologicznej o wysokiej zawartości wapnia. Na koniec można chcieć zbadać wpływ zewnętrznego wapnia na mechanotransdukcję przy użyciu różnych stężeń wapnia. W takich przypadkach należy pamiętać, że stężenia wapnia poniżej 1 μM zwykle prowadzą do zerwania ogniwa końcówka-ogniwo i nieodwracalnej utraty transdukcji28.
Opisane tu dwa eksperymentalne preparaty pozwalają na przeprowadzenie szeregu pomiarów biofizycznych na komórkach rzęsatych. Można jednak wykonać dodatkowe pomiary z niewielkimi modyfikacjami tych preparatów. W złożonym preparacie woreczkowym wiązki włosów są wizualizowane z boku. Obrazowanie ruchu wiązki włosów z tego punktu obserwacyjnego ujawnia spójny ruch zarówno krótkich, jak i wysokich stereocilia29. Tutaj plamka żółta workowata jest najpierw oddzielana od leżącej pod nią tkanki, a następnie składana wzdłuż osi zdefiniowanej przez nerw woreczny, tak że wiązki włosów są skierowane na zewnątrz i są uwidocznione bocznie w załamaniu. Druga modyfikacja, dysocjacja komórek rzęsatych, umożliwia badanie zarówno pęczka komórki rzęsatej, jak i jej somy. Komórki rzęsate są mechanicznie dysocjowane na szkiełku podstawowym w celu obrazowania i rejestracji elektrofizjologicznej30. Wreszcie, komórki rzęsate mogą być wytłaczane z nabłonka, postępując zgodnie z podobnym protokołem dysocjacji, ale bez etapu dysocjacji mechanicznej. W wyniku tego zabiegu powstają komórki rzęsate, które stopniowo wystają z nabłonka, zapewniając podstawno-boczny dostęp do zapisów elektrofizjologicznych przy jednoczesnej minimalizacji uszkodzeń mechanicznych. Preparaty te i ich liczne modyfikacje pokazują wszechstronność worka żaby jako systemu modelowego do badań biofizycznych czuciowych komórek rzęsatych.
Oświadczenia
Autorzy deklarują brak sprzecznych interesów.
Podziękowania
Autorzy pragną podziękować Dr. A. J. Hudspethowi za finansowanie i doświadczenie w rozwijaniu preparatów opisanych w tym artykule. Pragniemy również podziękować Brianowi Fabelli za stworzenie i utrzymanie wielu niestandardowych urządzeń i oprogramowania używanych w tym protokole.
J. B. A. jest wspierany przez grant F30DC014215, J. D. S. jest wspierany przez grant F30DC013468, a zarówno J. B. A. jak i J. D. S. są wspierane przez granty T32GM07739 z National Institutes of Health.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Wspólne dla obu preparatów | |||
| Mikroskop stereopreparacyjny | Leica | MZ6 | Można użyć innych źródeł |
| Metanosulfonian trikainy | Sigma | E10521 | Można użyć innych źródeł |
| Metalowy pręt do cięcia | Fine Science Tools | 10140-01 | |
| Nożyczki sprężynowe Vannas | Fine Science Narzędzia | 15000-03 | |
| Kleszcze Dumont #5 | Fine Science Tools | 11252-20 | |
| Szklana pipeta i bańka Pasteura (x2) | Fisher Scientific | 22-042816 | |
| Cienkie rzęsy osadzone na igle podskórnej | Fisher Scientific | 22-557-172 | |
| Smar próżniowy Dow-corning | Fisher Scientific | 14-635-5C | |
| Strzykawka do próżni smar | Fisher Scientific | 14-829-45 | Można użyć innych źródeł |
| 35 mm szalka Petriego (x2 - 3) | Fisher Scientific | 08-772A | Można użyć innych źródeł |
| Ściągacz do mikropipet | Sutter | P-97 lub P-2000 | |
| 120 V Ściągacz | domowej roboty, patrz lista części | ||
| Napylarka do napylania | Anatech USA | Hummer 6.2 | |
| Źródło prądu do jonoforezy | Axon Instruments | AxoClamp 2B | Można użyć innych źródeł |
| Siłownik piezoelektryczny | Piezosystem Jena | P-150-00 | |
| Wzmacniacz do siłownika piezoelektrycznego | Piezosystem Jena | ENV800 | |
| Kapilara ze szkła borokrzemianowego | World Precision Instruments | 1B120F-3 | |
| Nazwa | Company< | strong>Numer katalogowy | Uwagi |
| Do przygotowania jednokomorowego | |||
| Wzmacniacz mikroelektrod | Axon Instruments | AxoClamp 2B | Może być stosowany do jednoczesnego zapisu jonoforezy i mikroelektrod |
| Kołki magnetyczne (x2) | Domowej roboty, patrz lista części | ||
| Komora otwarta z blachą | Domowej roboty, patrz lista części | ||
| Nazwa | Firma | Numer katalogowy | Uwagi |
| Do przygotowania dwukomorowego | |||
| Komora | górnaPlik uzupełniający 1 | ||
| Dolna komora | Plik uzupełniający 2 | ||
| Folia aluminiowa | Fisher Scientific | 01-213-100 | Można użyć innych źródeł |
| Blok | montażowy Plik uzupełniający 3 | ||
| Drewniane patyczki do aplikatora | Fisher Scientific | 23-400-112 | Można użyć innych źródeł |
| Arkusz teflonowy | McMaster-Carr | 8545K12 | Do aplikatora teflonowego |
| Klej cyjanoakrylowy | 3M | 1469SB | |
| Chusteczki laboratoryjne (chusteczki nawilżane) | Fisher Scientific | 06-666A | Można użyć innych źródeł |
| Siarczan gentamycyny | Sigma-Aldrich | G1914 | Można użyć innych źródeł |
| Szybkowiążąca żywica epoksydowa | McMaster-Carr | 7605A18 | |
| Szkiełka nakrywkowe 18 mm | Fisher Scientific | 12-546 | Można korzystać z innych źródeł |
| Nazwa | Company | Numer katalogowy | Komentarze |
| Składniki solne | |||
| NaCl | Fisher Scientific | S271-3 | Można korzystać z innych źródeł |
| KCl | Sigma-Aldrich | P4504-500G | Można użyć innych źródeł |
| CaCl2 • 2H2O | Fisher Scientific | 10035-04-8 | Można użyć innych źródeł |
| HEPES | Sigma-Aldrich | H3375-100G | Można użyć innych źródeł |
| D-(+)-glukoza | Sigma-Aldrich | G7021 | Można użyć |
| innych źródełNazwa | Firma | Numer katalogowy | Komentarze/Opis |
| Listy części do sprzętu domowej roboty | |||
| Ściągacz elektromagnesów | |||
| Solenoid | Guardian Electric | A420-065426-00 | Można użyć innych źródeł |
| Przełącznik nożno-nożny | Linemaster | T-51-SC36 | Można użyć innych źródeł |
| Uchwyt na pipety | World Precision Instruments | MEH900R | Można użyć innych źródeł |
| Manipulator zgrubny | Narishige Group | MM-3 | Można użyć innych źródeł |
| Drut platynowy | Alfa Aesar | 25093 | Można użyć innych źródeł |
| Zasilacz | Leica | Z050-261 | Można korzystać z innych źródeł |
| Nazwa | Firma | Numer katalogowy | Komentarze/Opis |
| Szpilki magnetyczne | |||
| Epoxy | McMaster-Carr | 7556A33 | Można korzystać z innych źródeł |
| Grubość 1 mm aluminium | McMaster-Carr | 89015K45 | Można użyć innych źródeł |
| Szpilki do owadów | Fine Science Tools | 26000-40 | Można użyć innych źródeł |
| Nazwa | Firma | Numer katalogowy | Komentarze/Opis |
| >Magnetyczny otwarty komora | |||
| Elastyczna listwa magnetyczna | McMaster-Carr | 5759K75 | Można użyć innych źródeł |
| aluminium o grubości 1 mm | McMaster-Carr | 89015K45 | Można użyć innych źródeł |
Bibliografia
- Brandon, C. S., Voelkel-Johnson, C., May, L. A., Cunningham, L. L. Dissection of Adult Mouse Utricle and Adenovirus-mediated Supporting-cell Infection. JoVE (Journal of Visualized Experiments). (61), e3734-e3734 (2012).
- Howard, J., Hudspeth, A. J. Compliance of the hair bundle associated with gating of mechanoelectrical transduction channels in the bullfrog's saccular hair cell. Neuron. 1 (3), 189-199 (1988).
- Jaramillo, F., Hudspeth, A. J. Localization of the hair cell's transduction channels at the hair bundle's top by iontophoretic application of a channel blocker. Neuron. 7 (3), 409-420 (1991).
- Assad, J. A., Hacohen, N., Corey, D. P. Voltage dependence of adaptation and active bundle movement in bullfrog saccular hair cells. Proceedings of the National Academy of Sciences of the United States of America. 86 (8), 2918-2922 (1989).
- Benser, M. E., Issa, N. P., Hudspeth, A. J. Hair-bundle stiffness dominates the elastic reactance to otolithic-membrane shear. Hearing research. 68 (2), 243-252 (1993).
- Martin, P., Hudspeth, A. J. Active hair-bundle movements can amplify a hair cell's response to oscillatory mechanical stimuli. Proceedings of the National Academy of Sciences of the United States of America. 96 (25), 14306-14311 (1999).
- Salvi, J. D., Ó Maoiléidigh, D., Fabella, B. A., Tobin, M., Hudspeth, A. J. Control of a hair bundle's mechanosensory function by its mechanical load. Proceedings of the National Academy of Sciences. 112 (9), E1000-E1009 (2015).
- Martin, P., Bozovic, D., Choe, Y., Hudspeth, A. J. Spontaneous Oscillation by Hair Bundles of the Bullfrog's Sacculus. Journal of Neuroscience. 23 (11), 4533-4548 (2003).
- Hudspeth, A. J., Lewis, R. S. A model for electrical resonance and frequency tuning in saccular hair cells of the bull-frog, Rana catesbeiana. The Journal of physiology. 400, 275-297 (1988).
- Hudspeth, A. J., Lewis, R. S. Kinetic analysis of voltage-and ion-dependent conductances in saccular hair cells of the bull-frog, Rana catesbeiana. The Journal of physiology. , (1988).
- Fisher, J. A. N., Kowalik, L., Hudspeth, A. J. Imaging electrical resonance in hair cells. Proceedings of the National Academy of Sciences of the United States of America. 108 (4), 1651-1656 (2011).
- Patel, S. H., Salvi, J. D., Ó Maoiléidigh, D., Hudspeth, A. J. Frequency-selective exocytosis by ribbon synapses of hair cells in the bullfrog's amphibian papilla. The Journal of neuroscience : the official journal of the Society for Neuroscience. 32 (39), 13433-13438 (2012).
- Gale, J. E., Meyers, J. R., Periasamy, A., Corwin, J. T. Survival of bundleless hair cells and subsequent bundle replacement in the bullfrog's saccule. Journal of neurobiology. 50 (2), 81-92 (2002).
- Hudspeth, A. J. Mechanoelectrical transduction by hair cells of the bullfrog's sacculus. Progress in brain research. 80, 129-135 (1989).
- Hudspeth, A. J. Integrating the active process of hair cells with cochlear function. Nature Reviews Neuroscience. 15 (9), 600-614 (2014).
- Corey, D. P., Hudspeth, A. J. Response latency of vertebrate hair cells. Biophysical journal. 26 (3), 499-506 (1979).
- Cheung, E. L. M., Corey, D. P. Ca2+Changes the Force Sensitivity of the Hair-Cell Transduction Channel. Biophysical journal. 90 (1), 124-139 (2006).
- Choe, Y., Magnasco, M. O., Hudspeth, A. J. A model for amplification of hair-bundle motion by cyclical binding of Ca2+ to mechanoelectrical-transduction channels. Proceedings of the National Academy of Sciences of the United States of America. 95 (26), 15321-15326 (1998).
- Assad, J. A., Corey, D. P. An active motor model for adaptation by vertebrate hair cells. Journal of Neuroscience. 12 (9), 3291-3309 (1992).
- Crawford, A. C., Evans, M. G., Fettiplace, R. Activation and adaptation of transducer currents in turtle hair cells. The Journal of physiology. , 405-434 (1989).
- Howard, J., Hudspeth, A. J. Mechanical relaxation of the hair bundle mediates adaptation in mechanoelectrical transduction by the bullfrog's saccular hair cell. Proceedings of the National Academy of Sciences of the United States of America. 84 (9), 3064-3068 (1987).
- Purves, R. D. The release of drugs from iontophoretic pipettes. Journal of Theoretical Biology. 66 (4), 789-798 (1977).
- Tinevez, J. Y., Jülicher, F., Martin, P. Unifying the various incarnations of active hair-bundle motility by the vertebrate hair cell. Biophysical journal. 93 (11), 4053-4067 (2007).
- Ó Maoiléidigh, D., Nicola, E. M., Hudspeth, A. J. The diverse effects of mechanical loading on active hair bundles. Proceedings of the National Academy of Sciences of the United States of America. 109 (6), 1943-1948 (2012).
- Kennedy, H. J., Crawford, A. C., Fettiplace, R. Force generation by mammalian hair bundles supports a role in cochlear amplification. Nature. 433 (7028), 880-883 (2005).
- van Netten, S. M., Khanna, S. M. Stiffness changes of the cupula associated with the mechanics of hair cells in the fish lateral line. Proceedings of the National Academy of Sciences of the United States of America. 91 (4), 1549-1553 (1994).
- Bormuth, V., Barral, J., Joanny, J. F., Jülicher, F., Martin, P. Transduction channels' gating can control friction on vibrating hair-cell bundles in the ear. Proceedings of the National Academy of Sciences of the United States of America. 111 (20), 7185-7190 (2014).
- Crawford, A. C., Evans, M. G., Fettiplace, R. The actions of calcium on the mechano-electrical transducer current of turtle hair cells. The Journal of physiology. , 369-398 (1991).
- Kozlov, A. S., Risler, T., Hudspeth, A. J. Coherent motion of stereocilia assures the concerted gating of hair-cell transduction channels. Nature Neuroscience. 10 (1), 87-92 (2007).
- Lumpkin, E. A., Hudspeth, A. J. Regulation of free Ca2+ concentration in hair-cell stereocilia. Journal of Neuroscience. 18 (16), 6300-6318 (1998).
Przedruki i uprawnienia
