Tkankowa matryca zewnątrzkomórkowa (ECM) jest kluczowym mediatorem funkcji komórki. W artykule opisano metody syntezy czystych pianek i mikronośników pochodzących z ECM, które są stabilne w hodowli bez konieczności sieciowania chemicznego do zastosowań w zaawansowanych modelach hodowli komórkowych 3D in vitro lub jako proregeneracyjne biorusztowania.
Artykuł metodologiczny
Wytwarzanie pianek i mikronośników pochodzących z macierzy zewnątrzkomórkowej jako specyficznych tkankowo platform do hodowli i dostarczania komórek
W tym artykule
Podsumowanie
Streszczenie
Funkcja komórki jest pośredniczona przez interakcje z macierzą zewnątrzkomórkową (ECM), która ma złożony skład i architekturę specyficzną dla tkanki. Niniejszy artykuł koncentruje się na metodach wytwarzania porowatych pianek i mikronośników pochodzących z ECM do stosowania jako biologicznie istotne podłoża w zaawansowanych modelach hodowli komórkowych 3D in vitro lub jako proregeneracyjne rusztowania i systemy dostarczania komórek w inżynierii tkankowej i medycynie regeneracyjnej. Wykorzystując pozbawione komórek tkanki lub oczyszczony nierozpuszczalny kolagen jako materiał wyjściowy, techniki te można zastosować do syntezy szerokiej gamy biorusztowań specyficznych dla tkanek o dostosowywalnej geometrii. Podejście to obejmuje obróbkę mechaniczną i łagodne trawienie enzymatyczne w celu uzyskania zawiesiny ECM, która jest używana do wytwarzania trójwymiarowych pianek lub mikronośników poprzez kontrolowane procedury zamrażania i liofilizacji. Te czyste rusztowania pochodzące z ECM są wysoce porowate, a jednocześnie stabilne bez potrzeby stosowania chemicznych środków sieciujących lub innych dodatków, które mogą negatywnie wpływać na funkcjonowanie komórek. Właściwości rusztowania można do pewnego stopnia dostroić za pomocą różnych czynników, takich jak stężenie zawiesiny ECM, metody obróbki mechanicznej lub warunki syntezy. Ogólnie rzecz biorąc, rusztowania są wytrzymałe i łatwe w obsłudze i mogą być przetwarzane jako tkanki dla większości standardowych testów biologicznych, zapewniając wszechstronną i przyjazną dla użytkownika platformę do hodowli komórek 3D, która naśladuje natywną kompozycję ECM. Ogólnie rzecz biorąc, te proste metody wytwarzania niestandardowych pianek i mikronośników pochodzących z ECM mogą być interesujące zarówno dla biologów, jak i inżynierów biomedycznych jako specyficzne tkankowo platformy instruktażowe dla komórek do zastosowań in vitro i in vivo.
Wprowadzenie
Macierz pozakomórkowa (ECM) składa się ze złożonej trójwymiarowej sieci białek, glikoprotein i polisacharydów1. Choć niegdyś uważano ją głównie za rusztowanie strukturalne, obecnie powszechnie uznaje się, że ECM zawiera szeroką gamę bioaktywnych cząsteczek o istotnych rolach funkcjonalnych2. Oddziaływania między komórkami a ECM mogą kierować przeżywalnością, adhezją, migracją, proliferacją i różnicowaniem komórek3. Mimo że główne klasy makrocząsteczek ECM są zazwyczaj dobrze zachowane we wszystkich tkankach i gatunkach, każda tkanka posiada unikalny skład i architekturę macierzy4. W ujęciu ogólnym, specyficzna dla danej tkanki ECM zapewnia instruktywne mikrośrodowisko, które pośredniczy w funkcjach na poziomie od podkomórkowym aż po skalę tkanki lub narządu5.
Ze względu na kluczową rolę macierzy zewnątrzkomórkowej (ECM) w pośredniczeniu funkcji komórkowych, rośnie zainteresowanie opracowywaniem biotruszczań pochodzących z ECM do zastosowań w inżynierii tkankowej i medycynie regeneracyjnej. W szczególności szeroko badana była metoda decelularyzacji jako sposób pozyskiwania ECM z szerokiego zakresu tkanek w celu wykorzystania jej jako materiału rusztowaniowego do regeneracji tkanek i dostarczania komórek5,6,7. Decelularyzacja zazwyczaj obejmuje serię etapów obróbki mechanicznej, chemicznej i/lub biologicznej nakierowanych na usunięcie komórek i ich składników, przy jednoczesnym dążeniu do minimalnych zmian w strukturze 3D i składzie ECM8. Przegląd literatury pozwala zidentyfikować różne protokoły decelularyzacji dla niemal każdej tkanki w organizmie7.
Choć tkanki zdecelularyzowane mogą być stosowane bezpośrednio jako implantowalne rusztowania lub podłoża do 3D hodowli komórkowych, infiltracja komórkowa może być ograniczona w tkankach o gęstej strukturze ECM9. Ponadto naturalna heterogeniczność ECM może powodować zmienność w przytwierdzianiu i rozkładzie komórek w obrębie macierzy zdecelularyzowanych, co potencjalnie może wpływać na odpowiedź komórkową10. Podsumowując, mimo że zastosowanie tkanek zdecelularyzowanych w ich nienaruszonej formie jest obiecujące w niektórych aplikacjach, oferuje ono ograniczoną wszechstronność w zakresie dostrajania właściwości rusztowania, takich jak kształt, porowatość i sztywność, a także sposobu aplikacji in vivo.
Aby obejść te ograniczenia, liczne grupy badawcze stosują dodatkowe metody przetwarzania w celu generowania spersonalizowanych formatów rusztowań, wykorzystując tkanki odkomórkowione jako materiał bazowy. W najprostszej formie może to polegać na kriomieleniu tkanek odkomórkowanych w celu uzyskania wstrzykiwalnych, tkankowo specyficznych cząsteczek ECM11. Cząsteczki ECM te mogą być włączone jako komponent instruujący komórki do rusztowań kompozytowych z innymi biomateriałami, takimi jak hydrożele sieciowane in situ12,13,14. Oprócz obróbki mechanicznej, tkanki odkomórkowane mogą być również poddawane trawieniu enzymatycznemu za pomocą enzymów proteolitycznych i/lub glikolitycznych w celu wytwarzania hydrożeli, pianek, mikronośników i powłok pochodnych ECM15,16,17, a także do syntezy biotuszów do druku 3D18.
Oprócz zastosowań w inżynierii tkankowej, bioszkielety pochodne od ECM wykazują ogromny potencjał w tworzeniu modeli in vitro o wyższej wierności do badań biologicznych. Istnieje znacząca potrzeba opracowania systemów 3D hodowli komórkowych, które lepiej odwzorowują naturalne mikrośrodowisko komórkowe19. Większość dotychczasowych badań nad hodowlami komórkowymi in vitro prowadzono na polistyrenie do hodowli tkankowej (TCPS), który ma niewielką korelację z biologicznie złożonym i dynamicznym środowiskiem komórkowym występującym w żywych tkankach20. Choć hodowla komórek na tych uproszczonych, sztywnych podłożach 2D jest wygodna do badania oddziaływań komórkowych w kontrolowanym środowisku, zmienia ona przywieranie i morfologię komórek, a także interakcje międzykomórkowe oraz interakcje komórka-ECM21,2. Adaptacje komórkowe obserwowane na 2D TCPS mogą wpływać na wewnątrzkomórkowe szlaki sygnałowe regulujące różnorodne funkcje komórkowe, w tym przeżywalność, proliferację, migrację i różnicowanie, co budzi pytania o zasadność stosowania badań 2D w modelowaniu systemów in vivo23. Coraz częściej uznaje się, że zachowanie komórek może znacznie różnić się w systemach 2D w stosunku do 3D24, a sygnalizacja biochemiczna i biomechaniczna z ECM jest kluczowym mediatorem funkcji komórkowych25. Wiele zespołów próbowało przezwyciężyć ograniczenia ugruntowanych systemów 2D poprzez powlekanie TCPS komponentami ECM, takimi jak kolagen, laminina i fibronektyna. Chociaż strategie te mogą poprawić przywieranie komórek i mogą zmieniać odpowiedzi komórkowe, modele te pozostają ograniczone przez swoją konfigurację 2D, która nie naśladuje złożonej organizacji przestrzennej ani biochemii naturalnego ECM26,27.
Nasze laboratorium bioinżynieryjne interesuje się opracowywaniem bioszkieletów pochodzących z macierzy zewnątrzkomórkowej (ECM) jako podłoży do 3D hodowli komórkowych oraz zastosowań w inżynierii tkankowej. W szczególności pioniersko wprowadziliśmy zastosowanie decelularyzowanej tkanki tłuszczowej (DAT) jako platformy rusztowaniowej dla regeneracji tkanki tłuszczowej28. Ponadto opracowaliśmy metody syntezy 3D mikronośników i pianek porowatych z wykorzystaniem DAT trawionej enzymem proteolitycznym pepsyną lub enzymem glikolitycznym α-amylazą29,30,31. Wykazaliśmy we wszystkich tych formatach rusztowań, że ECM pochodząca z tkanki tłuszczowej zapewnia indukcyjne mikrośrodowisko dla różnicowania adypogenicznego ludzkich komórek macierzystych/stromalnych pochodzenia tłuszczowego (ASCs) w hodowli. Niedawno rozszerzyliśmy nasze metody wytwarzania w celu generowania 3D pianek porowatych z porcine decelularyzowanej lewej komory (DLV) trawionej α-amylazą (metody decelularyzacji zaadaptowane od Wainwright et al.32) i wykazaliśmy, że stanowią one wspierającą platformę do indukowania wczesnej ekspresji markerów kardiomiogennych w ludzkich ASCs pochodzących z tłuszczu osierdziowego31.
Niniejszy artykuł szczegółowo opisuje metody syntezy nie sieciowanych chemicznie trójwymiarowych porowatych pianek oraz mikronośników pochodzących wyłącznie z ECM trawionej α-amylazą, przeznaczonych do zastosowania jako biologicznie złożone trójwymiarowe podłoża do hodowli komórkowych in vitro oraz jako biomateriały do regeneracji tkanek. Teoretycznie dowolne źródło ECM zawierające kolagen o wysokiej masie cząsteczkowej może służyć jako materiał wyjściowy dla tych technik. Aby wykazać elastyczność tego podejścia, metody te zastosowano do wytworzenia specyficznych dla tkanek bioscaffoldów, wykorzystując jako reprezentatywne przykłady ludzką tkankę DAT, wieprzową odkomórkowaną tkankę skórną (DDT)8 oraz wieprzowe DLV. Rycina 1 przedstawia wizualny przegląd procesu produkcji pianek i mikronośników pochodzących z ECM.
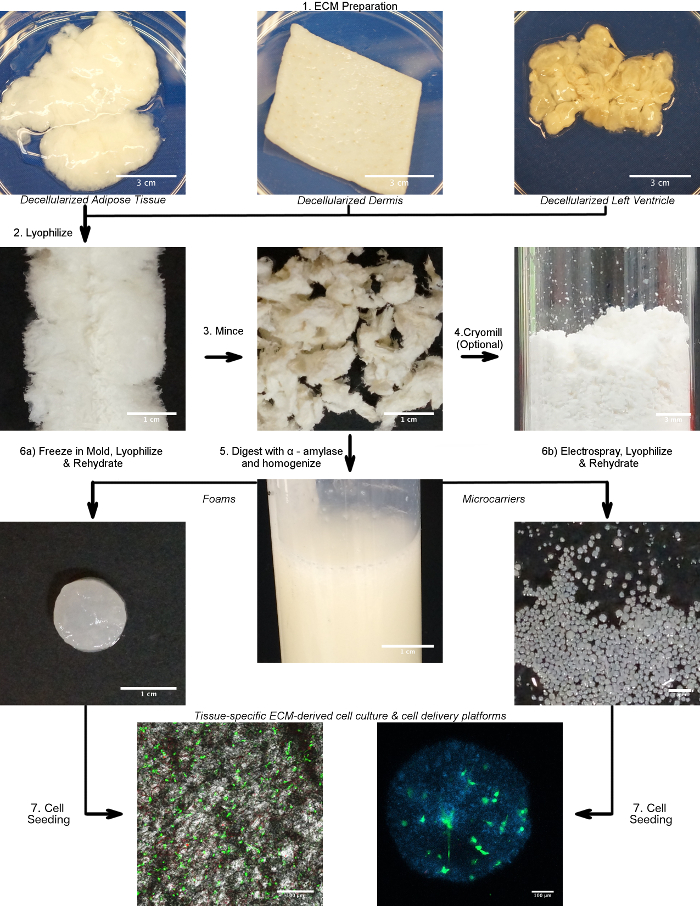
Rycina 1. Przegląd metody wytwarzania pianek i mikronośników pochodzących z macierzy zewnątrzkomórkowej (ECM) specyficznych dla danej tkanki. 1. Tkanki zdecelularyzowane, przygotowane zgodnie z uznanymi protokołami decelularyzacji, mogą być wykorzystywane do wytwarzania bioszkieletów pochodnych z ECM specyficznych dla danej tkanki. Przedstawiono obrazy makroskopowe nawodnionej ludzkiej DAT (przygotowanej zgodnie z opisem w Flynn 2010)28), świński DDT (przygotowany zgodnie z opisem w pracy Reing, J. E., i in.. 20108), oraz świńskiego DLV (przygotowanego zgodnie z opisem Wainwrighta i wsp. 201032), jako reprezentatywne przykłady źródeł ECM, które mogą służyć jako materiały wyjściowe. Paski skali odpowiadają 3 cm. 2. Zdecelularyzowane tkanki poddaje się liofilizacji, a następnie 3. mechanicznie rozdrobnione. Paski skali odpowiadają 1 cm. 4. Rozdrobnioną ECM można następnie poddać kriomieleniu, co jest opcjonalne w przypadku wytwarzania pianek, lecz wymagane przy syntezie mikronośników. Pasek skali odpowiada 3 mm. 5. Rozdrobnioną lub kriomieloną macierz zewnątrzkomórkową (ECM) trawiono następnie α-amylazą i homogenizowano w celu uzyskania jednorodnej zawiesiny ECM. Pasek skali odpowiada 1 cm. 6a) W celu wytworzenia pianki zawiesinę ECM przenosi się do formy o zdefiniowanym kształcie, zamraża, a następnie liofilizuje, aby uzyskać porowaty rusztowanie 3D o określonej geometrii. Pasek skali odpowiada 1 cm. 6b) W celu wytwarzania mikronośników zawiesinę ECM poddaną kriomieleniu rozpyla się elektrostatycznie, aby uzyskać oddzielne sferyczne mikronośniki. Pasek skali odpowiada 2 mm. 7. Następnie pianki i mikronośniki można stopniowo rehydratować i zasiedlać komórkami. Przedstawiono reprezentatywne obrazy ludzkich ASC (żywe komórki = zielone), zasiedlonych na piance DAT (po lewej) oraz mikronośniku DAT (po prawej). Paski skali oznaczają 100 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Protokół
1. Obróbka tkanki decelularyzowanej
- Decelularyzacja i liofilizacja
- Przeprowadzić decelularyzację wybranych tkanek zgodnie z uznanym protokołem.
UWAGA: Rusztowania w niniejszym badaniu zostały przygotowane zgodnie z opublikowanymi protokołami decelularyzacji dla ludzkiego DAT28, świni DDT8 oraz świni DLV32. Do wytwarzania pianek i mikronośników można również użyć komercyjnie dostępnego nierozpuszczalnego kolagenu, np. kolagenu pozyskanego z ścięgna bydlęcego, który z sukcesem stosowano w zakresie stężeń od 10 do 50 mg/mL. Można wykorzystać inne źródła nierozpuszczalnego kolagenu, jednak mogą one wymagać optymalizacji w celu ustalenia zakresu stężeń, które zapewnią stabilność rusztowań. - Przenieść uwodnioną zdecelularyzowaną tkankę lub oczyszczony kolagen pęsetą do probówki wirówkowej o pojemności 50 mL i dodać odpowiednią ilość podwójnie destylowanej wody (ddH2O), aby zanurzyć tkankę, do maksymalnej objętości całkowitej 35 mL.
- Zamrozić próbkę przez noc w temperaturze -80 °C, ustawiając probówkę wirówkową poziomo podczas mrożenia, aby zmaksymalizować powierzchnię sublimacji podczas późniejszej liofilizacji.
- Zdjąć zakrętkę z probówki wirówkowej i przenieść zamrożoną próbkę do naczynia liofilizacyjnego.
- Liofilizować próbkę w laboratoryjnej liofilizatorze przez 48 - 72 h lub do całkowitego wysuszenia.
UWAGA: Czas suszenia może się różnić w zależności od urządzenia liofilizującego i rodzaju zdecelularyzowanych tkanek. - Rozdrobić liofilizowane ECM na małe kawałki (~ 1 - 2 mm3) za pomocą ostrych nożyczek chirurgicznych.
- Przechowywać rozdrobnione ECM w eksykanie do czasu dalszej obróbki.
UWAGA: Zaleca się natychmiastowe wykorzystanie rozdrobnionego ECM, aby zapobiec absorpcji wilgoci z otoczenia.
- Przeprowadzić decelularyzację wybranych tkanek zgodnie z uznanym protokołem.
- Kriomielenie (opcjonalne przy wytwarzaniu pianek)
- Wypełnić 25 mL stalową komorę mielącą laboratoryjnego młyna kulowego rozdrobnionym liofilizowanym ECM i dodać dwie stalowe kule mielące o średnicy 10 mm.
- Zamknąć i całkowicie zanurzyć załadowaną komorę mielącą w ciekłym azocie na 3 min.
- Mielić zamrożoną próbkę przez 3 min przy 30 Hz (1 80 obr./min).
- Powtarzać kroki 1.2.2 i 1.2.3, aż ECM zostanie zmielony na drobny proszek.
UWAGA: Liczba powtórzeń tych kroków może się różnić w zależności od źródła ECM. Na przykład DAT zazwyczaj wymaga 3 cykli mielenia w celu uzyskania drobnego proszku. - Przenieść proszek za pomocą szpatułki do szklanej ampułki, szczelnie zamknąć i przechowywać w eksykanie.
- Przygotowanie zawiesiny ECM
- Odważyć 250 mg rozdrobnionego (dla pianek) lub kriomielonego (dla pianek lub mikronośników) ECM i przenieść do probówki wirówkowej 15 mL. W celu przygotowania rozdrobnionego ECM i kriomielonego ECM należy odnieść się odpowiednio do kroku 1.1.6 i sekcji 1.2.
UWAGA: Niniejszy protokół służy do przygotowania zawiesiny ECM o stężeniu 50 mg/mL, co jest zalecane dla ludzkiego DAT, świni DDT i świni DLV. W zależności od konkretnego źródła ECM jednorodne zawiesiny można uzyskać przy wyższych lub niższych stężeniach początkowych. - Dodać do probówki wirówkowej 5 mL buforu 0,2 M NaH2PO4 (pH 5,4) i zaznaczyć poziom cieczy na probówce.
- Przygotować roztwór zapasowy α-amylazy, dodając 7,5 mg α-amylazy do 1 mL buforu 0,2 M NaH2PO4 (pH 5,4). Dodać 10 μL roztworu zapasowego α-amylazy (0,75 mg α-amylazy; 0,3% m/m suchej tkanki) do próbki. Dodać 0,2 M NaH2PO4, aby uzyskać objętość końcową 10 mL.
- Mieszać zawiesinę w sposób ciągły przy 30 obr./min przez 72 h w temperaturze pokojowej.
- Wirować zawiesinę przy 1 50 x g przez 10 min. Ostrożnie zebrać i odrzucić nadsącz, nie naruszając osadu z trawionego ECM. Resuspender materiał w 10 mL 5% NaCl rozcieńczonego w ddH2O.
- Powtarzać krok 1.3.5 łącznie dwukrotnie w celu wypłukania 5% NaCl w ddH2O.
- Odrzucić nadsącz i resuspender materiał w 10 mL ddH2O.
- Mieszać zawiesinę w sposób ciągły przy 30 obr./min przez 10 min w temperaturze pokojowej.
- Wirować zawiesinę przy 1 50 x g przez 10 min. Ostrożnie zebrać i odrzucić nadsącz, nie naruszając osadu z trawionego ECM.
- Dodać kwas octowy 0,2 M do poziomu 5 mL zaznaczonego w kroku 1.3.2.
- Mieszać zawiesinę w sposób ciągły przy 120 obr./min przez noc w temperaturze 37 °C.
- Homogenizować zawiesinę ECM w temperaturze pokojowej w dziesięciosekundowych odstępach czasu, używając homogenizatora ręcznego wyposażonego w ząbkowaną sondę o szerokości 10 mm, aż do całkowitego zaniku widocznych fragmentów. Między interwałami homogenizacji umieszczać zawiesinę w zlewce z zimną wodą, aby zapobiec przegrzaniu.
UWAGA: W zależności od źródła ECM może być wymagane dalsze rozcieńczenie kwasem octowym 0,2 M w celu uzyskania jednorodnej zawiesiny. Nadmierne chłodzenie zawiesiny ECM może prowadzić do zwiększenia lepkości, co może utrudnić efektywną homogenizację. W przypadku zauważenia wzrostu lepkości próbkę można ponownie ogrzać do 37 °C i poddać dalszej obróbce. - Przechowywać w temperaturze 4 °C do jednego miesiąca przed wytwarzaniem pianek lub mikronośników.
- Odważyć 250 mg rozdrobnionego (dla pianek) lub kriomielonego (dla pianek lub mikronośników) ECM i przenieść do probówki wirówkowej 15 mL. W celu przygotowania rozdrobnionego ECM i kriomielonego ECM należy odnieść się odpowiednio do kroku 1.1.6 i sekcji 1.2.
2. Wytwarzanie pianki pochodzącej z ECM
- Inkubować zawiesinę ECM z kroku 1.3.13 (posiekaną lub mrożoną w młynku kriogenicznym) w temperaturze 37 °C przy ciągłym mieszaniu przy 120 rpm, aż zawiesina się ogrzeje.
- Rozcieńczyć zawiesinę ECM w 0,2 M kwasie octowym do pożądanego stężenia.
UWAGA: W zależności od źródła ECM, stabilne pianki można przygotować w zakresie 10 - 100 mg/mL, przy czym zalecanym zakresem dla DAT, DDT i DLV jest 15 - 50 mg/mL. Zazwyczaj pianki wytwarzane przy wyższych stężeniach będą nieco mniej porowate, ale bardziej stabilne w hodowli i łatwiejsze w obsłudze. - Używając strzykawki 3 mL z igłą 18 G, aby zapobiec tworzeniu się pęcherzyków w zawiesinie ECM, wypełnić wybraną formę zawiesiną ECM. Aby wytworzyć pianki DAT, DDT i DLV, nalać 40 μL zawiesiny ECM o stężeniu 35 mg/mL do płytki 48-dołkowej przeznaczonej do hodowli komórkowej.
UWAGA: Kształt wybranej formy oraz objętość zawiesiny ECM determinują geometrię otrzymanej pianki. - Przykryć i zamrozić formy przez noc, umieszczając je w zamrażarce o temperaturze -20 °C lub -80 °C.
UWAGA: Temperatura mrożenia może wpływać na porowatość pianek. Przewiduje się powstanie większych porów, gdy próbki są mrożone w -20 °C w porównaniu do -80 °C ze względu na tworzenie się większych kryształów lodu3. Aby wytworzyć pianki o jednorodnej strukturze porowatej, należy upewnić się, że forma nie styka się z powierzchnią przewodzącą, aby zapobiec chłodzeniu kierunkowemu. - Umieścić formy zawierające zamrożone próbki w kolbie liofilizatora. Podłączyć kolbę liofilizatora do laboratoryjnego systemu liofilizacji i suszyć przez 24 h.
UWAGA: Ważne jest, aby próbka pozostała zamrożona przed liofilizacją. - Przechowywać liofilizowane pianki w eksykanym do czasu użycia.
3. Wytwarzanie mikronośników pochodnych z ECM metodą elektrosprayingu
UWAGA: Przegląd układu do elektrosprayingu przedstawiono na Rysunku 2.
- Inkubować zawiesinę ECM poddaną kriomieleniu z etapu 1.3.13 w temperaturze 37 °C przy ciągłym mieszaniu przy 10 rpm przez noc (O/N).
UWAGA: ECM poddane kriomieleniu jest wykorzystywane do wytwarzania mikronośników pochodzących z ECM, aby zapewnić większą jednorodność zawiesiny i zapobiec zatykaniu podczas elektrozraszania. - Nabrać 3 mL zawiesiny ECM do strzykawki z zatorem Luer lock o pojemności 3 mL i przymocować zestaw do infuzji z „skrzydełkami” do otworu strzykawki.
UWAGA: Można stosować igły o różnych rozmiarach (G), mając na uwadze, że wybór ten może wpłynąć na rozmiar i kształt powstałych mikronośników. Do wytwarzania mikronośników DAT, DDT i DLV należy użyć igły 25 G. - Zabezpieczyć strzykawkę w pompie strzykawkowej. Przymocować igłę do statywu laboratoryjnego i ustawić końcówkę igły pionowo w odległości 4 - 6 cm od górnej krawędzi niskiego naczynia Dewar (rekomendowany zakres pojemności 250 - 50 mL).
- Przymocować elektrodę z klipsem typu „krokodylek” do końcówki igły i podłączyć ją do bieguna dodatniego zasilacza wysokiego napięcia.
- Zagiąć pasek folii aluminiowej (12 x 5 cm) nad krawędzią kolby próżniowej.
- Przymocować drugą elektrodę z klipsem typu „krokodylek” do zewnętrznej krawędzi folii i podłączyć ją do zacisku uziemiającego zasilacza.
- Napełnić naczynie Dewar ciekłym azotem do poziomu około 1 cm od góry, tak aby ¾ folii była zanurzona.
UWAGA: Ważne jest, aby naczynie Dewar pozostawało wypełnione ciekłym azotem. Powierzchnia ciekłego azotu musi znajdować się nie mniej niż 2 cm od góry naczynia podczas procesu elektrozraszania. Wymagane jest ciągłe uzupełnianie ciekłego azotu w celu utrzymania stałego poziomu podczas elektrozraszania. - Ustawić pompę strzykawkową na szybkość infuzji 30 mL/h.
UWAGA: Zmiana szybkości infuzji może zmienić kształt i średnicę mikronośników, jednak zalecany zakres to 25 - 35 mL/h. Choć zależy to w dużej mierze od lepkości zawiesiny, szybkości przepływu poniżej 25 mL/h mogą prowadzić do generowania większych mikronośników. Przy bardzo niskich szybkościach przepływu rozmiar i kształt mikronośników mogą stać się mniej jednorodne. Przy szybkościach infuzji powyżej 35 mL/h jednorodność kropli generowanych poprzez elektrozraszanie może zostać zaburzona, co doprowadzi do powstania niesferycznych mikronośników o szerszym rozkładzie wielkości34. - Przyłożyć napięcie 20 kV i uruchomić pompę strzykawkową, aby rozpocząć elektrozraszanie.
UWAGA: Napięcie można zmieniać, aby dostosować rozmiar mikronośników; ma ono zazwyczaj większy wpływ na średnicę niż szybkość infuzji. Zalecany zakres napięcia to 15 - 25 kV. Wraz ze wzrostem napięcia spodziewany jest spadek średnicy mikronośników35. - Po zakończeniu infuzji ostrożnie odlać nadmiar ciekłego azotu z naczynia Dewar, pozostawiając mikronośniki zawieszone w ok. 25 mL ciekłego azotu, aby zapewnić ich zamrożenie.
- Niezwłocznie przenieść mikronośniki wraz z ciekłym azotem do probówki wirówkowej 50 mL, wlewając je jednym płynnym ruchem. Zebrac wszelkie zamrożone mikronośniki pozostałe w naczyniu Dewar za pomocą szpatułki i dodać je do probówki wirówkowej.
UWAGA: W zależności od rozmiaru naczynia Dewar mikronośniki w ciekłym azocie można początkowo przelać do naczynia średniej wielkości, a następnie niezwłocznie przenieść do probówki wirówkowej 50 mL. - Przykryć probówkę wirówkową zawierającą mikronośniki w ciekłym azocie folią aluminiową z małymi otworami w przygotowaniu do liofilizacji.
- Umieścić przykryte probówki wirówkowe w kolbie liofilizatora. Natychmiast podłączyć kolbę do liofilizatora i suszyć próbki przez noc (O/N).
UWAGA: Bardzo ważne jest, aby mikronośniki pozostawały zawieszone w ciekłym azocie, by zapobiec ich rozmrożeniu przed tym etapem, ponieważ rozmrożenie może doprowadzić do zapadnięcia się i/lub agregacji. Mikronośniki DAT, DDT i DLV wytworzone przy stężeniu 35 mg/mL zgodnie z opisanymi powyżej warunkami elektrozraszania będą zazwyczaj miały średnicę uwodnioną w zakresie od 350 - 500 μm. Rozkład wielkości może się różnić w zależności od źródła ECM. - Przechowywać liofilizowane mikronośniki w eksykatorze do czasu użycia.
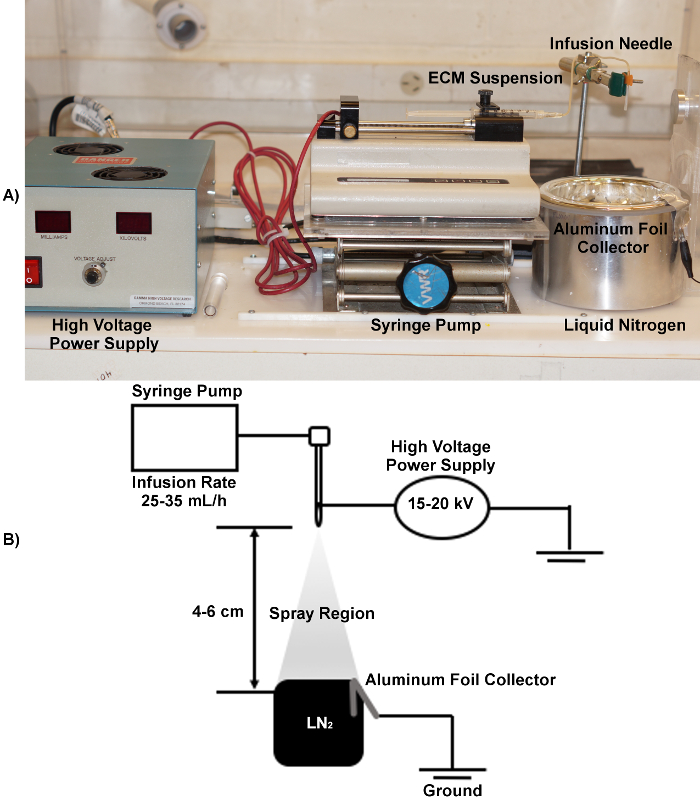
Rysunek 2. Przegląd aparatury do elektrosprayu wykorzystywanej do wytwarzania mikronośników. ARysunek przedstawiający rozmieszczenie kluczowego sprzętu do elektrosprayingu, w tym pompy strzykawkowej i zasilacza wysokiego napięcia, a także pozycję igły względem naczynia Dewar z ciekłym azotem. BSchemat elektrosprayingu, zawierający zalecane zakresy napięcia, szybkości infuzji oraz odległości. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
4. Przygotowanie pianek i mikronośników do hodowli komórkowej
- Rehydratacja
- Przenieść liofilizowane pianki za pomocą pęsety do probówki wirówki o pojemności 50 mL zawierającej nadmiar etanolu bezwodnego (~ 9,9%) (stosunek etanolu do pianek ok. 5:1). W podobny sposób resuspender liofilizowane mikronośniki w nadmiarze etanolu bezwodnego w oryginalnej probówce wirówki użytej do ich zbierania. Za pomocą pipety serologicznej przefiltrować mikronośniki przez stalowe sito o określonej wielkości oczek do nowej probówki wirówki 50 mL, aby usunąć agregaty i wyselekcjonować pożądane zakresy wielkości.
UWAGA: Jeśli pianki zostały wykonane w płytkach TCPS, można je rehydratować bezpośrednio w tych naczyniach. - Inkubować w temperaturze 4 °C przez 4 h lub do momentu, aż pianki lub mikronośniki opadną pod wpływem grawitacji na dno probówki wirówki. Wszystkie kolejne kroki należy wykonywać w komorze z laminarnym przepływem powietrza, używając sterylnych odczynników i właściwej techniki aseptycznej.
- Usunąć etanol bezwodny za pomocą pipety serologicznej i dodać do rusztowań nadmiar (stosunek 5:1) 95% etanolu rozcieńczonego sterylnym roztworem soli fizjologicznej z buforem fosforanowym (PBS). Inkubować w temperaturze 4 °C przez 4 h lub do momentu, aż rusztowania pochodne z ECM opadną na dno naczynia do rehydratacji.
- Stopniowo rehydratować rusztowania poprzez serię rozcieńczeń etanolu (90, 85, 80, 75, 70, 50, 25 i 0%, rozcieńczonych sterylnym PBS). Na każdym etapie inkubować w temperaturze 4 °C aż do opadnięcia rusztowań na dno naczynia przed wymianą roztworu. Odgazować rusztowania pod lekką próżnią w przypadku zaobserwowania tworzenia się pęcherzyków powietrza wewnątrz rusztowań.
- Wymienić sterylny PBS w ramach dwóch dodatkowych płukań w celu usunięcia resztek etanolu.
- Przechowywać w 100% sterylnym PBS w temperaturze 4 °C do czasu rozpoczęcia hodowli komórkowej. Rusztowania należy wykorzystać w ciągu 1–2 tygodni po rehydratacji.
- Przenieść liofilizowane pianki za pomocą pęsety do probówki wirówki o pojemności 50 mL zawierającej nadmiar etanolu bezwodnego (~ 9,9%) (stosunek etanolu do pianek ok. 5:1). W podobny sposób resuspender liofilizowane mikronośniki w nadmiarze etanolu bezwodnego w oryginalnej probówce wirówki użytej do ich zbierania. Za pomocą pipety serologicznej przefiltrować mikronośniki przez stalowe sito o określonej wielkości oczek do nowej probówki wirówki 50 mL, aby usunąć agregaty i wyselekcjonować pożądane zakresy wielkości.
- Przygotowanie do zasiewu komórek
- W dniu poprzedzającym zasiew przenieść pianki za pomocą pęsety do płytek wielodołkowych przeznaczonych do hodowli komórkowej lub wkładów transwell i dodać wystarczającą ilość pożywki do hodowli komórkowej (wybranej w zależności od rodzaju komórek), aby całkowicie zanurzyć rusztowania (np. 2,5 mL/rusztowanie w płytce 12-dołkowej). Analogicznie pozwolić mikronośnikom opaść pod wpływem grawitacji w probówce wirówki, ostrożnie usunąć PBS za pomocą pipety serologicznej, niezakłócając mikronośników, i dodać pożywkę do hodowli komórkowej w celu uzyskania stosunku pożywki do mikronośników 5:1.
UWAGA: Do zasiewu ludzkich komórek ASC należy użyć pożywki DMEM (Dulbecco's Modified Eagle's medium):mieszaniny odżywczej Ham's F12 uzupełnionej o 10% płodowej surowicy bydlęcej (FBS) i 1% penicyliny-streptomycyny. - Wymienić pożywkę do hodowli komórkowej raz w celu wypłukania.
- Równoważyć rusztowania przez noc w pożywce do hodowli komórkowej w temperaturze 37 °C. Rusztowania będą gotowe do zasiewu komórek następnego dnia.
UWAGA: Pianki można zasiewać statycznie we wkładach do hodowli komórkowej lub płytkach wielodołkowych do hodowli tkanek29, lub dynamicznie przy użyciu laboratoryjnego wytrząsarki36. W zależności od źródła ECM, metod przetwarzania i stężenia zawiesiny, zasiew dynamiczny może poprawić początkową adhezję, proliferację i infiltrację komórek. Mikronośniki można zasiewać dynamicznie przy użyciu systemu hodowli w spinnerze1.
- W dniu poprzedzającym zasiew przenieść pianki za pomocą pęsety do płytek wielodołkowych przeznaczonych do hodowli komórkowej lub wkładów transwell i dodać wystarczającą ilość pożywki do hodowli komórkowej (wybranej w zależności od rodzaju komórek), aby całkowicie zanurzyć rusztowania (np. 2,5 mL/rusztowanie w płytce 12-dołkowej). Analogicznie pozwolić mikronośnikom opaść pod wpływem grawitacji w probówce wirówki, ostrożnie usunąć PBS za pomocą pipety serologicznej, niezakłócając mikronośników, i dodać pożywkę do hodowli komórkowej w celu uzyskania stosunku pożywki do mikronośników 5:1.
Wyniki
W niniejszym badaniu opracowaliśmy pianki i mikronośniki pochodne z ECM, wykorzystując ludzką DAT, świńską DDT oraz świńską DLV jako reprezentatywne przykłady wykazujące, że opisane techniki można zastosować do wytwarzania tkankowo specyficznych bioszkieletów z wykorzystaniem różnych tkanek odkomórkowanych jako źródeł ECM (Rycina 1). W przypadku produkcji zarówno pianek, jak i mikronośników, zaadaptowano technikę Nishihary dotyczącą solubilizacji kolagenu za pomocą enzymu glikolitycznego α-amylase37, aby uzyskać lepką zawiesinę ECM z wyjściowych materiałów tkanki odkomórkowanej, która jest następnie wykorzystywana do syntezy bioszkieletów poprzez kontrolowane procedury zamrażania i liofilizacji.
Aby wytworzyć pianki, tkanki zdecelularyzowane można poddać rozdrobnieniu mechanicznemu lub kriomieleniu w celu zwiększenia powierzchni przed trawieniem enzymatycznym. Po zastosowaniu α-amylazy i homogenizacji, otrzymaną zawiesinę ECM dozuje się do formy o określonym kształcie, którą następnie zamraża i liofilizuje. Rusztowania można stabilnie przechowywać w stanie suchym przez dłuższy czas. Przed użyciem w badaniach hodowli komórkowych liofilizowane rusztowania muszą zostać poddane kontrolowanemu procesowi rehydratacji, w wyniku którego powstają porowate, silnie nawodnione i homogeniczne pianki pochodzące z czystego ECM (Rysunek 3A). Jeśli pianki zostaną zrehydratowane zbyt szybko, gwałiczne pęcznienie może uszkodzić delikatne elementy strukturalne, co doprowadzi do utraty integralności i zapadnięcia się struktury. Ogólnie pianki po rehydratacji zachowują kształt nadany przez oryginalną formę i są stabilne bez konieczności chemicznego sieciowania. Rysunek 3B przedstawia reprezentatywne obrazy z transmisyjnego mikroskopu elektronowego (SEM) pianek DAT, DDT i DLV wytworzonych z kriomielonego ECM o stężeniu 35 mg/mL i temperaturze zamrażania -80 °C.
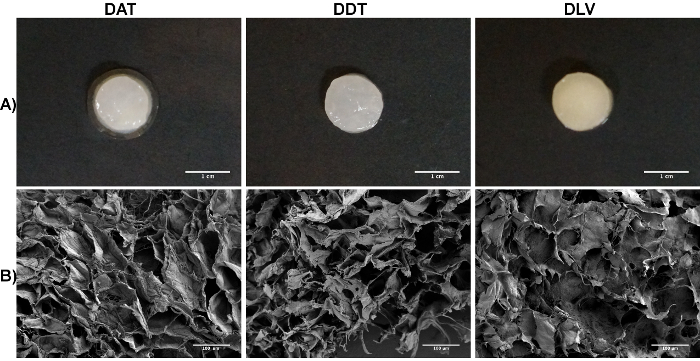
Rysunek 3. Reprezentatywne obrazy pianek DAT, DDT i DLV wykonanych z zawiesin ECM poddanych kriomieleniu przy stężeniu 35 mg/ml i zamrożonych w temperaturze -80 °C. AWidok makroskopowy pianek DAT, DDT i DLV mielonych, zsyntetyzowanych w formie w postaci 48-dołkowej płytki do hodowli tkanek po rehydratacji. Paski skali odpowiadają 1 cm. BObrazy SEM pianek DAT, DDT i DLV przedstawiające jednorodną porowatą ultrastrukturę. Paski skali oznaczają 100 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Kriomielone zawiesiny ECM mogą być również wykorzystane do wytwarzania czystych mikronośników pochodzących z ECM za pomocą technik elektrosprayingu (Rysunek 2). Dla każdego źródła ECM można dostosować stężenie zawiesiny, średnicę igły, szybkość infuzji oraz napięcie, aby uzyskać dyskretne sferyczne mikronośniki o średnicy od 350 do 50 μm po kontrolowanej rehydratacji (Rysunek 4A). Choć mikronośniki mogą być przechowywane w stanie liofilizowanym, w celu ułatwienia manipulacji zaleca się ich wydzielenie lub przesiewanie do pożądanego zakresu wielkości po ponownym zawieszeniu w etanolu. Obrazowanie SEM sugeruje, że ultrastruktura mikronośników może się różnić w zależności od źródła tkanki zdecelularyzowanej (Rysunek 4B).
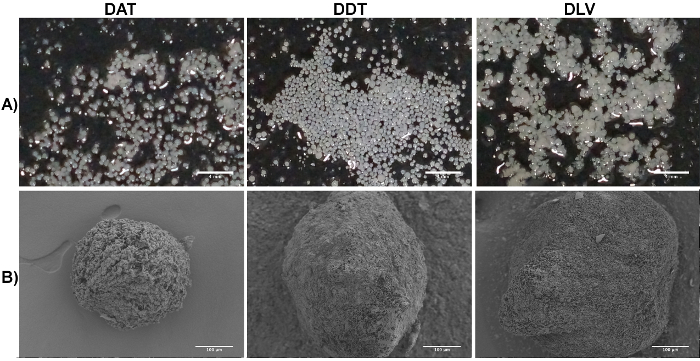
Rysunek 4. Reprezentatywne obrazy mikronośników DAT, DDT i DLV wykonanych z zawiesin ECM poddanych mieleniu kriogenicznemu przy stężeniu 35 mg/mL, szybkości infuzji 0,5 mL/min i przyłożonym napięciu 20 kV. AWidok makroskopowy nawodnionych mikronośników DAT, DDT i DLV. Paski skali odpowiadają 4 mm. BZdjęcia SEM mikronośników DAT, DDT i DLV, pokazujące, że ultrastruktura i rozmiar mogą się różnić w zależności od źródła ECM. Paski skali reprezentują 100 µm. Aby wyświetlić powiększoną wersję tej figury, kliknij tutaj.
Właściwości mechaniczne rusztowań zależą od źródła ECM, zastosowanej metody przetwarzania (t.j. siekania w przeciwieństwie do kriomielenia), stężenia zawiesiny ECM oraz temperatury zamrażania. Co do zasady rusztowania są miękkie i podatne, przy czym dla pianek DAT (50 & 10 mg/mL)29 i DLV (20 - 50 mg/mL)31 zgłoszono moduły Younga w zakresie 1 - 5 kPa, a dla mikronośników < 1 kPa. Pianki poddane kriomieleniu są zazwyczaj bardziej miękkie niż pianki siekane ze względu na ich bardziej rozdrobnioną strukturę. Do dokładnej charakterystyki właściwości ściskania niezbędne są specjalistyczne systemy badań mechanicznych wyposażone w czułe ogniwa obciążnikowe. Zazwyczaj pianki i mikronośniki wykazują niższe moduły niż natywne tkanki decelularyzowane ze względu na dodatkowe etapy przetwarzania w procesie wytwarzania, w tym trawienie enzymatyczne i homogenizację, a także na brak kowalencyjnego sieciowania rusztowań. Może to być jednak zmienne w zależności od badanej tkanki. Na przykład w poprzednich badaniach stwierdziliśmy, że siekane pianki DAT wytworzone przy wysokich stężeniach ECM (10 mg/mL) miały moduły zbliżone do natywnej tkanki tłuszczowej29.
Rehydratowane pianki i mikronośniki pochodzące z ECM można zasiedlać komórkami w warunkach hodowli statycznej lub dynamicznej, aby zapewnić platformę wspierającą komórki do badań nad hodowlami komórkowymi in vitro i/lub dostarczania komórek in vivo. Chociaż rusztowania zazwyczaj wspierają adhezję komórek, efektywność zasiedlania będzie zależeć od źródła ECM, geometrii i porowatości rusztowania oraz rodzaju zainteresowania komórek. W związku z tym metody i gęstości zasiedlania będą wymagały optymalizacji w zależności od warunków określonych przez użytkownika. W przypadku opisanych powyżej pianek zalecamy początkową koncentrację komórek w zakresie 0,25 - 1 x 10⁶ komórek/rusztowanie, z dynamicznym zasiedlaniem na wytrząsarce orbitalnej w celu zwiększenia infiltracji komórek. W przypadku mikronośników sugerujemy początkową gęstość zasiedlania w zakresie 25 0 - 50 0 komórek/mg mikronośników, przy czym zasiedlanie powinno być przeprowadzane w warunkach dynamicznych w kolbie do hodowli z mieszadłem (spinner flask)1. Obrazy przedstawione na dole Ryciny 1 reprezentują ludzkie ASC zasiedlone na piance DAT (lewo) lub mikronośniku DAT (prawo, uprzednio znakowany barwnikiem reaktywnym z aminami i wybarwiony na niebiesko13), zwizualizowane za pomocą mikroskopii konfokalnej przy użyciu fluorescencyjnego barwnika do oceny żywotności komórek (żywe komórki = zielone, martwe komórki = czerwone; paski skali reprezentują 10 µm). Mikroskopia konfokalna może być wykorzystana do wizualizacji komórek zasiedlonych na powierzchni pianek o grubości do 2 mm, jednak wizualizacja obszarów centralnych rusztowań jest ograniczona przez ich nieprzezroczystość. Niemniej jednak pianki i mikronośniki można traktować jak tkanki i zatapiać w parafinie lub poddawać kriosekcjonowaniu w celu przeprowadzenia analiz histologicznych i immunohistochemicznych, aby zwizualizować rozkład komórek i ekspresję markerów.
Dyskusja
Ogólnie rzecz biorąc, rusztowania pochodzące z tkanek pozbawionych komórek mogą bardziej zbliżyć się do złożonego składu 3D i struktury ECM w natywnym mikrośrodowisku komórkowym w porównaniu z syntetycznymi rusztowaniami lub standardowymi modelami hodowli opartymi na TCPS 2D. Jak wspomniano wcześniej, interakcje komórka-ECM są niezwykle ważne w pośredniczeniu w zachowaniu komórkowym zarówno w hodowli, jak i w organizmie1. Uznając, że biochemiczne, biofizyczne i biomechaniczne właściwości ECM są unikalne dla każdej tkanki, istnieje coraz więcej dowodów na poparcie uzasadnienia stosowania podejść specyficznych dla tkanek w projektowaniu biomateriałów dla inżynierii tkankowej, a także w opracowywaniu bardziej fizjologicznie istotnych modeli hodowli dla eksperymentów in vitro 20. Wykorzystując tkanki pozbawione komórek jako materiał wyjściowy, nasze metody mogą obejmować złożony skład specyficznego tkankowo ECM w bardziej konfigurowalnych formatach rusztowań. Podczas gdy etapy przetwarzania mechanicznego i enzymatycznego spowodują utratę natywnej ultrastruktury ECM, wcześniejsze badania z DAT wykazały, że pouczające efekty ECM pochodzącego z tkanki tłuszczowej są zachowane w tych formatach rusztowań, co sugeruje, że skład biorusztowania jest kluczowym mediatorem funkcji komórki11,29. Istotną zaletą stosowania pianek i mikronośników pochodzących z ECM jako substratów do hodowli komórkowych w porównaniu z nienaruszonymi tkankami pozbawionymi komórek jest to, że są one bardziej jednorodne, co może poprawić jednorodność dystrybucji komórek i interakcji komórka-komórka/komórka-ECM.
Opisane tutaj metody mogą być wykorzystane do wygenerowania szerokiej gamy specyficznych dla tkanek biorusztowań do wykorzystania w hodowlach komórkowych i zastosowaniach inżynierii tkankowej. Na przykład, oprócz DAT, DDT i DLV, nasze laboratorium z powodzeniem zastosowało te techniki do generowania porowatych pianek 3D przy użyciu zdecelularyzowanych kości, chrząstek, jądra miażdżystego i zwłóknienia pierścienia, a także dostępnego na rynku, nierozpuszczalnego kolagenu pochodzącego ze ścięgna bydlęcego. Z perspektywy in vitro te biorusztowania mogą być wykorzystane jako podstawa dla modeli kultur 3D o wyższej wierności do badania biologii komórkowej, fizjologii lub patologii chorób38, jako bioaktywne substraty w wysokoprzepustowych platformach przesiewowych leków39 lub jako matryce instruktażowe do różnicowania komórek macierzystych40,41. Pianki DAT, DDT i DLV wytwarzane w stężeniach 25 - 50 mg/ml są stabilne w długotrwałych hodowlach in vitro (testowane do 28 dni). Co więcej, wszystkie trzy typy mikronośników mogą wspomagać przyłączanie i proliferację komórek w dynamicznych warunkach w systemie hodowli przędzarki o niskim ścinaniu (10 - 15 obr./min) przez co najmniej 2 tygodnie. W przypadku zastosowań in vivo, biokompatybilne i biodegradowalne pianki i mikronośniki pochodzące z ECM są obiecujące jako gotowe produkty stymulujące konstruktywną przebudowę i regenerację tkanek11,29. Co więcej, rusztowania adhezyjne mogą być wykorzystywane jako systemy dostarczania terapii komórkowej42,43. Na przykład wykazano, że pianki DAT promują angiogenezę i adipogenezę, gdy są wysiewane allogenicznymi ASC i wszczepiane podskórnie w immunokompetentnym modelu szczura29. W porównaniu z nienaruszonym DAT, bardziej przetworzone pianki DAT ulegały znacznie szybszej degradacji, z 50% zmniejszeniem objętości po 3 tygodniach, gdy integrowały się z tkankami gospodarza, i prawie całkowitą resorpcją po 12 tygodniach. Jednak pianki wywołały również silniejszą odpowiedź angiogenną, co sugeruje, że trawiony enzymatycznie ECM miał unikalne działanie proregeneracyjne. Podobnie, mikronośniki pochodzące z ECM mogą być stosowane jako substraty do hodowli komórkowych in vitro w dynamicznych systemach hodowli oraz jako wstrzykiwane nośniki dostarczania komórek 11,30,44. Mówiąc dokładniej, mała średnica i duża powierzchnia mikronośników mogą umożliwić dostarczenie dużej ilości komórek w małej objętości, zapewniając jednocześnie matrycę, która może pomóc w utrzymaniu żywotności komórek i zwiększeniu retencji komórek w miejscu wstrzyknięcia30. Przed użyciem w jakimkolwiek żywym systemie ważne jest, aby upewnić się, że źródłowy ECM jest zasadniczo pozbawiony antygenowych składników komórkowych i/lub potencjalnie cytotoksycznych odczynników decelularyzacyjnych, które mogłyby wywołać negatywną odpowiedź gospodarza7.
Enzym proteolityczny pepsyna jest powszechnie stosowany do wytwarzania hydrożeli pochodzących z ECM15. Pepsyna jest niespecyficzną proteazą, która trawi kolagen i inne białka ECM na małe fragmenty45. Podczas gdy doniesiono, że hydrożele wytwarzane z ECM trawionego pepsyną mają działanie instruktażowe dla komórek, ograniczeniem jest to, że materiały te są zwyklebardzo słabe mechanicznie. W naszym początkowym rozwoju mikronośników DAT wykorzystaliśmy podejście złożone, w którym DAT trawiony pepsyną połączono z alginianem i dodano kroplami do CaCl2 , tworząc kuliste kulki30. Koraliki zostały następnie fotousieciowane, a alginian wyekstrahowano za pomocą cytrynianu sodu. Oprócz wymogu sieciowania chemicznego, kluczowym ograniczeniem było to, że mikronośniki wytwarzane przy użyciu tego podejścia miały słabą stabilność poniżej zakresu rozmiarów 900 - 950 μm30. Zamiast pepsyny, przedstawione tutaj metody wykorzystują łagodniejsze trawienie ECM za pomocą enzymu glikolitycznego α-amylazy, który postuluje rozszczepianie grup węglowodanowych z regionów telopeptydowych kolagenu, zwiększając w ten sposób rozpuszczalność w kwasie octowym37. Takie podejście umożliwia izolację wysoce spolimeryzowanego kolagenu, który można wykorzystać do wytworzenia czystych pianek i mikronośników pochodzących z ECM bez konieczności chemicznego sieciowania lub innych dodatków. Te biorusztowania są stabilizowane poprzez interakcje fizyczne i wiązania wodorowe między dobrze zachowanymi włókienkami kolagenowymi, podobnie jak kolagen w natywnym mikrośrodowisku ECM.
Pianki są wysoce elastyczną platformą, która może być wytwarzana w szerokim zakresie geometrii w zależności od wybranej formy. W przypadku badań nad kulturami komórkowymi pianki mogą być odlewane bezpośrednio w płytkach studzienkowych TCPS, w celu utworzenia powłok lub rusztowań 3D o różnej grubości. Aby wytworzyć pianki 3D o bardzo jednolitych powierzchniach, zaleca się zaprojektowanie niestandardowej formy, którą można uszczelnić z obu stron za pomocą plastikowych lub szklanych szkiełek. Do syntezy pianek można użyć mielonego lub zmielonego kriogenicznie ECM. Ogólnie rzecz biorąc, stwierdziliśmy, że pianki kriomielone są zwykle makroskopowo bardziej miękkie i mają bardziej zaburzoną ultrastrukturę przy niższych stężeniach31,36. W zależności od źródła tkanki, dodatkowe etapy obróbki mechanicznej mogą powodować zmiany w składzie ECM, które mogą wpływać na funkcjonowanie komórek. Na przykład w naszej poprzedniej pracy lamininę wykryto w mielonych piankach DLV, ale nie w kriomielonych piankach DLV31. Natomiast kolagen I, kolagen IV, laminina i fibronektyna zostały wykryte zarówno w mielonych, jak i kriomielonych piankach DAT36. Oprócz etapów obróbki mechanicznej, porowatość i wielkość porów pianek można w pewnym stopniu dostroić poprzez zmianę stężenia zawiesiny ECM i temperatury zamarzania47. Ogólnie rzecz biorąc, pianki o niższym stężeniu (~ 10 - 15 mg/ml) są jakościowo bardziej porowate, ale mogą szybko się kurczyć i mieć słabą stabilność w długotrwałej hodowli31,36. Podobnie, wolniejsze tempo zamarzania, zwykle osiągane przez wyższą temperaturę zamarzania, może powodować większe pory w piankach ze względu na wielkość kryształków lodu powstałych podczas produkcji29. Wszystkie te parametry mogą wpływać na interakcje komórek z materiałami, w tym na przyczepianie, infiltrację i przebudowę. Na przykład wzrost komórek na piankach, które są wytwarzane z wyższymi stężeniami ECM, może być ograniczony do obszarów powierzchniowych, szczególnie w przypadku zmielonych źródeł ECM i w warunkach hodowli statycznej36.
W przypadku mikronośników kluczowymi parametrami, które można dostroić, są stężenie zawiesiny ECM, rozstaw igieł i przyłożone napięcie, przy czym wyższe stężenia zazwyczaj dają mikronośniki, które są bardziej stabilne w długotrwałej hodowli dynamicznej. Po rozpoczęciu elektronatryskiwania kropelki zawiesiny ECM powinny szybko opaść do środka kolby, w kierunku kolektora z folii aluminiowej. Aby zapobiec agregacji, ważne jest, aby kulki stykały się z ciekłym azotem przed folią. Odległość między igłą a powierzchnią ciekłego azotu można dostosować, aby spełnić te wymagania. Należy zauważyć, że optymalizacja może być wymagana w zależności od właściwości każdego konkretnego źródła ECM, w szczególności przy wyborze zakresu stężeń, który będzie generował stabilne biorusztowania. Innym kluczowym czynnikiem jest protokół decelularyzacji, który jest używany do generowania materiałów wyjściowych, ponieważ metody decelularyzacji, które degradują ECM lub obecność resztkowych odczynników (np. środków powierzchniowo czynnych) może negatywnie wpłynąć na stabilność powstałych pianek i mikronośników. Jeśli napotkasz wyzwania związane ze stabilnością biorusztowania, opcje, które można zbadać, obejmują zastosowanie bardziej stopniowego procesu nawadniania, zwiększenie stężenia zawiesiny ECM oraz zbadanie ECM mielonego i kriomielonego. Jeśli wszystkie te opcje nie rozwiążą problemu, może być konieczne zbadanie alternatywnych protokołów decelularyzacji lub źródeł ECM.
Aby zapewnić powtarzalność podczas produkcji rusztowań, należy zachować szczególną ostrożność na niektórych etapach protokołu. Podczas kriomielenia tkanek pozbawionych komórek zaleca się, aby mielenie odbywało się natychmiast po liofilizacji w suchym środowisku, aby zmniejszyć prawdopodobieństwo agregacji cząstek w wyniku absorpcji wilgoci z otoczenia. Podczas wytwarzania mikronośnika sugeruje się, aby zawiesina była natryskiwana elektrolitycznie w małych partiach, o maksymalnej objętości 3 ml, aby uniknąć problemów z chłodzeniem próbki, które mogą spowodować zatkanie igły. Ponadto ważne jest, aby mikronośniki nie mogły się rozmrozić po procesie elektronatryskiwania. Aby zachować ich sferyczną geometrię i stabilność mechaniczną, mikronośniki powinny być pobierane z ciekłego azotu, transportowane w pojemniku wypełnionym ciekłym azotem i natychmiast liofilizowane. Wreszcie, zarówno w przypadku pianek, jak i mikronośników, bardzo ważne jest, aby etapy nawadniania były wykonywane powoli przez kilka dni. Szybkie nawodnienie może spowodować załamanie strukturalne w skali makro i/lub mikro. Ponadto ponowne nawodnienie musi następować powoli, aby zapobiec tworzeniu się małych pęcherzyków powietrza w rusztowaniu, które mogą wymagać znacznej ilości czasu na odgazowanie w lekkiej próżni.
Podsumowując, metody przedstawione w tym artykule mogą być wykorzystane do wytwarzania różnorodnej gamy specyficznych dla tkanek pianek i mikronośników składających się z czystego, nieusieciowanego chemicznie ECM. Zaletą dla badaczy biologii jest to, że rusztowania są łatwe w obsłudze i mogą być przetwarzane podobnie jak tkanki podczas wykonywania analiz za pomocą technik takich jak histologia, immunohistochemia lub testy ekspresji genów i białek. Ponadto rusztowania pochodzące z ECM mogą być degradowane enzymatycznie w celu ekstrakcji wysiewanych populacji komórek lub mogą być wykorzystywane bezpośrednio jako biodegradowalne i biokompatybilne nośniki komórek. Ogólnie rzecz biorąc, ta elastyczna technologia platformy jest bardzo przydatna w wielu zastosowaniach, w tym w badaniach 3D nad kulturami komórkowymi badającymi funkcję komórki, jako substraty do ekspansji komórek oraz jako proregeneracyjne biorusztowania.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Kanadyjska Rada ds. Badań nad Naukami Przyrodniczymi i Inżynierią (NSERC) oraz Kanadyjskie Instytuty Badań nad Zdrowiem (CIHR) zapewniły fundusze na tę pracę. Autorzy chcieliby podziękować dr Aminowi Rizkalli za wykorzystanie jego systemu do elektronatryskiwania, Nanofabrication Facility na Uniwersytecie Zachodnim za użycie sprzętu do obrazowania SEM, rzeźni Mount Brydges za dostarczenie próbek tkanek świń oraz dr Aaronowi Grantowi, Brianowi Evansowi i Robertowi Richardsowi za ich współpracę kliniczną na rzecz tych badań.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Kwas octowy, lodowaty | BioShop | ACE222.500 | |
| Przewody z zaciskiem krokodylkowym | VWR | 470149-728 | |
| Folia aluminiowa | Fisher Scientific | 01-213-101 | |
| &alfa;-amylaza | Sigma | 101074694 | z Aspergillus aryzae |
| Waga analityczna | Sartorius | CPA225D | |
| Wirówka | Thermo Scientific | 75004251 | Z wahliwym wirnikiem kubełkowym do probówek wirówkowych 15 i 50 ml |
| Probówki wirówkowe (15 ml) | Sarstedt | 62.554.205 | |
| Probówki wirówkowe (50 ml) | Sarstedt | 62.547.205 | |
| Kolagen ze ścięgna Achillesa bydlęcego (nierozpuszczalny) | Sigma | C9879 | Lub podobne nierozpuszczalne źródło kolagenu; Może być stosowany jako alternatywa dla tkanek bezkomórkowych do wytwarzania pianek i mikronośników |
| System kriomielenia | Retsch | 20.745.0001 | MM 400 |
| Eksykator | Fisher Scientific | 8624426 | Do liofilizowanego ECM i przechowywania biorusztowań |
| DMEM: F12 Szynki | Sigma | D6421 | Używany do pożywek proliferacyjnych |
| Kolba Dewara | Fisher Scientific | 10-196-6 | Niska forma; zakres objętości 250 - 500 ml |
| Podwójnie destylowana woda (ddH2O) | Z systemu oczyszczania wody Barnstead GenPure xCAD | ||
| D-PBS (sól fizjologiczna buforowana fosforanami) | Żubr | 311425125 | |
| ECM (macierz zewnątrzkomórkowa) | Izolowany z ludzkiej tkanki tłuszczowej, skóry właściwej świni lub mięśnia sercowego świni, zgodnie z opisem w Flynn et al. 2010, Reing et al. 2010 oraz Wainwright et al. 2010 (ref # 28, 8, 32) | ||
| Ethanol | Greenfield Specialty Alcohols Inc. | P016EAAN | Absolutna |
| płodowa surowica bydlęca (FBS) | Żubr | 80150 | Stosowany do pożywek proliferacyjnych |
| Kleszcze | VWR | 37-501-32 | Do przenoszenia pianek |
| Zamrażarka (-20 ° C) | Zamrażarka VWR | 97043-346 | |
| (-80 & deg; C) | Thermo Scientific | EXF40086A | |
| Fiolki szklane | Fisher Scientific | 03-339-26D | Do przechowywania liofilizowanego kriofrezowanego ECM |
| Ręczny homogenizator | Fisher Scientific | 14-359-251 | Prędkość: 8 000 - 30 000 obr./min |
| Akcesoria do homogenizatora: sondy generatora z zębami piły | Fisher Scientific | 14-261-17 | 10 x 95 mm |
| Ciekły azot | Do elektronatryskiwania | ||
| Liofilizator | Labconco | 7750021 | FreeZone4.5 |
| Komora mielenia | Retsch | 02.462.0213 | Zalecana objętość 25 mL |
| Kule mielące | VWR | 16003-606 | Średnica 10 mm, zalecana stal nierdzewna |
| Igła 18 G | VWR | C ABD305185 | Do dozowania zawiesiny ECM do form |
| Orbital wytrząsarka inkubatora | SciLogex | 832010089999 | Kontrolowana temperatura (37 ° C) |
| Penicylina-streptomycyna | Life Technologies | 15140-122 | Używany do mediów proliferacyjnych |
| Pipet-Aid XP | Mandel Scientific | DRU-4-000-101 | |
| Stojak retortowy | VWR | 470019-526 | |
| Zacisk stojaka do retorty | VWR | 21573-606 | |
| Safety-Lok Strzykawka | BD | 309606 | Strzykawka Luer lock 3 ml do wytwarzania i dozowania zawiesiny ECM do mikronośników |
| Pipety serologiczne (10 mL) | Sarstedt | 86.1254.001 | |
| Pipety serologiczne (25 mL) | Sarstedt | 86.1685.001 | |
| Chlorek sodu | BioShop | 7647-14-5 | |
| Fosforan sodu jednozasadowy | BioShop | 10049-21-5 | |
| Scoopula | VWR | 89259-968 | Do zbierania mikronośników |
| Nożyczki chirurgiczne | VWR | 82027-590 | |
| Pompa strzykawkowa | VWR | 10117-490 | Sterowany mikroprocesorem |
| zasilacz wysokonapięciowy | Gamma High Voltage Research | ES30P-5W/DDPM | Zdolny do zalecanego zakresu napięcia 15 - 25 kV |
| Płytki 12-dołkowe | Fisher Scientific | 12565321 | Do stosowania jako formy podczas produkcji pianki; Można również wybrać inne rozmiary lub formy zdefiniowane przez użytkownika |
| Zestaw do infuzji ze skrzydłami | Terumo | 22258092 | 30 cm długości rurki, zalecane 25 G 3/4"; Można stosować inne rozstawy igieł, które mogą wpływać na średnicę mikronośnika |
Bibliografia
- Eweida, A. M., Marei, M. K. Naturally Occurring Extracellular Matrix Scaffolds for Dermal Regeneration: Do They Really Need Cells? Biomed Res Int. , 1-9 (2015).
- Badylak, S. F., Taylor, D., Uygun, K. Whole Organ Tissue Engineering: Decellularization and Recellularization of Three-Dimensional Matrix Scaffolds. Annu. Rev. Biomed. Eng. 13, 27-53 (2011).
- Rosso, F., Giordano, A., Barbarisi, M., Barbarisi, A. From Cell-ECM Interactions to Tissue Engineering. J. Cell. Phys. 199 (2), 174-180 (2004).
- Du, J., et al. Extracellular Matrix Stiffness Dictates Wnt Expression Through Integrin Pathway. Sci. Rep. 6, 4195-4200 (2016).
- Badylak, S. F. The Extracellular Matrix as a Scaffold for Tissue Reconstruction. Cell & Dev. Biol. 13 (2), 377-383 (2002).
- Gilbert, T. W., Sellaro, T. L., Badylak, S. F. Decellularization of Tissues and Organs. Biomaterials. 27 (19), 3675-3683 (2006).
- Crapo, P. M., Gilbert, T. W., Badylak, S. F. An Overview of Tissue and Whole Organ Decellularization Processes. Biomaterials. 32 (12), 3233-3243 (2011).
- Reing, J. E., et al. The Effects of Processing Methods Upon Mechanical and Biologic Properties of Porcine Dermal Extracellular Matrix Scaffolds. Biomaterials. 31 (33), 8626-8633 (2010).
- Yang, Q., et al. Morphological Appearance, Content of Extracellular Matrix and Vascular Density of Lung Metastases Predicts Permissiveness to Infiltration by Adoptively Transferred Natural Killer and T Cells. Cancer Immun. Immunother. 55 (6), 699-707 (2006).
- Calle, E., Ghaedi, M., Sundaram, S., Sivarapatna, A., Tseng, M. K., Niklason, L. E. Strategies for Whole Lung Tissue Engineering. IEEE Trans. Biomed. Eng. 61 (5), 1482-1496 (2014).
- Turner, A. E. B., Yu, C., Bianco, J., Watkins, J. F., Flynn, L. E. The Performance of Decellularized Adipose Tissue Microcarriers as an Inductive Substrate for Human Adipose-Derived Stem Cells. Biomaterials. 33 (18), 4490-4499 (2012).
- Brown, C. F. C., Yan, J., Han, T. T. Y., Marecak, D. M., Amsden, B. G., Flynn, L. E. Effect of Decellularized Adipose Tissue Particle Size and Cell Density on Adipose-Derived Stem Cell Proliferation and Adipogenic Differentiation in Composite Methacrylated Chondroitin Sulphate. Biomed. Mater. 10 (4), 1-12 (2015).
- Cheung, H. K., Han, T. T. Y., Marecak, D. M., Watkins, J. F., Amsden, B. G., Flynn, L. E. Composite Hydrogel Scaffolds Incorporating Decellularized Adipose Tissue for Soft Tissue Engineering with Adipose-Derived Stem Cells. Biomaterials. 35 (6), 1914-1923 (2014).
- Almeida, H. V., Eswaramoorthy, R., Cunniffe, G. M., Buckley, C. T., O'Brien, F. J., Kelly, D. J. Fibrin Hydrogels Functionalized with Cartilage Extracellular Matrix and Incorporating Freshly Isolated Stromal Cells as an Injectable for Cartilage Regeneration. Acta Biomat. 36, 55-62 (2016).
- Wassenaar, J. W., Braden, R. L., Osborn, K. G., Christman, K. L. Modulating in vivo Degradation Rate of Injectable Extracellular Matrix Hydrogels. J. Mater. Chem. B. 4 (16), 2794-2802 (2016).
- Ugerleider, J. L., et al. Extracellular Matrix Hydrogel Promotes Tissue Remodeling, Arteriogenesis, and Perfusion in a Rat Hindlimb Ischemia Model. JACC Basic Transl. Sci. 1 (1-2), 32-44 (2015).
- Nagao, R. J., et al. Decellularized Human Kidney Cortex Hydrogels Enhance Kidney Microvascular Endothelial Cell Maturation and Quiescence. Tissue Eng. Part A. 22 (19-20), 1140-1150 (2016).
- Pati, F., et al. Printing Three-Dimensional Tissue Analogues with Decellularized Extracellular. Matrix Bioink. Nat. Commun. 5, 3935(2014).
- Ravi, M., Paramesh, V., Kaviya, S. R., Anuradha, E., Solomon, F. D. 3D Cell Culture Systems - Advantages and Applications. J. Cell. Phys. 230 (1), 16-26 (2015).
- Lee, J., Cuddihy, M. J., Kotov, N. Three-dimensional Cell Culture Matrices: State of the Art. Tissue Eng Part B, Rev. 14 (1), 61-86 (2008).
- Pampaloni, F., Reynaud, E. G., Stelzer, E. H. K. The Third Dimension Bridges the Gap Between Cell Culture and Live Tissue. Nature Rev. Mol. Cell Biol. 8, 839-845 (2007).
- Bouet, G., Marchat, D., Cruel, M., Malaval, L., Vico, L. In Vitro Three-Dimensional Bone Tissue Models: From Cells to Controlled and Dynamic Environment. Tissue Eng. Part B Rev. 21 (1), 133-156 (2015).
- Birgersdotter, A., Sandberg, R., Ernberg, I. Gene Expression Perturbation in vitro - A Growing Case for Three-Dimensional (3D) Culture Systems. Sem. Cancer Biol. 15 (5), 405-412 (2005).
- Bonnier, F., et al. Cell Viability Assessment Using the Alamar Blue Assay: A Comparison of 2D and 3D Cell Culture Models. Toxicology in vitro. 29 (1), 124-131 (2015).
- Frantz, C., Stewart, K. M., Weaver, V. M. The Extracellular Matrix at a Glance. J. Cell Sci. 123, 4195-4200 (2010).
- Liberio, M. S., Sadowski, M. C., Soekmadji, C., Davis, R. A., Nelson, C. C. Differential Effects of Tissue Culture Coating Substrates on Prostate Cancer Cell Adherence, Morphology and Behavior. PLoS ONE. 9 (11), e112122(2014).
- McKee, C., Perez-Cruet, M., Chavez, F., Chaudhry, G. R. Simplified Three-Dimensional Culture System for Long-Term Expansion of Embryonic Stem Cells. World J. Stem Cells. 7 (7), 1064-1077 (2015).
- Flynn, L. E. The Use of Decellularized Adipose Tissue to Provide an Inductive Microenvironment for the Adipogenic Differentiation of Human Adipose-Derived Stem Cells. Biomaterials. 31 (17), 4715-4724 (2010).
- Yu, C., et al. Porous Decellularized Adipose Tissue Foams for Soft Tissue Regeneration. Biomaterials. 34 (13), 3290-3302 (2013).
- Turner, A. E. B., Flynn, L. E. Design and Characterization of Tissue-Specific Extracellular Matrix-Derived Microcarriers. Tissue Eng. Part C: Methods. 18 (3), 186-197 (2012).
- Russo, V., Omidi, E., Samani, A., Hamilton, A., Flynn, L. E. Porous, Ventricular Extracellular Matrix-Derived Foams as a Platform for Cardiac Cell Culture. Biores Open Access. 4 (1), 374-388 (2015).
- Wainwright, J. M., et al. Preparation of Cardiac Extracellular Matrix from an Intact Porcine Heart. Tissue Eng. Part C, Methods. 16 (3), 525-532 (2010).
- Owen, S. C., Fisher, S. A., Tam, R. Y., Nimmo, C. M., Shoichet, M. S. Hyaluronic Acid Click Hydrogels Emulate the Extracellular Matrix. Langmuir. 29 (24), 7393-7400 (2013).
- Zargham, S., Bazgir, S., Tavakoli, A., Rashidi, A. S., Damerchely, R. The Effect of Flow Rate on Morphology and Deposition Area of Electrospun Nylon 6 Nanofiber. J. Eng. Fibers Fabr. 7 (4), 42-49 (2012).
- Gryshkov, O., Pogozhykh, D., Zernetsch, H., Hofmann, N., Mueller, T., Glasmacher, B. Process Engineering of High Voltage Alginate Encapsulation of Mesenchymal Stem Cells. Mater. Sci. Eng. C Biol. Appl. 36, 77-83 (2014).
- Turco, B. Characterization and Cell-Seeding of Decellularized Adipose Tissue Foams for Wound Healing. , Queen's University. Kingston, Ontario, Canada. (2014).
- Steven, F. S. The Nishihara Technique for the Solubilization of Collagen. Application To the Preparation of Soluble Collagens From Normal and Rheumatoid Connective Tissue. Ann. Rheum. Dis. 23, 300-301 (1964).
- Hansen, N. U. B., Genovese, F., Leeming, D. J., Karsdal, M. A. The Importance of Extracellular Matrix for Cell Function and in vivo Likeness. Exp. Mol. Pathol. 98 (2), 286-294 (2015).
- Justice, B. A., Badr, N. A., Felder, R. A. 3D Cell Culture Opens New Dimensions in Cell-Based Assays. Drug Discov. Today. 14 (1-2), 102-107 (2009).
- Cortiella, J., et al. Influence of Acellular Natural Lung Matrix on Murine Embryonic Stem Cell Differentiation and Tissue Formation. Tissue Eng. Part A. 16 (8), 2565-2580 (2010).
- Liao, J., Guo, X., Grande-Allen, K. J., Kasper, F. K., Mikos, A. G. Bioactive Polymer/Extracellular Matrix Scaffolds Fabricated with a Flow Perfusion Bioreactor for Cartilage Tissue Engineering. Biomaterials. 31 (34), 8911-8920 (2010).
- Choi, Y. C., Choi, J. S., Woo, C. H., Cho, Y. W. Stem Cell Delivery Systems Inspired by Tissue-Specific Niches. J. Control. Release. 193, 42-50 (2014).
- Han, T. T. Y., Toutounji, S., Amsden, B. G., Flynn, L. E. Adipose-Derived Stromal Cells Mediate in vivo Adipogenesis , Angiogenesis and Inflammation in Decellularized Adipose Tissue Bioscaffolds. Biomaterials. 72, 125-137 (2015).
- Yu, C., Kornmuller, A., Flynn, L. E. Porous Decellularized Extracellular Matrix Microcarriers for Tissue-Specific Cell Expansion and Delivery. Front. Bioeng. Biotechnol. , (2016).
- Qian, J., et al. Kinetic Analysis of the Digestion of Bovine Type I Collagen Telopeptides with Porcine Pepsin. J. Food Sci. 81 (1), C27-C34 (2016).
- Lin, H., Yang, G., Tan, J., Tuan, R. S. Influence of Decellularized Matrix Derived from Human Mesenchymal Stem Cells on their Proliferation, Migration and Multi-Lineage Differentiation Potential. Biomaterials. 33 (18), 4480-4489 (2012).
- Fonte, P., Reis, S., Sarmento, B. Facts and Evidences on the Lyophilization of Polymeric Nanoparticles for Drug Delivery. J. Control. Release. 225, 75-86 (2016).
Przedruki i uprawnienia
Tagi
Piany z macierzy pozakomórkowejmikronośniki ECMrusztowania specyficzne dla tkanekprzetwarzanie tkanek decelularyzowanychprzygotowanie zawiesiny ECMkontrolowana liofilizacja z zamrażaniemtechnika elektrosprayowaniaplatformy do 3D hodowli komórekrusztowania bez sieciowania chemicznegosystemy dostarczania w medycynie regeneracyjnej
