Tutaj prezentujemy ilościowy i skalowalny protokół do przeprowadzania ukierunkowanych badań przesiewowych małych cząsteczek dla regulatorów kinaz naiwnie zaszczepionego przejścia pluripotencjalnego.
Artykuł metodologiczny
Prosta metoda identyfikacji kinaz, które regulują pluripotencję embrionalnych komórek macierzystych za pomocą wysokoprzepustowych badań przesiewowych inhibitorów
W tym artykule
Podsumowanie
Streszczenie
Embrionalne komórki macierzyste (ESC) mogą samoodnawiać się lub różnicować we wszystkie typy komórek, zjawisko znane jako pluripotencja. Opisano różne stany pluripotencjalne, określane jako "naiwna" i "uźródłowiona" pluripotencja. Mechanizmy, które kontrolują przejście naiwnie zagruntowane, są słabo poznane. W szczególności pozostajemy słabo poinformowani o kinazach białkowych, które określają pierwotne i pierwotne stany pluripotencjalne, pomimo rosnącej dostępności wysokiej jakości związków narzędziowych do badania funkcji kinazy. W tym miejscu opisujemy skalowalną platformę do wykonywania ukierunkowanych badań przesiewowych małych cząsteczek pod kątem regulatorów kinaz naiwnie zapoczątkowanego przejścia pluripotencjalnego w mysich ESC. Podejście to wykorzystuje proste warunki hodowli komórkowej oraz standardowe odczynniki, materiały i sprzęt do odkrycia i walidacji inhibitorów kinaz o dotychczas niedocenianym wpływie na pluripotencję. Omawiamy potencjalne zastosowania tej technologii, w tym badania przesiewowe innych zbiorów małych cząsteczek, takich jak coraz bardziej wyrafinowane inhibitory kinaz i pojawiające się biblioteki epigenetycznych związków narzędziowych.
Wprowadzenie
Embrionalne komórki macierzyste (ESC) mają zdolność do samoodnawiania się lub różnicowania w dowolny typ komórek w organizmie dorosłego, zjawisko znane jako pluripotencja1. Najnowsze dowody wskazują, że istnieją rozwojowo odrębne stany pluripotencjalne, określane jako "naiwne" i "pierwotne" pluripotencja2. Pierwotne EKM reprezentują stan rozwoju podobny do tego, który występuje w preimplantacyjnym embryo3. W przeciwieństwie do tego, zapoczątkowane pluripotencjalne ESC są gotowe do wyjścia z pluripotencji i różnicowania się w wyspecjalizowane linie embrionalne4,5.
Naiwne i pierwotne stany pluripotencjalne są oznaczone odrębnymi sieciami regulacji genów. Naiwna pluripotencja charakteryzuje się ekspresją kluczowych czynników transkrypcyjnych pluripotencji, takich jak Nanog, czynniki transkrypcyjne podobne do Krueppela (Klfs), Rex12 i Esrrb6. W mysich ESC (mESC) primeed pluripotencja charakteryzuje się zmniejszoną ekspresją naiwnych markerów i specyficzną sygnaturą ekspresji genów, która obejmuje metylotransferazę DNA de novo Dnmt3b7. In vivo, zagruntowane pluripotencjalne komórki macierzyste epiblastu po implantacji (EpiSCs)4,5 dodatkowo wyrażają marker Epiblast Fgf5 i markery primingu linii, takie jak Brachyury8.
mESC dostarczają łatwego modelu do badania mechanizmów kontrolujących naiwnie zaszczepione przejścia pluripotencjalne in vitro. Podczas hodowli w czynniku hamującym białaczkę (LIF) i płodowej surowicy bydlęcej (FBS), mESC przechodzą dynamiczne przejście między stanami pierwotnym a pierwotnym pluripotencjalnym9,10. Funkcje sygnalizacyjne LIF-Jak-Stat3 promujące naiwną sieć regulacji genów11, podczas gdy sygnalizacja autokrynna za pośrednictwem szlaku Erk1/2 czynnika wzrostu fibroblastów 4 (Fgf4) napędza przejście do stanu pierwotnego12. Wyzwaniem pozostaje jednak systematyczna ocena roli kinaz białkowych w określaniu odrębnych stanów pluripotencjalnych.
Tutaj opisujemy ilościową i skalowalną platformę, za pomocą której przeprowadzamy ukierunkowane badania przesiewowe małych cząsteczek dla regulatorów kinazy naiwnie zaszczepionego przejścia pluripotencjalnego. Używamy prostych warunków hodowli mESC oraz standardowych odczynników, materiałów i sprzętu, aby odkryć i zwalidować inhibitory kinaz o dotychczas niedocenianej zdolności do stabilizacji naiwnej pluripotencji. Ponadto omówiono potencjalne rozszerzone zastosowania tej technologii, w tym do badań przesiewowych innych zbiorów małych cząsteczek, takich jak powstające biblioteki inhibitorów ukierunkowane na regulatory epigenetyczne.
Protokół
1. Zestawienie bibliotek inhibitorów kinaz drobnocząsteczkowych
- Zestawiać biblioteki inhibitorów z publicznie dostępnych kolekcji inhibitorów kinaz, np. Library of Integrated Network-based Cellular Signatures (LINCS) z Harvard Medical School, ukierunkowaną kolekcję 228 silnych i selektywnych inhibitorów kinaz (http://lincs.hms.harvard.edu) oraz Zestaw inhibitorów kinaz białkowych (PKIS), kolekcję 376 związków zebraną przez badaczy przemysłowych (https://www.ebi.ac.uk/chembldb/extra/PKIS)13. Alternatywnie, skompletuj specjalną kolekcję inhibitorów kinaz z dostępnych na rynku związków.
UWAGA: W naszym laboratorium zgromadziliśmy kolekcję 72 silnych i selektywnych inhibitorów kinaz narzędziowych obejmujących 51 głównych kinaz docelowych, z których wszystkie są dostępne ze źródeł komercyjnych. - Złóż inhibitory kinaz w 96-dołkowe płytki, aby uzyskać optymalne, wysokowydajne przetwarzanie w wielu stężeniach (użyj 1, 0,1 i 0,01 mM). Do każdej płytki należy dołączyć studzienki kontrolne zawierające tylko DMSO i referencyjne inhibitory kontroli PD173074 (FGFRi) i ruksolitynib (JAKi), o których wiadomo, że promują odpowiednio stany pluripotencjalne naiwne i zapoczątkowane. Dodawaj adnotacje w arkuszu kalkulacyjnym lub podobnym oprogramowaniu.
2. Warunki hodowli mESC i procedury przygotowania ekranu
- Przygotuj 0,1% pokryte żelatyną 10 cm naczynia, dodając 5 ml 0,1% (w/v) żelatyny do 10 cm talerzy i inkubuj w temperaturze pokojowej przez 5 minut. Odessać żelatynę i pozostawić płytkę do wyschnięcia na 2 minuty.
- Wyhodować dowolną standardową linię mESC w temperaturze 37 °C 5% CO2 na 0,1% pokrytych żelatyną 10-centymetrowych szalkach w standardowych pożywkach mESC (patrz tabela materiałów) zawierających 100 ng / mL GST-LIF, 10% surowicy płodu cielęcego i 5% wymiany surowicy nokautującej. Wymieniaj pożywki codziennie i pasuj mESC z około 80% zbiegiem co drugi dzień w rozcieńczeniu 1:5-1:10.
- Aby przejść przez mESC, należy odessać pożywkę i przemyć 5 ml soli fizjologicznej buforowanej fosforanami (PBS) na płytkę.
- Dodać 1 ml trypsyny-EDTA (0,05% trypsyny, 0,02% EDTA) na płytkę mESC i inkubować w temperaturze 37 °C przez 10 minut.
- Ponownie zawiesić trypsynizowane komórki w 4 ml pożywki mESC i odwirować z prędkością 1 200 obr./min przez 5 minut.
- Dokładnie zawiesić osad komórkowy w 5 ml pożywki mESC, pipetując w górę i w dół, aby uzyskać zawiesinę pojedynczej komórki.
- Policz komórki, łącząc 10 μl zawiesiny komórek i 10 μl błękitu trypanowego (0,4%). Umieść w komorze do liczenia komórek lub użyj hemocytometru i mikroskopu świetlnego.
- Wysiewać 3 x 10³ mESC na 0,1% pokrytych żelatyną 96-dołkowych płytkach, końcowa objętość 100 μl pożywki, za pomocą wielokanałowej pipety.
- Inhibitory kinaz należy stosować w rozcieńczeniu 1:100 (1 μl inhibitora dodany do 100 μl pożywki) za pomocą pipety wielokanałowej. Delikatnie odpipetować pożywkę, aby wymieszać inhibitor i zawiesinę komórkową, a następnie pozostawić komórki do osadzenia się w kapturze do hodowli tkankowych przez 1 godzinę, aby zapewnić równomierne rozprowadzenie na powierzchni posiewu. Hodowla komórek przez 48 godzin bez zmiany pożywki.
UWAGA: Płytki standardowe 1/0,1/0,01 mM dadzą końcowe stężenie inhibitora odpowiednio 10/1/0,1 μM. zalecamy rozpoczęcie badania przesiewowego od końcowego stężenia 1 μM, aby zapewnić skuteczne hamowanie pierwotnych kinaz docelowych przy jednoczesnym zminimalizowaniu efektów poza celem.
3. Analiza przesiewowa inhibitorów kinaz
- Umyć 96-dołkowe płytki mESC w 200 μl PBS za pomocą wielokanałowego aspiratora i pipet.
- Wykonaj ekstrakty komórkowe w 150 μl buforu do lizy (20 mM Tris pH 7,4, 150 mM NaCl, 1 mM EDTA, 1% NP-40 (v/v), 0,5% deoksycholanu sodu (w/v), 10 mM β-glicerofosforanu, 10 mM pirofosforanu sodu, 1 mM NaF, 2 mM Na3VO4, Complete Protease Inhibitor Cocktail Tablets).
- Klarować ekstrakty przez odwirowanie przy 1 500 x g przez 30 minut na 96-dołkowych płytkach z dnem w kształcie litery V.
- Unieruchomić 100 μl supernatantów na membranie nitrocelulozowej za pomocą 96-dołkowego próżniowego kolektora punktowego.
- Wysuszyć membranę i zabarwić 40 ml Ponceau S, aby zapewnić równomierny transfer.
- Przemyć membranę TBST i zablokować w mleku TBST/3% (w/v).
- Inkubować w przeciwciałach Nanog i Dnmt3b w rozcieńczeniu 1:1,000 (v/v) w TBST/3% (w/v) mleku w proszku przez noc.
- Przemyć błony przez 3 x 10 minut w TBST i inkubować w 30 ml przeciwciał drugorzędowych w rozcieńczeniu 1:10 000 (v/v) w TBST/3% (w/v) mleku.
- Opracowywanie przy użyciu cyfrowego systemu obrazowania immunoblottingowego.
UWAGA: Jeśli to możliwe, użyj ilościowego immunoblottingu fluorescencyjnego, aby wykryć Nanog i Dnmt3b. Jednak sygnał tła dla Dnmt3b przez immunoblotting fluorescencyjny jest zbyt wysoki. Dlatego stosuje się fluorescencyjne przeciwciała drugorzędowe przeciwko królikowi (Nanog) i anty-myszemu HRP (Dnmt3b) o długości fali 800 nm.
4. Analiza danych przesiewowych i walidacja inhibitorów jako prawdziwych regulatorów pluripotencji
UWAGA: To jest krytyczny krok, aby upewnić się, że identyfikowane są tylko rzeczywiste modulatory pluripotencji. Niezbędna jest selekcja inhibitorów na podstawie zarówno stosunku Nanog:Dnmt3b, jak i sygnału ogólnego, aby zapewnić, że inhibitory kinaz, które niekorzystnie wpływają na przeżycie mESC, nie zostaną wybrane do dalszej analizy.
- Określ ilościowo sygnał Nanog i Dnmt3b za pomocą oprogramowania do analizy immunoblottingu i zaimportuj wartości do arkusza kalkulacyjnego lub podobnego oprogramowania. Obliczać Stosunek Nanog:Dnmt3b dla wszystkich próbek w porównaniu z kontrolą DMSO. Określ również całkowity sygnał Nanog i Dnmt3b, aby upewnić się, że inhibitory kinaz nie wpływają na stosunek Nanog:Dnmt3b poprzez zmianę żywotności mESC.
- Użyj uszeregowanych proporcji Nanog:Dnmt3b, aby zidentyfikować inhibitory, które promują naiwną pluripotencję (stosunek Nanog:Dnmt3b wyższy niż kontrola) i primerowaną pluripotencję (stosunek Nanog:Dnmt3b niższy niż kontrola). Ustaw punkt odcięcia na 2-krotne odchylenie od wartości kontrolnych i odfiltruj inhibitory kinaz, które wytwarzają całkowity sygnał Nanog + Dnmt3b mniejszy niż 50% wartości kontrolnej DMSO, aby wygenerować listę inhibitorów kinaz o wysokim poziomie ufności, które stabilizują stany naiwne (wysoki stosunek Nanog: Dnmt3b) i zapoczątkowane (niski stosunek Nanog: Dnmt3b) pluripotencjalne.
- Walidacja inhibitorów kinaz przez wysiewanie mESC w dawce 2 x 10⁵ komórek na 6 dołków w pożywce o pojemności 2 ml i dodawanie inhibitorów kinaz w ilości 1 μM przez 48 godzin, bez zmiany pożywki.
- Lizuj mESC w buforze do lizy i analizuj ekspresję Nanog i Dnmt3b za pomocą konwencjonalnego immunoblottingu SDS-PAGE.
- Dalsza walidacja trafień za pomocą immunoblottingu SDS-PAGE dla naiwnych markerów pluripotencji Klf2 i Klf4 oraz Oct4, aby upewnić się, że pluripotencja utrzymuje się po 48-godzinnym leczeniu inhibitorem.
Wyniki
Stosując przedstawioną tutaj procedurę (Rycina 1), przesiewamy bibliotekę LINCS zawierającą 228 silnych i selektywnych inhibitorów kinaz w celu zidentyfikowania tych, które modulują pluripotencję mESC. Biblioteka jest przygotowana w stężeniu 0,1 mM dla rozcieńczenia 1:100 i końcowego stężenia przesiewowego 1 µM w mESC. Po 48 h mESC poddano lizie, a otrzymane ekstrakty wykorzystano do ilościowej analizy dot blot w celu oceny ekspresji Nanog oraz Dnmt3b (Rycina 2, góra). Ze względów zwięzłości nie przedstawiono tutaj wyników dla innych stężeń przesiewowych. Dla każdego inhibitora kinazy wyznacza się stosunek Nanog:Dnmt3b, a następnie szereguje związki i stosuje dwukrotny próg odcięcia (2x cut-off) (Rycina 2, dół). Całkowity sygnał Nanog i Dnmt3b w stosunku do kontroli jest nałożony na ranking inhibitorów i poddany progowi odcięcia 0,5x, co pozwala na wyselekcjonowanie inhibitorów wykazujących znaczną toksyczność dla mESC. Wybrane inhibitory kinaz stabilizujące stan naiwny są walidowane za pomocą konwencjonalnego immunoblottingu Nanog/Dnmt3b (Rycina 3). Główne cele kinazowe tych inhibitorów przedstawiono w Tabeli 1. Wykazujemy również możliwość zastosowania tego przesiewu do identyfikacji inhibitorów stabilizujących stan primowany14.
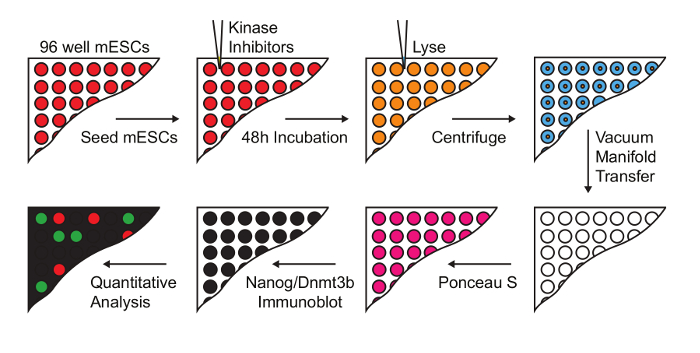
Rycina 1: Schemat przesiewania inhibitorów kinaz modulujących przejście ze stanu naiwnego do stanu primowanego. Komórki mESC poddano działaniu biblioteki 228 inhibitorów kinaz w stężeniu końcowym 1 µM. Przygotowano lizaty i przeniesiono je na membrany nitrocelulozowe w celu przeprowadzenia analizy immuno dot-blot, a następnie określono poziomy Nanog i Dnmt3b (Rycina zaadaptowana z Williams et al.14). Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.

Rycina 2: Analiza przesiewowa pluripotencji stanu naiwnego i przygotowanego oraz identyfikacja inhibitorów. (Góra) Reprezentatywne obrazy immuno dot-blot dla Nanog i Dnmt3b. (Dół) Wartości Nanog i Dnmt3b dla każdego inhibitora kinazy określono w stosunku do kontroli DMSO; wyznaczono stosunki Nanog:Dnmt3b oraz całkowity względny sygnał Nanog+Dnmt3b, a następnie uszeregowano inhibitory w porównaniu do kontroli DMSO. Inhibitory, które zmieniały stosunek Nanog:Dnmt3b ponad dwukrotny próg powyżej lub poniżej kontroli DMSO, zidentyfikowano jako czynniki napędzające pluripotencję stanu naiwnego lub przygotowanego. Próg 2x poniżej kontroli DMSO ustalono w celu odseparowania inhibitorów upośledzających przeżywalność mESC. Wyróżniono inhibitory wybrane do dalszej walidacji. (Rycina zaadaptowana z Williams et al.14). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 3: Walidacja wybranych zidentyfikowanych związków hitowych. mESC traktowano 1 µM AZD4547 (selektywnym inhibitorem FGFR) lub wskazanymi inhibitorami zidentyfikowanymi podczas przesiewu przedstawionego na Rycini 2. Poziomy Nanog:Dnmt3b określono za pomocą standardowej elektroforezy SDS-PAGE i analizy immunoblottingu. Wartości liczbowe względnych stosunków Nanog:Dnmt3b i Nanog+Dnmt3b podano w tabeli poniżej; inhibitory stabilizujące naiwny stan pluripotencji wyróżniono kolorem zielonym. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
| Związek | Główne cele | Inne cele | |
| AV-951 | VEGFR | ||
| HG-6-64-01 | ABL, BRAF, RET, CSF1R, EGFR, EPHA8, FGFR, FLT3, KIT, LOK, MAP4K1, p38b, MUSK,PDGFR, TAOK3, TNNI3K | ||
| WH-4-023 | Lck | Src | |
| R406 | Syk | ||
| GW-572016 | HER2 | EGFR | |
| KIN001-244 | PDK1 | ||
| WZ-4-145 | CSF1R, DDR1, EGFR, TIE1, PDGFR2 | ||
| WZ-7043 | CSF1R, DDR1, FGFR oraz TAO1 | ||
| GW786034 | VEGFR1 | VEGFR2, VEGFR3 | |
| AZD-1480 | JAK2 | ||
Tabela 1: Wybrane związki typu „hit” oraz ich główne kinazy docelowe.
Dyskusja
Tutaj pokazujemy szeroko dostępną metodologię badania roli szlaków sygnałowych kinazy w regulacji naiwnie zapoczątkowanego przejścia pluripotencjalnego. Jest to odpowiedź na kluczowe pytanie w dziedzinie ESC. Chociaż wysokoprzepustowa genomika i transkryptomika są rutynowo stosowane do identyfikacji kluczowych regulatorów transkrypcji w stanach naiwnych i pierwotnych pluripotencjalnych, wyjaśnienie sieci sygnalizacyjnych pluripotencji okazało się wyzwaniem. Obecnie zapewniamy elastyczną strategię wykorzystującą inhibitory chemiczne do identyfikacji kinaz, które kontrolują naiwnie zaszczepione przejście pluripotencjalne w mESC. Opiera się to na prostym sprzęcie, odczynnikach i materiałach, które są dostępne dla większości laboratoriów zajmujących się badaniem sygnalizacji komórkowej i biologii ESC. Kluczowe znaczenie dla sukcesu tej platformy ma opracowanie przez nas solidnego testu do ilościowego określenia przejścia między stanami naiwnymi i pierwotnym pluripotencjalnymi. Ustalenie tego testu wymagało znacznych iteracyjnych modyfikacji gęstości posiewu komórek, czasu inkubacji inhibitora i warunków immunoblottingu.
Podejścia małocząsteczkowe zyskują na popularności pod kątem racjonalnego wykorzystania w terapeutycznych zastosowaniach ESC15,16. Główną zaletą badań przesiewowych małych cząsteczek jest to, że związki narzędziowe są projektowane i/lub modyfikowane pod kątem wydajnego wychwytu komórkowego. Wydajność transfekcji nie jest ograniczona, a stosowanie niebezpiecznych systemów dostarczania, takich jak lentiwirus, nie jest konieczne. Co więcej, inhibitory często hamują wiele izoform w rodzinie kinaz (np. Fgfr1-4, Jak1-3), co pozwala przezwyciężyć redundancję funkcjonalną, która utrudnia techniki interferencji genetycznej/genomowej, takie jak RNAi i CRISPR/Cas9. W miarę jak coraz silniejsze i bardziej selektywne związki narzędziowe stają się dostępne zarówno w programach akademickich, jak i farmaceutycznych, niedostatecznie zbadane i słabo poznane kinazy zostaną wypchnięte na czoło badań ESC. W związku z tym proponujemy, aby to wysokoprzepustowe podejście do badań przesiewowych otworzyło nowe możliwości badawcze w zakresie podstawowych sieci regulacyjnych ESC.
Jednym z drobnych ograniczeń tej technologii jest to, że nawet najsilniejsze i najbardziej selektywne inhibitory małocząsteczkowe angażują i hamują wiele niepowiązanych ze sobą kinaz in vivo. Jednak coraz bardziej kompleksowe dane dotyczące profilowania inhibitorów kinaz pozwalają na łatwą identyfikację funkcjonalnych celów inhibitorów kinaz (http://lincs.hms.harvard.edu/kinomescan; http://www.kinase-screen.mrc.ac.uk/kinase-inhibitors). Wreszcie, w zasadzie nasza platforma może być stosowana do badania dowolnego zbioru małych cząsteczek i/lub testu komórkowego, dla którego dostępne są wysokiej jakości przeciwciała immunoblottingowe. Pozwoli to na badanie wielu systemów regulacyjnych w regulacji pluripotencji i ułatwi identyfikację małocząsteczkowych inhibitorów, które modyfikują różne procesy komórkowe. W szczególności przewidujemy, że zastosowanie pojawiających się kolekcji małych cząsteczek, takich jak sondy epigenetyczne opracowywane przez Konsorcjum Genomiki Strukturalnej (http://www.thesgc.org/chemical-probes/epigenetics), może potencjalnie odkryć dalsze nowe regulatory przejść pluripotencjalnych.
Oświadczenia
Autorzy deklarują, że nie ma konfliktu interesów wynikającego z tego badania.
Podziękowania
C.A.C.W jest wspierany przez stypendium doktoranckie Rady ds. Badań Medycznych. G.M.F. jest częściowo wspierany przez Medical Research Council New Investigator Award (MR/N000609/1) oraz grant badawczy Tenovus Scotland.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| mESC media | |||
| CCE mESC | ATCC | ATCC SCRC-1023 | |
| DMEM Media | Gibco | 11965092 | |
| L-glutamina | Gibco | 25030081 | Finał: 2 mM |
| Penicylina/Streptomycyna | Gibco | 15140122 Finał: 50 U/ml | |
| 2-merkaptoetanolu | Sigma | M6250 | Finał: 0,1 mM |
| hamujący białaczkę (fuzja GST) | Odczynniki i usługi | Finał: 100 ng/ml | |
| czynnika hamującego białaczkę | Thermo | PMC9484 | Final: 100 ng/ml |
| aminokwasów endogennych | Gibco | 11140050 Final: 0,1 mM | |
| pirogronianu sodu | Gibco | 11360070 | Final: 1 mM |
| surowicy nokautującej | Invitrogen | 10828-028 | Final: 5% |
| Defined Surowica bydlęca płodu | Fisher | 10703464 | Finał: 10% |
| Nazwa | Company | Numer katalogowy | Komentarze |
| TC materiały | |||
| Trypsin-EDTA (0,05%), czerwień fenolowa | Thermo | 25300054 | |
| Żelatyna ze skóry świni | Sigma | 1890 | |
| Nunc MicroWell 96-dołkowe mikropłytki | Thermo | 156545 | |
| DPBS, bez wapnia, bez magnezu | Gibco | 14190136 | |
| 96-dołkowe płytki z dnem w kształcie litery V | Greiner Bio-one | 651261 | |
| Nazwa | Company | < strong>Numer katalogowy | Komentarze |
| Bufor do lizy | |||
| Tris Bufor | VWR | 103157P | |
| Chlorek sodu | VWR | 97061 | |
| EDTA | Sigma | E4884 | |
| 1% NP-40 | Sigma | 9016-45-9 | |
| Sód Deoksycholan | Sigma | D6750-100g | |
| β-glicerofosforan | Sigma | G9422 | |
| Pirofosforan sodu | Sigma | 13472-36-1 | |
| Fluorek sodu | Sigma | 450022 | |
| Ortowanadan sodu | Sigma | 450243 | |
| Roche Complete Inhibitor proteazy Tabletki koktajlowe | Sigma | CO-RO | |
| strong>Nazwa< | strong>Firma | Numer katalogowy | Komentarze |
| Chemicals | |||
| Tween | Sigma | P1379-1L | |
| Mleko w proszku | Marvel | ||
| Name | Company | Numer katalogowy | Uwagi |
| Western Blotting | |||
| Protran BA 85 Nitroceluloza 0,45 &micor; M Rozmiar porów (arkusze 20 cm x 20 cm) (25 arkuszy) | GE | 10401191 | |
| Pąsek S | Sigma | P7170-1L | |
| Nazwa | Firma | Numer katalogowy | Uwagi |
| >Sprzęt laboratoryjny | |||
| Minifold I System | GE | 10447850 | |
| ChemiDoc imager | BioRad | 1708280 | |
| LiCor Odyssey Imager | LiCor | ||
| Nazwa | Firma | >Numer katalogowy | Komentarze |
| Przeciwciała | |||
| Anti-mouse Nanog | Reprocell | RCAB001P | |
| Anti-Dnmt3b | Imgenex | IMG-184A | |
| IRDye 800CW Donkey Anti-Rabbit | Licor | 926-32213 | |
| Anti-mouse-HRP | Cell Signalling Technology | 7076S | |
| Anti-Klf2 | Millipore | 09-820 | |
| Anti-Klf4 | R& D Systems | AF3158 | |
| Anti-Oct4 | Santa Cruz | sc-5279 |
Bibliografia
- Evans, M. J., Kaufman, M. H. Establishment in culture of pluripotential cells from mouse embryos. Nature. 292 (5819), 154-156 (1981).
- Nichols, J., Smith, A. Naive and primed pluripotent states. Cell Stem Cell. 4 (6), 487-492 (2009).
- Boroviak, T., et al. Lineage-Specific Profiling Delineates the Emergence and Progression of Naive Pluripotency in Mammalian Embryogenesis. Developmental Cell. 35 (3), 366-382 (2015).
- Tesar, P. J., et al. New cell lines from mouse epiblast share defining features with human embryonic stem cells. Nature. 448 (7150), 196-199 (2007).
- Brons, I. G. M., et al. Derivation of pluripotent epiblast stem cells from mammalian embryos. Nature. 448 (7150), 191-195 (2007).
- Festuccia, N., et al. Esrrb is a direct Nanog target gene that can substitute for Nanog function in pluripotent cells. Cell Stem Cell. 11 (4), 477-490 (2012).
- Ficz, G., et al. FGF signaling inhibition in ESCs drives rapid genome-wide demethylation to the epigenetic ground state of pluripotency. Cell Stem Cell. 13 (3), 351-359 (2013).
- Guo, G., et al. Klf4 reverts developmentally programmed restriction of ground state pluripotency. Development. 136 (7), 1063-1069 (2009).
- Chambers, I., et al. Nanog safeguards pluripotency and mediates germline development. Nature. 450 (7173), 1230-1234 (2007).
- Findlay, G. M., et al. Interaction domains of Sos1/Grb2 are finely tuned for cooperative control of embryonic stem cell fate. Cell. 152 (5), 1008-1020 (2013).
- Niwa, H., Burdon, T., Chambers, I., Smith, A. Self-renewal of pluripotent embryonic stem cells is mediated via activation of STAT3. Genes Dev. 12 (13), 2048-2060 (1998).
- Kunath, T., et al. FGF stimulation of the Erk1/2 signalling cascade triggers transition of pluripotent embryonic stem cells from self-renewal to lineage commitment. Development. 134 (16), 2895-2902 (2007).
- Elkins, J. M., et al. Comprehensive characterization of the Published Kinase Inhibitor Set. Nature Biotechnology. 34 (1), 95-103 (2016).
- Williams, C. A. C., et al. Erk5 Is a Key Regulator of Naive-Primed Transition and Embryonic Stem Cell Identity. Cell Reports. 16 (7), 1820-1828 (2016).
- Cao, N., et al. Conversion of human fibroblasts into functional cardiomyocytes by small molecules. Science. 352 (6290), (2016).
- Zhang, M., et al. Pharmacological reprogramming of fibroblasts into neural stem cells by signaling-directed transcriptional activation. Cell Stem Cell. 18 (5), 653-667 (2016).
Przedruki i uprawnienia
