Opisane tutaj jest etapowe, behawioralne podejście przesiewowe, które może być użyte do badania przesiewowego pod kątem związków wykazujących skuteczność in vivo na poznawcze i funkcjonalne zachowania motoryczne w transgenicznych mysich modelach β-amyloidozy i tauopatii. Metody te są zoptymalizowane pod kątem badań przesiewowych związków pod kątem aktywności w zadaniach pamięci krótkotrwałej i roboczej.
Artykuł metodologiczny
Ocena spontanicznej przemiany, rozpoznawania nowych obiektów i zaciskania kończyn w transgenicznych mysich modelach β amyloidu i neuropatologii tau
W tym artykule
Podsumowanie
Streszczenie
Tutaj opisujemy etapowe, behawioralne podejście do testowania, które może być użyte do badania przesiewowego pod kątem związków wykazujących in vivo skuteczność w poznawczych i funkcjonalnych zachowaniach motorycznych w transgenicznych mysich modelach β-amyloidozy i tauopatii. Paradygmat obejmuje testy spontanicznej przemiany w labiryncie Y, rozpoznawanie nowych obiektów i zaciskanie kończyn. Testy te zostały wybrane, ponieważ: 1) badają funkcję domen poznawczych lub motorycznych i korelują obwody neuronalne istotne dla stanu choroby człowieka, 2) mają jasno określone punkty końcowe, 3) mają łatwe do wdrożenia kontrole jakości, 4) mogą być przeprowadzane w formacie o umiarkowanej przepustowości i 5) wymagają niewielkiej interwencji badacza. Metody te są przeznaczone dla badaczy, którzy chcą badać związki pod kątem aktywności w zadaniach pamięci krótkotrwałej i roboczej lub funkcjonalnych zachowań motorycznych związanych z mysimi modelami choroby Alzheimera. Opisane tutaj metody wykorzystują testy behawioralne, które angażują wiele różnych regionów mózgu, w tym hipokamp i różne obszary kory mózgowej. Badacze, którzy pragną testów poznawczych, które konkretnie oceniają funkcje poznawcze, w których pośredniczy pojedynczy region mózgu, mogą wykorzystać te techniki do uzupełnienia innych testów behawioralnych.
Wprowadzenie
Choroba Alzheimera (AD) jest postępującym zaburzeniem neurodegeneracyjnym powodującym wyniszczający spadek funkcji poznawczych, który dotyka około 44 milionów ludzi na całym świecie. Obecnie nie ma dostępnych metod leczenia choroby Alzheimera, które modyfikują przebieg choroby, co podkreśla pilną potrzebę przedklinicznego odkrycia nowych strategii terapeutycznych dla tej choroby. Stworzono wiele różnych modeli myszy transgenicznych, które podsumowują różne aspekty AD1,2, w tym deficyty w domenach poznawczych zaburzone u pacjentów3. Te modele myszy stanowią użyteczne narzędzie ułatwiające skuteczne badania przesiewowe in vivo.
Podczas oceny związku pod kątem potencjalnej skuteczności in vivo, należy przyjąć podejście etapowe, które sprawdza skuteczność w odpowiednich domenach poznawczych, a także monitoruje zachowania, które mogą wpływać na konkretne punkty końcowe używane do oceny funkcji poznawczych. Wiele transgenicznych mysich modeli AD wykazuje nadpobudliwość i inne zachowania, które mogą zakłócać konkretny test poznawczy i zabraniają jego stosowania w badaniach przesiewowych leków4. Ponadto, aby podejście mogło zostać wdrożone w środowisku badań przesiewowych leków, poszczególne stosowane testy powinny utrzymywać co najmniej umiarkowaną przepustowość, mieć jasno określone punkty końcowe oraz procedurę, która wymaga minimalnej interwencji ze strony badaczy. Korzystając z tych kryteriów, można wdrożyć behawioralne badania przesiewowe, które wykazują odtwarzalność, niską wariancję wewnątrz- i międzytestową oraz wielkości efektu potrzebne do badań przesiewowych związków. Poniżej szczegółowo opisano metody, które zastosowaliśmy do badań przesiewowych pod kątem związków skutecznych w łagodzeniu fenotypów poznawczych i motorycznych obecnych w transgenicznych mysich modelach β-amyloidozy i tauopatii5,6. Opisane metody są zaadaptowane z powszechnie stosowanych paradygmatów behawioralnych opisanych w literaturze7, ze specyficznymi optymalizacjami i kontrolami jakości, tak aby można je było stosować w transgenicznych modelach myszy istotnych dla AD. Protokół ten może być używany z różnymi systemami gromadzenia i analizy danych i zakłada, że badacz posiada praktyczną wiedzę na temat powiązanego oprogramowania.
Protokół
Metody szczegółowo opisane w niniejszej publikacji zostały zatwierdzone przez instytucjonalny komitet ds. opieki i użytkowania zwierząt (IACUC) w Hilltop Laboratory Animals, aby zapewnić właściwą opiekę, użytkowanie i humanitarne traktowanie zwierząt zgodnie z obowiązującymi przepisami federalnymi, stanowymi i lokalnymi, takimi jak federalne przepisy dotyczące dobrostanu zwierząt, Animal Welfare Regulations (AWRs) (CFR 1985), oraz polityka Public Health Service w zakresie humanitarnej opieki i użytkowania zwierząt laboratoryjnych, PHS Policy (PHS 1996).
1. Ogólne wytyczne dotyczące wszystkich ocen behawioralnych
- Przed jakimikolwiek czynnościami z udziałem zwierząt, zakryć obecne karty klatek nowymi kartami, które zawierają jedynie unikalny, zanonimizowany identyfikator zwierzęcia.
UWAGA: Badaczom, którzy zajmują się myszami podczas rutynowego podawania związku lub placebo, nie wolno przeprowadzać oceny behawioralnej tych zwierząt. - Przyciemnić lub wyłączyć oświetlenie górne i dostosować natężenie światła tak, aby oświetlenie dna areny lub labiryntu wynosiło 30-35 lux.
- W przypadku badań trwających kilka tygodni, raz w tygodniu rejestrować masę ciała jako pośrednią miarę ogólnego stanu zdrowia.
UWAGA: Jeśli wymagana jest bardziej szczegółowa kontrola zdrowia, można wprowadzić dodatkowe kontrole przy klatkach pod kątem jakości okrywy włosowej, postawy, chodu i spontanicznej lokomocji.
2. Oswajanie myszy z kontaktem z badaczami
- Na dwa dni przed każdym testem behawioralnym poddaj myszy habituacji do obchodzenia. Wyjmij klatkę z regału i postaw ją na płaskiej powierzchni.
- Zdejmij pokrywę z klatki. Chwyć mysz w dokładnie taki sam sposób, w jaki będzie ona manipulowana podczas nadchodzącego testu behawioralnego. Umieść mysz w złączonych w kształt miseczki dłoniach nad klatką domową.
- Zmierz czas latencji do skoku z dłoni badacza z powrotem do klatki domowej. Przytrzymuj myszy maksymalnie przez 5 s.
UWAGA: Myszy, u których latencja wynosi ≥2 s, uznaje się za „zahabituowane”. Myszy, u których podczas pierwszej próby latencja wynosi <2 s, przechodzą tego dnia 2 dodatkowe sesje habituacji. - Poddaj myszy habituacji do obchodzenia przez 2 kolejne dni. Odnotuj każdą mysz, która nie zostanie zahabituowana do końca 2nd dnia.
3. Ocena przestrzennej pamięci roboczej poprzez pomiar spontanicznej alternacji w labiryncie w kształcie litery Y8
- Przed pierwszym użyciem dokładnie wyczyść labirynt w kształcie litery Y bezzapachową bakteriobójczą chusteczką z wybielaczem, a następnie 70% EtOH i dH2O9. Wyraźnie oznacz ramiona labiryntu jako „A”, „B” i „C” lub za pomocą innych porównywalnych, unikalnych identyfikatorów.
- Przed rozpoczęciem sesji testowej uruchom system akwizycji danych lub kamery wideo i skonfiguruj odpowiednie śledzenie myszy w labiryncie. Skalibruj odległość w labiryncie, korzystając z przechwyconych obrazów wideo linijki lub innego obiektu o znanej długości.
UWAGA: Metody behawioralne opisane w tej procedurze będą działać z różnymi systemami akwizycji danych; autorzy zakładają, że osoba wykonująca tę procedurę biegle posługuje się wybranym systemem akwizycji danych. Analizy mocy wskazują, że dla β ≤0.2 wymagane są wielkości próby wynoszące 10-15 myszy na grupę. - Wyjmij klatkę ze stojaka i ostrożnie postaw ją na stole w bezpośrednim sąsiedztwie labiryntu Y. Wyjmij mysz z klatki domowej i ostrożnie umieść ją w jednym z ramion labiryntu Y, zwróconą w stronę centrum. Badacz powinien odsunąć się od labiryntu na odległość, która uniemożliwi myszy jego dostrzeżenie.
- Aktywuj system akwizycji danych/wideo natychmiast po umieszczeniu myszy w labiryncie.
- Naciśnij przycisk odtwarzania i rejestruj spontaniczne zachowanie każdej myszy przez okres 10 min. Po zakończeniu sesji ostrożnie umieść mysz z powrotem w klatce domowej i odstaw klatkę na stojak.
- Między każdą sesją dokładnie wyczyść labirynt bezzapachową bakteriobójczą chusteczką z wybielaczem, 70% EtOH, a następnie dH2O. Powtórz kroki od 3.4 do oceny wszystkich myszy.
- Po zakończeniu eksploracji labiryntu Y przez wszystkie myszy przeanalizuj dane z systemu akwizycji lub ręcznie oceń nagrania wideo z sesji. Wejście do ramienia uznaje się za dokonane, gdy wszystkie 4 łapy myszy przekroczą próg strefy centralnej i wejdą do ramienia, a pysk zwierzęcia jest skierowany w stronę końca ramienia.
UWAGA: Analizowane punkty końcowe obejmują: całkowitą odległość pokonaną w labiryncie, całkowitą odległość pokonaną w każdym ramieniu (łącznie ze strefą centralną), całkowity czas spędzony w każdym ramieniu (łącznie ze strefą centralną), całkowitą liczbę wejść do ramion, liczbę wejść do każdego z ramion oraz sekwencyjną listę wejść do ramion w celu oceny liczby dokonanych alternacji. - Spontaniczna alternacja występuje, gdy mysz wchodzi do innego ramienia labiryntu w każdym z 3 kolejnych wejść. Procent spontanicznych alternacji oblicza się następnie według następującego wzoru.
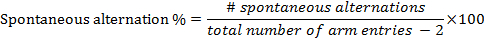
UWAGA: Na przykład, jeśli kolejność wejść do ramion była: ABCCBABCABC, badacz odnotowałby łącznie 6 spontanicznych alternacji (w kolejności: ABC, CBA, ABC, BCA, CAB, ABC). Przy łącznej liczbie 11 wejść do ramion procent spontanicznych alternacji wyniósłby 67%. - Wykonaj następujące kontrole jakości, aby upewnić się, że dane reprezentują obiektywną ocenę spontanicznej alternacji.
- Wykonaj korelację Pearsona procentu spontanicznych alternacji zarówno z całkowitą pokonaną odległością, jak i liczbą wejść do ramion.
UWAGA: Jeśli występuje istotna korelacja procentu spontanicznych alternacji z którymkolwiek z tych parametrów, dane powinny zostać poddane dalszej analizie ze względu na potencjalny wpływ hiperdynamicznej lokomocji na pozorny poznawczy punkt końcowy10. - Przeanalizuj liczbę wejść do każdego ramienia za pomocą testu jednoczynnikowej analizy wariancji (ANOVA).
UWAGA: Jeśli ta analiza okaże się istotna, będzie to wskazywać na obecność w środowisku wskazówek, które przyciągały myszy do konkretnego obszaru labiryntu.
- Wykonaj korelację Pearsona procentu spontanicznych alternacji zarówno z całkowitą pokonaną odległością, jak i liczbą wejść do ramion.
4. Ocena średnioterminowej pamięci rozpoznawania poprzez pomiar rozpoznawania nowego obiektu11,12,13
- Przed każdą fazą tego testu należy dokładnie oczyścić arenę otwartego pola za pomocą bezzapachowej chusteczki germicydowej z wybielaczem, 70% EtOH, a następnie wodą destylowaną (dH2O).2Przed pierwszym użyciem.
- Na jeden dzień przed ekspozycją na obiekt poddaj myszy habituacji do areny otwartego pola.
- Przed rozpoczęciem sesji habituacji należy przygotować system akwizycji danych lub kamery wideo i potwierdzić prawidłowe śledzenie myszy w labiryncie. Skalibrować odległość w arenie, wykorzystując zarejestrowane obrazy wideo linijki lub innego obiektu o znanej długości. W oprogramowaniu należy zaznaczyć narożniki areny, aby umożliwić ocenę preferencji pozycji.
UWAGA: Metody behawioralne opisane w niniejszej procedurze można zastosować z różnymi systemami akwizycji danych; autorzy zakładają, że osoba wykonująca procedurę biegle posługuje się wybranym systemem akwizycji danych. Analizy mocy wskazują, że dla β ≤0,2 wymagana jest liczebność próby wynosząca 15–20 myszy na grupę. - Wyjmij klatkę ze stojaka i ostrożnie ustaw ją na stole w bezpośrednim sąsiedztwie areny.
- Wyjmij mysz z klatki domowej i ostrożnie umieść ją w centrum areny. Bezzwłocznie po umieszczeniu myszy w arenie uruchom oprogramowanie do śledzenia i/lub system rejestracji wideo.
- Pozostawić myszy do swobodnej eksploracji areny przez 30 min.
UWAGA: W tym okresie badacze nie będą niepokoić myszy. - Po sesji habituacji umieść myszy z powrotem w ich klatkach domowych, a arenę dokładnie oczyść bezzapachową bakteriobójczą chusteczką z wybielaczem, 70% EtOH, a następnie wodą destylowaną (dH2O).2O.
- Powtarzać krok 4.2.2 do czasu, aż wszystkie myszy zostaną oswojone z areną.
- Po habituacji wszystkich myszy do areny należy przeanalizować nagranie wideo.
UWAGA: Punkty końcowe podlegające analizie obejmują całkowity dystans przebyty w arenie oraz czas spędzony w pobliżu każdego z narożników. Jeśli jest to istotne dla modelu mysiego, w analizach tych uwzględnia się zachowania stereotypowe (t. j.skoki miokloniczne w kątach, krążenie, itp.). Myszy wykazujące preferencje czasowe w konkretnych obszarach areny są wykluczane z dalszych eksperymentów, ponieważ mogłoby to wpłynąć na eksplorację obiektów.
UWAGA: Pierwsza faza rozpoznawania nowego obiektu polega na zapoznaniu myszy z obiektem. W dalszej części procedury rozpoznawania nowego obiektu etap ten będzie określany jako faza próbna (Sample phase). - Przed rozpoczęciem sesji w fazie próbnej umieść obiekty w arenie i przymocuj je do podłoża za pomocą masy mocującej, aby zwierzęta nie mogły ich przesuwać. Ustaw dwa identyczne obiekty przy konkretnej ścianie, zachowując między ścianami a obiektami wystarczający odstęp, aby myszy mogły swobodnie badać obiekty z każdej strony.
- Skonfiguruj system akwizycji danych lub kamery wideo i potwierdź prawidłowe śledzenie myszy oraz obiektów w labiryncie. Kalibruj odległości w arenie, wykorzystując przechwycone obrazy wideo linijki lub innego obiektu o znanej długości.
- Zaznacz narożniki areny w oprogramowaniu, aby umożliwić ocenę preferencji pozycyjnych. Zaznacz obiekty w oprogramowaniu i śledź zachowania eksploracyjne oddzielnie dla każdego obiektu (t. j., „Obiekt A” i „Obiekt B”).
- Wyjmij klatkę z regału i ostrożnie umieść ją na stole w bezpośrednim sąsiedztwie areny.
- Wyjmij mysz z klatki domowej i delikatnie umieść ją w centrum areny, przodem do obiektów.
- Pozostaw mysz na 15 min, aby mogła swobodnie badać obiekty. W tym czasie nie należy niepokoić myszy.
- Po zakończeniu sesji delikatnie umieść mysz z powrotem w jej klatce domowej. Oczyść arenę oraz obiekty 70% EtOH i wodą destylowaną (dH2O).2O. Umieść te obiekty z powrotem w arenie.
- Powtarzać krok 4.2.11 do czasu, aż wszystkie myszy oswoją się z obiektem.
- Po zapoznaniu wszystkich myszy z obiektem należy przeprowadzić analizę nagrań wideo.
UWAGA: Eksploracje obiektów są liczone po spełnieniu następujących kryteriów: mysz jest zorientowana w stronę obiektu, pysk znajduje się w odległości do 2 cm od obiektu, środek ciała zwierzęcia znajduje się w odległości powyżej 2 cm od obiektu, a powyższe kryteria są spełnione przez co najmniej 1 s. Ponadto, jeśli zwierzę spełniło kryteria eksploracji, lecz wykazuje unieruchomienie przez > Po 10 s uznaje się, że seria eksploracyjna została zakończona. - Oblicz wskaźnik preferencji obiektu (object bias score) dla każdej myszy w następujący sposób.
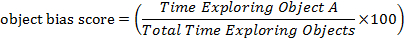
UWAGA: Myszy wykazujące wskaźnik preferencji obiektu poniżej 20% lub powyżej 80% są wykluczane z dalszych eksperymentów.
- Przed rozpoczęciem sesji habituacji należy przygotować system akwizycji danych lub kamery wideo i potwierdzić prawidłowe śledzenie myszy w labiryncie. Skalibrować odległość w arenie, wykorzystując zarejestrowane obrazy wideo linijki lub innego obiektu o znanej długości. W oprogramowaniu należy zaznaczyć narożniki areny, aby umożliwić ocenę preferencji pozycji.
- Końcowa faza rozpoznawania nowego obiektu polega na ocenie zachowań eksploracyjnych skierowanych zarówno w stronę obiektu nowego, jak i znanego w otoczeniu, co określono tutaj mianem fazy testowej. Faza ta jest przeprowadzana 2–3 h po zakończeniu fazy próbnej.
- Przed rozpoczęciem sesji w fazie testowej należy umieścić obiekty w arenie i przymocować je do podłoża w taki sposób, aby zwierzęta nie mogły ich przesuwać.
- Umieść obiekty w arenie w tych samych pozycjach, co w fazie próbnej.13.
- Zrównoważyć względne położenie nowych i znanych obiektów pomiędzy genotypami a grupami badawczymi.
- Należy zachować odpowiednią odległość między ściankami a obiektami, aby myszy mogły swobodnie badać obiekty z każdej strony.
- Skonfiguruj system akwizycji danych i/lub kamery wideo. Potwierdź prawidłowe śledzenie myszy i obiektów w labiryncie. Skalibruj odległości w arenie, wykorzystując przechwycone obrazy wideo linijki lub innego obiektu o znanej długości.
- Zaznacz narożniki areny w oprogramowaniu, aby umożliwić ocenę preferencji pozycyjnych. Zaznacz obiekty w oprogramowaniu i śledź zachowania eksploracyjne osobno dla każdego obiektu (t. j., „Nowy” oraz „Znany”).
- Wyjmij klatkę ze stojaka i ostrożnie umieść ją na stole w bezpośrednim sąsiedztwie areny.
- Ostrożnie umieść zwierzęta w centrum areny, przodem do obiektów. Rejestruj swobodną eksplorację obiektów przez myszy przez 10 min.
- Po zakończeniu sesji testowej należy wyjąć myszy z areny i umieścić je z powrotem w ich klatkach macierzystych. Arenę oraz znajdujące się w niej przedmioty należy dokładnie oczyścić bezzapachową bakteriobójczą chusteczką z wybielaczem, 70% EtOH oraz dH2O.2O po każdej sesji.
- Powtarzać od kroku 4.4.3, aż do momentu oceny wszystkich zwierząt.
- Po zmierzeniu eksploracji obiektu u wszystkich myszy analizowane są nagrania wideo.
UWAGA: Eksploracje obiektów są liczone po spełnieniu następujących kryteriów: mysz jest skierowana w stronę obiektu, pysk znajduje się w odległości do 2 cm od obiektu, środek ciała zwierzęcia znajduje się w odległości powyżej 2 cm od obiektu, a powyższe kryteria są spełnione przez co najmniej 1 s. Ponadto, jeśli zwierzę spełniło kryteria eksploracji, ale wykazuje bezruch przez > po 10 s uznaje się, że faza eksploracyjna dobiegła końca. - Oceń rozpoznawanie nowych obiektów, porównując czas spędzony na eksploracji obiektu nowego i znanego. W literaturze najczęściej opisuje się trzy metody.
- Przeanalizuj surowe dane dotyczące czasu spędzonego na eksploracji obiektów nowych i znanych, stosując test z powtarzanymi pomiarami. Metoda ta jest najbardziej odpowiednia w sytuacjach, gdy genotyp i/lub zastosowana procedura nie wpływają na całkowity czas eksploracji.
- Obliczyć preferencję nowości, korzystając z równania:
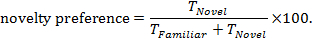
UWAGA: Wartość ta określa procent czasu spędzonego na eksploracji nowego obiektu w stosunku do całkowitego czasu eksploracji obiektów. Wartości wahają się od 0% (brak eksploracji nowego obiektu) do 100% (eksploracja wyłącznie nowego obiektu), przy czym wartość 50% oznacza równy czas spędzony na eksploracji obiektu nowego i znanego. - Oblicz wskaźnik dyskryminacji11korzystując z równania:
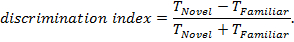
UWAGA: Pozwala to na obliczenie różnicy w czasie spędzonym na eksploracji obiektu nowego i znanego w stosunku do całkowitego czasu eksploracji obiektów. Wartości mieszczą się w zakresie od -1 (eksploracja wyłącznie obiektu znanego) do +1 (eksploracja wyłącznie obiektu nowego), przy czym wartość 0 oznacza równy czas poświęcony na eksplorację obiektu nowego i znanego.
- Z analizy należy wykluczyć zwierzęta, które nie uczestniczyły w sesji testowej z powodu nadmiernej aktywności lokomotorycznej lub innych stereotypii.11.
UWAGA: Kryteria stosowane do usunięcia muszą być obiektywne i określone a priori dla modelu mysiego (t. j., <5th percentyl dla całkowitego czasu eksploracji i któregokolwiek z >średni kąt skrętu wynoszący 100 podczas sesji testowej lub >50th percentyl czasu występowania mioklonicznych skoków kącików ust).
- Przed rozpoczęciem sesji w fazie testowej należy umieścić obiekty w arenie i przymocować je do podłoża w taki sposób, aby zwierzęta nie mogły ich przesuwać.
5. Ocena funkcji korowo-rdzeniowej u myszy z przykurczem kończyn14
- Dokumentuj całą sesję w formie wideo. Nagrywaj wideo za pomocą przenośnego urządzenia ręcznego (tj. smartfona lub odpowiednika).
UWAGA: Analizy mocy wskazują, że dla β ≤0.2 wymagana jest wielkość próby wynosząca 10-15 myszy na grupę. - Wyjmij klatkę domową z regału i postaw ją na stole. Przed przejściem do następnego kroku udokumentuj w wideo identyfikator zwierzęcia.
- Ostrożnie wyjmij mysz z klatki i zawieś ją za ogon na 5-10 s. Wideo musi rejestrować tylne i przednie łapy zwierzęcia podczas zawieszenia.
- Po zarejestrowaniu co najmniej 5 s wideo, umieść mysz z powrotem w klatce domowej i zwróć klatkę na regał.
- Wyczyść stół. Powtarzaj od kroku 5.2, aż wszystkie myszy zostaną nagrane.
- Oceń przykurcz kończyn (limb clasping) na podstawie nagrań wideo myszy zawieszonych za ogon w skali od 0-4 (opis punktacji znajduje się w Tabeli 1). Przejrzyj nagrania zawieszonych myszy, a następnie przypisz ocenę na podstawie następujących kryteriów:
- Brak przykurczu kończyn. Normalne wyprostowanie ucieczkowe. Jedna tylna kończyna wykazuje niepełne rozstawienie i utratę mobilności. Palce wykazują normalne rozstawienie.
- Obie tylne kończyny wykazują niepełne rozstawienie i utratę mobilności. Palce wykazują normalne rozstawienie.
- Obie tylne kończyny wykazują przykurcz z podwiniętymi palcami i unieruchomieniem.
- Kończyny przednie i tylne wykazują przykurcz i są skrzyżowane, palce są podwinięte, występuje unieruchomienie.
- Wszystkie myszy są oceniane przez 2 niezależnych badaczy. W przypadku każdej myszy, dla której dwie oceny różnią się o więcej niż 1 punkt, przeprowadza się ponowną ocenę.
- Różniące się oceny są uśredniane.

Tabela 1: Opis ocen kleszczenia kończyn.
Wyniki
U starszych myszy Tg2576 obserwuje się wyraźne deficyty w spontanicznych naprzemiennościach w labiryncie Y15,16, co jest fenotypem, który można powtórzyć, stosując metody opisane w niniejszym materiale (Rysunek 1A). Chociaż u tych myszy zauważono tendencję do zwiększonej liczby wejść do ramion (Rysunek 1B), zaobserwowana u tej linii myszy hiperaktywność nie wpłynęła na wskaźnik spontanicznej naprzemienności (Rysunek 1C). Z kolei starsze myszy rTg4510 wydają się wykazywać zwiększoną spontaniczną naprzemienność po umieszczeniu w labiryncie Y (Rysunek 1D). Wynika to z ekstremalnej hiperaktywności (Rysunek 1E) i stereotypii10, które znacząco zakłócają pomiar spontanicznej naprzemienności (Rysunek 1F). Podczas wstępnej oceny myszy w tym zadaniu kluczowe jest upewnienie się, że liczba wejść do ramion i/lub przebyta odległość nie korelują znacząco ze wskaźnikiem spontanicznej naprzemienności.
Przed oceną rozpoznawania nowego obiektu myszy są habituowane do areny, w której zostanie przeprowadzony test. Podczas habituacji można ocenić nadaktywność (Rysunek 2A) oraz inne stereotypowe zachowania istotne dla danego modelu mysiego. W fazie próbnej krytyczne jest oddzielne pomierzenie eksploracji każdego obiektu, aby myszy wykazujące znaczne preferencje w zachowaniu eksploracyjnym mogły zostać wykluczone z dalszej oceny (Rysunek 2B, otwarte kółka). Rozpoznawanie nowego obiektu ocenia się poprzez porównanie eksploracji obiektu znanego i nowego, a wyniki analizuje się zazwyczaj na trzy różne sposoby. Jeśli całkowity czas eksploracji jest porównywalny między genotypami i/lub grupami traktowanymi, do określenia różnic w rozpoznawaniu nowego obiektu można wykorzystać surowy czas eksploracji każdego obiektu oraz odpowiednie testy z powtarzanymi pomiarami (Rysunek 2C). Jeśli konkretna szczep myszy wykazuje różnice w całkowitym czasie eksploracji, rozpoznawanie nowego obiektu można ocenić, stosując preferencję nowości (Rysunek 2D) lub indeks dyskryminacji (Rysunek 2E).
Przykurcz kończyn (limb clasping) jest funkcjonalnym testem motorycznym, który pozwala ilościowo określić deficyty funkcji korowo-rdzeniowych. Przykurcz kończyn, który nie jest miarą poznawczą, obserwuje się u kilku transgenicznych modeli myszy tau6,17,18,19, co odzwierciedla niektóre z funkcjonalnych deficytów motorycznych obserwowanych u pacjentów z zaawansowaną postacią choroby Alzheimera. Podwieszenie myszy za ogon wywołuje reakcję ucieczki (Rycina 3A, „0”). Deficyty w zdolności do rozszerzania kończyn tylnych i prostowania palców są oceniane pod kątem ich nasilenia w skali od 0 do 4 (Rycina 3A). Stosując opisaną tutaj procedurę, można zaobserwować znaczny przykurcz kończyn u myszy rTg4510 (Rycina 3B).

Rycina 1: Spontaniczna naprzemienność w labiryncie Y. (A) Po umieszczeniu w labiryncie Y myszy przyjmują strategię poszukiwania typu lose-shift, co skutkuje wzorcem eksploracji, w którym każde ramię jest badane tylko raz na każde 3 wejścia do ramion. Starsze myszy Tg2576 wykazują znaczący deficyt w spontanicznej naprzemienności. Stosując procedury opisane w tej metodzie, zaobserwowano znaczną regenerację spontanicznej naprzemienności po zastosowaniu zastrzeżonego związku. Dane analizowano za pomocą jednoczynnikowej analizy wariancji (1-way ANOVA), a porównania post-hoc względem grupy Tg-PBS przeprowadzono za pomocą testu Dunnetta. **p <0.01. Słupki błędów oznaczają SEM. (B) Liczba wejść do ramion nie różniła się znacząco we wszystkich grupach monitorowanych w tym eksperymencie. Dane analizowano za pomocą testu 1-way ANOVA. Słupki błędów oznaczają SEM. (C) Nie stwierdzono korelacji między spontaniczną naprzemiennością a liczbą wejść do ramion, co wskazuje, że różnice w spontanicznej aktywności lokomocyjnej nie wpłynęły na kwantyfikację spontanicznej naprzemienności. Test korelacji przeprowadzono za pomocą analizy korelacji Pearsona. (D) Po umieszczeniu w labiryncie Y myszy rTg4510 (6 miesięcy) wydają się wykazywać znacznie większą spontaniczną naprzemienność w porównaniu z myszami WT z tego samego miotu. Dane analizowano za pomocą 1-way ANOVA, a porównania post-hoc względem grupy Tg-PBS przeprowadzono za pomocą testu Dunnetta. **p <0.01. Słupki błędów oznaczają SEM. (E) Myszy rTg4510 wykonały znacząco więcej wejść do ramion ze względu na ekstremalnie hiperdynamiczną lokomocję. Dane analizowano za pomocą 1-way ANOVA, a porównania post-hoc względem grupy Tg-PBS przeprowadzono za pomocą testu Dunnetta. ***p <0.001. Słupki błędów oznaczają SEM. (F) Zachowanie spontanicznej naprzemienności wykazało znaczącą korelację z wejściami do ramion, co wskazuje, że hiperdynamiczny fenotyp lokomocyjny zamaskował rzeczywistą spontaniczną naprzemienność. Test korelacji przeprowadzono za pomocą analizy korelacji Pearsona (r = 0.7, p <0.0001). Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
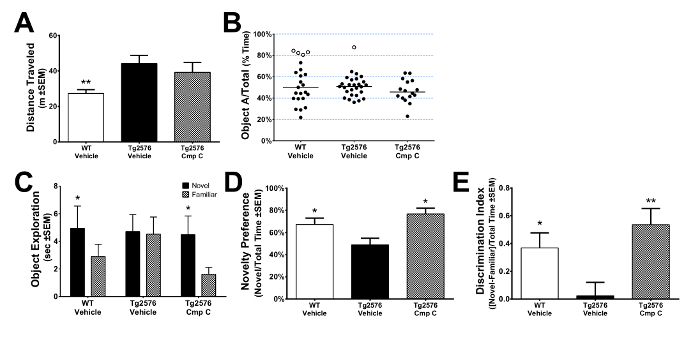
Rycina 2: Rozpoznawanie nowych obiektów. (A) Habituacja w arenie umożliwia pomiar spontanicznej lokomocji oraz innych stereotypowych zachowań istotnych dla konkretnego modelu mysiego. Tutaj starsze myszy Tg2576 (22 miesiące) wykazują znacząco większą spontaniczną lokomocję w porównaniu do myszy WT z tego samego miotu. Dane analizowano za pomocą jednoczynnikowej analizy wariancji (1-way ANOVA), a porównania post-hoc względem grupy Tg-Veh przeprowadzono testem Dunnetta. **p <0.01. Słupki błędów oznaczają SEM. (B) W fazie próbnej oddzielnie śledzono eksplorację dwóch identycznych obiektów. Myszy wykazujące silną preferencję eksploracji jednego z dwóch obiektów (otwarte kółka) zostały wykluczone z fazy testowej. (C-E) Rozpoznawanie nowych obiektów oceniano poprzez pomiar eksploracji obiektu nowego i znanego. Rozpoznawanie nowych obiektów oceniano na podstawie (C) surowego czasu eksploracji, (D) preferencji nowości lub (E) indeksu dyskryminacji. Dane na panelu C analizowano za pomocą dwuczynnikowej analizy wariancji (2-way ANOVA) z powtarzanymi pomiarami, a porównania parowe wykonano testem Sidaka. Dane na panelach D-E analizowano za pomocą jednoczynnikowej analizy wariancji (1-way ANOVA), a porównania post-hoc względem grupy Tg-Veh przeprowadzono testem Dunnetta. *p <0.05, **p <0.01. Słupki błędów oznaczają SEM. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
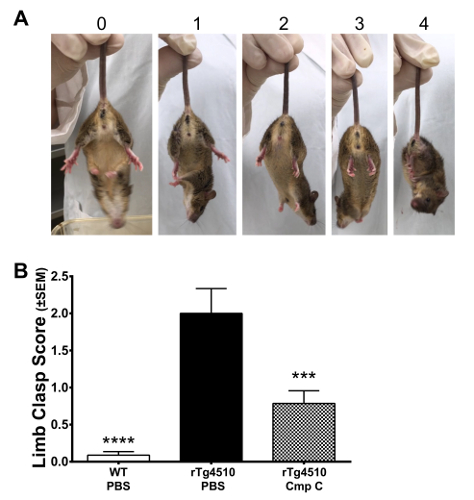
Rycina 3: Przykurcz kończyn. (A) Reprezentatywne zdjęcia myszy wykazujących różny stopień przykurczu kończyn, zgodnie z opisem w Tabeli 1. (B) Myszy rTg4510 (6 miesięcy) wykazują znaczący przykurcz kończyn w porównaniu do myszy WT z tego samego miotu, oceniany zgodnie z zastosowanymi metodami. Dane przeanalizowano za pomocą jednoczynnikowej analizy wariancji (1-way ANOVA), a porównania post-hoc względem grupy Tg-PBS przeprowadzono testem Dunnetta. ***p <0.001, ****p <0.0001. Słupki błędów oznaczają SEM. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Znaczenie techniki w odniesieniu do istniejących metod
Procedura ta została zaprojektowana w celu przeprowadzenia badań przesiewowych pod kątem aktywności in vivo związków w transgenicznych mysich modelach β-amyloidozy i tauopatii. Zastosowane tu podejście etapowe zapewnia wykrywanie skutecznych związków w domenach poznawczych istotnych dla AD3. Co więcej, opisane tutaj podejście wykorzystuje testy behawioralne, które mają jasno zdefiniowane punkty końcowe, łatwe do wdrożenia kontrole jakości, mogą być uruchamiane w formacie o umiarkowanej przepustowości i wymagają niewielkiej interwencji ze strony badacza. Cechy te skutkują testami, które wykazują dobrą odtwarzalność na zwierzętach i w kohortach, co skutkuje niską wariancją wewnątrz- i międzytestową oraz wielkościami efektu (2 ≤f ≤6), które są wystarczająco solidne, aby wspierać profilowanie behawioralne w środowisku odkrywania leków.
Kluczowe kroki w ramach protokołu
Wiele modeli mysich wykorzystywanych do odkrywania leków na chorobę Alzheimera wykazuje zachowania zgodne ze zwiększonym lękiem i agresją. To sprawia, że radzenie sobie z przyzwyczajeniem jest niezbędne do wykonania któregokolwiek z opisanych tutaj testów behawioralnych. Ponieważ testy te opierają się na nieumotywowanych zachowaniach, nieostrożne obchodzenie się z nią przez badacza z powodu nadpobudliwej i niespokojnej lub agresywnej myszy może znacząco wpłynąć na wydajność. Zwiększony niepokój może skutkować niewykonaniem zadania, zmniejszając ogólną moc testu. Co więcej, poziom światła na arenie jest niezbędny do ułatwienia spontanicznej lokomocji potrzebnej do każdego testu. Jasne światło ma tendencję do zwiększania niepokoju i tłumienia lokomocji u gryzoni, dlatego należy zadbać o dostosowanie poziomu światła otoczenia do 30-35 luksów na arenie.
Innym krytycznym aspektem procedury jest minimalizacja silnych sygnałów środowiskowych, które mogłyby zakłócać zdolność zwierzęcia do wykonywania zadań. Sprzątanie areny i obiektów między biegami jest niezbędne, ponieważ myszy przyciągają nowe zapachy w otoczeniu. Brak dokładnego oczyszczenia areny i obiektów może skutkować zniekształceniem spontanicznej aktywności myszy i zamaskowaniem prawdziwej sprawności poznawczej. Badacze powinni również zminimalizować użycie środków higieny osobistej i wód kolońskich/perfum podczas wykonywania tych procedur. Wreszcie, gryzonie wykazują silne zmiany dobowe i okołodobowe w wielu jawnych zachowaniach20 , w tym w uczeniu się ipamięci21. Dlatego, aby zminimalizować wariancję wynikającą z rytmów dobowych w podstawowych zachowaniach i sprawności poznawczej, wszystkie testy powinny być wykonywane o tej samej porze dnia we wszystkich kohortach i badaniach.
Ponadto, szczególnie w odniesieniu do rozpoznawania nowych obiektów, krytycznymi parametrami są odstęp czasu między próbką a fazą testową oraz wybór i rozmieszczenie obiektów w środowisku. Pamięć występuje w 3 różnych formach: pamięci krótkotrwałej (STM), pamięci krótkotrwałej (ITM) i pamięci długotrwałej (LTM)22,23. Zmiana interwału między fazami próbki i testu z minut (STM) na godziny (ITM) lub dni (LTM) zmieni typ pamięci testowanej przez procedurę12. Co więcej, przed przeprowadzeniem testu rozpoznawania nowych obiektów, wiele obiektów powinno zostać przebadanych w kohorcie testowej myszy pod kątem potencjalnych uprzedzeń podczas eksploracji. Obiekt, który jest nadmiernie atrakcyjny lub odpychający dla kohorty testowej, nie może być używany do oceny rozpoznawania nowego obiektu. Idealnie byłoby, gdyby wszystkie obiekty, które zostaną użyte w teście, po umieszczeniu na arenie wywołały równy czas eksploracji od naiwnej kohorty myszy. Nieodpowiednie testowanie i optymalizacja obiektów może znacznie zmniejszyć moc rozpoznawania nowych obiektów.
Modyfikacje i rozwiązywanie problemów
Istnieje kilka czynników, które mogą zwiększyć pozorną zmienność w opisywanych tutaj testach poznawczych. Wiele mysich modeli AD wykazuje hiperdynamiczną lokomocję3, która może maskować lub zmieniać zachowania mierzone jako poznawczy punkt końcowy. Co więcej, istnieje coraz więcej dowodów na to, że płeć 24,25,26, a nawet genotyp matki 27 mogą wpływać na rozwój i progresję neuropatologii i fenotypów poznawczych w mysich modelach AD. Nieoczekiwana zmienność lub niepowodzenie w realizacji zadania behawioralnego może być spowodowane dowolnym z tych czynników. Przy pierwszym wdrażaniu konkretnego testu behawioralnego wyniki powinny być zawsze stratyfikowane według płci, wieku i, w stosownych przypadkach, genotypu matki. Ponadto kontrole jakości przedstawione w tej procedurze powinny być zawsze przeprowadzane, aby upewnić się, że nadpobudliwość lub inne stereotypowe zachowania nie zakłócają kwantyfikacji poznawczych punktów końcowych.
Środowisko może również wpływać na spontaniczne zachowania eksploracyjne gryzoni. Zapachy lub dźwięki, które są niewykrywalne dla badaczy, mogą przyciągać lub odstraszać myszy, zniekształcając wyniki testów poznawczych, które opierają się na spontanicznym zachowaniu. Przy początkowym ustalaniu labiryntu Y lub rozpoznawania nowych obiektów, niezbędne jest wykonanie środków kontrolnych w celu zapewnienia, że nie ma uprzedzeń pozycyjnych podczas eksploracji obiektów i/lub środowiska. Jeśli zaobserwuje się odchylenia pozycyjne, badacze muszą dokładnie przeanalizować środowisko i potencjalnie dostosować oświetlenie, rozmieszczenie areny, lokalizację pomieszczenia testowego względem innych pomieszczeń w obiekcie (tj. nie w pobliżu obszaru o dużym natężeniu ruchu lub ciężkiego sprzętu) oraz procedury czyszczenia areny.
Przyzwyczajenie się do środowiska testowego jest kluczem do osiągnięcia optymalnej wydajności w teście rozpoznawania nowych obiektów. Na przykład krótki całkowity czas eksploracji może wynikać z nieodpowiedniego przyzwyczajenia. Jako alternatywę dla opisanych tutaj procedur dotyczących postępowania (sekcja 2) i przyzwyczajenia areny (sekcja 4.2), przyzwyczajenie do obsługi i środowiska testowego można przeprowadzić jako 3,5 minutowe sesje dziennie przez 2 kolejne dni.
Ograniczenia techniki
Jak w przypadku każdej procedury, te testy behawioralne mają ograniczenia. Procedury te zostały zastosowane, ponieważ badają funkcję różnych obszarów kory mózgowej i hipokampa. Jeśli model mysi nie wykazuje deficytów funkcjonalnych w regionach mózgu badanych przez te testy, techniki te nie będą przydatne. Ponadto wybraliśmy testy kognitywne, które badają pamięć krótkotrwałą. Jeśli nie oczekuje się, że mechanizm działania związku poddanego ocenie przedklinicznej wpłynie na pamięć krótkotrwałą, wówczas procedury te powinny zostać odpowiednio zmodyfikowane (tj. zwiększyć odstęp między fazą próbka-badanie w celu zbadania pamięci długotrwałej). Wreszcie, testy te wykorzystują nieumotywowane zachowania. Dlatego, jeśli model myszy jest nadmiernie nadpobudliwy lub wykazuje inne stereotypowe zachowania, które uniemożliwiają eksplorację środowiska, procedury te mogą nie być optymalne. Jako alternatywę można użyć warunkowania strachu dla Tg2576 lub innych mysich modeli β-amyloidozy, lub przestrzennego labiryntu wodnego dla rTg4510 lub innych mysich modeli tauopatii3.
Przyszłe zastosowania
Po pomyślnym przyjęciu tych procedur w laboratorium można wprowadzić kilka modyfikacji lub rozszerzeń w celu oceny dodatkowych poznawczych i funkcjonalnych wskaźników motorycznych. Na przykład zmiana zadania rozpoznawania nowych obiektów w celu określenia, czy mysz może rozpoznać zmianę położenia obiektu13. Alternatywnie, zamiast używać przedmiotów, można użyć innych myszy i przeprowadzić test rozpoznania społecznego. Jeśli chodzi o zaciskanie kończyn i funkcje motoryczne, można by uzupełnić ten test o testy zwisu z drutu i/lub wytrzymałości chwytu. Testy szczegółowo opisane w tej metodzie stanowią solidną podstawę do badań przesiewowych pod kątem związków, które mają skuteczność in vivo w translacyjnych modelach myszy w chorobie Alzheimera i mogą być dostosowywane lub modyfikowane na wiele sposobów, aby jak najlepiej przesłuchać konkretny model myszy lub spełnić potrzeby unikalnego programu odkrywania leków.
Oświadczenia
J.M. Levenson jest zatrudniony przez Proclara Biosciences, Inc. C. Miedel, J. Patton, A. Miedel i E. Miedel są zatrudnieni przez Hilltop Laboratory Animals.
Podziękowania
Autorzy nie mają żadnych podziękowań.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Topscan Lite-High Throughput | Cleversys Zautomatyzowana | analiza behawioralna. Zawiera kamery i system akwizycji wideo, laptop. | |
| ObjectScan | Moduł oprogramowania Cleversys | do dokładnej kwantyfikacji eksploracji obiektów | |
| Otwarte pole dla myszy | Cleversys | CSI-OF-M | Arena do rozpoznawania nowych obiektów |
| Labirynt Y dla myszy | Niestandardowe | ramiona: 30 cm długości, 10 cm szerokości, 20 cm wysokości, umieszczone w odległości 120 stopni od siebie. | |
| Uchwyt kamery do otwartego pola | Custom Custom | 76 | cm wysokości, 115 cm szerokości, kamery zamontowane @ 30 cm z każdej strony. Dwa uchwyty, z których każdy zakrywa dwie skrzynki. |
| Uchwyt kamery do Y-maze | Custom | Custom 76 | cm wysokości, 115 cm szerokości, kamery zamontowane @ 30cm z każdej strony. Jeden montaż obejmuje dwa labirynty. |
| Marbles | Inperial Toy | 8565 | Standardowe (średnica 15,5 mm) szklane kulki. |
| Kości | Cardinal Industries | 770 | Standard (0,650 cala) białe kości z czarnymi kropkami. |
| LOCTITE Fun-Tak | Henkel | B018A3AG0W | Standard niebieski lepki tak |
| EtOH | Nexeo Solutions | 82452 | 100% etanol Rozcieńczony do 70% przy użyciu wody destylowanej |
| dH2O | Tulpenhocken Spring Water Co. | - | PA D.E.P. #31, NJ D.O.H. #0049, NYSHD Cert. #320 |
| Ręczniki papierowe | Procter & Gamble | B019DM86LA | Bounty, biała |
| ręczna kamera wideo | Apple, Inc. | MKV92LL/A | Przejęcie filmu o zaciskaniu kończyn, Iphone 6S Plus (lub funkcjonalny odpowiednik). |
| Rękawice | SafePOINT, L.L.C. | GL640-2 | Standard, bezpudrowe rękawice lateksowe, średni |
| światłomierz | Dr. Meter | LX1330B | Oświetlenie @ spód otwartego pola = 35 luksów, Oświetlenie @ spód labiryntu Y= 32 LUX |
| Chusteczki bakteriobójcze | Clorox | Sterylizacja sprzętu w trakcie i po użyciu |
Bibliografia
- Elder, G. A., Gama Sosa, M. A., De Gasperi, R. Transgenic mouse models of Alzheimer's disease. Mt Sinai J Med. 77 (1), 69-81 (2010).
- Onos, K. D., Sukoff Rizzo, S. J., Howell, G. R., Sasner, M. Toward more predictive genetic mouse models of Alzheimer's disease. Brain Res Bull. 122, 1-11 (2016).
- Webster, S. J., Bachstetter, A. D., Nelson, P. T., Schmitt, F. A., Van Eldik, L. J. Using mice to model Alzheimer's dementia: an overview of the clinical disease and the preclinical behavioral changes in 10 mouse models. Front Genet. 5, 88(2014).
- Rodgers, S. P., Born, H. A., Das, P., Jankowsky, J. L. Transgenic APP expression during postnatal development causes persistent locomotor hyperactivity in the adult. Mol Neurodegener. 7, 28(2012).
- Hsiao, K., et al. Correlative memory deficits, Abeta elevation, and amyloid plaques in transgenic mice. Science. 274 (5284), 99-102 (1996).
- Santacruz, K., et al. Tau suppression in a neurodegenerative mouse model improves memory function. Science. 309 (5733), 476-481 (2005).
- Crawley, J. N. What's wrong with my mouse? : behavioral phenotyping of transgenic and knockout mice. 2nd edn. , Wiley-Interscience. (2007).
- Hughes, R. N. The value of spontaneous alternation behavior (SAB) as a test of retention in pharmacological investigations of memory. Neurosci Biobehav Rev. 28 (5), 497-505 (2004).
- Rutala, W. A., Weber, D. J. Guideline for disinfection and sterilization in healthcare facilities. Centers for Disease Control. , (2008).
- Wes, P. D., et al. Tau overexpression impacts a neuroinflammation gene expression network perturbed in Alzheimer's disease. PLoS One. 9 (8), 106050(2014).
- Ennaceur, A., Delacour, J. A new one-trial test for neurobiological studies of memory in rats. 1: Behavioral data. Behav Brain Res. 31 (1), 47-59 (1988).
- Taglialatela, G., Hogan, D., Zhang, W. R., Dineley, K. T. Intermediate- and long-term recognition memory deficits in Tg2576 mice are reversed with acute calcineurin inhibition. Behav Brain Res. 200 (1), 95-99 (2009).
- DeVito, L. M., Eichenbaum, H. Distinct contributions of the hippocampus and medial prefrontal cortex to the "what-where-when" components of episodic-like memory in mice. Behav Brain Res. 215 (2), 318-325 (2010).
- Lalonde, R., Strazielle, C. Brain regions and genes affecting limb-clasping responses. Brain Res Rev. 67 (1-2), 252-259 (2011).
- King, D. L., Arendash, G. W. Behavioral characterization of the Tg2576 transgenic model of Alzheimer's disease through 19 months. Physiol Behav. 75 (5), 627-642 (2002).
- Lalonde, R., Lewis, T. L., Strazielle, C., Kim, H., Fukuchi, K. Transgenic mice expressing the betaAPP695SWE mutation: effects on exploratory activity, anxiety, and motor coordination. Brain Res. 977 (1), 38-45 (2003).
- Lewis, J., et al. Neurofibrillary tangles, amyotrophy and progressive motor disturbance in mice expressing mutant (P301L) tau protein. Nat Genet. 25 (4), 402-405 (2000).
- Spittaels, K., et al. Prominent axonopathy in the brain and spinal cord of transgenic mice overexpressing four-repeat human tau protein. Am J Pathol. 155 (6), 2153-2165 (1999).
- Terwel, D., et al. Changed conformation of mutant Tau-P301L underlies the moribund tauopathy, absent in progressive, nonlethal axonopathy of Tau-4R/2N transgenic mice. J Biol Chem. 280 (5), 3963-3973 (2005).
- Merrow, M., Spoelstra, K., Roenneberg, T. The circadian cycle: daily rhythms from behaviour to genes. EMBO Rep. 6 (10), 930-935 (2005).
- Smarr, B. L., Jennings, K. J., Driscoll, J. R., Kriegsfeld, L. J. A time to remember: the role of circadian clocks in learning and memory. Behav Neurosci. 128 (3), 283-303 (2014).
- Kandel, E. R. The molecular biology of memory storage: a dialogue between genes and synapses. Science. 294 (5544), 1030-1038 (2001).
- Stough, S., Shobe, J. L., Carew, T. J. Intermediate-term processes in memory formation. Curr Opin Neurobiol. 16 (6), 672-678 (2006).
- Stevens, L. M., Brown, R. E. Reference and working memory deficits in the 3xTg-AD mouse between 2 and 15-months of age: a cross-sectional study. Behav Brain Res. 278, 496-505 (2015).
- Yue, X., et al. Brain estrogen deficiency accelerates Abeta plaque formation in an Alzheimer's disease animal model. Proc Natl Acad Sci U S A. 102 (52), 19198-19203 (2005).
- McAllister, C., et al. Genetic targeting aromatase in male amyloid precursor protein transgenic mice down-regulates beta-secretase (BACE1) and prevents Alzheimer-like pathology and cognitive impairment. J Neurosci. 30 (21), 7326-7334 (2010).
- Blaney, C. E., Gunn, R. K., Stover, K. R., Brown, R. E. Maternal genotype influences behavioral development of 3xTg-AD mouse pups. Behav Brain Res. , 40-48 (2013).
Przedruki i uprawnienia
