Białka często zawierają wiele domen, które mogą pełnić różne funkcje komórkowe. Nokauty genów (KO) nie uwzględniają tej różnorodności funkcjonalnej. W tym miejscu przedstawiamy podejście oparte na wymianie kasetowej za pośrednictwem rekombinacji (RMCE) oparte na strukturze i funkcji w embrionalnych komórkach macierzystych KO, które pozwala na molekularną sekcję różnych domen funkcjonalnych lub wariantów białka.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Badania strukturyczno-funkcjonalne w embrionalnych komórkach macierzystych myszy z wykorzystaniem wymiany kasetowej za pośrednictwem rekombinazy
W tym artykule
Podsumowanie
Streszczenie
Inżynieria genowa w embrionach myszy lub embrionalnych komórkach macierzystych (mESC) pozwala na badanie funkcji danego białka. Białka są końmi roboczymi komórki i często składają się z wielu domen funkcjonalnych, na które mogą wpływać modyfikacje potranslacyjne. Zubożenie całego białka u myszy z warunkowym lub konstytutywnym nokautem (KO) nie uwzględnia tej funkcjonalnej różnorodności i regulacji. Wcześniej doniesiono o linii mESC i pochodnym modelu myszy, w którym miejsce dokowania do wymiany kasetowej za pośrednictwem rekombinacji FLPe (RMCE) zostało wstawione do locus ROSA26 (R26). W tym artykule przedstawiamy podejście struktura-funkcja, które pozwala na molekularną analizę różnych funkcji białka wielodomenowego. W tym celu myszy kompatybilne z RMCE należy skrzyżować z myszami KO, a następnie mESC KO kompatybilne z RMCE muszą zostać wyizolowane. Następnie, panel domniemanych konstruktów ratowniczych może zostać wprowadzony do locus R26 poprzez celowanie RMCE. Kandydujące do uratowania cDNA można łatwo wprowadzić między miejsca RMCE wektora docelowego za pomocą klonowania rekombinacyjnego. Następnie mESC KO są transfekowane wektorem docelowym w połączeniu z plazmidem ekspresyjnym rekombinazy FLPe. RMCE reaktywuje gen oporności na neomycynę bez promotora w miejscach dokowania ROSA26 i pozwala na wybór właściwego zdarzenia docelowego. W ten sposób uzyskuje się wysoką skuteczność celowania bliską 100%, co pozwala na wprowadzenie wielu przypuszczalnych konstruktów ratowniczych w sposób średnio wysokoprzepustowy. Wreszcie, wiele konstruktów ratowniczych napędzanych przez R26 może być testowanych pod kątem ich zdolności do ratowania fenotypu, który zaobserwowano w rodzicielskich mESC KO. Przedstawiamy badanie typu proof-of-principle struktura-funkcja w mESC KO KO p120 kateniny (p120ctn) wykorzystujące różnicowanie endodermy w ciałach zarodkowych (EBs) jako odczyt fenotypowy. Podejście to umożliwia identyfikację ważnych domen, przypuszczalnych szlaków dalszych i istotnych dla choroby mutacji punktowych, które leżą u podstaw fenotypów KO dla danego białka.
Wprowadzenie
Szacuje się, że genomy ssaków zawierają około 20 000 genów kodujących białka. Alternatywny splicing oraz modyfikacje potranslacyjne dodatkowo zwiększają repertuar białek. Białka mają strukturę modularną1 i często zawierają wiele domen oddziaływania, co pozwala na ich rekrutację do różnych kompleksów białkowych i udział w wielu procesach komórkowych2. Przykładem jest wielofunkcyjne białko o nazwie p120ctn. p120ctn jest kodowane przez gen Ctnnd1 i składa się z dużej centralnej domeny powtórzeń armadillo, flankowanej przez region N-terminalny i C-terminalny. Domena armadillo p120ctn wiąże się z wysoko konserwatywną domeną przybłonkową klasycznych kadheryn, które uczestniczą w adhezji międzykomórkowej, ale wiąże się ona również z represorem transkrypcyjnym Kaiso. Domena N-terminalna p120ctn oddziałuje z różnymi kinazami, fosfatazami, małymi RhoGTPazami i białkami związanymi z mikrotubulami3. Co ciekawe, w wyniku alternatywnego splicingu mogą powstawać izoformy p120ctn z czterech alternatywnych kodonów startowych4. Izoforma 1A p120ctn jest najdłuższa, ponieważ jest translądowana z najbardziej 5'-końcowego kodonu startowego i zawiera pełny segment N-terminalny. W izoformach 3 i 4 p120ctn segment N-terminalny ten jest usunięty odpowiednio częściowo i całkowicie. Zrozumienie dokładnej roli białek (lub izoform białkowych) oraz ich domen w różnych funkcjach komórkowych wciąż stanowi wyzwanie.
Targetowanie genów w mESC umożliwia badanie funkcji białka poprzez genetyczną delecję odpowiadającego mu genu i w znacznym stopniu przyczyniło się do identyfikacji genów oraz szlaków istotnych dla rozwoju i związanych z chorobami. Ten przełom w genetyce odwrotnej był wynikiem postępów w dziedzinach izolacji mESC oraz targetowania genów poprzez rekombinację homologiczną5. Rekombinacja homologiczna jest procesem, w którym fragmenty DNA są wymieniane między dwiema podobnymi lub identycznymi częściami kwasów nukleinowych po pęknięciach dwuniciowych (ds) DNA. Normalnie rekombinacja homologiczna jest mało wydajna, ponieważ pęknięcia dsDNA występują rzadko. Niedawno wydajność targetowania genów sterowanego homologią mogła zostać zwiększona przy użyciu nukleaz specyficznych dla miejsca6,7, lecz niestety są one podatne na efekty poza docelowe (off-target)8. Bardziej niezawodną techniką umożliwiającą targetowanie genów jest RMCE, która opiera się na systemach rekombinacji specyficznych dla miejsca, takich jak Cre/loxP lub FLPe/Frt. Sekwencje loxP i Frt występują odpowiednio w bakteriofagu P1 i Saccharomyces cerevisiae i składają się z 34 bp, w tym z asymetrycznej sekwencji 8 bp, która określa orientację miejsca. Z drugiej strony, orientacja, na przykład dwóch miejsc loxP w obrębie odcinka DNA, determinuje, czy floxowany DNA zostanie wycięty, czy odwrócony podczas rekombinacji pośredniczonej przez Cre9. Ponadto Cre może również indukować translokację, jeśli dwa miejsca znajdują się na różnych chromosomach. RMCE wykorzystuje heterospecyficzne miejsca rekombinacji, które nie reagują krzyżowo i są osadzone w locus genomowym. W obecności plazmidu donorowego zawierającego fragment DNA flankowany tymi samymi miejscami heterospecyficznymi, rekombinaza wstawi ten fragment DNA do kompatybilnego z RMCE locus genomowego w wyniku podwójnej jednoczesnej translokacji (Rysunek 1). W tym przypadku tylko klony prawidłowo poddane targetowaniu RMCE mogą wykazać oporność na lek dzięki promotorowi w wektorze wchodzącym, który przywraca „uwięziony”, pozbawiony promotora gen oporności na neomycynę (NeoR) obecny w genomie R26 komórek dokujących (Rysunek 1)10,11. Skutkuje to bardzo wysoką wydajnością targetowania, często bliską 100%11,12. Podsumowując, targetowanie oparte na RMCE jest wysoce wydajne i może być stosowane w badaniach struktury i funkcji; wymaga ono jednak uprzednio zmodyfikowanego locus genomowego.
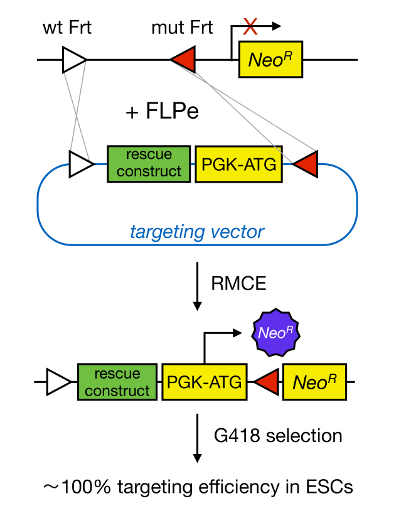
Rycina 1. Schematyczne przedstawienie celowania za pomocą RMCE. RMCE umożliwia wymianę fragmentów DNA z wprowadzanego wektora celującego do określonego locusu genomicznego, jeśli oba zawierają dwa heterospecyficzne miejsca Frt (oznaczone białymi i czerwonymi trójkątami). Ponadto zmodyfikowany locus genomiczny zawiera pozbawiony promotora i skrócony gen oporności na neomycynę (NeoR). Dzięki dostarczeniu promotora i kodonu startowego w wprowadzonym fragmencie DNA, tylko prawidłowe zdarzenia rekombinacyjne przywracają oporność na neomycynę, co skutkuje wysoką wydajnością celowania. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Inżynieria genomu w mESC umożliwia generowanie myszy kompatybilnych z RMCE. W 1981 roku dwie grupy badawcze odniosły sukces w izolowaniu komórek pluripotencjalnych z wewnętrznej masy komórek (ICM) blastocyst oraz w ich utrzymywaniu w hodowli13,14. mESC posiadają zdolność do samoodnawiania oraz różnicowania we wszystkie typy komórek embrionalnych i dorosłych, w tym w linię komórek rozrodczych. W związku z tym celowanie genowe w mESC umożliwia badania genetyki odwrotnej poprzez tworzenie konstytutywnych lub kondycjonalnych (przy użyciu systemu Cre/LoxP) myszy KO. Jednakże klasyczna metoda izolacji mysich komórek ES jest bardzo mało wydajna. Kilka istotnych ulepszeń znacznie zwiększyło odsetek sukcesu w wyprowadzaniu linii mESC, w tym zastosowanie zdefiniowanego medium z zamiennikiem surowicy (SR)15, naprzemienne stosowanie medium mESC zawierającego SR oraz płodową surowicę bydlęcą (FBS)16, a także wykorzystanie związków farmakologicznych, takich jak pluripotyna lub 2i17. Pluripotyna, mała cząsteczka syntetyczna, umożliwia propagację mESC w stanie nieróżnicowania wobec braku czynnika hamującego białaczkę (LIF) i embrionalnych fibroblastów mysich (MEF)18. Ostatecznie wykazano, że mESC można izolować z bardzo wysoką wydajnością (bliską 100%), gdy protokół naprzemiennego stosowania medium SR/FBS zostanie połączony z LIF i pluripotyną19,20. Protokoły te umożliwiają efektywną izolację kompatybilnych z RMCE mESC KO, które mogą być następnie wykorzystane w badaniach strukturalno-funkcjonalnych.
Niniejsza praca opisuje metodę umożliwiającą identyfikację kluczowych domen lub reszt w białku, które odpowiadają za konkretne procesy komórkowe. W tym celu opracowano proces wykorzystujący zaawansowane technologie umożliwiające efektywną izolację mESC, składanie wektorów celujących oraz celowanie w mESC. W ten sposób w mESC z nokautem (KO) można wprowadzić szerokie panele izoform białkowych, mutantów domen oraz efektorów downstream, a następnie ocenić ich zdolność do przywrócenia fenotypu KO in vitro.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wszystkie eksperymenty na myszach były prowadzone zgodnie z instytucjonalnymi, krajowymi i europejskimi przepisami dotyczącymi ochrony zwierząt.
1. Izolacja mESC typu KO kompatybilnych z RMCE
- Krzyżuj myszy heterozygotyczne KO z myszami kompatybilnymi z RMCE, takimi jak myszy ROSALUC10 lub myszy ROSA26-iPSC21. Obie linie myszy kompatybilnych z RMCE utrzymywano na mieszanym tle genetycznym 129/C57BL6/Swiss.
UWAGA: Zaleca się krzyżowanie z myszami heterozygotycznymi KO, aby uniknąć letalności embrionalnej występującej u myszy homozygotycznych KO. - Użyj metody PCR, aby wyselekcjonować heterozygotyczne myszy KO zawierające kasetę RMCE w locus R2612.
- Krzyżuj kompatybilne z RMCE, heterozygotyczne myszy KO z myszami heterozygotycznymi KO i izoluj kompatybilne z RMCE, homozygotyczne blastocysty KO.
- Zorganizuj kopulacje wieczorem i sprawdź obecność czopów kopulacyjnych następnego ranka.
UWAGA: Czopy składają się z koagulowanych wydzielin gruczołów koagulujących i pęcherzykowych samca. Czopy te wypełniają pochwę samicy i utrzymują się od 8 do 24 h po kopulacji. Samice z czopami uznaje się za noszące embriony w 0,5 dpc (dni po kopulacji).- Aby sprawdzić obecność czopów, unieś samicę za nasadę ogona i obejrzyj otwór pochwy w poszukiwaniu białej masy. Jeśli czop jest trudny do zauważenia, lekko rozchyl wargi sromowe za pomocą zakrzywionej sondy. Oddziel samice z czopami od samców.
- Zbierz blastocysty w 3,5 dpc.
- Uśmierć ciężarne samice zatwierdzoną metodą (np. przez zwichnięcie szyi). Wykonaj nacięcie brzuszne w linii środkowej i wypreparuj macicę oraz jajowody (nadal połączone) za pomocą precyzyjnych nożyczek i pincety.
- Zagnij igłę o rozmiarze 26G pod kątem 45°. Przymocuj do zagiętej igły strzykawkę 1-mL wypełnioną podłożem M2 i użyj jej do wypłukania blastocyst z macicy do pokrywki naczynia 10-cm.
- Wprowadź igłę do końca macicy położonego najbliżej jajowodu. Przytrzymaj igłę precyzyjną pincetą, naciskając tłok; obrzęk macicy świadczy o prawidłowym płukaniu.
- Użyj pipety ustnej (o średnicy 100 - 200 µm), aby zebrać wszystkie embriony i przemyj je dwukrotnie w kropli świeżego podłoża M2. Natychmiast po przemyciu przenieś blastocysty na płytki hodowlane (patrz poniżej).
UWAGA: Disekcja i manipulacja blastocystami powinny być wykonywane w laminarnym przepływie powietrza.
- Zorganizuj kopulacje wieczorem i sprawdź obecność czopów kopulacyjnych następnego ranka.
- Izoluj kompatybilne z RMCE mESC KO
- Przygotuj płytkę 12-dołkową z MEF DR4 traktowanymi mitycomyną-C (patrz Tabela Materiałów) na jeden dzień przed izolacją blastocyst.
UWAGA: MEF te zostały wyizolowane z myszy Tg(DR4)1Jae/J, które posiadają cztery geny selekcyjne i wykazują odporność na neomycynę, puromycynę, hygromycynę oraz 6-tioguaninę22.- Pokryj wszystkie płytki hodowlane 0,1% żelatyną. Dodaj 0,1% żelatyny do płytek hodowlanych, inkubuj przez 5 min w 37 °C w 5% CO2, a następnie odessaj roztwór żelatyny. Wysiej jedną czwartą ampułki MEF P2 na płytkę 12-dołkową i hoduj je w 2 mL podłoża dla MEF (patrz Tabela 1, Tabela Materiałów) do uzyskania zrastającego się monowarstwy19.
- Inaktywuj je mitycomyną-C (10 µg/mL) przez 3 h i przemyj dwukrotnie solą fizjologiczną w buforze fosforanowym (PBS)19.
- Używając pipety ustnej, wysiej blastocysty na żelatynizowane płytki 12-dołkowe (1 dołek/embrion), na MEF traktowane mitycomyną-C, w podłożu SR-ES dla komórek (2 mL/dołek) uzupełnionym o 2 µM pluripotinu lub o 2i (1 µM inhibitora Erk PD0325901 i 3 µM inhibitora Gsk3 CHIR99021). Inkubuj w 37 °C w 5% CO2.
- Wymieniaj podłoże SR-ES (uzupełnione o pluripotin lub 2i) co 2 - 3 dni.
- Obejrzyj każdą blastocystę pod stereomikroskopem z powiększeniem 4,0X i sprawdź, czy nastąpiło wykluwanie oraz przytwierdzenie do warstwy MEF.
UWAGA: Podczas wykluwania blastocysty tracą otaczającą je błonę przejrzystą (zona pellucida). Dołki z nieprzytwierdzonymi blastocystami należy odświeżyć za pomocą pipetowania ustnego. - Wyizoluj poszczególne wypustki ICM (używając stereomikroskopu) po 10 - 12 dniach hodowli, używając pipety P10 z jednorazowymi końcówkami. Przenieś wypustkę w około 10 µL podłoża do V-kształtnej płytki 96-dołkowej zawierającej 30 µL/dołek PBS (w temperaturze pokojowej).
- Dodaj 50 µL 0,25% trypsyny do każdego dołka za pomocą pipety wielokanałowej i inkubuj przez 3 min w 37 °C w 5% CO2.
- Dodaj 100 µL podłoża mESC zawierającego FBS; dysocjuj wypustki ICM do pojedynczych komórek poprzez 10-15 krotne pipetowanie; a następnie przenieś zdysocjowane komórki na 96-dołkowe płytki MEF traktowane mitycomyną-C, które zostały przygotowane na dzień przed pobraniem kolonii ICM.
- Od tego momentu pomiń pluripotin lub 2i w podłożu mESC. Następnego dnia zmień podłoże z mESC zawierającego FBS na mESC zawierające SR (100 µL/dołek).
- Rozszerz ustalone linie mESC z formatu 96- do 24-dołkowego19.
- Przemyj komórki 200 µL PBS, dodaj 50 µL trypsyny i inkubuj przez 5 min w 37 °C w 5% CO. Dodaj 100 µL podłoża mESC na bazie FBS; zdysocjuj poprzez 10 - 15 krotne pipetowanie przy użyciu pipety wielokanałowej; a następnie przenieś zdysocjowane komórki na 24-dołkowe płytki MEF traktowane mitycomyną-C.
- Następnego dnia zmień na podłoże na bazie SR. Rozszerz mESC w podobny sposób z formatu 24- do 6-dołkowego. Wykonaj 3 - 4 mrożenia z zrastającej się płytki 6-dołkowej19.
- Zidentyfikuj kompatybilne z RMCE, homozygotyczne mESC KO, używając starterów PCR dla locus R2623 i wybranego allelu KO (w tym przypadku p120ctn; reakcje PCR dla alleli null i floxed p120ctn zostały opisane wcześniej12).
- Przygotuj płytkę 12-dołkową z MEF DR4 traktowanymi mitycomyną-C (patrz Tabela Materiałów) na jeden dzień przed izolacją blastocyst.
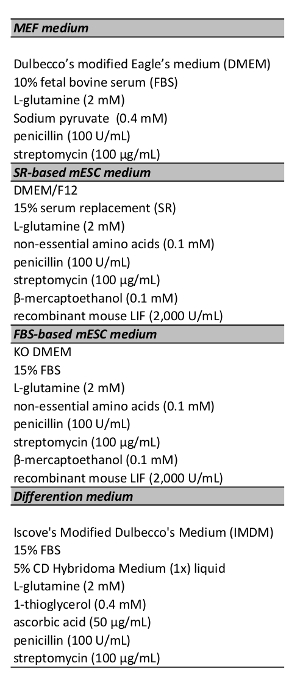
Tabela 1. Pożywki hodowlane. Wszystkie pożywki przechowywano w temperaturze 4 °C i ogrzewano do 37 °C na 30 min przed użyciem.
2. Generowanie wektora celującego kompatybilnego z RMCE przy użyciu klonowania rekombinacyjnego
- Klonuj konstrukty ratunkowe do wektorów kompatybilnych z rekombinacją, wykorzystując metodę opartą na enzymach restrykcyjnych (RE) lub PCR.24 techniki klonowania. Należy upewnić się, że cDNA zawierają kodon stop.
- Projektowanie starterów z sekwencją AttB24Należy upewnić się, że starter forward zawiera następujące elementy: sekwencję GGGG, miejsce AttB1, linker, sekwencję Kozaka oraz około 25 nukleotydów cDNA genu ratunkowego (począwszy od kodonu ATG). Należy również upewnić się, że starter reverse ma podobny skład: sekwencję GGGG, miejsce AttB2, linker oraz około 25 nukleotydów cDNA genu ratunkowego (odwrotny komplement).
- Amplifikuj cDNA ratujące poprzez PCR w celu otrzymania cDNA flankowanego sekwencjami AttB.
- Wykonaj 10-ostuµL reakcja BP z 100 ng cDNA flankowanego sekwencjami AttB oraz 150 ng kompatybilnego z rekombinacją wektora donorowego, który zawiera gen oporności na kanamycynę.
- Przekształć 5 µL mieszanin BP w szczepie MC1061 kompetentnym po szoku termicznym Escherichia coli (*E. coli*) bakterie (podobne do tych opisanych w kroku 2.3).
- Zidentyfikuj kolonie zawierające odpowiednie wektory ratunkowe z cDNA (podobne do tych opisanych w kroku 2.4)
- Wykonaj 10-µL reakcja LR z użyciem 100 ng wektora zawierającego cDNA ratunkowe; 150 ng wektora pRMCE-DV1 po ekcyzji przez Cre11 (LMBP 8195) oraz 2 µL mieszaniny rekombinaz, która zawiera kodowaną przez faga integrazę i ekscyzjazę oraz bakteryjny czynnik gospodarza integracji (IHF). Inkubować przez 2 h w temperaturze 25 °C.
UWAGA: Reakcja LR to reakcja rekombinacji, w której klon wejściowy zawierający sekwencje attL oraz wektor docelowy zawierający sekwencje attR ulegają rekombinacji pod wpływem mieszaniny enzymów LR clonase. W wyniku tego procesu powstaje klon ekspresyjny, w którym gen zainteresowania jest flankowany przez sekwencje attB. - Przekształć 5 µL mieszanin LR w szczepie MC1061 kompetentnym po szoku termicznym E. coli bakterie
- Dodaj 5 µL mieszanin LR do żebrowanej, z kołnierzem, 2-ml probówki z zakrętką z gwintem z 40 µL kompetentnych do szoku termicznego *E. coli* bakterie i inkubować przez 20 min na lodzie. Inkubować przez 5 min w 37 °C.
- Dodać 1 ml pożywki Luria broth (LB) i inkubować przez 1 h w temperaturze 37 °CPłytka 50 µL z ampicyliną (Amp; 100 µg/mL)-zawierające płytki agarowe i inkubować przez noc w temperaturze 37 °C.
- Zidentyfikuj kolonie zawierające prawidłowy wektor celujący.
- Za pomocą końcówki p200 należy losowo wybrać 5 kolonii. Przenieść końcówkę do szklanej probówki zawierającej 2–5 ml pożywki LB i inkubować przez noc w temperaturze 37 °C.
- Wyizolować plazmidowe DNA z kultur bakteryjnych przy użyciu dostępnych komercyjnie zestawów.
- Potwierdź ich poprawność za pomocą trawienia restrykcyjnego (RE) i sekwencjonowania. Odetnij 0,5- 2 µg plazmidu przy użyciu 0.2 µL enzymu RE (20 U/µL) i 1 µL odpowiedniego buforu 10x w 10-µL reakcji. Inkubować przez co najmniej 1 h w temperaturze 37 °C następnie rozdziel na żelu agarozowym o stężeniu 1%. Wyselekcjonuj kolonie o przewidywanym wzorcu fragmentów DNA.
- Przeanalizuj potwierdzone wektory (50 ng/µL) za pomocą starterów Tlox F (ATC ATG TCT GGA TCC CCA TC) oraz IRES R (GGG GCG GAA TTC GAT ATC AAG) (5 pmol/µL) przy użyciu sekwencjonowania metodą Sangera.
3. Ukierunkowanie konstruktów ratunkowych do locus R26 w mESC za pośrednictwem RMCE
- Rozpocząć hodowlę mESC KO kompatybilnych z RMCE i pasażować je co najmniej dwukrotnie na MEF w pożywce mESC na bazie FBS. Wysiać mESC na żelatynizowaną płytkę 6-dołkową.
- Następnego dnia, przy konfluencji około 50%, odświeżyć komórki, dodając 1,5 mL pożywki mESC na bazie FBS, a następnie przeprowadzić transfekcję mESC wektorem celującym pRMCE-DV1 z wyciętą sekwencją Cre, zawierającym cDNA ratunkowe.
- Przygotować mieszaninę DNA. Dodać 1 µg wektora celującego oraz 1 µg plazmidu ekspresyjnego FLPe25 do 250 µL czystej pożywki DMEM.
- Przygotować mieszaninę do lipofekcji. Dodać 7 µL odczynnika do transfekcji opartej na lipofekcji (np. Lipofectamine 2000) do 250 µL czystej pożywki DMEM i inkubować przez 5 min w temperaturze pokojowej (RT).
UWAGA: Podobna wydajność celowania RMCE została uzyskana przy użyciu innych odczynników do lipofekcji (np. Lipofectamine LTX oraz Effectene). - Wymieszać mieszaninę DNA z mieszaniną do lipofekcji i inkubować przez 20 min w RT. Nanieść mieszaninę do transfekcji pipetą na odświeżone mESC. Delikatnie zamieszać i pozostawić na noc.
- Jeden dzień po transfekcji przenieść wszystkie mESC z płytki 6-dołkowej do naczynia hodowlanego o średnicy 10 cm z konfluencyjną warstwą MEF DR4 i 10 mL pożywki mESC na bazie FBS.
- Dwa dni po transfekcji wyselekcjonować klony mESC z prawidłową wymianą kasety zapośredniczoną przez FLPe poprzez dodanie do pożywki 0,2 mg/mL G418 (100x).
UWAGA: Dla każdej partii G418 należy wyznaczyć krzywą przeżywalności (kill curve), aby zidentyfikować najniższe stężenie G418 zabijające wszystkie mESC. - Codziennie odświeżać mESC, używając pożywki mESC zawierającej G418. Kolonie powinny pojawić się po 7–10 dniach; należy je wówczas wybrać i namnożyć zgodnie z krokiem 1.4.
- Potwierdzić prawidłowe klony za pomocą PCR11.
4. Różnicowanie mESC w ciałach zarodkowych (EB)
- Rozpocząć hodowlę KO mESC z konstruktami ratunkowymi sterowanymi przez R26 i pasażować je co najmniej dwukrotnie na MEF w medium dla mESC opartym na FBS. Pasażować mESC raz na żelatynowanych płytkach 6-dołkowych w celu usunięcia MEF.
- Przemyć PBS i poddać trypsynizacji niemal w pełni zrośnięte kultury mESC. Wysiać dysocjowane mESC w różnych rozcieńczeniach (1/20 i 1/40) na nieadherentne szalki Petriego klasy bakteryjnej w medium różnicującym.
- Pozostawić ciała embrioidalne (EB) w tych szalkach na 30 dni. Odświeżać medium co 2–3 dni zgodnie z następującą procedurą: przenieść zawiesinę EB do probówki 50-mL, pozwolić EB osadzić się pod wpływem grawitacji, usunąć nadsącz, dodać świeże medium i przenieść zawiesinę EB z powrotem na szalkę klasy bakteryjnej.
- Przeprowadzić analizę zmodyfikowanych mESC i EB za pomocą immunofluorescencji oraz transmisyjnej mikroskopii elektronowej, stosując protokoły opisane wcześniej12.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Procedura izolacji linii mESC KO kompatybilnych z RMCE została przedstawiona na Rysunku 2. Aby uzyskać blastocysty KO kompatybilne z RMCE, wymagane są dwa kolejne krzyżowania. Najpierw myszy KO heterozygotyczne krzyżuje się z myszami kompatybilnymi z RMCE w celu uzyskania myszy heterozygotycznych KO, które są kompatybilne z RMCE. Myszy te są następnie wykorzystywane w kontrolowanych czasowo kojarkach z innymi myszami KO heterozygotycznymi, aby uzyskać blastocysty homozygo...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Nasza metoda izolacji mESC jest przyjazna dla użytkownika i nie wymaga zaawansowanych umiejętności ani sprzętu, takiego jak mikrochirurgia blastocyst. Dzięki temu technologia ta jest dostępna dla dużej części społeczności naukowej. Każdy, kto ma podstawowe doświadczenie w hodowli komórkowej, może rozmnażać wyrostki ICM i ustanawiać linie mESC. Jednak płukanie i obchodzenie się z blastocystami wymaga pewnej praktyki. Pipeta doustna służy do przenoszenia blastocyst i składa się z mikropipety, uchwytu na mikropipetę, rurki ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Dziękujemy Jinke D'Hont, Frederique Van Rockeghem, Natalie Farla, Kelly Lemeire i Riet De Rycke za doskonałe wsparcie techniczne. Dziękujemy również Eef Parthoens, Evelien Van Hamme i Amandzie Goncalves z Bioimaging Core Facility w Centrum Badań nad Stanami Zapalnymi za ich fachową pomoc. Dziękujemy członkom naszej grupy badawczej za cenne dyskusje. Prace te były wspierane przez Belgijską Politykę Naukową (Belspo Interuniversity Attraction Poles - Award IAP VII-07 DevRepair; https://devrepair.be), przez Fundację Medyczną Królowej Elżbiety w Belgii (GSKE 2008-2010; http://www.fmre-gske.be) oraz przez Concerted Research Actions (GOA 01G01908) Uniwersytetu w Gandawie w Belgii (http://www.ugent.be/en/ghentuniv). SG jest adiunktem we Flandryjskich Funduszach Badawczych (FWO-V).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| ROSALUC Myszy | wykonane w domu | zamrożone nasienie dostępne na żądanie | |
| R26-iPSC | wyprodukowane w domu | zamrożone plemniki dostępne na żądanie | |
| Sonda naczyń | Fine Science Tools | 10160-13 | do sprawdzania zatyczek kopulacyjnych |
| M2 medium | Sigma-Aldrich | M7167 | wytwarzać porcje i przechowywać w temperaturze -20 & deg; C |
| Cienkie kleszcze (Dumont #5 Standard tip Kleszcze studenckie) | Fine Science Tools | 11251-10 | spray z 70% EtOH przed użyciem (nie autoklawować) |
| Igły 23 G | Fine-ject | 8697 | |
| Strzykawki 1 ml | Soft-ject | 6680 | |
| 60-mm płytki bakteryjne (do spłukiwania) | Gosselin | BB60-01 | |
| Pipeta do ust | wyprodukowana we własnym zakresie | zobacz dyskusję | |
| Fibroblasty embrionalne myszy (MEF, szczep TgN (DR4)1 Jae) | ATTC | SCRC-1045 | |
| TgN (DR4)1 Myszy Jae | The Jackson Laboratory | 3208 | |
| Mitomycyna C | Sigma-Aldrich | M0503 | |
| Sól fizjologiczna buforowana fosforanami (PBS) bez wapnia i magnezu | Gibco | 14190-094 | |
| Tg(DR4)1Jae/J myszy | JAX | 3208 | które zawierają cztery geny wybierane przez leki, a DR4 MEFS nadaje odporność na neomycynę, puromycynę, higromycynę i 6-tioguaninę |
| 0,1% żelatyny | Sigma-Aldrich | G1393 | Rozpuścić 0,5 g w 500 ml wody destylowanej, umieścić w autoklawie i przechowywać w temperaturze 4 °C. |
| Trypsyna (0,25%) | Gibco | 25200-056 | |
| 2 μ M pluripotin | Cayman Chemical | 10009557 | |
| pRMCE-DV1 | Kolekcja BCCM/LMBP | LMBP 08870 | dostępny publicznie w kolekcji BCCM/LMBP (http://bccm.belspo.be) |
| Kolekcja pRMCE-DV1 | BCCM/LMBP | LMBP 08195 | publicznie dostępny w kolekcji BCCM/LMBP (http://bccm.belspo.be) |
| pCAG-FlpE-IRES-Puro-pA | Addgene | 20733 | |
| kompetentny szok termiczny DH5 i alfa bakterie | made in house | ||
| Gateway pDONR221 wektor wektorowy | Thermo Fisher | 12536-017 | zawiera gen oporności na kanamycynę |
| BP klonaza II mix | Thermo Fisher | 11789-020 | |
| LR clonase II mix | Thermo Fisher | 11791-020 | |
| Rosół Luria (LB) | |||
| Ampicylina | |||
| Applied Biosystems 3730XL Analizator DNA | Thermo Fisher | 3730XL | |
| G418 | Thermo Fisher | 11811-023 | |
| Odczynnik do transfekcji Lipofectamine 2000 | Thermo Fisher | 11668027 | |
| Odczynnik do transfekcji Lipofectamine LTX | Thermo Fisher | 15338100 | |
| Effectene | Qiagen | 301425 | |
| GATEWAY pENTR 1A wektor | Thermo Fisher | A10462 | kompatybilny z rekombinacją wektorowy |
| monoklonalne przeciwciało anty-p120ctn | Laboratoria transdukcji BD 610134 | ||
| mysie przeciwciało monoklonalne anty-Ecadherin | Laboratoria Transdukcji 610181 | ||
| General equipment | |||
| Sterylne narzędzia | cienkie nożyczki i kleszcze do preparowania macicy | ||
| Sterylne pipety: 5 ml, 10 ml i 25 ml | |||
| stożkowe probówki wirówkowe 15 ml i 50 ml | |||
| płytki hodowlane Dno w kształcie litery V i płaskie dno) | |||
| Naczynia hodowlane: 24 dołki, 12 dołków i 6 dołków Pipety | |||
| wielokanałowe (do pipetowania 30, 50, 100 i 200 μ L) | |||
| Sterylne zbiorniki wielokanałowe Dostęp | |||
| do laminarnego przepływu | |||
| Dostęp do inkubatora pod kątem 37 stopni C z 5% CO2 | |||
| Dostęp do mikroskopu | |||
| Dostęp do wirówki | |||
| Dostęp do mikroskopu stereoskopowego ze światłem przechodzącym | |||
| Pożywka hodowlana | |||
| MEF Medium | w temperaturze 4 stopni; C; ciepły 30 min przy 37 stopniach; C przed użyciem | ||
| produktu Dulbecco" s zmodyfikowany Orzeł" s medium (DMEM) | Gibco | 41965-062 | |
| 10% płodowa surowica bydlęca (FBS) | Sigma-Aldrich | F-7524 | |
| L-glutamina (2 mM) | Gibco | 25030-024 | |
| Pirogronian sodu (0,4 mM) | Gibco | 11360-039 | |
| penicylina (100 U/mL) | Gibco | 15140-122 | |
| Streptomycyna (100 &mikro; g/mL) | Gibco | 15140-122 | |
| SR pożywka mESC | przechowywana w temperaturze 4 stopni; C; ciepły 30 min przy 37 stopniach; C przed użyciem | ||
| DMEM/F12 | Gibco | 31330-038 | zmieszany w stosunku 1:1 |
| 15% nokautujący zamiennik surowicy (SR) | Gibco | 10828– 028 | |
| L-glutamina (2 mM) | Gibco | 25030-024 | |
| 0,1 mM aminokwasów endogennych | Gibco | 11140-050 | |
| penicylina (100 U/mL) | Gibco | 15140-122 | |
| Streptomycyna (100 &mikro; g/mL) | Gibco | 15140-122 | |
| β-merkaptoetanol (0,1 mM) | Sigma-Aldrich | M 3148 | |
| 2,000 U/ml rekombinowanej myszy LIF | (IRC/VIB Protein Service facility) | ||
| FBS-based mESC substrate (podobny do mESC based SR) | przechowywany w temperaturze 4° C; ciepły 30 min w 37& C przed użyciem | ||
| Knockout DMEM | Gibco | 10829-018 | |
| 15% FBS | Hyclone | SH30070.03E | |
| Differention Medium | w temperaturze 4 stopni; C; ciepły 30 min przy 37 stopniach; C przed użyciem | ||
| Iscove's Modified Dulbecco's Medium (IMDM) | Gibco | 21980-032 | |
| 15% FBS | Hyclone | SH30070.03E | |
| 5% CD Hybridoma Medium(1x) płyn | Gibco | 11279-023 | |
| 2 mM L-glutamina | Gibco | 25030-024 | |
| 0,4 mM 1-tioglicerol | Sigma-Aldrich | M-6145 | |
| 50 μ g/ml kwas askorbinowy | Sigma-Aldrich | A-4544 | |
| penicylina (100 U/mL) | Gibco | 15140-122 | |
| Streptomycyna (100 &mikro; g/mL) | Gibco | 15140-122 | |
| 2i | |||
| 1 μ Inhibitor M Erk PD0325901 | Axon Medchem | Axon 1408 | |
| 3 μ Inhibitor M Gsk3 CHIR99021 | Axon Medchem | Axon 1386 |
Bibliografia
- Gul, I. S., Hulpiau, P., Saeys, Y., van Roy, F. Metazoan evolution of the armadillo repeat superfamily. Cell Mol Life Sci. , (2016).
- Valenta, T., Hausmann, G., Basler, K. The many faces and functions of beta-catenin. EMBO J. 31, 2714-2736 (2012).
- Pieters, T., van Hengel, J., van Roy, F. Functions of p120ctn in development and disease. Front Biosci. 17, 760-783 (2012).
- Keirsebilck, A., et al. Molecular cloning of the human p120ctn catenin gene (CTNND1): Expression of multiple alternatively spliced isoforms. Genomics. 50, 129-146 (1998).
- Capecchi, M. R. Gene targeting in mice: functional analysis of the mammalian genome for the twenty-first century. Nat Rev Genet. 6, 507-512 (2005).
- Wang, H., et al. One-step generation of mice carrying mutations in multiple genes by CRISPR/Cas-mediated genome engineering. Cell. 153, 910-918 (2013).
- Yang, H., et al. One-step generation of mice carrying reporter and conditional alleles by CRISPR/Cas-mediated genome engineering. Cell. 154, 1370-1379 (2013).
- Fu, Y., et al. High-frequency off-target mutagenesis induced by CRISPR-Cas nucleases in human cells. Nat Biotechnol. 31, 822-826 (2013).
- Branda, C. S., Dymecki, S. M. Talking about a revolution: The impact of site-specific recombinases on genetic analyses in mice. Dev Cell. 6, 7-28 (2004).
- Sandhu, U., et al. Strict control of transgene expression in a mouse model for sensitive biological applications based on RMCE compatible ES cells. Nucleic Acids Res. 39, 1(2010).
- Haenebalcke, L., et al. Efficient ROSA26-based conditional and/or inducible transgenesis using RMCE-compatible F1 hybrid mouse embryonic stem cells. Stem Cell Rev. 9, 774-785 (2013).
- Pieters, T., et al. p120 Catenin-Mediated Stabilization of E-Cadherin Is Essential for Primitive Endoderm Specification. PLoS Genet. 12, e1006243(2016).
- Evans, M. J., Kaufman, M. H. Establishment in culture of pluripotential cells from mouse embryos. Nature. 292, 154-156 (1981).
- Martin, G. R. Isolation of a pluripotent cell line from early mouse embryos cultured in medium conditioned by teratocarcinoma stem cells. Proc Natl Acad Sci U S A. 78, 7634-7638 (1981).
- Cheng, J., Dutra, A., Takesono, A., Garrett-Beal, L., Schwartzberg, P. L. Improved generation of C57BL/6J mouse embryonic stem cells in a defined serum-free media. Genesis. 39, 100-104 (2004).
- Bryja, V., et al. An efficient method for the derivation of mouse embryonic stem cells. Stem Cells. 24, 844-849 (2006).
- Ying, Q. L., et al. The ground state of embryonic stem cell self-renewal. Nature. 453, 519-523 (2008).
- Chen, S., et al. Self-renewal of embryonic stem cells by a small molecule. Proc Natl Acad Sci U S A. 103, 17266-17271 (2006).
- Pieters, T., et al. Efficient and User-Friendly Pluripotin-based Derivation of Mouse Embryonic Stem Cells. Stem Cell Rev. 8, (2012).
- Yang, W., et al. Pluripotin combined with leukemia inhibitory factor greatly promotes the derivation of embryonic stem cell lines from refractory strains. Stem Cells. 27, 383-389 (2009).
- Haenebalcke, L., et al. The ROSA26-iPSC Mouse: A Conditional, Inducible, and Exchangeable Resource for Studying Cellular (De)Differentiation. Cell Rep. 3, (2013).
- Tucker, K. L., Wang, Y., Dausman, J., Jaenisch, R. A transgenic mouse strain expressing four drug-selectable marker genes. Nucleic Acids Res. 25, 3745-3746 (1997).
- Nyabi, O., et al. Efficient mouse transgenesis using Gateway-compatible ROSA26 locus targeting vectors and F1 hybrid ES cells. Nucleic Acids Res. 37, 55(2009).
- Katzen, F. Gateway((R)) recombinational cloning: a biological operating system. Expert Opin Drug Discov. 2, 571-589 (2007).
- Schaft, J., Ashery-Padan, R., vander Hoeven, F., Gruss, P., Stewart, A. F. Efficient FLP recombination in mouse ES cells and oocytes. Genesis. 31, 6-10 (2001).
- Spencer, H. L., et al. E-cadherin inhibits cell surface localization of the pro-migratory 5T4 oncofetal antigen in mouse embryonic stem cells. Mol Biol Cell. 18, 2838-2851 (2007).
- Stryjewska, A., et al. Zeb2 Regulates Cell Fate at the Exit from Epiblast State in Mouse Embryonic Stem Cells. Stem Cells. , (2016).
- Nagy, A., Gertsenstein, M., Vintersten, K., Behringer, R. Manipulating the mouse embryo: A laboratory manual. , Cold Spring Harbor Laboratory Press. Third edn (2003).
- van den Berghe, V., et al. Directed migration of cortical interneurons depends on the cell-autonomous action of Sip1. Neuron. 77, 70-82 (2013).
- Li, J., et al. The EMT transcription factor Zeb2 controls adult murine hematopoietic differentiation by regulating cytokine signaling. Blood. , (2016).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
