Ten protokół opisuje metodę testowania zdolności białka do współosadzania z nitkowatą aktyną (F-aktyną) i, jeśli zaobserwowano wiązanie, do pomiaru powinowactwa interakcji.
Artykuł metodologiczny
Pomiar wiązania białek z F-aktyną przez kosedymentację
W tym artykule
Podsumowanie
Streszczenie
Organizacja aktyny nitkowatej (F-aktyny) w komórkach jest regulowana przez dużą liczbę białek wiążących aktynę, które kontrolują zarodkowanie, wzrost, sieciowanie i/lub rozkład aktyny. Protokół ten opisuje technikę – test kosedymentacji aktyny lub granulowania – w celu określenia, czy białko lub domena białkowa wiąże F-aktynę i zmierzenia powinowactwa interakcji (tj. stałej równowagi dysocjacji). W tej technice białko będące przedmiotem zainteresowania jest najpierw inkubowane z F-aktyną w roztworze. Następnie wirowanie różnicowe jest stosowane do sedymentacji włókien aktynowych, a granulowany materiał jest analizowany przez SDS-PAGE. Jeśli białko będące przedmiotem zainteresowania wiąże F-aktynę, będzie współosadzać się z włóknami aktyny. Produkty reakcji wiązania (tj. F-aktyna i białko będące przedmiotem zainteresowania) można określić ilościowo w celu określenia powinowactwa interakcji. Test granulowania aktyny jest prostą techniką określania, czy białko będące przedmiotem zainteresowania wiąże F-aktynę i oceny, w jaki sposób zmiany w tym białku, takie jak wiązanie ligandów, wpływają na jego interakcję z F-aktyną.
Wprowadzenie
Aktyna jest niezbędnym białkiem cytoszkieletu, które odgrywa kluczową rolę w wielu procesach komórkowych, w tym w ruchliwości, skurczu, adhezji i morfologii1. Aktyna występuje w dwóch formach: monomerycznej aktyny globularnej (G-aktyna) i spolimeryzowanej aktyny nitkowatej (F-aktyna). W komórkach organizacja F-aktyny jest kontrolowana przez duży zbiór białek, które regulują zarodkowanie, wzrost, sieciowanie i demontaż włókien aktynowych2,3,4. Jednak sposób, w jaki wiele białek wiążących aktynę działa zgodnie w celu regulacji organizacji sieci aktyny, jest nadal w dużej mierze niejasne.
Pomiar oddziaływań białko-białko jest ważnym podejściem do zrozumienia, w jaki sposób białka wpływają na zachowanie komórek na poziomie biochemicznym. Do wykrywania interakcji między oczyszczonymi białkami można zastosować wiele różnych testów. Typowe podejścia do białek rozpuszczalnych obejmują pull-down, polaryzację fluorescencyjną, izotermiczną kalorymetrię miareczkowania i powierzchniowy rezonans plazmonowy. Co ważne, wszystkie te testy wymagają, aby białka były rozpuszczalne, a zatem trudno jest je przystosować do stosowania z polimerycznym, nitkowatym białkiem, takim jak F-aktyna. W tym miejscu opisujemy technikę – test kosedymentacji aktyny lub granulowania – w celu określenia, czy białko lub domena białkowa wiąże F-aktynę i zmierzenia powinowactwa interakcji.
Test granulowania aktyny jest stosunkowo prostą techniką, która nie wymaga specjalistycznego sprzętu, poza ultrawirówką. Wszystkie odczynniki można wykonać, zakładając znajomość podstaw biochemii, lub zakupić. Po ustaleniu wiązania z F-aktyną, test można użyć do pomiaru pozornego powinowactwa (tj. stałej równowagi dysocjacji)5. Ponadto, po ustaleniu powinowactwa, test granulowania jest użytecznym narzędziem do mierzenia, w jaki sposób zmiany w białku będącym przedmiotem zainteresowania (tj. modyfikacje potranslacyjne, mutacje lub wiązanie ligandów) wpływają na jego interakcję z F-aktyną6. Technika ta ma ograniczenia (patrz Dyskusja), o których badacz powinien wiedzieć przed przystąpieniem do testu.
Protokół
1. Przygotuj materiały
- Oczyścić interesujące białko (patrz punkt 2).
- Przygotuj lub kup G-actin.
UWAGA: G-aktyna może być izolowana z wielu źródeł1; Alternatywnie można go kupić. Rozpuszczoną G-aktynę (w 5 mM Tris pH 8,0, 0,2 mM CaCl2, 0,2 mM ATP (trifosforan adenozyny) i 0,5 mM ditiotreitol (DTT)) należy błyskawicznie zamrozić, przechowywać w temperaturze -80 °C i >10 mg/ml w małych (10-20 μl) podwielokrotnościach i rozmrozić tuż przed użyciem. Podwielokrotności G-aktyny nie powinny być ponownie zamrażane. - Przygotuj lub kup białko kontrolne, takie jak BSA (patrz krok 4.4).
- Przygotować 10x bufor polimeryzacyjny (200 mM imidazol pH 7,0, 1 M KCl, 20 mM MgCl2, 5 mM ATP i 10 mM EGTA (glikol etylenowy-bis(β-aminoetylowy eter)-N,N,N',N'-tetraoctowy)). Zrób 10x bulion i dostosuj pH po dodaniu ATP, jeśli to konieczne. Podwielokrotność porcji (25 μl to objętość użyteczna) i przechowywać w temperaturze -80 °C.
- Przygotować 10x bufor reakcyjny (200 mM imidazol pH 7,0, 1,5 M NaCl, 20 mM MgCl2, 5 mM ATP i 10 mM EGTA). Zrób 10x bulion i dostosuj pH po dodaniu ATP, jeśli to konieczne. porcji (50-100 μl to objętość użyteczna) i przechowywać w temperaturze -80 °C.
UWAGA: Skład buforu reakcyjnego jest elastyczny i może wymagać dostosowania w celu zmniejszenia sedymentacji tła, ograniczenia niespecyficznego wiązania i/lub poprawy wiązania (kroki 1.5.1-1.5.3).- Dostosuj pH buforu reakcyjnego między 6 a 8, aby zoptymalizować stabilność białka. Przy niższym lub wyższym pH należy zastąpić imidazol.
odpowiednim buforem UWAGA: Użyj pH 7,0 jako punktu wyjścia, chyba że białko wymaga niższego lub wyższego pH dla stabilności. Nie należy stosować buforu o pH poniżej 6,0 lub wyższym niż 8,0, ponieważ może to zakłócić działanie aktyny. Zalecane (z podaniem stężenia końcowego i optymalnego pH) to: 20 mM MOPS (kwas 3-(N-morfolino)propanosulfonowy), pH = 6,5; 20 mM imidazolu, pH = 7,0; 10 mM HEPES (kwas 4-(2-hydroksyetylo)piperazyno-1-etanosulfonowy), pH = 7,5; i 20 mM Tris, pH = 8,0. - Zmieniać stężenie soli w buforze reakcyjnym, w zależności od potrzeb testu.
UWAGA: Aktyna jest białkiem kwaśnym i prawie wszystkie białka wiążące aktynę polegają w pewnym stopniu na oddziaływaniach elektrostatycznych w celu powiązania z aktyną. Dlatego zwiększenie stężenia soli w większości przypadków zmniejsza wiązanie aktyny. Bufor reakcyjny wykorzystuje fizjologiczny poziom soli (150 mM NaCl, stężenie robocze) i jest to zalecany punkt wyjścia. W razie potrzeby stężenie soli można obniżyć (np. do 100 mM), aby ułatwić wiązanie lub zwiększyć, aby ograniczyć wiązanie. - Nie należy zmieniać stężeń MgCl2, ATP lub EGTA w buforze reakcyjnym, chyba że istnieje ku temu konkretny powód.
- Dostosuj pH buforu reakcyjnego między 6 a 8, aby zoptymalizować stabilność białka. Przy niższym lub wyższym pH należy zastąpić imidazol.
2. Przygotuj białko testowe do testu
- Przygotuj białko o wysokiej czystości za pomocą chromatografii cieczowej, aby uzyskać najlepsze wyniki7.
UWAGA: W przypadku stosowania białka rekombinowanego, duże znaczniki białkowe, takie jak S-transferaza glutationu (GST), powinny zostać usunięte przez rozszczepienie proteazy z białka docelowego, ponieważ mogą one zakłócać wiązanie. GST powoduje również homodimeryzację białek fuzyjnych, co może sztucznie zwiększać powinowactwo wiązania aktyny. - Oznaczyć stężenie białka, mierząc absorbancję przy 280 nm. Podziel przez współczynnik ekstynkcji; Współczynnik ekstynkcji można obliczyć na podstawie sekwencji białka za pomocą analizy sekwencji lub narzędzi online. Alternatywnie należy oznaczyć stężenie białka za pomocą metod Bradforda lub BCA (kwas bicinchoninowy).
UWAGA: Do początkowych eksperymentów zwykle wystarcza 50-100 μL białka o stężeniu 20-40 μM. Pozwoli to na analizę wiązania w niskim zakresie mikromolowym, co jest użytecznym punktem wyjścia dla większości białek wiążących aktynę. Większa ilość, a często wyższe stężenie białka są potrzebne do wytworzenia krzywej wiązania w celu obliczenia powinowactwa (patrz punkt 5). - Tuż przed użyciem należy mocno odwirować białko (50 000-100 000 x g przez 10 minut w temperaturze 4 °C), aby usunąć agregaty nierozpuszczalnego białka. Jeśli istnieje problem z rozpuszczalnością, należy ponownie zmierzyć stężenie białka (krok 2.2) po odwirowaniu.
3. Przygotuj F-aktynę
- Wyjmij porcję G-aktyny z zamrażarki o temperaturze -80 °C i szybko ją rozmroź.
- Dodaj 10x bufor polimeryzacyjny do G-aktyny do końcowego stężenia 1x. Upewnij się, że stężenie G-aktyny w buforze polimeryzacyjnym 1x wynosi co najmniej 10-20 μM, znacznie powyżej stężenia krytycznego. Inkubować przez 1 godzinę w temperaturze pokojowej (RT), aby umożliwić polimeryzację aktyny.
- Po polimeryzacji F-aktynę należy przechowywać w roztworze o temperaturze 4 °C, gdzie będzie stabilna przez kilka tygodni. Przed ponownym użyciem F-aktyny po przechowywaniu, delikatnie odwróć lub przesuń rurkę kilka razy, aby upewnić się, że cała aktyna została rozpuszczona i równomiernie rozprowadzona w roztworze.
UWAGA: (Opcjonalnie) Dodaj falloidynę, aby uzyskać stosunek molowy G-aktyny do falloidyny 1:1. Inkubować przez 30 minut w temperaturze pokojowej, aby falloidyna mogła związać się z F-aktyną. Falloidyna stabilizuje F-aktynę i osiąga dwie rzeczy: (i) zmniejsza ilość aktyny, która nie osadza się podczas wirowania oraz (ii) umożliwia rozcieńczenie F-aktyny poniżej stężenia krytycznego (~0,5 μM), co często jest konieczne, jeśli zmienia się ilość F-aktyny w celu wytworzenia krzywej wiązania (patrz sekcja 5 dotycząca pomiaru powinowactwa).
4. Test granulowania – Protokół podstawowy
UWAGA: Podstawowy protokół opisany w sekcji 4 służy do określenia, czy interesujące białko współosadza się z F-aktyną. Po ustaleniu wiązania z F-aktyną, powinowactwo tej interakcji można zmierzyć zgodnie z protokołem opisanym w sekcji 5.
- Przygotować bufor reakcyjny w dniu użycia, rozcieńczając 10x zapas do 1x i dodać DTT do końcowego stężenia 1 mM.
UWAGA: (Opcjonalnie) Dodać polidokanol do końcowego stężenia roboczego 0,02% w buforze reakcyjnym. Polidokanol jest środkiem powierzchniowo czynnym, który zmniejsza niespecyficzne wiązanie tła i pomaga zapobiegać przywieraniu białek hydrofobowych do probówki ultrawirówkowej. - Rozcieńczyć interesujące Cię białko do pożądanych stężeń w 1x buforze reakcyjnym w probówkach do ultrawirówek. Utrzymuj małą objętość próbki (40-60 μl), aby uniknąć stosowania dużych ilości białka, używając probówek ultrawirówek o małych minimalnych objętościach (np. probówki 7 x 20 mm każda, z których każda mieści 0,2 ml).
UWAGA: Ponieważ wiele białek wiążących aktynę ma powinowactwo do F-aktyny w zakresie mikromolowym, zaleca się badanie interesującego białka przy 2 i 10 μM. Jeśli wiązanie nie jest obserwowane przy 10 μM, jest mało prawdopodobne, że wiązanie zostanie zaobserwowane przy wyższych stężeniach. Jeśli dodane białko stanowi więcej niż 10-20% końcowej objętości reakcji, może być konieczne dializowanie białka do buforu reakcyjnego przed wykonaniem eksperymentu. - Dodać F-aktynę do pożądanego stężenia końcowego.
UWAGA: 2 μM jest użytecznym stężeniem do początkowych eksperymentów, ponieważ jest znacznie powyżej stężenia krytycznego, utrzymując w ten sposób aktynę w stanie nitkowatym Po przeanalizowaniu przez SDS-PAGE (krok 4.10) wytworzy widoczną osadkę. - Przygotować następujące kontrole w probówkach do ultrawirówek, aby test miał charakter informacyjny.
- Przygotować próbkę(-i) zawierającą(-e) białko(-a) będącą(-e) przedmiotem zainteresowania, bez F-aktyny. Upewnij się, że stężenie białka w tych próbkach odpowiada stężeniu w próbkach "plus F-aktyna".
UWAGA: Próbki te określą ilość białka, które jest agregowane lub przyklejane do boków probówki ultrawirówki przy braku F-aktyny. - Przygotować ujemne próbki kontrolne o tym samym lub podobnym stężeniu (stężeniach), jakie stosuje się dla białka będącego przedmiotem zainteresowania. Użyj białka kontrolnego, które nie wiąże się z F-aktyną, z F-aktyną i bez niej.
UWAGA: Jest to ważna kontrola, ponieważ białka mogą zostać "uwięzione" we włóknach aktyny i osadach z F-aktyną, mimo że nie wiążą F-aktyny. Ilość pułapki może się różnić w zależności od źródła F-aktyny, warunków buforowych itp. Dlatego ta kontrola powinna być uwzględniona we wszystkich eksperymentach. Idealnie, białko kontrolne powinno mieć masę cząsteczkową podobną do białka będącego przedmiotem zainteresowania (np. dla αE-kateniny (~100 kDa), BSA (66 kDa) jest odpowiednią kontrolą). Dostępne na rynku wzorce filtracji żelowej stanowią doskonałe białka kontrolne, ponieważ obejmują różne rozmiary i zwykle nie zawierają kruszyw. - Opcjonalnie należy przygotować dodatnie próbki kontrolne zawierające białko wiążące się z F-aktyną, z F-aktyną i bez niej. Upewnij się, że stężenie (stężenia) są podobne do stężeń białka będącego przedmiotem zainteresowania.
UWAGA: Ta kontrola jest pomocna, ponieważ pokazuje, że warunki eksperymentalne (np. przygotowana F-aktyna, bufor reakcyjny i wirowanie) pozwalają na wiązanie F-aktyny. Ponieważ test granulowania może nie wykryć słabych oddziaływań F-aktyny (patrz Dyskusja), zaleca się, aby znane białko wiążące F-aktynę miało umiarkowane lub słabe powinowactwo do F-aktyny (tj. w niskim zakresie mikromolowym). Oczyszczone białka wiążące F-aktynę są dostępne na rynku.
- Przygotować próbkę(-i) zawierającą(-e) białko(-a) będącą(-e) przedmiotem zainteresowania, bez F-aktyny. Upewnij się, że stężenie białka w tych próbkach odpowiada stężeniu w próbkach "plus F-aktyna".
- Inkubować wszystkie próbki przez 30 minut w temperaturze RT.
UWAGA: Dłuższe czasy inkubacji są w porządku, zakładając, że białko będące przedmiotem zainteresowania jest stabilne, choć prawdopodobnie niepotrzebne. Jeżeli białko będące przedmiotem zainteresowania nie jest stabilne w temperaturze pokojowej, próbki można inkubować w temperaturze 4 °C. W takim przypadku może być konieczne wydłużenie czasu inkubacji. - Załaduj próbki do wirnika wirówki. Umieść rurki w wirniku, aby pomóc w ponownym zawieszeniu peletu po odwirowaniu. W tym celu należy oznaczyć wszystkie probówki wirówkowe (np. numerem próbki) i umieścić wszystkie probówki w wirniku w tej samej pozycji (np. liczbą skierowaną na zewnątrz).
- Wirować przy 100 000 x g przez 20 minut w temperaturze 4 °C w ultrawirówce.
- Po odwirowaniu pobrać 3/4 supernatantu (np. 45 μl, jeśli objętość początkowa wynosiła 60 μl) z każdej probówki i wymieszać z 1/3 objętości buforu 4x próbki (w tym przypadku 15 μl) w oddzielnej probówce do mikrowirówki.
- Usunąć pozostały supernatant za pomocą końcówki ładującej żel, uważając, aby nie naruszyć osadu (który może być widoczny jako szklista plama).
UWAGA: Ważne jest, aby usunąć supernatant z probówek tak szybko, jak to możliwe po zakończeniu wirówki, aby ograniczyć dysocjację białek po separacji. Z tego samego powodu nie należy również myć osadu buforem reakcyjnym.
- Usunąć pozostały supernatant za pomocą końcówki ładującej żel, uważając, aby nie naruszyć osadu (który może być widoczny jako szklista plama).
- Dodać 4/3 objętości 1x buforu próbki do każdej osadki (np. 80 μl, jeśli objętość początkowa wynosiła 60 μl).
UWAGA: Powoduje to, że rozcieńczenie jest takie samo jak w przypadku supernatantu (krok 4.8, dodano 1/3 objętości 4-krotnego buforu do próbek), co pozwala na bezpośrednie porównanie próbek osadu i supernatantu oraz określenie procentowej zawartości białka, która została ogranulowana.- Dodać bufor do próbki do wszystkich probówek i inkubować przez co najmniej 5 minut w temperaturze pokojowej. Pozostawić osad w buforze do próbki, aby poprawić odzyskiwanie próbki.
- Rozcierać próbkę 8-10 razy za pomocą końcówki pipety p200, aby ponownie zawiesić osad poprzez ciągłe mycie obszaru osadu w probówce. Delikatnie zeskrobać końcówkę pipety o granulkę podczas rozcierania, aby ułatwić ponowne wymieszanie.
UWAGA: Należy uważać, aby nie wprowadzać powietrza do próbki podczas rozcierania, ponieważ spowoduje to pęcherzyki w buforze próbki i zmniejszy odzysk próbki. - Po roztarciu przenieść zawieszone próbki do probówek do mikrofuge.
- Analizuj próbki supernatantu i osadu za pomocą SDS-PAGE i Coomassie staining8, ładując 10-15 μL próbki na linię; jest to wystarczające do wizualizacji białek.
UWAGA: Białka, które współosadzają się z F-aktyną, zostaną wzbogacone w próbkach osadów "plus F-aktyna" w porównaniu z próbkami osadów "bez F-aktyny" (Figura 1A). Standardowe barwienie Coomassie na niebiesko jest wystarczające do wykrycia, jeśli stężenia białka mieszczą się w zakresie 0,1-10 μM. Colloidal Coomassie9 lub Western blotting mogą być użyte do zwiększenia czułości, jeśli niższe stężenia białek są używane do pomiaru interakcji o wyższym powinowactwie. - Zobrazuj żele barwione Coomassie za pomocą skanera lub systemu obrazowania (krok 5.12).
5. Test granulowania – kwantyfikacja
Uwaga: Jeśli zaobserwuje się specyficzne wiązanie z F-aktyną, może to być przydatne do zmierzenia powinowactwa interakcji. Osiąga się to poprzez wprowadzenie kilku zmian i uzupełnień do protokołu opisanego w sekcji 4. Aby uzyskać doskonały przewodnik po projektowaniu i interpretacji testów wiążących, zobacz Pollard10. Schemat blokowy (rysunek 2) służy do pomocy w analizie i kwantyfikacji.
- Określić zakres stężeń do przetestowania.
UWAGA: Zakres stężeń będzie zależał od białka i powinien wahać się od stężenia poniżej pozornego Kd (np. 1 μM) do stężeń wystarczająco wysokich, aby nasycić wiązanie. Bardzo ważne jest, aby wiązanie osiągnęło nasycenie w wielu próbkach na górnym końcu zakresu stężeń, aby wygenerować dokładną krzywą wiązania (rysunek 1C). Jak wspomniano powyżej, wiele białek wiążących aktynę ma powinowactwo do F-aktyny w niskim zakresie mikromolowym (1-5 μM). Dla białka o Kd 0,5-1 μM, użyteczny zakres stężeń początkowych wynosiłby 0,1-10 μM. - Twardy wir (krok 2.3) białko będące przedmiotem zainteresowania w celu usunięcia agregatów. Seryjnie rozcieńczyć białko, aby uzyskać serię stężeń zawierającą 7-8 próbek o 2-krotnym stężeniu końcowym, które ma być badane. Na przykład, jeśli zakres do badania wynosi 0,1-8 μM, przygotuj następujące rozcieńczenia w 1x buforze reakcyjnym: 16, 8, 4, 2, 1, 0,5 i 0,2 μM.
UWAGA: Jak wspomniano w kroku 4.2, jeśli dodane białko stanowi więcej niż 10%-20% pierwszego rozcieńczenia (próbka 16 μM w powyższym przykładzie), może być konieczne dalsze zagęszczenie białka lub dializa białka do 1x buforu reakcyjnego. Należy upewnić się, że przygotowałeś wystarczającą ilość każdego rozcieńczenia dla próbek "plus F-aktyna" i "bez F-aktyny". - Przygotować próbki (jak w sekcji 4), rozcieńczając interesujące białko do pożądanych stężeń w 1x buforze reakcyjnym w probówkach do ultrawirówek. Utrzymuj małe objętości próbki (40-60 μl), aby uniknąć stosowania dużych ilości białka, używając probówek ultrawirówek o małych minimalnych objętościach (np. probówki 7 x 20 mm każda, z których każda mieści 0,2 ml).
- Dodać F-aktynę do pożądanego stężenia końcowego do odpowiednich próbek i zwiększyć objętość za pomocą 1x buforu reakcyjnego. Na przykład w przypadku reakcji 50 μL z użyciem 2 μM F-aktyny upewnij się, że każda próbka ma 25 μl 2x białka, 10 μL 10 μM F-aktyny i 15 μL 1x buforu reakcyjnego. Uwzględnić próbki kontrolne (etapy 4.4.2 i 4.4.3).
UWAGA: W przypadku kontroli ujemnych i dodatnich należy użyć jednego stężenia w badanym zakresie (krok 5.1), najlepiej w pobliżu środkowej lub górnej granicy zakresu (np. 4 μM, jeśli zakres stężeń wynosi 0,1-10 μM).
- Dodać F-aktynę do pożądanego stężenia końcowego do odpowiednich próbek i zwiększyć objętość za pomocą 1x buforu reakcyjnego. Na przykład w przypadku reakcji 50 μL z użyciem 2 μM F-aktyny upewnij się, że każda próbka ma 25 μl 2x białka, 10 μL 10 μM F-aktyny i 15 μL 1x buforu reakcyjnego. Uwzględnić próbki kontrolne (etapy 4.4.2 i 4.4.3).
- Inkubować wszystkie próbki przez 30 minut w temperaturze pokojowej.
- Po 30 minutach usunąć 1/5 każdej próbki (np. 10 μl z 50 μl reakcji) i wymieszać z 20 μl wody i 10 μl 4x buforu do próbek.
UWAGA: Są to próbki "Całkowite" i zostaną użyte do wygenerowania krzywej standardowej. - Załaduj próbki do wirnika ultrawirówki. Wirować przez 20 minut w temperaturze 100 000 x g i temperaturze 4 °C.
- Opcjonalnie, po odwirowaniu, usunąć 3/4 supernatantu (np. 30 μl, jeśli objętość odwirowanej wody wynosiła 40 μl) z każdej probówki i wymieszać z 4x buforem próbki (w tym przypadku 10 μl) w oddzielnej probówce do mikrofuge. Usunąć pozostały supernatant za pomocą końcówki ładującej żel, uważając, aby nie naruszyć osadu.
UWAGA: Podczas pomiaru powinowactwa wiązania nie jest konieczne uruchamianie supernatantu. Niemniej jednak może to być przydatne do oszczędzania supernatantu, zwłaszcza podczas testowania nowego białka. - Usuń supernatant, jeśli nie analizujesz (krok 5.7).
- Zawiesić osad w 1 objętości 1x buforu próbki (np. 40 μl, jeśli objętość odwirowanej próbki wynosiła 40 μl).
- Dodać bufor do próbki do wszystkich probówek i inkubować przez co najmniej 5 minut w temperaturze pokojowej.
- Roztarć próbkę 8-10 razy za pomocą końcówki pipety p200, ciągle myjąc obszar granulek w probówce. Delikatnie zeskrobać końcówkę pipety nad osadem podczas rozcierania, aby ułatwić ponowne wymieszanie.
- Przenieść zawieszone białko do probówki do mikrowirówki.
UWAGA: To są próbki "Pellet". - Przeanalizuj próbki Total i Pellet za pomocą SDS-PAGE8. Jeśli to możliwe, należy umieścić wszystkie próbki na jednym żelu; Jeśli nie, uruchom próbki granulek na jednym żelu, a wszystkie próbki na drugim.
UWAGA: Biorąc pod uwagę liczbę próbek, do analizy zalecany jest duży system żelowy. W przypadku pobierania próbek na dwóch lub więcej żelach ważne jest, aby wszystkie żele były barwione identycznie (tj. tym samym roztworem Coomassie i identycznym czasem barwienia/odbarwiania). - Obraz żeli barwionych Coomassie za pomocą systemu obrazowania, który mierzy intensywność pasma białkowego w szerokim (tj. od dwóch do trzech logarytmów) i liniowym zakresie. Upewnij się, że obrazy są zbierane bez nasyconych pikseli.
UWAGA: Laserowe systemy obrazowania oferują najlepszą czułość i stosunek sygnału do szumu. - Korzystając z ImageJ lub podobnego programu do analizy, zmierz intensywność pasm białkowych i oblicz ilość związanego białka.
UWAGA: W przypadku wszystkich pomiarów próbki użyj narzędzia do zaznaczania w ImageJ, aby narysować obszar zainteresowania (ROI) wokół każdego pasma i zmierzyć (Analizuj > zmierz) obszar i średnią wartość szarości. Oblicz tło dla każdego żelu, mierząc średnią wartość szarości z obszaru bez próbki. Odejmij średnią wartość szarości tła od każdej średniej wartości szarości ROI, a następnie pomnóż przez obszar, aby uzyskać zintegrowaną wartość gęstości dla każdego pasma.- Zmierzyć intensywność białka o intensywności pasma zainteresowań z próbek całkowitych (ryc. 2A).
- Wygeneruj krzywą standardową, wykreślając intensywność pasma (tj. zintegrowane pomiary gęstości) w funkcji masy białka (rysunek 2B).
- Zmierz ilość białka będącego przedmiotem zainteresowania, które uległo kosedymentacji F-aktyną (białko współsedymentowane, ryc. 2C).
- Zmierz ilość białka będącego przedmiotem zainteresowania, które uległo sedymentacji pod nieobecność F-aktyny (sedymentacja w tle, ryc. 2D).
- Odejmij sedymentację tła od białka współsedymentowanego (tj. odejmij wartości z kroku 5.13.4 od kroku 5.13.3), aby określić ilość białka, które wiąże się z F-aktyną.
- Zmierz ilość F-aktyny w każdym osadku (rysunek 2E). Określ średnią ilość F-aktyny na próbkę, a następnie podziel każdą próbkę przez średnią, aby określić stosunek F-aktyny w każdej próbce w stosunku do średniej (tj. liczby poniżej pasm).
- Dla każdej próbki podzielić ilość związanego białka (obliczoną w kroku 5.13.5) przez stosunek F-aktyny do osadu aktyny (krok 5.13.6), aby skorygować różnice w osadzie.
UWAGA: Ta wartość jest znormalizowanym białkiem związanym. - Użyć krzywej wzorcowej (krok 5.13.2), aby obliczyć ilość (masę) znormalizowanego białka związanego (krok 5.13.7) w każdej próbce.
UWAGA: Białko usunięte początkowo (próbka "całkowita"), jak również ilość załadowana (która, o ile cała osadka nie została załadowana, będzie stanowić pewną frakcję osadu), muszą być uwzględnione przy obliczaniu całkowitej ilości białka, które zostało granulowane. - Oznaczyć stężenie białka związanego w każdej próbce na podstawie całkowitej masy białka w osadzie (obliczonej w kroku 5.13.8) i objętości próbki. Odejmij tę wartość od stężenia początkowego, aby określić ilość wolnego białka. Podziel stężenie związanego białka przez stężenie aktyny (μM/μM aktyny) i wykreśl w stosunku do stężenia wolnego białka, aby wygenerować krzywą wiązania (ryc. 1C).
UWAGA: Ponieważ F-aktyna nie jest pojedynczym, jednorodnym gatunkiem, trudno jest ekstrapolować stężenie molowe F-aktyny ze stężenia G-aktyny. Użyj początkowego stężenia G-aktyny, aby określić ilość związanego białka (μM/μM aktyny) i oszacować pozorne stężenie miejsc wiązania w reakcji. Stężenie miejsc wiązania jest zwykle mniejsze niż stężenie monomerów aktyny w reakcji, ponieważ nie cała aktyna polimeryzuje i ponieważ pojedyncza cząsteczka białka wiążącego aktynę może stykać się z wieloma monomerami na włóknie aktyny.
- Za pomocą programu statystycznego określ powinowactwo (Kd) i Bmax na podstawie krzywej wiązania przy użyciu nieliniowej regresji metodą najmniejszych kwadratów.
UWAGA: Wykresy Scatcharda są odradzane do analizowania danych wiązania, częściowo dlatego, że mogą zaciemniać, czy wiązanie jest nasycone, a także dlatego, że mogą zniekształcać błąd eksperymentalny10.
Wyniki
Zbadaliśmy wiązanie homodimeru αE-kateniny z F-aktyną w teście kowyprecypitacji (co-sedimentation assay). Ponieważ wcześniejsze eksperymenty wykazały, że powinowactwo homodimeru αE-kateniny do F-aktyny wynosi około 1 µM, a Bmax blisko 111, test przeprowadzono przy niskim stężeniu F-aktyny (0,2 µM zamiast 2 µM; patrz sekcja Dyskusja). Ponieważ 0,2 µM znajduje się poniżej stężenia krytycznego, dodano faloidynę w celu stabilizacji F-aktyny spolimeryzowanej z G-aktyny mięśni szkieletowych królika (krok 3.3). Rosnące stężenia homodimeru αE-kateniny (0,125-12,0 µM) inkubowano w obecności lub w nieobecności 0,2 µM F-aktyny. Próbki odwirowano, a otrzymane osady poddano analizie (Rycina 1A). Zgodnie z oczekiwaniami, homodimer αE-kateniny kowyprecypitował z F-aktyną powyżej poziomu tła (Rycina 1A, porównując próbki osadu z F-aktyną do próbek osadu bez F-aktyny). BSA zastosowano jako kontrolę negatywną (Rycina 1B). Ilość związanego białka oznaczono i wykreślono w funkcji ilości białka wolnego, aby obliczyć powinowactwo oddziaływania (Rycina 1C). Wykreślone dane najlepiej pasowały do równania Hilla. Obliczona wartość Kd wyniosła 2,9 µM, Bmax wyniosła 0,2, a współczynnik Hilla (h) wyniósł 4,8. Zatem homodimer αE-kateniny wiąże F-aktynę kooperacyjnie z niskim mikromolarnym powinowactwem, co jest zgodne z poprzednimi badaniami (Kd wynosząca 2,9 µM w porównaniu do ~1,0 µM)11.
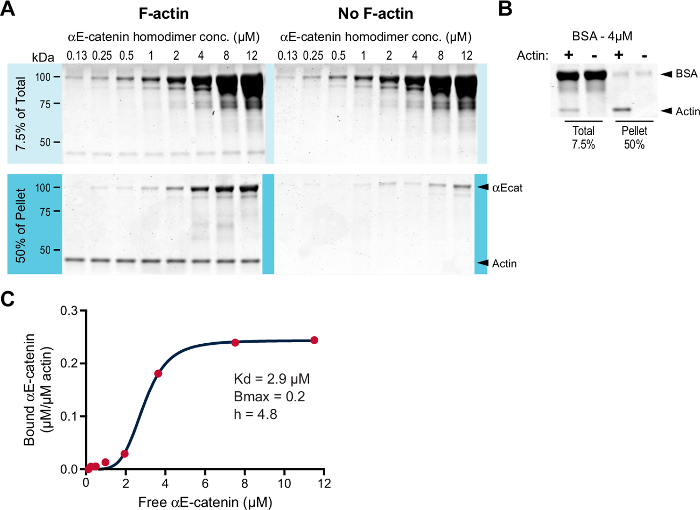
Rycina 1: Szybki test współsedymentacji F-aktyny. (A) Rosnące stężenia (0,125-12,0 µM) homodimeru αE-kateiny inkubowano z (panele lewe) lub bez (panele prawe) 0,2 µM F-aktyny stabilizowanej faloidyną. Inkubację prowadzono przez 30 min w RT, a następnie próbki odwirowano. Materiał całkowity (7,5% materiału wyjściowego) oraz osad (50% osadu) rozdzielono metodą SDS-PAGE i barwiono barwnikiem Coomassie. (B) W качестве kontroli negatywnej wykorzystano 4 µM BSA. Próbki całkowite oraz osady, z (+) lub bez (-) F-aktyny, rozdzielono metodą SDS-PAGE i barwiono barwnikiem Coomassie. (C) Ilość związanej αE-kateiny (µM/µM aktyny) z punktu A naniesiono na wykres w funkcji wolnej αE-kateiny (µM), a dane dopasowano do równania Hilla (czerwona linia). Podano wartości Kd, Bmax oraz współczynnik Hilla (h). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
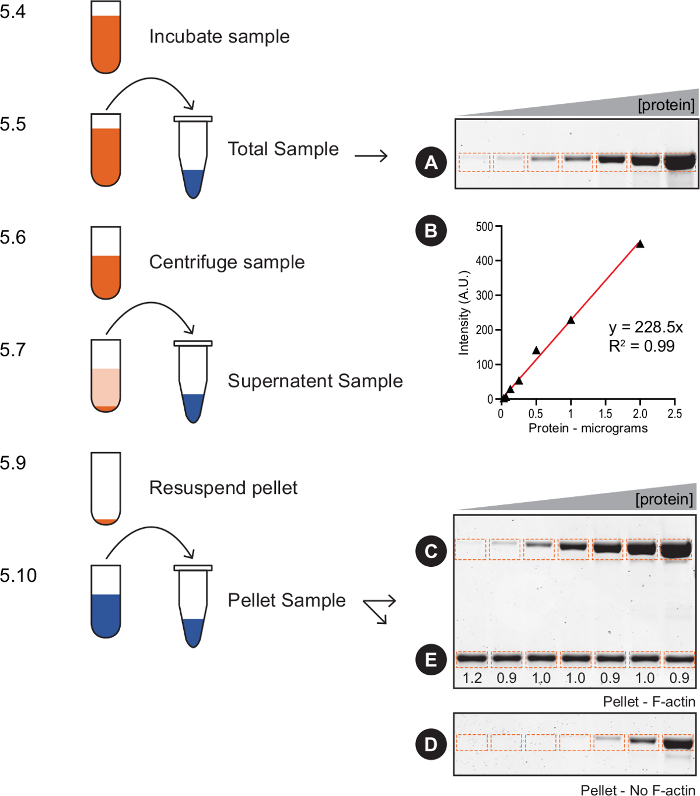
Rycina 2: Ilościowe oznaczanie osadzania aktyny – schemat blokowy. Ten schemat przedstawia kluczowe kroki opisane w sekcji 5, wraz z przykładami próbek całkowitych (Total) i osadów (Pellet) (A, C-E) oraz krzywej wzorcowej (B) wykorzystywanej do ilościowego oznaczania. Kroki 5.13: 1) Pomiar ilości białka docelowego w próbkach całkowitych (A). 2) Wyznaczenie krzywej wzorcowej poprzez naniesienie intensywności prążka w funkcji masy białka (B). 3) Pomiar ilości białka docelowego, które współosadzało się z F-aktyną (C). 4) Pomiar ilości białka docelowego, które osadziło się w obecności F-aktyny (D). 5) Odjęcie wartości D od C w celu określenia ilości białka związanego z F-aktyną. 6) Pomiar ilości F-aktyny w każdym osadzie (E), obliczenie średniej ilości F-aktyny na próbkę i podzielenie każdej próbki przez tę średnią (liczby poniżej przedstawiają stosunek). 7) Dla każdej próbki podzielenie ilości białka związanego (obliczonej w kroku 5) przez stosunek osadu F-aktyny (obliczony w kroku 6) w celu skorygowania różnic w osadzie. 8) Wykorzystanie krzywej wzorcowej (B) do obliczenia ilości (masy) znormalizowanego białka związanego w każdej próbce (krok 7). 9) Wyznaczenie stężenia białka wolnego i białka związanego w celu stworzenia krzywej wiązania. Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
Dyskusja
Test kosedymentacji aktyny jest prostą techniką, która pozwala szybko określić, czy białko wiąże F-aktynę. Po pewnych modyfikacjach technika ta może być również używana do pomiaru powinowactwa interakcji. Oprócz punktów poruszonych w powyższym protokole, podczas projektowania, przeprowadzania i interpretacji testu należy wziąć pod uwagę następujące kwestie.
Białko będące przedmiotem zainteresowania
W teście można użyć świeżo przygotowanego lub zamrożonego białka. Jeśli stosuje się białko mrożone, zdecydowanie zaleca się porównanie wyników ze świeżym (nigdy nie mrożonym) białkiem, aby upewnić się, że zamrażanie nie wpływa na wiązanie F-aktyny.
Źródło G-aktyny
W wielu eksperymentach z granulowaniem stosuje się G-aktynę wyizolowaną z mięśni ze względu na jej względną obfitość. Istnieją trzy główne izotypy aktyny u ssaków – alfa, beta i gamma – które są niezwykle podobne (>90% identyczności sekwencji). Niemniej jednak istnieją różnice funkcjonalne między izotypami12,13. Jeśli to możliwe, izotyp G-aktyny użyty w teście wiązania powinien być zgodny z izotypem in vivo. Na przykład, jeśli testujesz białko ulegające ekspresji w mięśniach szkieletowych, alfa-aktyna jest najlepszym wyborem; W przypadku badania białka ulegającego ekspresji w fibroblastach zaleca się beta-aktynę.
Stosowanie falloidyny
Ponieważ falloidyna wiąże F-aktynę, może zakłócać lub nawet blokować wiązanie niektórych białek wiążących F-aktynę (np. falloidyna blokuje wiązanie kofiliny z włóknami aktyny)14. Dlatego falloidynę należy stosować ostrożnie, a wyniki porównać z próbkami nietraktowanymi falloidyną, jeśli to możliwe.
Wysokie tło
Nierzadko zdarza się, że białka osadzają się pod nieobecność F-aktyny (Figura 1A, brak próbek osadów F-aktyny). Jednak wysoki poziom sedymentacji tła może maskować prawdziwą kosedymentację aktyny i utrudniać, jeśli nie uniemożliwiać, określenie, czy białko wiąże F-aktynę lub zmierzenie powinowactwa interakcji. Dodanie polidikanolu do buforu reakcyjnego (krok 4.1) może znacznie zmniejszyć tło i jest łatwym rozwiązaniem. Jeśli to nie zmniejszy tła, pomocne może być dostosowanie bufora reakcyjnego, stężenia soli i/lub temperatury inkubacji.
Krzywa wiązania
Aby wygenerować krzywą wiązania, konieczne jest zmienianie stężenia białka będącego przedmiotem zainteresowania lub F-aktyny w serii reakcji. W praktyce łatwiej i lepiej jest utrzymywać F-aktynę w stałym stężeniu i zmieniać stężenie interesującego nas białka. Utrzymanie F-aktyny w ustalonym stężeniu (np . 2 μM) w teście granulowania ogranicza niespecyficzne wychwytywanie przy wyższych stężeniach F-aktyny i zapobiega depolimeryzacji przy niższych (<0,5 μM) stężeniach F-aktyny. Depolimeryzacji można zapobiec za pomocą falloidyny, chociaż wprowadza to potencjalny czynnik komplikujący do systemu (patrz krok 3.3 i powyżej). Utrzymanie F-aktyny w ustalonym stężeniu pozwala również na porównanie (i normalizację) osadu F-aktyny w różnych próbkach oraz na zidentyfikowanie nieudanych eksperymentów (tj. Gdzie osad F-aktyny jest bardzo zmienny, co uniemożliwia analizę między stężeniami). Wreszcie, utrzymanie F-aktyny w ustalonym stężeniu pozwala określić, czy wiązanie z włóknem aktyny jest kooperatywne (ryc. 1C).
Wiązanie nasycone
Podobnie jak we wszystkich eksperymentach wiązania, bardzo ważne jest, aby wiązanie z F-aktyną było nasycone i aby stężenie białka i F-aktyny utrzymywało się na stałym poziomie (ryc. 1C). Bez plateau nie jest możliwe obliczenie dokładnej stałej równowagi dysocjacji. Dlatego ważne jest, aby dokładnie zaplanować serię rozcieńczeń, która ma być badana i zawsze uwzględniać wyższe stężenia białka (tj. co najmniej 5 do 10 razy wyższe niż oczekiwana Kd).
Analiza powiązań
Aby zmierzone stałe dysocjacji były rozstrzygające, test należy przeprowadzić przy użyciu stężenia F-aktyny, które pozwala na to, aby stężenie miejsc wiązania na F-aktynie dla białka będącego przedmiotem zainteresowania było znacznie niższe niż powinowactwo. Aby sprawdzić, czy kryterium to zostało spełnione, należy oszacować stężenie miejsc wiązania od Bmax. Na przykład, jeśli [F-aktyna] wynosiła 2 μM, a Bmax = 0,5, to [miejsca wiązania] ≈ 1 μM. Kd powinien być co najmniej 5 do 10 razy większy niż [miejsca wiązania]. Jeśli zmierzone Kd jest tego samego rzędu wielkości co [miejsca wiązania], to możliwe jest, że obserwowana krzywa wiązania reprezentuje miareczkowanie miejsc wiązania o wysokim powinowactwie, a nie rzeczywistą izotermę wiązania. Jeśli zostanie to zaobserwowane, powtórz test, stosując 10-krotnie niższe stężenie F-aktyny, aby zmierzyć dokładne powinowactwo. W przypadku interakcji o wysokim powinowactwie stabilizacja falloidyny (krok 3.3) może być konieczna, aby osiągnąć stężenie F-aktyny wystarczająco niskie, aby dokładnie zmierzyć powinowactwo.
Wreszcie, istnieją podstawowe ograniczenia testu kosedymentacji, o których badacze powinni wiedzieć podczas wykonywania i oceny testu. Co najważniejsze, test kosedymentacji nie daje prawdziwej stałej równowagi. Produkty wiązania (tj. białko plus F-aktyna) są oddzielane od reagentów podczas wirowania, po czym produkty mogą następnie dysocjować, tworząc nową równowagę. W rezultacie, test kosedymentacji może błędnie obliczyć lub nie wykryć interakcji o niskim powinowactwie. Ponieważ wiele białek wiążących aktynę ma niskie (tj. mikromolowe) powinowactwo do F-aktyny, ujemny wynik (tj. brak wykrywalnego wiązania) w teście niekoniecznie oznacza, że białko nie wiąże F-aktyny. Alternatywnie, oparte na mikroskopii TIRF testy wiązania pojedynczych włókien są bardziej czułe i dokładniejsze w określaniu stałej dysocjacji (przeglądy dotyczące tej techniki znajdują się w piśmiennictwie15,16). Pomimo tych ograniczeń, test granulowania jest w zasięgu możliwości większości badaczy i jest skutecznym narzędziem do określenia, czy białko wiąże F-aktynę i do pomiaru powinowactwa interakcji.
Oświadczenia
Autorzy oświadczają, że nie mają konkurencyjnych interesów finansowych.
Podziękowania
Ta praca była wspierana przez National Institutes of Health Grant HL127711 dla AVK.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Sorvall MTX 150 Mikroultrawirówka | ThermoFisher Scientific | 46960 | |
| S100-AT3 Rotor | ThermoFisher Scientific | 45585 | |
| Probówki ultrawirówkowe - 0,2 ml | ThermoFisher Scientific | 45233 | |
| cytoszkielet | mięśni szkieletowych królika | AKL99 | |
| Albumina surowicy bydlęcej | Sigma | A8531 | |
| Polidicanol (Thesit) | Sigma | 88315 | |
| Faloidyna | ThermoFisher Scientific | P3457 | |
| Ditiothreitol (DTT) | ThermoFisher Scientific | R0862 | |
| Adenozynotrifosforan (ATP) | Sigma | A2383 | |
| Imidazol | Fisher Scientific | O3196 | |
| Chlorek sodu (NaCl) | Fisher Scientific | BP358 | |
| Chlorek magnezu (MgCl2) | Fisher Scientific | M33 | |
| Chlorek potasu (KCl) | Fisher Scientific | P217 | |
| Glikol etylenowy-bis(β-aminoetylowy eter)-N,N,N',N'-tetraoctowy (EGTA) | Sigma | 3779 | |
| System obrazowania Odyssey CLx | LI-COR | ||
| Coomassie Brilliant Niebieski barwnik R-250 | ThermoFisher Scientific | 20278 | |
| Zestaw do barwienia koloidalnego niebieskiego | ThermoFisher Scientific | LC6025 |
Bibliografia
- Pollard, T. D. Actin and Actin-Binding Proteins. Cold Spring Harb Perspect Biol. 8 (8), (2016).
- Hansen, M. D., Kwiatkowski, A. V. Control of actin dynamics by allosteric regulation of actin binding proteins. Int Rev Cell Mol Biol. 303, 1-25 (2013).
- Lappalainen, P. Actin-binding proteins: the long road to understanding the dynamic landscape of cellular actin networks. Mol Biol Cell. 27 (16), 2519-2522 (2016).
- Mullins, R. D., Hansen, S. D. In vitro studies of actin filament and network dynamics. Curr Opin Cell Biol. 25 (1), 6-13 (2013).
- Miller, P. W., et al. Danio rerio alphaE-catenin is a monomeric F-actin binding protein with distinct properties from Mus musculus alphaE-catenin. J Biol Chem. 288 (31), 22324-22332 (2013).
- Wickline, E. D., et al. alphaT-Catenin Is a Constitutive Actin-binding alpha-Catenin That Directly Couples the Cadherin.Catenin Complex to Actin Filaments. J Biol Chem. 291 (30), 15687-15699 (2016).
- Simpson, R. J., Adams, P. D., Golemis, E. Basic methods in protein purification and analysis : a laboratory manual. , Cold Spring Harbor Laboratory Press. (2009).
- Laemmli, U. K. Cleavage of structural proteins during the assembly of the head of bacteriophage T4. Nature. 227 (5259), 680-685 (1970).
- Dyballa, N., Metzger, S. Fast and sensitive colloidal coomassie G-250 staining for proteins in polyacrylamide gels. J Vis Exp. (30), (2009).
- Pollard, T. D. A guide to simple and informative binding assays. Mol Biol Cell. 21 (23), 4061-4067 (2010).
- Hansen, S. D., et al. alphaE-catenin actin-binding domain alters actin filament conformation and regulates binding of nucleation and disassembly factors. Mol Biol Cell. 24 (23), 3710-3720 (2013).
- Perrin, B. J., Ervasti, J. M. The actin gene family: function follows isoform. Cytoskeleton (Hoboken). 67 (10), 630-634 (2010).
- Tondeleir, D., Vandamme, D., Vandekerckhove, J., Ampe, C., Lambrechts, A. Actin isoform expression patterns during mammalian development and in pathology: insights from mouse models. Cell Motil Cytoskeleton. 66 (10), 798-815 (2009).
- Prochniewicz, E., Janson, N., Thomas, D. D., Dela Cruz, E. M. Cofilin increases the torsional flexibility and dynamics of actin filaments. J Mol Biol. 353 (5), 990-1000 (2005).
- Kuhn, J. R., Pollard, T. D. Real-time measurements of actin filament polymerization by total internal reflection fluorescence microscopy. Biophys J. 88 (2), 1387-1402 (2005).
- Hansen, S. D., Zuchero, J. B., Mullins, R. D. Cytoplasmic actin: purification and single molecule assembly assays. Methods Mol Biol. 1046, 145-170 (2013).
Przedruki i uprawnienia
