Przeszczepianie komórek nowotworowych jest ważnym narzędziem do identyfikacji mechanizmów nowotworowych i odpowiedzi terapeutycznych. Obecne techniki opierają się na zwierzętach niekompetentnych immunologicznie. W tym miejscu opisujemy metodę przeszczepiania komórek nowotworowych danio pręgowanego do zarodków kompetentnych immunologicznie w celu długoterminowej analizy zachowania komórek nowotworowych i odpowiedzi na leki in vivo.
Artykuł metodologiczny
Przeszczepianie pediatrycznych guzów mózgu danio pręgowanego do gospodarzy kompetentnych immunologicznie w celu długoterminowego badania zachowania komórek nowotworowych i odpowiedzi na leki
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Przeszczepianie komórek nowotworowych jest ważną techniką do definiowania mechanizmów kontrolujących wzrost, migrację i odpowiedź komórek nowotworowych, a także do oceny potencjalnej odpowiedzi pacjenta na terapię. Obecne metody w dużej mierze polegają na wykorzystaniu zwierząt syngenicznych lub z obniżoną odpornością, aby uniknąć odrzucenia przeszczepu guza. Takie metody wymagają użycia określonych szczepów genetycznych, które często uniemożliwiają analizę interakcji między komórkami odpornościowymi a nowotworowymi i/lub są ograniczone do określonego tła genetycznego. Alternatywna metoda u danio pręgowanego wykorzystuje nie w pełni rozwinięty układ odpornościowy w mózgu embrionalnym przed 3 dniami, gdzie komórki nowotworowe są przeszczepiane do wykorzystania w testach krótkoterminowych (tj. 3 do 10 dni). Jednak metody te powodują śmiertelność gospodarza, co uniemożliwia długoterminowe badanie zachowania komórek nowotworowych i odpowiedzi na leki. Protokół ten opisuje prostą i skuteczną metodę długotrwałego ortotopowego przeszczepu tkanki guza mózgu danio pręgowanego do czwartej komory 2-dniowego, kompetentnego immunologicznie danio pręgowanego. Metoda ta umożliwia: 1) długoterminowe badanie zachowań komórek nowotworowych, takich jak inwazja i rozprzestrzenianie się; 2) trwała odpowiedź guza na leki; oraz 3) ponowny przeszczep guzów w celu zbadania ewolucji guza i/lub wpływu różnych środowisk genetycznych gospodarza. Podsumowując, technika ta pozwala badaczom nowotworów ocenić wszczepienie, inwazję i wzrost w odległych miejscach, a także wykonywać chemiczne badania przesiewowe i testy konkurencji komórkowej przez wiele miesięcy. Protokół ten może zostać rozszerzony na badania innych typów nowotworów i może być wykorzystany do wyjaśnienia mechanizmów chemooporności i przerzutów.
Wprowadzenie
Przeszczepianie komórek nowotworowych zwierzętom z obniżoną odpornością, szczególnie mysim ksenoprzeszczepom, jest szeroko stosowaną techniką używaną do badania mechanizmów kontrolujących proliferację komórek rakowych1,2, przeżycie, inwazja i przerzuty3,4, a także do zapewnienia platformy do badań przesiewowych leków5,6,7. Ostatnio przeszczepianie pierwotnych próbek guza myszom z obniżoną odpornością zostało wykorzystane do generowania modeli ksenoprzeszczepów pochodzących od pacjenta (PDX) do celów diagnostycznych i przedklinicznych badań przesiewowych leków i stanowi podstawę inicjatywy medycyny spersonalizowanej8,9,10,11. Jednak znaczące dowody wskazują, że modulowanie układu odpornościowego może mieć dramatyczny wpływ na zachowanie guza i wyniki pacjenta12,13. Doprowadziło to do przeprojektowania technik opartych na ksenoprzeszczepach, aby objąć "humanizowane" myszy, u których układ odpornościowy myszy jest odtwarzany przez jednoczesne przeszczepianie ludzkich komórek odpornościowych z komórkami nowotworowymi. Jednak to podejście jest nadal trudne technicznie, ze zmienną odtwarzalnością i toksycznością związaną z techniką, oprócz znacznego kosztu14,15. W związku z tym potrzebne są nowe techniki przeszczepiania u zwierząt kompetentnych immunologicznie, aby przyspieszyć odkrywanie specyficznych dla układu immunologicznego i nowotworowego mechanizmów progresji raka i odpowiedzi na leki.
Danio pręgowany to alternatywny model zwierzęcy do badań nad ludzkimi nowotworami, z ponad 20 modelami nowotworów obecnie już ustalonych16, w tym wysoce złośliwy mózg17, czerniak18,19,20, oraz raki trzustki21,22, a także wiele białaczek23,24,25,26,27. Dwie cechy systemu danio pręgowanego sprawiają, że jest on szczególnie podatny na badania nad rakiem: 1) przejrzystość optyczna półprzezroczystych zwierząt pozwala na bezpośrednią wizualizację zachowań komórek rakowych (tj. proliferacji, przeżycia, inwazji i rozprzestrzeniania) przy użyciu prostych technik mikroskopowych oraz 2) samice danio pręgowanego mogą produkować do 200 zarodków dziennie, co pozwala na szybkie skalowanie liczby zwierząt do badań genetycznych lub przesiewowych leków przy niskich kosztach. Ponadto genomy nowotworowe danio pręgowanego i ludzi są wysoce konserwatywne (w tym onkogeny i geny supresorowe nowotworów)28, co pozwala na szybkie przełożenie odkryć mechanistycznych i leków na systemy ssaków. Te cechy sprawiają również, że danio pręgowany jest idealnym modelem zwierzęcym do technik transplantacji, które wykorzystują obrazowanie, skalowalność i niski koszt systemu.
Poprzednie badania nad przeszczepami nowotworów u danio pręgowanego z obniżoną odpornością ułatwiły identyfikację zdolności do samoodnowy, złośliwości nowotworu oraz inwazji/rozprzestrzeniania się11,29. Krótkoterminowe badania zachowania komórek nowotworowych można przeprowadzić po przeszczepie do osób dorosłych napromieniowanych γ, których układ odpornościowy jest skutecznie tłumiony przez ~20 dni11,30. Leczenie dorosłych ryb danio pręgowanego deksametazonem hamuje limfocyty B i T przez okres do 30 dni, zanim nastąpi odrzucenie31. Inna, mniej powszechna strategia wykorzystuje klonalne szczepy danio pręgowanego, które umożliwiają długoterminowe badania w uodpornym żywicielu32. Jednak wygenerowano tylko ograniczoną liczbę szczepów klonalnych, które są trudne do utrzymania ze względu na niską płodność. Ponadto większość znanych modeli nowotworów danio pręgowanego jest generowana w innych tłach genetycznych, więc guzy te nie mogą być przeszczepione do szczepów klonalnych bez tłumienia układu odpornościowego11,33,34. Nowsze podejścia mające na celu poprawę długoterminowych badań transplantacyjnych obejmują opracowanie zmutowanej linii rag2E450fs, z upośledzonymi funkcjami komórek B i T, która została wykorzystana do skutecznego przeszczepiania wielu nowotworów35,36. Aby obejść wymóg klonalnych linii dań pręgowanego lub żywiciela z obniżoną odpornością, wiele grup wykorzystało zarodki we wczesnym stadium (tj. >72 godziny po zapłodnieniu (hpf)) do przeszczepu ludzkich komórek nowotworowych, ponieważ zarodki te nie rozwinęły jeszcze w pełni adaptacyjnego układu odpornościowego37,38,39,40,41,42,43. Jednak metody te ograniczają się do krótkoterminowej analizy zachowania komórek nowotworowych lub odpowiedzi na lek (zwykle krócej niż 2 tygodnie), ponieważ ludzkie komórki rakowe lub sama technika przeszczepu zabija gospodarza, uniemożliwiając długoterminowe badania i ponowny przeszczep.
Ten protokół szczegółowo opisuje zmodyfikowaną metodę przeszczepu embrionalnego do światła czwartej komory mózgu zarodka z 2 dni po zapłodnieniu (dpf). Minimalizuje toksyczność dla gospodarza i może być łączony z modelami guza mózgu danio pręgowanego w celu długotrwałego wszczepienia komórek nowotworowych. W ten sposób technika ta pozwala na ponowne przeszczepianie komórek nowotworowych do nowych gospodarzy przez wiele pokoleń, ułatwiając przyszłe badania nad heterogenicznością guza, odpowiedziami gospodarz/układ odpornościowy, odpowiedziami na leki lub potencjałem przerzutowym. Ta metoda jest również prosta, wydajna i skalowalna, ponieważ jeden użytkownik może wykonać do 300 przeszczepów dziennie, przy wszczepieniu do 90%. Pozwala to na szybką namnażanie pojedynczych guzów pierwotnych do setek zarodków przy 2 dpf w celu przeprowadzenia badań genetycznych lub leków lub bezpośredniej wizualizacji zachowania komórek guza mózgu w różnych tłach gospodarza przez wiele miesięcy.
Protokół
Wszystkie procedury dotyczące zwierząt zostały zatwierdzone i przestrzegały wytycznych dotyczących opieki nad zwierzętami Komitetu ds. Opieki nad Zwierzętami Uniwersytetu Utah (IACUC#16-03019).
1. Przygotowanie sprzętu do mikroiniekcji
- Przygotowanie płytki iniekcyjnej.
- Przygotuj 50 ml roztworu 1,2% agarozy rozpuszczonej w wodzie jajecznej (0,6 g/l soli akwariowej w wodzie z odwróconej osmozy + 0,01 mg/l błękitu metylenowego). Gotuj roztwór, aż agaroza się rozpuści, a następnie uzupełnij, dodając 0,05 mg/l błękitu metylenowego. Wlej 25 ml końcowego roztworu do 10 cm szalki Petriego i pozwól jej zastygnąć. Umieścić pozostałe 25 ml roztworu agarozy w łaźni wodnej o temperaturze 42 °C, aż będzie gotowy do wykonania kroku 1.1.2.
- Umieść zlewkę o średnicy 2 cali na środku zestalonej powierzchni i wlej pozostałe 25 ml 1,2% agarozy.
UWAGA: Tworzy to powierzchnię iniekcji na obwodzie płytki i rdzeń pośrodku, który zapewnia obszar do testowania rozmiaru igły i konsystencji zawiesiny guza.- Utrzymywać płytkę iniekcyjną w temperaturze 28 °C przez co najmniej 30 minut przed wstrzyknięciem lub w temperaturze 4 °C w przypadku długotrwałego przechowywania.
- Przygotowanie igieł iniekcyjnych.
- Wykonać igły, przeciągając 10 cm kapilary o wymiarze zewnętrznym 1,2 mm i wymiarze wewnętrznym 0,9 mm (bez filamentu) w dwie igły na ściągaczu igłowym.
UWAGA: Każda igła powinna mieć 6 cm całkowitej długości, przy czym około 1,5 cm końca jest zwężane. - Ostrożnie umieścić igłę na szkiełku mikroskopowym owiniętym w plastikową folię parafinową. Za pomocą żyletki przeciąć koniec igły pod kątem 45°, aby utworzyć igłę z otworem na końcu.
UWAGA: Zazwyczaj usuwa się od 0,1 mm do 0,3 mm końca igły. Do wykonania iniekcji nie jest wymagana ścięta końcówka.
- Wykonać igły, przeciągając 10 cm kapilary o wymiarze zewnętrznym 1,2 mm i wymiarze wewnętrznym 0,9 mm (bez filamentu) w dwie igły na ściągaczu igłowym.
- Przygotować zestaw do mikroiniekcji.
- Umów się na standardowy zestaw do mikroiniekcji, w tym mikroskop stereoskopowy, manipulator i mikrowstrzykiwacz do przeszczepu.
2. Przygotowanie zarodków do przeszczepu
- Zbierz do 500 zarodków mitfa w2 44 (lub zarodki o innych genotypach danio pręgowanego zdefiniowanych przez użytkownika) zgodnie z opisem45 i utrzymuj w inkubatorze o temperaturze 28 °C.
- Dekorionację zarodków w temperaturze 24 hpf, dodając 100 μl roztworu koktajlu proteazy o stężeniu 10 mg/ml rozcieńczonego w wodzie jajecznej i delikatnie kołysać przez około 20 minut. Opłucz zarodki 3 razy świeżą wodą z jaj, aby usunąć pozostałości proteazy.
- Przesiewaj zarodki w temperaturze 48 hpf pod kątem odpowiedniego etapu rozwoju, zgodnie z kryteriami standardowej serii oceny stopnia zaawansowania45.
Uwaga: Do przeszczepienia należy używać tylko prawidłowo sklasyfikowanych i morfologicznie prawidłowych zarodków. - Znieczulij około dwudziestu zarodków o mocy 48 hpf w wodzie jajecznej zawierającej 0,002% Trikainy-S na szalce Petriego. Potwierdź prawidłowe znieczulenie, obserwując ustanie ruchu.
3. Wykonywanie zawiesiny komórek nowotworowych
UWAGA: Modele guzów mózgu danio pręgowanego mogą być generowane przez genetycznie modyfikowane kombinacje onkogenów i genów supresorowych nowotworów17,46,47. W tym przypadku użyto sterowanego promotorem sox10 modelu dresoraWT, p53zdf1/zdf1 CNS-PNET zebranego, jak niedawno opisano17.
- Poddaj eutanazji rybę z guzem mózgu, której obciążenie guzem wynosi około 20% całkowitego rozmiaru ciała, przy użyciu 0,4% przedawkowania Trikainy-S, a następnie zanurzenia w lodowatej wodzie zgodnie z protokołami zatwierdzonymi przez IACUC.
- Wypreparuj znakowany fluorescencyjnie guz za pomocą żyletki i pęsety pod mikroskopem fluorescencyjnym przy użyciu sterylnej techniki i umieść go w 5 ml 1x soli fizjologicznej buforowanej fosforanem (PBS).
UWAGA: Dokładne metody preparacji będą zdefiniowane przez użytkownika i zależą od typu guza i lokalizacji tkanki. Szczegółowe procedury sekcji różnych narządów danio pręgowanego i guzów mózgu można znaleźć w wymienionych źródłach17,48. - Ręcznie rozbić masę guza za pomocą pipety p1000, aż powstanie jednolity, mętny roztwór. Usuń duże cząstki za pomocą końcówki pipety lub za pomocą sitka do komórek 40 μm (jest to zależne od guza). Odwirować zawiesinę w temperaturze pokojowej przez 5 minut przy 290 x g i usunąć supernatant.
Uwaga: Sortowanie komórek aktywowane fluorescencją (FACS) nie jest wykonywane w celu wyizolowania komórek nowotworowych. Pozwala to na przeszczepienie niejednorodnej populacji komórek zrębowych, immunologicznych i nowotworowych. - Zawiesić osad komórek nowotworowych w 100 μl sterylnego PBS i przenieść go do probówki mikrowirówkowej o pojemności 1,5 ml. Pobrać 5 μl zawiesiny komórkowej i rozcieńczyć ją w 250 μl PBS. Policz liczbę komórek za pomocą hemocytometru. Odwirować zawiesinę przez 3 minuty przy 290 x g, usunąć supernatant i ponownie zawiesić osad w sterylnym PBS do uzyskania pożądanego stężenia komórek.
UWAGA: Zazwyczaj komórki ponownie zawieszone w 30-40 μl sterylnego PBS dają roztwór, który jest lepki i nieprzezroczysty (stężenie komórek ≥100 komórek/nL) i mają tendencję do generowania najbardziej udanych przeszczepów. Żywotność komórek nie jest oceniana. - Zawiesinę guza należy przechowywać w bloku grzewczym o temperaturze 28 °C podczas procedury przeszczepu.
4. Wstrzykiwanie zawiesiny guza do czwartej komory zarodka o zawartości 2 dpf
- Przenieść 10-20 znieczulonych zarodków (od kroku 2.4) na obrzeża płytki iniekcyjnej za pomocą pipety transferowej; zarodki powinny opadać bocznie na płytkę iniekcyjną, z wyraźnie widocznymi i dostępnymi komorami. W razie potrzeby należy użyć sondy kątowej, aby wyregulować zarodki i umieścić je z dala od zewnętrznej krawędzi płytki iniekcyjnej.
- Załadować 1-2 μl zawiesiny komórek nowotworowych do igły iniekcyjnej za pomocą końcówek pipet ładujących żel i wprowadzić igłę do manipulatora.
- Ręcznie opuść manipulator, trzymając igłę pod kątem 45°. Wyreguluj pokrętła na mikromanipulatorze w kierunkach x, y i z, aż igła znajdzie się tuż nad i około 5 mm po prawej stronie głowy zarodka. Spójrz przez okulary mikroskopu stereoskopowego i powoli ustaw mikromanipulator w kierunku x, aż igła przebije czwartą komorę zarodka. Nie pozwól, aby igła przebiła serce lub żółtko.
- Naciśnij pedał nożny przymocowany do mikrowstrzykiwacza, aby wstrzyknąć zawiesinę komórek nowotworowych.
UWAGA: Ciśnienie i czas wtrysku będą się różnić w zależności od rozmiaru otworu igły, ale dobrym punktem wyjścia jest 5 - 10 PSI i 50 - 100 ms. Objętość wstrzykniętych komórek nowotworowych można ocenić za pomocą standardowych technik kropli oleju poprzez wstrzyknięcie do oleju mineralnego, jeśli jest to pożądane49. Najlepsze rezultaty dają zazwyczaj wstrzyknięcia po 500 ml o średnicy kropli 0,1 mm.
- Naciśnij pedał nożny przymocowany do mikrowstrzykiwacza, aby wstrzyknąć zawiesinę komórek nowotworowych.
- Delikatnie spłukać wstrzyknięte zarodki z płytki iniekcyjnej na płytkę Petriego, używając świeżej wody z jaj. Utrzymuj zarodki w wodzie jajowej przez pozostałe zabiegi lub do momentu, gdy będą rosły w zbiornikach (jak opisano w kroku 4.9.1).
- Zbadaj wstrzyknięte zarodki pod stereoskopem fluorescencyjnym. Upewnij się, że ciśnienie iniekcji, kąt, rozmiar igły i lepkość zawiesiny komórek powodują, że komórki nowotworowe wypełniają 25-50% przestrzeni komory. W razie potrzeby dostosuj te parametry.
- Powtórzyć kroki 4.1-4.5 dla pozostałych zarodków. W razie potrzeby znieczulić dodatkowe zarodki (opisano w kroku 2.4).
UWAGA: Doświadczony użytkownik może wstrzyknąć do 300 zarodków w ciągu 3-4 godzin. - Umieścić zarodki z powrotem w inkubatorze w temperaturze 28 °C na noc.
- Następnego dnia oceń przeżywalność zarodka, badając cechy morfologiczne i fizjologiczne, takie jak prawidłowy rozwój serca i mózgu, zgodnie z opisem45.
- W przypadku badań przesiewowych należy znieczulić zarodki, zgodnie z opisem w kroku 2.4, po 1 dniu po przeszczepieniu (dpt).
- Za pomocą pipety transferowej dodaj 4% metylocelulozy na środek szalki Petriego i dodaj zarodki do kropli metylocelulozy. Zorientuj zarodki (strona brzuszna skierowana w stronę źródła światła) za pomocą kątowej sondy i ekranu, aby uzyskać stałą wielkość przeszczepu za pomocą mikroskopu fluorescencyjnego. Usuń wszelkie zarodki z komórkami nowotworowymi nieograniczonymi do komory lub te, które zawierają komórki nowotworowe obejmujące mniej niż 25% przestrzeni komory.
Uwaga: Konsekwentne wszczepienie definiuje się jako zarodki z pojedynczą masą guza, która obejmuje 25-50% przestrzeni komory17. Do celów przesiewowych należy użyć stereoskopu fluorescencyjnego z obiektywem 1X, aperturą numeryczną 0,15, powiększeniem w zakresie 0,7-1,6x i czasem naświetlania od 50 ms do 1 s. W przypadku wszystkich obrazów należy użyć kanału jasnego pola oprócz kanału GFP lub RFP. - W celu utrzymania guzów, umieść przeszczepione zarodki w zbiornikach, aby rosły45 przy 8 dpf (6 dpt).
- Za pomocą pipety transferowej dodaj 4% metylocelulozy na środek szalki Petriego i dodaj zarodki do kropli metylocelulozy. Zorientuj zarodki (strona brzuszna skierowana w stronę źródła światła) za pomocą kątowej sondy i ekranu, aby uzyskać stałą wielkość przeszczepu za pomocą mikroskopu fluorescencyjnego. Usuń wszelkie zarodki z komórkami nowotworowymi nieograniczonymi do komory lub te, które zawierają komórki nowotworowe obejmujące mniej niż 25% przestrzeni komory.
5. Obrazowanie przeszczepionych zarodków pod kątem zachowań komórkowych
- Znieczulić zarodki przy 3-8 dpf (1-6 dpt) i zamontować (stroną grzbietową skierowaną w stronę szkiełka nakrywkowego) w 1,2% niskotopliwej agarozie. Wykonaj obrazowanie poklatkowe zamontowanych zarodków za pomocą laserowego skaningowego mikroskopu konfokalnego przez żądany czas, aby zobrazować zachowania komórek, takie jak migracja, podział komórki lub interakcje komórka-komórka, w zależności od potrzeb38,43,53.
UWAGA: Użyj współczynnika proporcji 1,024 x 1,024, prędkości skanowania 8 μs/piksel. Zastosuj uśrednianie skanów i zdefiniuj wymiary głębokości z, aby zapewnić uchwycenie całej masy guza (1,000-1,500 μm). Dodatkowo wykonuj 4-godzinne eksperymenty poklatkowe, pozyskując obraz co 10-15 minut przy użyciu obiektywu 40x, aby monitorować zachowania inwazyjne. Czułość detektora będzie się różnić w zależności od intensywności masy guza, a moc lasera będzie zależała od mikroskopu, ale ogólnie zaleca się, aby wynosiła od 15 do 40%. - Po zakończeniu obrazowania uwolnij zamontowany zarodek z agarozy za pomocą kątowej sondy i przenieś go na szalkę Petriego ze świeżą wodą z jaj.
6. Podawanie leków do przeszczepionych embrionów i ocena obciążenia nowotworami17
- Znieczulij zarodki w temperaturze 3 dpf i ustaw je w 4% metylocelulozie, stroną brzuszną skierowaną w stronę źródła światła. Zobrazuj zarodki przed leczeniem za pomocą mikroskopu fluorescencyjnego17.
- Umieść przeszczepione zarodki w temperaturze 3 dpf na 12-dołkowej płytce, z 10 zarodkami na studzienkę w 0,5 ml wody jajecznej. Dodać odpowiednią ilość leku, aby uzyskać pożądane stężenie końcowe (np. inhibitor MEK 50 μM) i umieścić zarodki z powrotem w inkubatorze o temperaturze 28 °C. Następnego dnia usuń wodę z jaj potraktowaną lekiem za pomocą pipety transferowej o cienkim otworze i dodaj nową lekę. Powtarzaj to codziennie, aż zarodki osiągną 8 dpf.
- Po godzinie 8 dpf usuń zarodki z leczenia farmakologicznego i umieść je w świeżej wodzie jajecznej. Znieczulić zarodki i zorientować się (strona brzuszna skierowana w stronę źródła światła) w 4% metylocelulozie. Obrazowanie zarodków po leczeniu za pomocą mikroskopu fluorescencyjnego. Określ ilościowo obszar guza za pomocą odpowiedniego oprogramowania, zgodnie z opisem17.
- Oddzielnie od zarodków w zależności od leczenia i umieścić je w zbiornikach do wzrostu. Po 4-9 tygodniach znieczulij ryby i oceń je pod kątem ogólnego obciążenia guzem za pomocą standardowego stereomikroskopu fluorescencyjnego, zgodnie z opisem17.
Wyniki
Przeszczepianie i przyjmowanie guza
Schematyczny przebieg procedury przedstawiono na Rysunku 1. Komórki nowotworowe znakowane fluorescencyjnie są izolowane z pierwotnego miejsca guza, a następnie przygotowuje się zawiesinę pojedynczych komórek do transplantacji do czwartej komory zarodków zebrafish mitfa w2 w 2. dniu po zapłodnieniu (2-dpf)44. Rysunek 2 przedstawia reprezentatywne wyniki tej metody z wykorzystaniem modelu zebrafish dla pierwotnego nowotworu neuroektodermalnego ośrodkowego układu nerwowego (CNS-PNET), w którym promotor sox10 steruje ekspresją dzikiego typu NRAS lub aktywowanego NRAS połączonego z mCherry w komórkach prekursorowych oligoneuralnych z deficytem p5317. Mutanta zebrafish mitfa w244, który nie posiada melanoforów, wykorzystano w celu łatwiejszej wizualizacji komórek nowotworowych po transplantacji i/lub w dorosłości. Do zapewnienia dodatkowej przejrzystości obrazowania można by również użyć innych mutantów pigmentacyjnych, takich jak Casper50. Już 24 h po transplantacji można zauważyć komórki nowotworowe naciekające otaczającą tkankę mózgową (Rysunek 2A, 3 dpf, strzałki). Przeszczepy nowotworowe nadal rosną w komorze i otaczającej tkance mózgowej w ciągu kolejnego tygodnia (Rysunek 2A, 8 dpf). W tym czasie fluorescencję można zaobserwować również w obszarze nerek (Rysunek 2A, gwiazdki). Może to wynikać z filtrowania przez nerki szczątków komórkowych powstałych podczas transplantacji, co jest zgodne z wcześniejszymi badaniami wykorzystującymi barwniki fluorescencyjne jako test do oceny funkcji nerek51. Komórki nowotworowe nadal proliferują i naciekają, tak że do 28 dpf w całym mózgu zebrafish widoczna jest masa nowotworowa (Rysunek 2A, 28 dpf).
Technika ta umożliwia szybką transplantację komórek nowotworowych do setek embrionów z powtarzalną spójnością, ponieważ miejsce wstrzyknięcia można precyzyjnie wyznaczyć przy minimalnym uszkodzeniu gospodarza. Reprezentatywna grupa embrionów z transplantowanymi komórkami guza mózgu znakowanymi mCherry jest przedstawiona w górnym panelu Ryciny 2B. Przeszczep nowotworu przyjmuje się zazwyczaj u 80-90% embrionów, a transplantaty nowotworowe utrzymują się do wieku dorosłego; trzy reprezentatywne przykłady pokazano w dolnych panelach Ryciny 2B. Pozwala to na pobieranie transplantatów nowotworowych i ich mrożenie lub ponowną transplantację przez kilka pokoleń.
Inwazja nowotworu i odpowiedzi na leki
Rycina 3A przedstawia schemat wspólnej transplantacji, w której dwa różne guzy oznakowane odpowiednio GFP (Guz A) lub mCherry (Guz B) są pozyskiwane poprzez dysocjację całego guza (należy zauważyć, że w tym przypadku nie stosuje się FACS, choć w razie potrzeby można użyć komórek nowotworowych posortowanych metodą FACS). Guzy A i B mogą pochodzić z różnych lokalizacji, być indukowane za pomocą różnych onkogenów lub indukowane w różnych tłach genetycznych. Każdy guz jest przetwarzany do postaci zawiesiny pojedynczych komórek, a następnie komórki nowotworowe są mieszane w stosunku 1:1 i transplantowane do zarodka w 2. dniu po zapłodnieniu (2-dpf). Właściwości guzów, takie jak przyjmowanie przeszczepu, wzrost, inwazja i rozsiew Guza A w porównaniu z Guzem B, mogą być następnie obserwowane u tego samego gospodarza, co umożliwia zastosowanie kontroli wewnętrznej dla techniki i tła genetycznego.
Na Rysunku 3B przedstawiono pobrane i przetworzone na zawiesiny jednokomórkowe guzy CNS-PNET u rybek zebrafish: jeden napędzany przez NRAS i znakowany mCherry (pochodzący z wzgórza optycznego) oraz drugi znakowany GFP (pochodzący z móżdżku). Zliczone komórki w równych ilościach z każdego guza zmieszano i przeszczepiono do embrionów w 2. dniu po zapłodnieniu (2-dpf). Cztery dni po przeszczepieniu embriony obrazowano za pomocą mikroskopii konfokalnej. Przedstawiony reprezentatywny embrion pokazuje, że komórki guza z wzgórza (czerwone) migrują bardziej rozlegle do mózgu gospodarza (strzałki) niż komórki guza móżdżkowego.
Zarodki z przeszczepionymi fluorescencyjnie znakowanymi komórkami nowotworowymi mogą być wykorzystywane w schematach leczenia farmakologicznego do identyfikacji związków hamujących wzrost guza. Rysunek 3C przedstawia typowy harmonogram leczenia i obrazowania przeszczepów nowotworowych. 24 h po transplantacji sprawdzany jest rozmiar przyżycia przeszczepu w celu zapewnienia spójności, a następnie zarodki są dzielone na grupy badawcze. W przedstawionym przykładzie zarodki z przeszczepionymi, znakowanymi mCherry guzami CNS-PNET u danio prążkowanego, napędzanymi przez NRAS, są traktowane 50 µM dimetylosulfoksydem (DMSO) lub inhibitorem MEK (AZD6244). Zarodki są poddawane leczeniu przez 5 dni i obrazowane w 8 dpf, zgodnie z opisem na Rysunku 3C. Rysunek 3D (panele lewe) przedstawia reprezentatywne zwierzęta z obu grup terapeutycznych. Zarodki traktowane inhibitorem MEK wykazują znacznie niższą fluorescencję niż te traktowane DMSO, jak opisano w literaturze17. Po obrazowaniu zwierzęta są przenoszone do zbiorników bez leków i monitorowane pod kątem wzrostu guza przez dwa miesiące. W przedstawionym przykładzie leczenie inhibitorem MEK skutkuje trwałą odpowiedzią u dorosłych ryb (Rysunek 3D, panele prawe). Dalsze szczegóły dotyczące leczenia farmakologicznego, obrazowania i kwantyfikacji znajdują się w odniesieniu17.
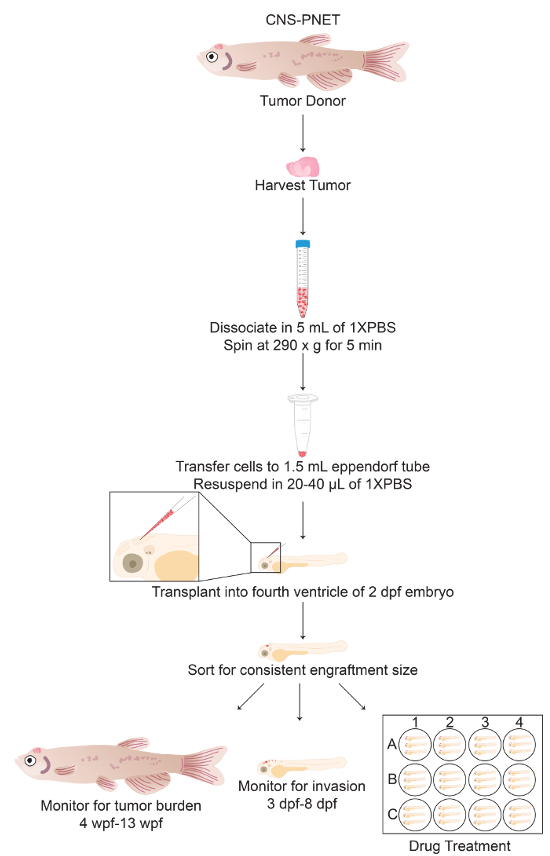
Rysunek 1: Schemat protokołu transplantacji komórek nowotworowych do czwartej komory embrionów zebrafish w 2. dniu po zapłodnieniu (2-dpf). Ogólny schemat sekcji 3–4 protokołu, obejmujący alternatywne analizy punktu końcowego (sekcje 4.9–6). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
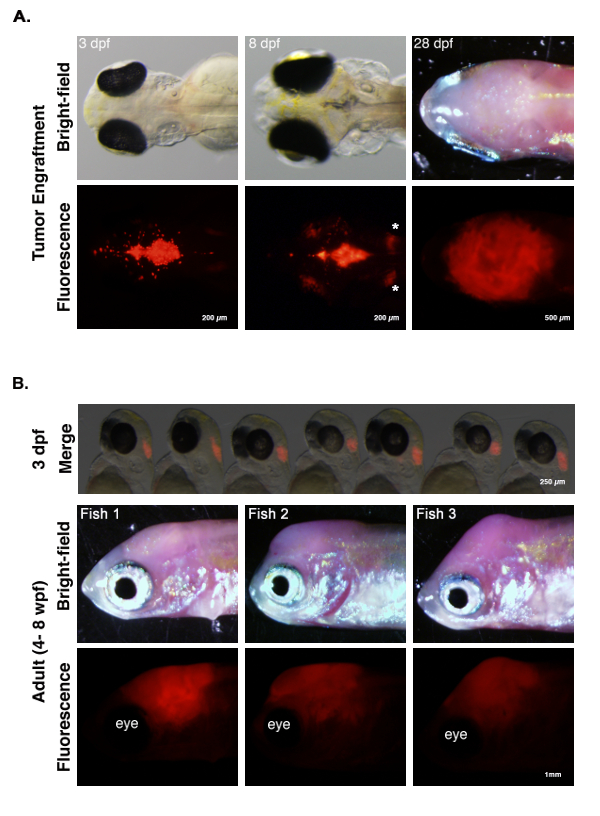
Rysunek 2: Przeszczepienie i progresja guza. (A) Komórki pierwotnego guza CNS-PNET17 ryb danio-ostrogon znakowane mCherry zostały przeszczepione do czwartej komory zarodków w 2-dpf. W 3-dpf widać komórki nowotworowe naciekające otaczającą tkankę mózgu (strzałki). W 8-dpf komórki nowotworowe rosną w komorze; czerwone komórki nowotworowe występują również w otaczającej tkance mózgu i w nerkach (gwiazdki). W 28-dpf komórki nowotworowe naciekły i rozrosły się w całym mózgu gospodarza. (B) Górny panel. Siedem zarodków w 3-dpf z przeszczepionymi komórkami guza mózgu ryb danio-ostrogon znakowanymi mCherry. Komórki nowotworowe mogą być spójnie przeszczepiane do setek zarodków, przy wysokich wskaźnikach przyjęcia przeszczepu (tj. typowo 85/100 zarodków). Środkowy i dolny panel. Trzy reprezentatywne dorosłe ryby z przeszczepionymi guzami 4-8 tygodni po zapłodnieniu (wpf). Guzy można wizualizować za pomocą mikroskopii fluorescencyjnej. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek 3: Porównanie inwazji guza i odpowiedzi na lek. (A) CNS-PNETs17 z wzgórza optycznego lub móżdżku są odpowiednio znakowane mCherry lub GFP, przetwarzane w zawiesinę jednokomórkową, mieszane w stosunku 1:1 i wspólnie transplantowane do embrionów w 2. dniu po zapłodnieniu (2-dpf). (B) Embrion w 6. dniu po zapłodnieniu (6-dpf) po wspólnej transplantacji mieszanej zawiesiny komórek guza móżdżku znakowanych GFP oraz komórek guza ze wzgórza optycznego znakowanych mCherry. Różnice we właściwościach inwazyjnych każdego guza w tym samym biorcy można zaobserwować za pomocą mikroskopii fluorescencyjnej. W tym przykładzie komórki guza znakowane mCherry migrują bardziej obszernie niż te znakowane GFP (strzałki). (C) Harmonogram podawania leku embrionom z transplantowanymi komórkami guza. (D) Obrazy reprezentatywnych zwierząt na koniec schematu leczenia (8 dpf) oraz 8 tygodni po leczeniu (8 wpf), z zastosowaniem kontroli DMSO lub 50 µM inhibitora MEK. Obciążenie nowotworowe można zmierzyć poprzez ilościowe określenie fluorescencji, zgodnie z opisem17. W tym eksperymencie wzrost komórek guza znakowanych mCherry jest zredukowany w embrionach leczonych inhibitorem MEK, co przekłada się na trwałą odpowiedź u osobnika dorosłego. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dyskusja
Protokół ten szczegółowo opisuje prosty i skuteczny test transplantacyjny, który polega na wstrzyknięciu komórek nowotworowych danio pręgowanego do komory zarodka 2-dpf, który rozwinie w pełni kompetentny układ odpornościowy. Do tej pory CNS-PNET17 danio pręgowanego i czerniak (dane nie pokazane) zostały z powodzeniem przeszczepione do długoterminowych badań nad zachowaniem i inwazją komórek nowotworowych. Kluczowe kroki tego protokołu obejmują zapewnienie odpowiedniego rozmiaru otworu igły i właściwej zawiesiny komórek nowotworowych oraz odpowiednie znieczulenie zarodków gospodarza. Dla każdego badacza dalsza optymalizacja tej techniki może obejmować dostosowanie stężenia komórek nowotworowych, ciśnienia iniekcji i orientacji zarodka. Ponadto może występować niejednorodność lepkości zawiesin pochodzących z różnych nowotworów, więc różne typy nowotworów mogą być mniej lub bardziej trudne do ponownego zawieszenia i przeszczepienia. Jednak dostosowując rozmiar otworu igły i stosując różne rozcieńczenia zawiesiny guza, możliwe jest przezwyciężenie trudności związanych z lepkością guza.
Z naszego doświadczenia wynika, że najczęstsze przyczyny rzadkich komórek/niespójnych mas komórkowych w komorze są następujące: 1) zawiesina komórek nowotworowych jest zbyt rozcieńczona; 2) rozmiar otworu igły jest za mały; 3) czas wtrysku i ciśnienie są zbyt niskie; i/lub 4) pozostała tkanka nie została odfiltrowana z guza i utknęła w igle. Kiedy zawiesina komórek nowotworowych wypływa z komory po wstrzyknięciu, jest to prawdopodobnie spowodowane: 1) przyłożeniem igły do dna komory; 2) wysokie ciśnienie i czas wtrysku; i/lub 3) zbyt duży rozmiar otworu igły. Niska przeżywalność przeszczepionych zarodków może być spowodowana: 1) znieczulaniem zarodków przez dłuższy czas; 2) pozostawienie zarodków na płytce iniekcyjnej do wyschnięcia; 3) wstrzykiwanie pęcherzyków powietrza do komory; i/lub 4) przekłucie ważnych narządów, takich jak mózg i serce, ponieważ igła przeszła przez komorę.
Poprzednie metody przeszczepiania guza w dorosłym lub embrionalnym mózgu danio pręgowanego opierają się na immunosupresji u dorosłych (genetycznie, farmakologicznie lub poprzez promieniowanie) lub ograniczają się do krótkoterminowych badań komórek ludzkich lub mysich w zarodkach 38,43,52,53,54. Na przykład guzy mózgu myszy mogą być wstrzykiwane donosowo do młodocianych danio pręgowanych deksametazonem i 30-dpf do stosowania w krótkoterminowych (~ 2 dni) przedklinicznych testach leków54. Jednak miejsce wstrzyknięcia w tych eksperymentach jest zasłonięte przez czaszkę i tkankę mózgową i prawdopodobnie powoduje uszkodzenie normalnej tkanki mózgowej, co zmniejsza żywotność gospodarza i wydajność wszczepienia. Inna niedawno opisana metoda polega na wstrzyknięciu ludzkich linii komórkowych glejaka do obszaru śródmózgowia zarodków danio pręgowanego, co umożliwiło krótkoterminową analizę wzrostu, inwazji i odpowiedzi na lek43. Ponownie, dokładna lokalizacja miejsca wstrzyknięcia jest zmienna i prawdopodobnie uszkadza normalną tkankę. W związku z tym wcześniejsze metody transplantacji mózgu embrionalnego często zagrażały żywotności gospodarzy, ograniczając te badania do analizy krótkoterminowej (tj. od 2 do 14 dni), powodując zwiększoną zmienność między poszczególnymi wstrzyknięciami z powodu zasłoniętych miejsc wstrzyknięć i uniemożliwiając długoterminową analizę zachowań komórek i odpowiedzi na leki lub ponownego przeszczepu przez wiele pokoleń.
Opisana tutaj metoda rozwiązuje obecne ograniczenia w technikach przeszczepiania embrionów danio pręgowanego i osób z obniżoną odpornością, umożliwiając naukowcom: 1) powtarzalne wstrzykiwanie w to samo miejsce, przy minimalnym uszkodzeniu otaczającej tkanki; 2) bezpośrednio wizualizować miejsce wstrzyknięcia, aby zmaksymalizować wydajność wszczepienia; 3) przeszczepiać setki zarodków dziennie; 4) umożliwić wzrost guzów u zwierząt kompetentnych immunologicznie; 5) umożliwiają monitorowanie zachowania komórek nowotworowych i trwałych odpowiedzi na leki przez całe życie danio pręgowanego; oraz 6) umożliwić ponowne przeszczepianie nowotworów przez wiele pokoleń w celu przeprowadzenia potencjalnych badań nad ewolucją guza lub mechanizmami nawrotu choroby. Co więcej, protokół ten umożliwia naukowcom wykorzystanie dowolnego genotypu danio pręgowanego do oceny odpowiedzi gospodarza, w tym różnych populacji immunologicznych. Te cechy sprawiają, że metoda ta może być łatwo zaadaptowana przez każde laboratorium, które już wykonuje standardowe mikroiniekcje u danio pręgowanego. Wreszcie, chociaż metoda ta jest idealna do ortotopowych iniekcji guzów mózgu danio pręgowanego, podczas przeszczepiania innych typów nowotworów, takich jak wątroba lub trzustka, miejsce ortotopowe może być ważniejsze niż kompetencja immunologiczna (np. Jeśli badacz bada wpływ mikrośrodowiska zrębu na wzrost guza). W tym scenariuszu nowo opracowane modele danio pręgowanego z niedoborem odporności mogą być bardziej odpowiednie do wykonywania ortotopowych przeszczepów guzów11.
Protokół ten został wykorzystany do wykonywania testów konkurencji komórek nowotworowych oraz do wstrzykiwania podwójnie znakowanych guzów. Omówiono również potencjalną strategię leczenia w celu oceny skuteczności związków chemicznych w procesie nowotworzenia, która polega na leczeniu zarodków po przeszczepieniu poprzez dodanie leku do wody. Wcześniej opisano również metodę leczenia ex vivo komórek nowotworowych przed przeszczepem17. Dodatkowo, przeszczepione guzy zostały połączone w wiele rund ponownego przeszczepu, co będzie korzystne dla badań nad ewolucją guza i opornością na chemioterapię17. Obecnie badania przedkliniczne są zależne od ksenoprzeszczepów myszy w celu oceny skuteczności potencjalnych związków. Badania te są jednak czasochłonne i kosztowne. Biorąc pod uwagę wysoki stopień zachowania onkogennych szlaków sygnałowych między danio pręgowanym a ludźmi28, należy się spodziewać, że metoda ta uzupełni konwencjonalne badania na komórkach mysich i ludzkich, aby umożliwić szybszą identyfikację skutecznych związków wchodzących w badania przedkliniczne i kliniczne. Ostatecznie metoda ta może okazać się przydatna do szybkich chemicznych badań przesiewowych pierwotnych guzów pacjentów, co może jeszcze bardziej przyspieszyć inicjatywę medycyny spersonalizowanej. Jednak warunki dla długoterminowego wzrostu komórek ludzkich u danio pręgowanego (dorosłego lub zarodka) nadal muszą zostać określone.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Dziękujemy dwóm recenzentom za doskonałe sugestie i ulepszenia manuskryptu. Dziękujemy również Huntsman Cancer Institute/University of Utah za hodowlę i utrzymanie zwierząt. Ta praca została sfinansowana przez American Cancer Society (#124250- RSG-13-025-01-CSM), grant NIH (program P30 CA042014 CRR), University of Utah Seed Grant i Huntsman Cancer Foundation.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Woda jajeczna | w kurniku | , utrzymanie zarodków, wykonanie płytki iniekcyjnej | |
| Błękit metylenowy | Sigma-Aldrich | M9140 | dodać do wody z jaj, aby zapobiec rozwojowi grzybów |
| szalka Petriego | Thermo Fisher | FB0875711Z | Przechowywanie zarodków, wytwarzanie płytki iniekcyjnej |
| Zlewka 50 ml (średnica 2 cali) | Dowolna marka | produkująca płytkę wtryskową | |
| Agarose | Denville | CA3510-8 | wytwarzanie płytki wtryskowej |
| Szklany pojemnik | Dowolna marka | produkująca płytkę wtryskową | |
| Pęseta | Fine Science Tools | 11295-10 | rozwarstwienie guza |
| Żyletka | Thermo Fisher | 12640 | przygotowanie igły, rozwarstwienie guza |
| Szkiełko owinięte w parafilm | Przygotowanie igieł | dowolnej marki | |
| Sól fizjologiczna buforowana fosforanem 1x, pH 7,4 | Life Technologies | 10010023 | zawiesina guza |
| Sitko komórkowe, 40 i mikro; m | Corning Falcon | 352340 | zawiesina guza |
| 1,000 &mikro; Końcówki filtra L | dowolna marka | do ponownego zawieszania guzów | |
| 100 i mikro; L końcówki filtra | dowolna marka | reprodukcja guza | |
| 50 ml probówki stożkowe | Genesee Scientific | 21-108 | zawiesina guza |
| 15 ml rurki stożkowe | Genesee Scientific | 21-103 | Zawieszenie guza |
| Mikroprobówki 1,7 ml | Genesee Scientific | 24-281 | Zawiesina guza |
| Mikropipety | Zawieszenie i przeszczep guza | dowolnej marki | |
| Kapilara szklana (bez filamentu) | World Precision Instruments | Przeszczep guza TW120-4 | |
| Ściągacz igieł | Sutter Instruments | P-97 | przeszczep guza Końcówki |
| do mikroładowarek | Eppendorf | 930001007 | przeszczep guza |
| Mikroiniektor | Aparat Harvarda | Przeszczep guza | PLI-90 |
| Trikaina-S (MS-222) | Western Chemical | TRS1 | , znieczulenie |
| Sonda kątowa | Fine Science Tools | 10140-02 | manipulacja zarodkami |
| Pipeta transferowa | zarodkami | dowolnej marki | |
| Wirówka | Eppendorf | 5810R | wymagana podczas ponownego zawieszenia guza |
| Mikrowirówka | Eppendorf | 5424 | wymagana podczas ponownego zawieszenia guza |
| Mikroskop stereoskopowy | Olympus | Przeszczep guza | SZ61 |
| Fluorescencyjny mikroskop stereoskopowy | Olympus | SZX16 | obrazowanie przeszczepów guzów Kamera |
| mikroskopowa | Olympus | DP-72 | obrazowanie przeszczepów guza |
| Metyloceluloza | Sigma-Aldrich | M7140 | obrazowanie przeszczepów guzów |
| Inkubator | Dowolna marka | utrzymująca zarodki, rozgrzewająca płytka iniekcyjna | |
| Kuchenka mikrofalowa | Dowolna marka | produkująca płytkę iniekcyjną | |
| Skala | Dowolna marka | produkująca płytkę iniekcyjną | |
| Rękawice | Dowolna marka | wszystkie aspekty protokołu | |
| Agaroza o niskiej temperaturze topnienia | Dowolna marka | Obrazowanie konfokalne zarodków | |
| Naczynie ze szklanym dnem | Mattek Corporation | P35G-1.0-20-C | Konfokalne obrazowanie zarodków |
| Laserowy skaningowy mikroskop konfokalny | Olympus | FLUOVIEW FV1200 | obrazowanie konfokalne zarodków |
| Pronase | Roche Diagnostics | 11459643001 | zarodki |
| PBS | Dowolna marka | Zawiesina guza / komórek nowotworowych | |
| Płytka 12-dołkowa | Dowolna marka | Leczenie zarodków farmakami | |
| Pipeta transferowa o cienkim otworze | Dowolna marka | Leczenie zarodków farmakami | |
| Hemocytometr | Dowolna marka | Do liczenia komórek nowotworowych w zawiesinie | |
| N2 | Dowolna marka handlowa | Do konfiguracji mikrowtryskiwacza |
Bibliografia
- Shaw, T. J., Senterman, M. K., Dawson, K., Crane, C. A., Vanderhyden, B. C. Characterization of intraperitoneal, orthotopic, and metastatic xenograft models of human ovarian cancer. Mol Ther. 10 (6), 1032-1042 (2004).
- Stephen, R. M., et al. Monitoring the development of xenograft triple-negative breast cancer models using diffusion-weighted magnetic resonance imaging. Exp Biol Med. 237 (11), 1273-1280 (2012).
- Deroose, C. M., et al. Multimodality imaging of tumor xenografts and metastases in mice with combined small-animal PET, small-animal CT, and bioluminescence imaging. J Nucl Med. 48 (2), 295-303 (2007).
- Saxena, M., Christofori, G. Rebuilding cancer metastasis in the mouse. Mol Oncol. 7 (2), 283-296 (2013).
- Johnson, J. I., et al. Relationships between drug activity in NCI preclinical in vitro and in vivo models and early clinical trials. Br J Cancer. 84 (10), 1424-1431 (2001).
- Kerbel, R. S. Human tumor xenografts as predictive preclinical models for anticancer drug activity in humans - Better than commonly perceived - But they can be improved. Cancer Biology & Therapy. 2 (4), S134-S139 (2003).
- Scholz, C. C., Berger, D. P., Winterhalter, B. R., Henss, H., Fiebig, H. H. Correlation of Drug Response in Patients and in the Clonogenic-Assay with Solid Human Tumor Xenografts. Eur J Cancer. 26 (8), 901-905 (1990).
- Siolas, D., Hannon, G. J. Patient-derived tumor xenografts: transforming clinical samples into mouse models. Cancer Res. 73 (17), 5315-5319 (2013).
- Cho, S. Y., et al. An Integrative Approach to Precision Cancer Medicine Using Patient-Derived Xenografts. Mol Cells. 39 (2), 77-86 (2016).
- Hiroshima, Y., et al. Patient-derived mouse models of cancer need to be orthotopic in order to evaluate targeted anti-metastatic therapy. Oncotarget. 7 (44), 71696-71702 (2016).
- Moore, J. C., Langenau, D. M. Allograft Cancer Cell Transplantation in Zebrafish. Adv Exp Med Biol. 916, 265-287 (2016).
- Hanahan, D., Weinberg, R. A. Hallmarks of cancer: the next generation. Cell. 144 (5), 646-674 (2011).
- Dranoff, G. Experimental mouse tumour models: what can be learnt about human cancer immunology. Nat Rev Immunol. 12 (1), 61-66 (2011).
- Richmond, A., Su, Y. Mouse xenograft models vs GEM models for human cancer therapeutics. Dis Model Mech. 1 (2-3), 78-82 (2008).
- Bernard, D., Peakman, M., Hayday, A. C. Establishing humanized mice using stem cells: maximizing the potential. Clin Exp Immunol. 152 (3), 406-414 (2008).
- White, R., Rose, K., Zon, L. Zebrafish cancer: the state of the art and the path forward. Nat Rev Cancer. 13 (9), 624-636 (2013).
- Modzelewska, K., et al. MEK Inhibitors Reverse Growth of Embryonal Brain Tumors Derived from Oligoneural Precursor Cells. Cell Rep. 17 (5), 1255-1264 (2016).
- Patton, E. E., et al. BRAF mutations are sufficient to promote nevi formation and cooperate with p53 in the genesis of melanoma. Curr Biol. 15 (3), 249-254 (2005).
- Dovey, M., White, R. M., Zon, L. I. Oncogenic NRAS cooperates with p53 loss to generate melanoma in zebrafish. Zebrafish. 6 (4), 397-404 (2009).
- Santoriello, C., et al. Kita driven expression of oncogenic HRAS leads to early onset and highly penetrant melanoma in zebrafish. PLoS One. 5 (12), e15170(2010).
- Park, S. W., et al. Oncogenic KRAS induces progenitor cell expansion and malignant transformation in zebrafish exocrine pancreas. Gastroenterology. 134 (7), 2080-2090 (2008).
- Liu, S., Leach, S. D. Screening pancreatic oncogenes in zebrafish using the Gal4/UAS system. Methods Cell Biol. 105, 367-381 (2011).
- Langenau, D. M., et al. Myc-induced T cell leukemia in transgenic zebrafish. Science. 299 (5608), 887-890 (2003).
- Langenau, D. M., et al. Cre/lox-regulated transgenic zebrafish model with conditional myc-induced T cell acute lymphoblastic leukemia. Proc Natl Acad Sci U S A. 102 (17), 6068-6073 (2005).
- Sabaawy, H. E., et al. TEL-AML1 transgenic zebrafish model of precursor B cell acute lymphoblastic leukemia. Proc Natl Acad Sci U S A. 103 (41), 15166-15171 (2006).
- Chen, J., et al. NOTCH1-induced T-cell leukemia in transgenic zebrafish. Leukemia. 21 (3), 462-471 (2007).
- Feng, H., et al. Heat-shock induction of T-cell lymphoma/leukaemia in conditional Cre/lox-regulated transgenic zebrafish. Br J Haematol. 138 (2), 169-175 (2007).
- Howe, K., et al. The zebrafish reference genome sequence and its relationship to the human genome. Nature. 496 (7446), 498-503 (2013).
- Li, P., White, R. M., Zon, L. I. Transplantation in zebrafish. Methods Cell Biol. 105, 403-417 (2011).
- Traver, D., et al. Effects of lethal irradiation in zebrafish and rescue by hematopoietic cell transplantation. Blood. 104 (5), 1298-1305 (2004).
- Stoletov, K., Montel, V., Lester, R. D., Gonias, S. L., Klemke, R. High-resolution imaging of the dynamic tumor cell vascular interface in transparent zebrafish. Proc Natl Acad Sci U S A. 104 (44), 17406-17411 (2007).
- Streisinger, G., Walker, C., Dower, N., Knauber, D., Singer, F. Production of clones of homozygous diploid zebra fish (Brachydanio rerio). Nature. 291 (5813), 293-296 (1981).
- Mizgirev, I., Revskoy, S. Generation of clonal zebrafish lines and transplantable hepatic tumors. Nat Protoc. 5 (3), 383-394 (2010).
- Mizgireuv, I. V., Revskoy, S. Y. Transplantable tumor lines generated in clonal zebrafish. Cancer Res. 66 (6), 3120-3125 (2006).
- Tenente, I. M., Tang, Q., Moore, J. C., Langenau, D. M. Normal and malignant muscle cell transplantation into immune compromised adult zebrafish. J Vis Exp. (94), (2014).
- Tang, Q., et al. Optimized cell transplantation using adult rag2 mutant zebrafish. Nat Methods. 11 (8), 821-824 (2014).
- Geiger, G. A., Fu, W., Kao, G. D. Temozolomide-mediated radiosensitization of human glioma cells in a zebrafish embryonic system. Cancer Res. 68 (9), 3396-3404 (2008).
- Kitambi, S. S., et al. Vulnerability of glioblastoma cells to catastrophic vacuolization and death induced by a small molecule. Cell. 157 (2), 313-328 (2014).
- Lally, B. E., et al. Identification and biological evaluation of a novel and potent small molecule radiation sensitizer via an unbiased screen of a chemical library. Cancer Res. 67 (18), 8791-8799 (2007).
- Vittori, M., Motaln, H., Turnsek, T. L. The study of glioma by xenotransplantation in zebrafish early life stages. J Histochem Cytochem. 63 (10), 749-761 (2015).
- Yang, X. J., et al. A novel zebrafish xenotransplantation model for study of glioma stem cell invasion. PLoS One. 8 (4), e61801(2013).
- Zhao, H., Tang, C., Cui, K., Ang, B. T., Wong, S. T. A screening platform for glioma growth and invasion using bioluminescence imaging. Laboratory investigation. J Neurosurg. 111 (2), 238-246 (2009).
- Welker, A. M., et al. Correction: Standardized orthotopic xenografts in zebrafish reveal glioma cell-line-specific characteristics and tumor cell heterogeneity. Dis Model Mech. 9 (9), 1063-1065 (2016).
- Lister, J. A., Robertson, C. P., Lepage, T., Johnson, S. L., Raible, D. W. nacre encodes a zebrafish microphthalmia-related protein that regulates neural-crest-derived pigment cell fate. Development. 126 (17), 3757-3767 (1999).
- Westerfield, M. The Zebrafish Book. A Guide for the Laboratory Use of Zebrafish (Danio rerio). , University of Oregon Press. (2000).
- Solin, S. L., Shive, H. R., Woolard, K. D., Essner, J. J., McGrail, M. Rapid tumor induction in zebrafish by TALEN-mediated somatic inactivation of the retinoblastoma1 tumor suppressor rb1. Sci Rep. 5, 13745(2015).
- Ju, B., et al. Oncogenic KRAS promotes malignant brain tumors in zebrafish. Mol Cancer. 14, (2015).
- Gupta, T., Mullins, M. C. Dissection of organs from the adult zebrafish. J Vis Exp. (37), (2010).
- Rosen, J. N., Sweeney, M. F., Mably, J. D. Microinjection of zebrafish embryos to analyze gene function. J Vis Exp. (25), (2009).
- White, R. M., et al. Transparent adult zebrafish as a tool for in vivo transplantation analysis. Cell Stem Cell. 2 (2), 183-189 (2008).
- Christou-Savina, S., Beales, P. L., Osborn, D. P. Evaluation of zebrafish kidney function using a fluorescent clearance assay. J Vis Exp. (96), e52540(2015).
- Rampazzo, E., et al. Wnt activation promotes neuronal differentiation of glioblastoma. Cell Death Dis. 4, (2013).
- Lal, S., La Du,, Tanguay, J., L, R., Greenwood, J. A. Calpain 2 is required for the invasion of glioblastoma cells in the zebrafish brain microenvironment. J Neurosci Res. 90 (4), 769-781 (2012).
- Eden, C. J., et al. Orthotopic models of pediatric brain tumors in zebrafish. Oncogene. 34 (13), 1736-1742 (2015).
Przedruki i uprawnienia
