W tej metodzie, ludzkie pierwotne komórki mięśniowe są hodowane in vitro w celu uzyskania zróżnicowanych miotub, a wskaźniki wychwytu glukozy są mierzone. Zapewniamy szczegółowy protokół do ilościowego określania wskaźników w stanach podstawowych i stymulowanych insuliną przy użyciu znakowanej radioaktywnie [3H] 2-deoksy-D-glukozy.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Pomiar wychwytu glukozy i odpowiedź na stymulację insuliną w ludzkich pierwotnych miotubach in vitro
W tym artykule
Podsumowanie
Streszczenie
Mięśnie szkieletowe są największym depozytem glukozy u ssaków i w dużej mierze przyczyniają się do homeostazy glukozy. Ocena wrażliwości komórek mięśniowych na insulinę ma zasadnicze znaczenie dla wszystkich badań poświęconych badaniu metabolizmu glukozy w mięśniach i charakterystyce zmian metabolicznych. W komórkach mięśniowych białka transportera glukozy typu 4 (GLUT4) przemieszczają się do błony komórkowej w odpowiedzi na insulinę, umożliwiając w ten sposób masowe wnikanie glukozy do komórki. Zdolność komórek mięśniowych do reagowania na insulinę poprzez zwiększanie tempa wychwytu glukozy jest jednym ze standardowych odczytów określających ilościowo wrażliwość komórek mięśniowych na insulinę. Ludzkie pierwotne rurki mięśniowe są odpowiednim modelem in vitro, ponieważ komórki zachowują wiele cech fenotypu dawcy, w tym wrażliwość na insulinę. Ten model in vitro nadaje się również do testowania wszelkich związków, które mogą wpływać na reakcję na insulinę. Pomiary szybkości wychwytu glukozy w zróżnicowanych miotubkach odzwierciedlają wrażliwość na insulinę.
W tej metodzie, ludzkie pierwotne komórki mięśniowe są hodowane in vitro w celu uzyskania zróżnicowanych miotub, a wskaźniki wychwytu glukozy z i bez stymulacji insuliną są mierzone. Zapewniamy szczegółowy protokół do ilościowego określania pasywnych i aktywnych szybkości transportu glukozy przy użyciu znakowanej radioaktywnie [3H] 2-deoksy-D-glukozy ([3H]2dG). Dostępne są metody obliczeniowe służące do ilościowego określenia aktywnych dawek podstawowych i stymulowanych insuliną, a także fałdowania stymulacji.
Wprowadzenie
Mięśnie szkieletowe są największym depozytem glukozy u ssaków i w dużej mierze przyczyniają się do homeostazy glukozy. Ta tkanka reagująca na insulinę jest głównym miejscem wychwytu glukozy, który jest wyzwalany przez stymulację insuliną1.
W cukrzycy typu 2 insulinooporność występuje w kilku tkankach, w tym w mięśniach szkieletowych, i prowadzi do ponadnormatywnego stężenia glukozy we krwi. W związku z tym bardzo ważne jest określenie poziomu wrażliwości tej tkanki i jej komórek na insulinę, niezależnie od tego, czy celem jest scharakteryzowanie defektu u pacjenta, czy też ocena skuteczności leczenia mającego na celu jego poprawę. U ludzi lub zwierząt złotym standardem techniki oceny wrażliwości na insulinę jest klamra hiperinsulinemiczno-euglikemiczna. Wprowadzona przez DeFronzo w 1979 roku2 i zmodyfikowana od3,4 następnie metoda pozwala na ilościowe określenie reakcji całego ciała i tkanek na insulinę mierzoną jako szybkość perfuzji glukozy pod wpływem stymulacji insuliną w celu utrzymania prawidłowego stężenia glukozy we krwi.
Badanie wrażliwości na insulinę może być również przeprowadzone na poziomie komórki za pomocą modeli mięśniowych in vitro, a pomiar wskaźników wychwytu glukozy pozostaje wydajnym i niezawodnym narzędziem do ilościowego określenia biologicznej odpowiedzi komórki na stymulację insuliną5,6,7. Rzeczywiście, pomiar wychwytu glukozy określa ilościowo odpowiedź biologiczną komórki na stymulację insuliną, od wiązania insuliny z jej receptorem do translokacji pęcherzyków wzbogaconych w GLUT4, a także obejmuje kaskady sygnalizacji wewnątrzkomórkowej i fosforylacji8.
To jest bardzo interesujące w przypadku próbek ludzkich, ponieważ zróżnicowane myotubes zachowują wiele cech fenotypu dawcy, w tym właściwości metaboliczne i zaburzenia obserwowane u pacjenta9,10,11,12. Myotubes wykazuje strukturalne, metaboliczne i fenotypowe podobieństwa do mięśni szkieletowych13,14, w tym ekspresję transporterów glukozy15 i maszynerię sygnalizacji insuliny komórkowej16. W związku z tym pomiar wychwytu glukozy w pierwotnych miotubach ma znaczenie dla scharakteryzowania fenotypu mięśniowego dawcy lub zbadania wpływu interwencji (leku, odżywiania lub aktywności fizycznej) na wrażliwość na insulinę w komórce mięśniowej.
Pomiar wychwytu glukozy na hodowanych myotubach jest również niezawodnym narzędziem podczas przeprowadzania eksperymentów modyfikujących wrażliwość na insulinę17,18. Model in vitro nadaje się do testowania wszelkich związków, które mogą poprawić reakcję na insulinę lub mogą zapobiec lub odwrócić nabytą lub indukowaną insulinooporność19,20,21,22,23.
Tutaj opisujemy szczegółowy protokół hodowli i różnicowania ludzkich miotubek oraz pomiaru wskaźników pobierania glukozy przez komórki. Metoda ma zastosowanie do każdego źródła komórek prekursorowych mięśni ludzkich, niezależnie od tego, czy pochodzą one z preparatów laboratoryjnych, współpracy, czy od dostawców dostępnych na rynku. Unieśmiertelnione linie komórek mięśniowych, takie jak C2C12 i L6, odpowiednio pochodzące od myszy i szczurów, mogą być również używane do pomiaru wychwytu glukozy za pomocą tego protokołu7.
Udostępniamy szczegółowy protokół do ilościowego określania wskaźników w stanach podstawowych i stymulowanych insuliną za pomocą radioznakowanego [3H]2dG. Zastosowanie znakowanego analogu glukozy pozwala na dokładne określenie wejścia glukozy ze zredukowanym materiałem wyjściowym, co jest częstym warunkiem podczas pracy z komórkami pierwotnymi. Zmodyfikowana cząsteczka glukozy nie jest w stanie wejść do szlaków metabolicznych, a zatem gromadzi się w komórce, umożliwiając wiarygodną ocenę ilościową za pomocą całkowitej radioaktywności komórki. Warunki eksperymentalne obejmują zastosowanie inhibitora transportu glukozy (cytochalazyny B), a pomiary są wykonywane z insuliną i bez insuliny. Ta kombinacja pozwala na określenie współczynników wprowadzania glukozy do stanu poprzedniego, a także na obliczenie zmiany krotności wskaźnika odpowiedzi insulinowej. Metoda jest przedstawiona z jedną dawką insuliny podczas pojedynczego czasu inkubacji, ale protokół można łatwo zmodyfikować pod kątem reakcji na dawkę lub eksperymentów w czasie trwania choroby12.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Przygotowanie pożywek i roztworów do hodowli komórkowych
- Przygotowanie pożywek hodowlanych
- Przygotować pożywkę do proliferacji (PM), uzupełniając pożywkę Ham's F-10 glutaminą (2 mM), penicyliną/streptomycyną (stężenie końcowe 5 µg/mL), 2% płodową surowicą cielęcą (FCS) oraz 2% substytutem surowicy.
- Przygotować pożywkę do różnicowania (DM), uzupełniając modyfikowaną pożywkę Eagle'a Dulbecco (DMEM) glutaminą (2 mM), penicyliną/streptomycyną (stężenie końcowe 5 µg/mL) oraz 2% FCS.
- Przygotowanie roztworów do pomiaru poboru glukozy
Uwaga: Praca z materiałami radioaktywnymi jest dozwolona wyłącznie w strefach zastrzeżonych i kontrolowanych przez upoważniony personel. Materiały i odpady muszą być traktowane zgodnie z odpowiednimi procedurami, wytycznymi i lokalnym prawodawstwem.- Aby przygotować X-fosforanowo-buforowany roztwór soli Dulbecco (X-DPBS), należy sporządzić roztwór DPBS zawierający 0,2% (w/v) (stężenie końcowe) albuminy surowicy bydlęcej (BSA). Przefiltrować roztwór przez filtr 0,2 µm. Przechowywać w temperaturze 4 °C.
- Aby przygotować schłodzony roztwór 2-deoksy-D-glukozy (2dG), odważyć 16,4 mg 2dG i rozpuścić w 10 mL wody destylowanej w celu uzyskania roztworu 10 mM. Przechowywać w temperaturze 4 °C.
- Do 5400 µL X-DPBS dodać 600 µL schłodzonej 2dG oraz 6 µL znakowanej radioaktywnie [3H] 2dG, aby otrzymać roztwór znakowanej 2dG (2dG*).
UWAGA: Stężenie końcowe wynosi 1 mM 2dG, a aktywność znakowania to 1 µCi/mL.- Odłożyć alikwot 20 µL (TC20) roztworu znakowanej 2dG*.
- Przygotowanie mieszanin inkubacyjnych
- W przypadku mieszaniny z cytochalasyną B, dodać 2 µL 20 mM cytochalasyny B do 2 mL roztworu znakowanej 2dG*.
UWAGA: Roztwór stokowy cytochalasyny B ma stężenie 10 mg/mL w dimetylosulfotlenku (DMSO). - W przypadku mieszaniny z DMSO, dodać 4 µL DMSO do pozostałych 4 mL roztworu znakowanej 2dG*.
- W przypadku mieszaniny z cytochalasyną B, dodać 2 µL 20 mM cytochalasyny B do 2 mL roztworu znakowanej 2dG*.
2. Hodowla pierwotnych ludzkich komórek mięśniowych
- Wysiew ludzkich komórek satelitarnych mięśni na płytki 6-dołkowe
UWAGA: Stosować wewnętrzne (patrz odniesienie 24 (po szczegóły) lub komercyjnie dostępne ludzkie komórki satelitarne mięśni z zamrożonej fiolki (zawierającej 250 000 komórek). Poniższa procedura została opracowana dla 250 000 komórek w celu przygotowania jednej płytki 6-dołkowej, niezbędnej do pomiaru poboru glukozy w jednym wariancie badawczym.- Szybko rozmrozić zamrożone probówki z preparatami własnymi24 lub komercyjne preparaty ludzkich komórek satelitarnych mięśni w uprzednio ogrzanej wodzie (37 °C), aż w fiolce pozostanie jedynie niewielka grudka lodu.
- Przelej bezpośrednio do plastikowej probówki o pojemności 50 mL zawierającej 10 mL uprzednio ogrzanej (37 °C) PM.
- Wiruj przez 5 min przy 500 x g, a następnie odlej nadsącz.
- Delikatnie resuspenduj osad komórkowy w 18 ml podgrzanego PM (aby uzyskać 42 000 komórek na 3 ml medium). Rozdystrybuj po 3 ml do każdego dołka płytki 6-dołkowej (9,6 cm2).
UWAGA: Do przeprowadzenia pomiaru poboru glukozy w dublecie dla następujących warunków wymaganych jest sześć pojedynczych dołków płytki: hamowanie transportu biernego (dołki 1 i 2), szybkość podstawowa (dołki 3 i 4) oraz szybkość stymulowana insuliną (dołki 5 i 6). Powtórz procedurę z taką liczbą płytek 6-dołkowych, ile jest wymaganych odrębnych wariantów traktowania. - Inkubować w standardowych warunkach hodowlanych (37 °C, 5% CO22), aż komórki osiągną 90% konfluencji.
UWAGA: Ten etap trwa od 48 do 72 h, w zależności od partii komórek. W tym kroku nie należy wymieniać pożywki.
- Różnicowanie komórek mięśniowych
- Usunąć PM (po 48–72 h) i zastąpić go uprzednio ogrzanym DM (3 ml na dołek). Inkubować w 37 °C, 5% CO22.
UWAGA: Różnicowanie trwa pięć dni do momentu osiągnięcia stanu stabilnego, w którym komórki są ustawione równolegle i wykazują wielojądrowość. Zazwyczaj pierwotne miotuby hoduje się w pożywce zawierającej 1 g/L glukozy. Aby zatem uniknąć wyczerpania zapasów glukozy podczas hodowli, należy napełnić płytkę 3 ml pożywki, aby zapewnić komórkom stałą dostępność odpowiedniej ilości substratu glukozowego. - Wymieniać pożywkę DM co dwa dni.
UWAGA: Od tego momentu miotuby pozostają stabilne do 7 dni bez istotnych zmian, a pomiar wychwytu glukozy można przeprowadzić w dowolnym czasie.
- Usunąć PM (po 48–72 h) i zastąpić go uprzednio ogrzanym DM (3 ml na dołek). Inkubować w 37 °C, 5% CO22.
- Opcjonalna inkubacja komórek mięśniowych z odczynnikiem
UWAGA: Pierwotne miotuby mogą być poddawane traktowaniu przez kilka dni w celu wywołania modyfikacji (testy leków, inhibitory/aktywatory szlaków sygnalizacyjnych, itp.) przed stymulacją insuliną i pomiarami wychwytu glukozy. Komórki mięśniowe można poddać dowolnej obróbce, która może mieć wpływ na wrażliwość na insulinę, a pomiar wychwytu glukozy pozwoli na ilościowe określenie tego wpływu. Na przykład inkubacja komórek mięśniowych z nasyconym kwasem tłuszczowym – palmitynianem – sprzyja insulinooporności, w wyniku czego komórki wykazują zmniejszony stymulowany insuliną wychwyt glukozy.- Przygotować 12 ml DM uzupełnionego o 10% BSA (wolnego od kwasów tłuszczowych) i 0,5 ml palmitanu (PALM). Przygotować 12 ml DM uzupełnionego wyłącznie o 10% BSA (wolnego od kwasów tłuszczowych).
- Przygotować dwie płytki 6-dołkowe z ludzkimi pierwotnymi miotubami i hodować je zgodnie z opisem w sekcjach 2.1 i 2.2 (z 5-dniowym okresem różnicowania).
- W dniu 5. należy przemyć każdą dołkę 2 ml PBS. Do jednej płytki dodać 2 ml DM zawierającego PALM. Do drugiej płytki dodać 2 ml DM zawierającego wyłącznie BSA.
- Inkubować przez 48 h w temperaturze 37 °C, 5% CO22.
3. Stymulacja insuliną
- Zmyj zróżnicowane komórki mięśniowe dwukrotnie 2 mL PBS.
- Ostrożnie usuń PBS i inkubuj z 3 mL DM bez FCS przez 3 h (37 °C, 5% CO2) w celu usunięcia surowicy.
- Wymień medium we wszystkich studzienkach na 3 mL DM bez FCS. Do studzienek 5 i 6 dodaj 100 nM insuliny.
- Inkubuj kulturę ludzkich miotub przez 1 h (37 °C, 5% CO2).
4. Pobór glukozy
- Po 1 h stymulacji insuliną przepłukać dołki dwukrotnie X-DPBS (1 mL na każde płukanie).
- Dodać 1 mL mieszaniny cytochalasyny B do dołków 1 i 2 oraz 1 mL mieszaniny DMSO do dołków 3–6. Inkubować przez 15 min (37 °C, 5% CO2). Po zakończeniu inkubacji natychmiast umieścić płytkę na lodzie.
5. Liza komórek
- Przemyć komórki dwukrotnie 1 mL lodowatego PBS.
- Zlizować komórki w każdej studni za pomocą 600 µL 50 mM NaOH. Inkubować na lodzie przez 5 min i delikatnie mieszać w powolnym ruchu orbitalnym.
UWAGA: Jeśli lizat jest zbyt lepki, rozcieńczyć go do 1,5 mL NaOH. - Za pomocą pipety resuspenderować i zebrać lizat komórkowy.
6. Oznaczanie glukozy znakowanej promieniotwórczo
- Przenieś 400 µL każdego lizatu komórkowego do fiolki do pomiaru scyntylacyjnego. Przygotuj fiolkę kontrolną negatywną zawierającą 400 µL 50 mM NaOH oraz fiolkę kontrolną pozytywną zawierającą 20 µL TC20 (z kroku 1.2.3.1).
- Dodaj 4 mL roztworu scyntylacyjnego do każdej fiolki. Zamknij zakrętkę i dokładnie wymieszaj zawartość każdej fiolki (1-2 s).
- Umieść każdą fiolkę w liczniku scyntylacyjnym i zmierz radioaktywność zgodnie z instrukcją producenta. Zapisz liczbę zliczeń na minutę (CPM) dla każdej fiolki scyntylacyjnej przez 10 min.
UWAGA: CPM = „liczba rozpadów na minutę” x „wydajność zliczania”.
7. Szybkość pobierania glukozy
- Wykorzystaj pozostały lizat (200 µL; z kroku 5.2) do pomiaru stężenia białka. Wyznacz stężenie białka w każdym lizacie komórkowym metodą Bradforda25 lub metodą równoważną. Oblicz całkowitą ilość białka (Q) w mg dla każdej studzienki.
- Aby uzyskać TC1 (wartość dla 1 µL znakowanego promieniotwórczo 2dG*), podziel wartość CPM dla TC20 przez 20.
- Dla każdej fiolki oblicz tempo poboru glukozy w następujący sposób:
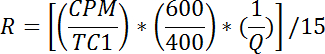
UWAGA: R jest mierzone w pmol/mg/min. Średnia wartość R dla studzienek 1-2 daje tempo transportu pasywnego, Rp. Średnia wartość R dla studzienek 3-4 daje podstawowe całkowite tempo transportu, Rbt. Średnia wartość R dla studzienek 5-6 daje całkowite tempo transportu stymulowane insuliną, Rit.- Oblicz podstawowe tempo transportu aktywnego (Rba) w następujący sposób:
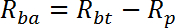
- Oblicz tempo transportu aktywnego stymulowane insuliną (Ria) w następujący sposób:
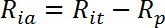
UWAGA: W komórkach reagujących na insulinę, takich jak miotuby, tempa poboru glukozy są zazwyczaj reprezentowane przez trzy wartości: Rba, Ria oraz krotność stymulacji insuliną jako Ria/Rba.
- Oblicz podstawowe tempo transportu aktywnego (Rba) w następujący sposób:
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
W 3. dniu mioblasty osiągają konfluencję (Ryc. 1A). Mioblasty na tym etapie są zazwyczaj jednojądrowe. Wymieniono medium, a w 8. dniu różnicowanie zostało zakończone (Ryc. 1B) (sekcja 2 protokołu). Po 5 dniach różnicowania miotuby są uporządkowane i zazwyczaj wielojądrowe. Ludzkie pierwotne miotuby poddano działaniu palmitanu lub samej BSA przed pomiarem szybkości pobierania glukozy. Komórki inkubowano przez 48 h z palmitanem 0.5...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Wychwyt glukozy jest kluczowym pomiarem biologicznym służącym do testowania aktywatorów lub inhibitorów w hodowli komórkowej i ich wpływu na wykorzystanie glukozy oraz zdolność komórki do reagowania na insulinę. Opisana tutaj metoda okazała się szybka i niezawodna i była szeroko stosowana w wielu badaniach z użyciem pierwotnych miotub od zdrowych osób i/lub pacjentów metabolicznie dotkniętych 6,7,10,12,21,26,27,36,37 ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Autorzy dziękują Anne Charrié z Radiobiology Service (szpital Lyon-Sud) i Fond National Suisse (FNS) za ich wsparcie finansowe.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Ludzka pierwotna komórka mięśniowa | Przygotowanie we własnym zakresie z biopsji ludzkich mięśni szkieletowych Przygotowanie | wewnętrzne z biopsji ludzkich mięśni szkieletowych | Jeśli nie jest to możliwe, skorzystaj ze źródła komercyjnego |
| Ludzka pierwotna komórka mięśniowa | Promocell | C-12530 | Należy hodować z powiązanymi pożywkami C23060 i C23061 |
| Płytka 6-dołkowa | Corning | 356400 | BioCoat Collagen I Multiwell Plates |
| Ham's F10 | Dutscher | L0145-500 | 1 g/L glukozy |
| Glutamina | Dutscher | X0551-100 | |
| penicyna/streptomycyna 100x | Thermo fisher scientific | 15140122 | |
| Substytut surowicy UltroserG | Pall France | 15950.017 | substytut surowicy w tekście |
| DMEM niski poziom glukozy | Dutscher | L0064-500 | 1 g/L glukozy |
| Surowica cielęca płodu | Eurobio | CVFSVF00-01 | |
| Sól fizjologiczna buforowana fosforanami firmy Dulbecco | Dutscher | L0625-500 | zawiera Mg2+ (0,5 mM) i Ca2+ (0,9 mM) |
| Roztwór insuliny ludzkiej | Sigma-Aldrich | I9278 | |
| 2-deoksy-D-glukoza | Sigma-Aldrich | D6134 | |
| Albumina bydlęca | euromedex | 04-100-812-E | |
| bez kwasów tłuszczowych BSA | Roche | 10,775,835,001 | |
| palmitynian | Sigma-Aldrich | P0500 | |
| Deoksy-D-glukoza, 2-[1,2-3H (N)] | PerkinElmer | NET328A001MC | Specyficzna aktywność: 5 - 10 Ci (185-370GBq)/mmol, 1 mCi (37MBq |
| Cytochalazyna B | Sigma-Aldrich | c2743 | |
| PICO PRIAS FIOLKA 6 ml | PerkinElmer | 6000192 | |
| ultima gold MW CA | PerkinElmer | 6013159 | ciecz scyntylacyjna |
| bê Licznik TA | PerkinElmer | 2900TR |
Bibliografia
- Stump, C. S., Henriksen, E. J., Wei, Y., Sowers, J. R. The metabolic syndrome: role of skeletal muscle metabolism. Ann Med. 38 (6), 389-402 (2006).
- DeFronzo, R. A., Tobin, J. D., Andres, R. Glucose clamp technique: a method for quantifying insulin secretion and resistance. Am J Physiol. 237 (3), E214-E223 (1979).
- Fossum, E., Hoieggen, A., Moan, A., Nordby, G., Kjeldsen, S. E. Insulin sensitivity relates to other cardiovascular risk factors in young men: validation of some modifications of the hyperinsulinaemic, isoglycaemic glucose clamp technique. Blood Press Suppl. 2, 113-119 (1997).
- Heise, T., et al. Euglycaemic glucose clamp: what it can and cannot do, and how to do it. Diabetes Obes Metab. 18 (10), 962-972 (2016).
- Sell, H., Jensen, J., Eckel, J. Measurement of insulin sensitivity in skeletal muscle in vitro. Methods Mol Biol. 933, 255-263 (2012).
- Sarabia, V., Lam, L., Burdett, E., Leiter, L. A., Klip, A. Glucose transport in human skeletal muscle cells in culture. Stimulation by insulin and metformin. J Clin Invest. 90 (4), 1386-1395 (1992).
- Sarabia, V., Ramlal, T., Klip, A. Glucose uptake in human and animal muscle cells in culture. Biochem Cell Biol. 68 (2), 536-542 (1990).
- Richter, E. A., Hargreaves, M. Exercise, GLUT4, and skeletal muscle glucose uptake. Physiol Rev. 93 (3), 993-1017 (2013).
- Gaster, M., Kristensen, S. R., Beck-Nielsen, H., Schroder, H. D. A cellular model system of differentiated human myotubes. Apmis. 109 (11), 735-744 (2001).
- Bouzakri, K., et al. Reduced activation of phosphatidylinositol-3 kinase and increased serine 636 phosphorylation of insulin receptor substrate-1 in primary culture of skeletal muscle cells from patients with type 2 diabetes. Diabetes. 52 (6), 1319-1325 (2003).
- Scheele, C., et al. Satellite cells derived from obese humans with type 2 diabetes and differentiated into myocytes in vitro exhibit abnormal response to IL-6. PLoS One. 7 (6), e39657(2012).
- Jackson, S., et al. Decreased insulin responsiveness of glucose uptake in cultured human skeletal muscle cells from insulin-resistant nondiabetic relatives of type 2 diabetic families. Diabetes. 49 (7), 1169-1177 (2000).
- Aas, V., et al. Are cultured human myotubes far from home? Cell Tissue Res. 354 (3), 671-682 (2013).
- Bakke, S. S., et al. Myotubes from severely obese type 2 diabetic subjects accumulate less lipids and show higher lipolytic rate than myotubes from severely obese non-diabetic subjects. PLoS One. 10 (3), e0119556(2015).
- Stuart, C. A., et al. Hexose transporter mRNAs for GLUT4, GLUT5, and GLUT12 predominate in human muscle. Am J Physiol Endocrinol Metab. 291 (5), E1067-E1073 (2006).
- Al-Khalili, L., et al. Insulin action in cultured human skeletal muscle cells during differentiation: assessment of cell surface GLUT4 and GLUT1 content. Cell Mol Life Sci. 60 (5), 991-998 (2003).
- Tsuka, S., et al. Promotion of insulin-induced glucose uptake in C2C12 myotubes by osteocalcin. Biochem Biophys Res Commun. 459 (3), 437-442 (2015).
- Gorbunov, E. A., Nicoll, J., Myslivets, A. A., Kachaeva, E. V., Tarasov, S. A. Subetta Enhances Sensitivity of Human Muscle Cells to Insulin. Bull Exp Biol Med. 159 (4), 463-465 (2015).
- Breen, D. M., Sanli, T., Giacca, A., Tsiani, E. Stimulation of muscle cell glucose uptake by resveratrol through sirtuins and AMPK. Biochem Biophys Res Commun. 374 (1), 117-122 (2008).
- Pinnamaneni, S. K., Southgate, R. J., Febbraio, M. A., Watt, M. J. Stearoyl CoA desaturase 1 is elevated in obesity but protects against fatty acid-induced skeletal muscle insulin resistance in vitro. Diabetologia. 49 (12), 3027-3037 (2006).
- Gastebois, C., et al. Transition from physical activity to inactivity increases skeletal muscle miR-148b content and triggers insulin resistance. Physiol Rep. 4 (17), (2016).
- Naimi, M., Tsakiridis, T., Stamatatos, T. C., Alexandropoulos, D. I., Tsiani, E. Increased skeletal muscle glucose uptake by rosemary extract through AMPK activation. Appl Physiol Nutr Metab. 40 (4), 407-413 (2015).
- Feng, Y. Z., et al. PPARdelta activation in human myotubes increases mitochondrial fatty acid oxidative capacity and reduces glucose utilization by a switch in substrate preference. Arch Physiol Biochem. 120 (1), 12-21 (2014).
- Perrin, L., et al. Human skeletal myotubes display a cell-autonomous circadian clock implicated in basal myokine secretion. Mol Metab. 4 (11), 834-845 (2015).
- Bradford, M. M. A rapid and sensitive method for the quantitation of microgram quantities of protein utilizing the principle of protein-dye binding. Anal Biochem. 72, 248-254 (1976).
- Bouzakri, K., et al. Malonyl CoenzymeA decarboxylase regulates lipid and glucose metabolism in human skeletal muscle. Diabetes. 57 (6), 1508-1516 (2008).
- Shemyakin, A., et al. Endothelin-1 reduces glucose uptake in human skeletal muscle in vivo and in vitro. Diabetes. 60 (8), 2061-2067 (2011).
- Alkhateeb, H., Chabowski, A., Glatz, J. F., Luiken, J. F., Bonen, A. Two phases of palmitate-induced insulin resistance in skeletal muscle: impaired GLUT4 translocation is followed by a reduced GLUT4 intrinsic activity. Am J Physiol Endocrinol Metab. 293 (3), E783-E793 (2007).
- Coll, T., et al. Oleate reverses palmitate-induced insulin resistance and inflammation in skeletal muscle cells. J Biol Chem. 283 (17), 11107-11116 (2008).
- Gaster, M., Rustan, A. C., Beck-Nielsen, H. Differential utilization of saturated palmitate and unsaturated oleate: evidence from cultured myotubes. Diabetes. 54 (3), 648-656 (2005).
- Hage Hassan, R., et al. Endoplasmic reticulum stress does not mediate palmitate-induced insulin resistance in mouse and human muscle cells. Diabetologia. 55 (1), 204-214 (2012).
- Haghani, K., Pashaei, S., Vakili, S., Taheripak, G., Bakhtiyari, S. TNF-alpha knockdown alleviates palmitate-induced insulin resistance in C2C12 skeletal muscle cells. Biochem Biophys Res Commun. 460 (4), 977-982 (2015).
- Hommelberg, P. P., et al. Palmitate-induced skeletal muscle insulin resistance does not require NF-kappaB activation. Cell Mol Life Sci. 68 (7), 1215-1225 (2011).
- Yang, M., et al. Saturated fatty acid palmitate-induced insulin resistance is accompanied with myotube loss and the impaired expression of health benefit myokine genes in C2C12 myotubes. Lipids Health Dis. 12, 104(2013).
- Peng, G., et al. Oleate blocks palmitate-induced abnormal lipid distribution, endoplasmic reticulum expansion and stress, and insulin resistance in skeletal muscle. Endocrinology. 152 (6), 2206-2218 (2011).
- Lambernd, S., et al. Contractile activity of human skeletal muscle cells prevents insulin resistance by inhibiting pro-inflammatory signalling pathways. Diabetologia. 55 (4), 1128-1139 (2012).
- Nikolic, N., et al. Electrical pulse stimulation of cultured human skeletal muscle cells as an in vitro model of exercise. PLoS One. 7 (3), e33203(2012).
- Hsu, F. L., et al. Antidiabetic effects of pterosin A, a small-molecular-weight natural product, on diabetic mouse models. Diabetes. 62 (2), 628-638 (2013).
- Zou, C., Wang, Y., Shen, Z. 2-NBDG as a fluorescent indicator for direct glucose uptake measurement. J Biochem Biophys Methods. 64 (3), 207-215 (2005).
- Catalano, K. J., et al. Insulin resistance induced by hyperinsulinemia coincides with a persistent alteration at the insulin receptor tyrosine kinase domain. PLoS One. 9 (9), e108693(2014).
- Liu, H. Y., et al. Insulin is a stronger inducer of insulin resistance than hyperglycemia in mice with type 1 diabetes mellitus (T1DM). J Biol Chem. 284 (40), 27090-27100 (2009).
- Renstrom, F., Buren, J., Svensson, M., Eriksson, J. W. Insulin resistance induced by high glucose and high insulin precedes insulin receptor substrate 1 protein depletion in human adipocytes. Metabolism. 56 (2), 190-198 (2007).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
