Tutaj opisujemy protokół mapowania całego genomu miejsc integracji wektorów retrowirusowych opartych na wirusie mysiej białaczki Moloneya w komórkach ludzkich.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Skanowanie retrowirusowe: mapowanie miejsc integracji MLV w celu zdefiniowania regionów regulatorowych specyficznych dla komórki
W tym artykule
Podsumowanie
Streszczenie
wektory retrowirusowe oparte na wirusie mysiej białaczki Moloneya (MLV) integrują się głównie z acetylowanymi wzmacniaczami i promotorami. Z tego powodu miejsca integracji mLV mogą być wykorzystywane jako funkcjonalne markery aktywnych elementów regulatorowych. W tym miejscu przedstawiamy narzędzie do skanowania retrowirusowego, które pozwala na identyfikację w całym genomie wzmacniaczy i promotorów specyficznych dla komórki. Krótko mówiąc, docelowa populacja komórek jest transdukowana za pomocą wektora pochodzącego z mLV, a genomowe DNA jest trawione za pomocą często tnącego enzymu restrykcyjnego. Po ligacji fragmentów genomu za pomocą kompatybilnego łącznika DNA, reakcja łańcuchowa polimerazy za pośrednictwem łącznika (LM-PCR) umożliwia amplifikację połączeń genomowych wirus-gospodarz. Masowe sekwencjonowanie amplikonów służy do zdefiniowania profilu integracji mLV w całym genomie. Na koniec definiowane są klastry powtarzających się integracji w celu identyfikacji regionów regulatorowych specyficznych dla komórki, odpowiedzialnych za aktywację programów transkrypcyjnych specyficznych dla typu komórki.
Narzędzie do skanowania retrowirusowego pozwala na identyfikację całego genomu specyficznych dla komórek promotorów i wzmacniaczy w prospektywnie izolowanych populacjach komórek docelowych. Warto zauważyć, że skanowanie retrowirusowe stanowi instrumentalną technikę retrospektywnej identyfikacji rzadkich populacji (np. somatycznych komórek macierzystych), w których brakuje solidnych markerów do prospektywnej izolacji.
Wprowadzenie
Tożsamość komórki jest określana przez ekspresję określonych zestawów genów. Rola elementów cis-regulatorowych, takich jak promotory i wzmacniacze, ma kluczowe znaczenie dla aktywacji programów transkrypcyjnych specyficznych dla typu komórki. Te regiony regulatorowe charakteryzują się specyficznymi cechami chromatyny, takimi jak osobliwe modyfikacje histonów, wiązanie czynników transkrypcyjnych i kofaktorów oraz dostępność chromatyny, które są szeroko stosowane do ich identyfikacji w całym genomie w kilku typach komórek1,2,3. W szczególności profil acetylacji histonu H3 lizyny 27 (H3K27ac) obejmujący cały genom jest powszechnie stosowany do definiowania aktywnych promotorów, wzmacniaczy i superwzmacniaczy4,5,6.
Wirus mysiej białaczki Moloneya (MLV) jest gamma-retrowirusem, który jest szeroko stosowany do transferu genów w komórkach ssaków. Po zakażeniu komórki docelowej retrowirusowy genom RNA jest retrotranskrybowany w dwuniciowej cząsteczce DNA, która wiąże białka wirusowe i komórkowe w celu złożenia kompleksu wstępnej integracji (). dostaje się do jądra i wiąże chromatynę komórki gospodarza. W tym przypadku integraza wirusowa, kluczowy składnik, pośredniczy w integracji prowirusowego DNA z genomem komórki gospodarza. Integracja mLV w genomowym DNA nie jest przypadkowa, ale zachodzi w aktywnych elementach cis-regulatorowych, takich jak promotory i wzmacniacze, w sposób specyficzny dla komórki7,8,9,10. W tym osobliwym profilu integracji pośredniczy bezpośrednia interakcja między integrazą mLV a komórkowymi białkami bromodomeny i domeny pozaterminalnej (BET)11,12,13. Białka BET (BRD2, BRD3 i BRD4) działają jak pomost między chromatyną gospodarza a mLV: poprzez swoje bromodomeny rozpoznają wysoce acetylowane regiony cis-regulatorowe, podczas gdy domena pozaterminalna oddziałuje z integrazą mLV 11,12,13.
Tutaj opisujemy skanowanie retrowirusowe, nowatorskie narzędzie do mapowania aktywnych regionów cis-regulatorowych w oparciu o właściwości integracyjne mLV. Krótko mówiąc, komórki są transdukowane wektorem retrowirusowym pochodzącym z mLV, który wykazuje ekspresję genu reporterowego wzmocnionego białka zielonej fluorescencji (eGFP). Po ekstrakcji genomowego DNA połączenia między 3' długim powtórzeniem końcowym (LTR) wektora mLV a genomowym DNA są amplifikowane przez PCR za pośrednictwem łącznika (LM-PCR) i masowo sekwencjonowane. Miejsca integracji mLV są mapowane do ludzkiego genomu, a regiony genomu silnie ukierunkowane przez mLV definiuje się jako klastry miejsc integracji mLV.
Skanowanie retrowirusowe zostało użyte do zdefiniowania specyficznych dla komórki aktywnych elementów regulatorowych w kilku ludzkich komórkach pierwotnych14,15. Klastry mLV współmapowane z epigenetycznie zdefiniowanymi promotorami i wzmacniaczami, z których większość zawierała aktywne znaczniki histonowe, takie jak H3K27ac, i były specyficzne dla komórki. Skanowanie retrowirusowe umożliwia identyfikację elementów regulatorowych DNA w całym genomie w prospektywnie oczyszczonych populacjach komórek7,14, a także w retrospektywnie zdefiniowanych populacjach komórek, takich jak komórki macierzyste keratynocytów, które nie mają skutecznych markerów do prospektywnej izolacji15.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Transdukcja komórek ludzkich za pomocą MLV
- Wyizolować komórki docelowe i przetransdukować je wektorami retrowirusowymi pochodzącymi z mLV, zawierającymi gen reporterowy eGFP i pseudotypowanymi glikoproteiną otoczki wirusa zapalenia jam ust Vesicular Stomatitis Virus G (VSV-G) lub glikoproteiną otoczki amfotropowej16.
- Przetrzymywać komórki poddane pozornej transdukcji (mock-transduced) jako kontrolę negatywną dla kolejnych analiz. Ponieważ retrowirusowe wektory oparte na mLV mogą wydajnie transdukować komórki dzielące się, hodować populację komórek docelowych w warunkach stymulujących podziały komórkowe. Warunki transdukcji muszą zostać specyficznie zoptymalizowane dla każdego badanego typu komórek. Warunki wzrostu komórek i transdukcji dla ludzkich prekursorów hematopoetycznych, limfocytów T oraz komórek naskórka opisano w referencjach 7, 14, 15 i 17.
- 48 h po transdukcji resuspendować 100 000 komórek w 300 μL soli fizjologicznej z buforem fosforanowym (PBS) zawierającej 2% płodowej surowicy bydlęcej i zmierzyć ekspresję eGFP za pomocą analizy cytometrycznej (laser wzbudzający 488 nm). Jako kontrolę negatywną wykorzystać komórki poddane pozornej transdukcji. Aby uzyskać optymalną odzyskalność miejsc integracji, oczyścić komórki GFP+ za pomocą sortowania komórek aktywowanego fluorescencją (FACS).
- Zebrać od 0,5 do 5 milionów komórek do przygotowania genomowego DNA. Preferowany jest dłuższy okres hodowli (>7 dni), aby rozcieńczyć niezintegrowany prowirus; jest to niezbędne przy analizie długoterminowego potomstwa rzeczywistych komórek macierzystych bona fide (patrz Sekcja Dyskusja i referencja15). Osady komórkowe można zamrozić gwałtownie i przechowywać w temperaturze -80 °C do czasu użycia.
2. Amplifikacja miejsc integracji mLV za pomocą PCR z użyciem łącznika (LM-PCR)
- Przygotowanie DNA genomowego (gDNA)
- Wyizolować gDNA przy użyciu kolumienkowego zestawu do ekstrakcji DNA, postępując zgodnie z protokołem dla komórek hodowlanych i instrukcjami producenta.
- Trawienie enzymami restrykcyjnymi
- Przygotować 4 reakcje trawienia enzymami restrykcyjnymi na próbkę w probówkach 1,5 mL. W każdej probówce poddać trawieniu 0,1 do 1 μg gDNA, dodając 1 µL Tru9I (10U) i 1 µL buforu M do końcowej objętości 10 µL. Inkubować reakcje w temperaturze 65 °C przez 6 h lub przez noc.
- Do każdej reakcji dodać 1 µL PstI (10U), 1 µL buforu H oraz 8 µL wody. Inkubować reakcje w temperaturze 37 °C przez 6 h lub przez noc. Próbki można przechowywać w temperaturze -20 °C do czasu użycia.
- Ligacja linkerów
- Przygotować w probówce 1,5 mL roztwór zapasowy linkera Tru9I o stężeniu 100 μM, mieszając oligonukleotydy nici plus i nici minus linkera do stężenia 100 μM. Umieścić probówkę w łaźni wodnej o temperaturze 100 °C, a następnie pozostawić do ostygnięcia w temperaturze pokojowej. Roztwór zapasowy linkera Tru9I można przechowywać w temperaturze -20 °C do czasu użycia.
- Przygotować 8 reakcji ligacji linkerów w probówkach 1,5 mL. Do każdej reakcji, do 10 µL produktu trawienia enzymami restrykcyjnymi, dodać następujące komponenty: 1,4 µL 10X buforu do reakcji T4 DNA Ligase, 1 µL linkera Tru9I (10 μM), 1 µL (2 000U) ligazy T4 DNA oraz 0,6 µL wody. Inkubować w temperaturze 16 °C przez 3 do 6 h. Próbki można przechowywać w temperaturze -20 °C do czasu użycia.
- Pierwsza PCR
- Przygotować 48 reakcji PCR (6 reakcji z każdej probówki po ligacji) w probówkach 0,2 mL. Do każdej PCR, do 2 µL reakcji ligacji, dodać następujące odczynniki: 5 µL 10X buforu do PCR, 2 µL siarczanu magnezu (50 mM), 1 µL mieszaniny deoksynukleotydów (dNTP) (10 mM), 1 µL primera linkera (10 μM), 1 µL primera mLV-3' LTR (10 μM), 0,3 µL (1,5U) polimerazy Taq DNA oraz 37,7 µL wody. Sekwencje primerów podano w Tabeli 1.
- Przeprowadzić reakcję PCR w termocyklerze z grzaną pokrywą według następującego schematu: 95 °C przez 2 min; 25 cykli: 95 °C przez 15 s, 55 °C przez 30 s, 72 °C przez 1 min; 72 °C przez 5 min; utrzymywać w 4 °C. Próbki można przechowywać w temperaturze -20 °C do czasu użycia.
- Druga PCR
- Przygotować 48 reakcji PCR (po 1 z każdej probówki po „pierwszej PCR”) w probówkach 0,2 mL. Do każdej PCR, do 2 µL reakcji pierwszej PCR, dodać następujące komponenty: 5 µL 10X buforu do PCR, 2 µL siarczanu magnezu (50 mM), 1 µL mieszaniny dNTP (10 mM), 1 µL nested primera linkera (10 μM), 1 µL nested primera mLV-3' LTR (10 μM), 0,3 µL polimerazy Taq DNA (1,5 U) oraz 37,7 µL wody. Należy użyć nested primerów zaprojektowanych dla wybranej specyficznej strategii sekwencjonowania masowego: (i) nested primera linkera i nested primera mLV-3' LTR kompatybilnych z platformą Illumina; (ii) nested primera linkera i nested primera mLV-3' LTR kompatybilnych z platformą Roche. Sekwencje primerów wymieniono w Tabeli 1.
- Przeprowadzić reakcję PCR w termocyklerze z grzaną pokrywą według następującego schematu: 95 °C przez 2 min; 25 cykli: 95 °C przez 15 s, 58 °C przez 30 s, 72 °C przez 1 min; 72 °C przez 5 min; utrzymywać w 4 °C. Próbki można przechowywać w temperaturze -20 °C do czasu użycia.
- Połączyć 48 reakcji nested PCR w probówce 15 mL (objętość końcowa ok. 2,4 mL). Próbki można przechowywać w temperaturze -20 °C do czasu użycia.
- Określenie obecności i wielkości produktów LM-PCR za pomocą elektroforezy w żelu agarozowym.
- Do 20 µL produktów LM-PCR dodać 4 µL buforu do nakładania i nanieść próbkę na 1% żel agarozowy wraz z markerem DNA 100 bp. Prowadzić elektroforezę przy 5 V/cm przez 30 do 60 min i zwizualizować produkty PCR poprzez barwienie bromkiem etydyny.
- Przeprowadzić reakcję LM-PCR z próbki mock-transdukowanej jako kontrolę negatywną.
- Wytrącić amplikony, dodając 0,1 objętości roztworu octanu sodu (3 M; pH 5,2) i 2,5 objętości 100% etanolu. Wymieszać i zamrozić w temperaturze -80 °C na 20 min.
- Wirować z maksymalną prędkością w standardowej mikrocentry fudze w temperaturze 4 °C przez 20 min. Odlać nadsącz i przemyć osad 70% etanolem. Wirować z maksymalną prędkością w standardowej mikrocentry fudze w temperaturze 4 °C przez 5 min.
- Odlać nadsącz i wysuszyć osad na powietrzu. Dodać 200 µL wody klasy PCR i resuspendować DNA. Próbki można przechowywać w temperaturze -20 °C do czasu użycia.
- Do 100 µL produktów LM-PCR dodać 20 μL buforu do nakładania i nanieść próbkę na 1% żel agarozowy wraz z markerem DNA 100 bp.
- Prowadzić elektroforezę przy 5 V/cm przez 30 do 60 min i wyciąć fragment żelu zawierający amplikony o długości od 150 do 500 bp.
- Oczyścić produkty LM-PCR za pomocą kolumienkowego zestawu do ekstrakcji z żelu i zmierzyć stężenie za pomocą spektrofotometru UV.
- Użyć 1 µL biblioteki do oceny długości produktów LM-PCR przy użyciu analizatora Bioanalyzer, zgodnie z instrukcjami producenta.
- Klonowanie typu shotgun amplikonów
- Użyć 20 ng oczyszczonych produktów LM-PCR i sklonować je w wektorze pCR2.1-TOPO zgodnie z instrukcjami producenta.
- Przeprowadzić reakcje sekwencjonowania z użyciem uniwersalnego primera M13, a następnie wykonać mapowanie genomowe uzyskanych sekwencji, aby wykryć obecność złączy genomu wirusowego (w tym nested primera mLV-3' LTR) w >50% klonów w celu zidentyfikowania próbek odpowiednich do sekwencjonowania masowego. Przykład złącza genomu wirusowego:
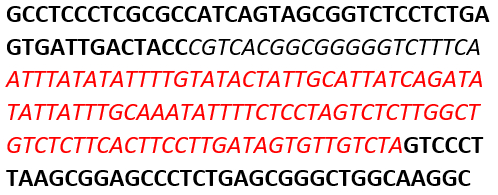
Nested primer MLV-3' LTR 454 oraz nested primer linkera 454 (Tabela 1) są zaznaczone pogrubieniem, a koniec 3' wirusowego LTR kursywą. Ludzka sekwencja genomowa jest wyróżniona czerwonym tekstem (chr10:6439408-6439509, hg19).
3. Masowe sekwencjonowanie miejsc integracji mLV
UWAGA: Produkty LM-PCR można sekwencjonować przy użyciu platform komercyjnych (wybierając odpowiednią parę starterów zagnieżdżonych w drugiej reakcji PCR, patrz podrozdział 2.5.1). W przypadku sekwencjonowania na platformie pirosekwencjonowania Roche GS-FLX należy odnieść się do wcześniejszych publikacji7,14,15. W tej sekcji opisano nowo zoptymalizowany protokół dla platformy sekwencjonowania Illumina.
- Przygotowanie biblioteki
- Przygotować jedną reakcję PCR z indeksowaniem na próbkę w probówkach 0,2 mL. Do każdej reakcji PCR dodać następujące odczynniki do 5 µL (150-170 ng) oczyszczonego produktu LM-PCR: 5 µL primera indeksującego 1 (Index Primer 1), 5 µL primera indeksującego 2 (Index Primer 2), 25 µL 2X Master Mix oraz 10 µL wody jakości PCR. Dla każdej próbki należy zastosować inną kombinację indeksów.
- Reakcje PCR przeprowadzić w termocyklerze z podgrzewaną pokrywą według następującego programu: 95 °C przez 3 min; 8 cykli: 95 °C przez 30 s, 55 °C przez 30 s, 72 °C przez 30 s; 72 °C przez 5 min; utrzymywać w temperaturze 4 °C.
- Produkty PCR oczyścić zgodnie z protokołem izolacji za pomocą kulek do odwracalnej immobilizacji w fazie stałej (SPRI): do nowych probówek 1,5 mL dodać do każdej próbki 56 µL kulek i postępować zgodnie z instrukcjami producenta. Eluować w 25 µL Tris-HCl 10 mM. Biblioteki można przechowywać w temperaturze -20 °C do czasu użycia.
- Kontrola biblioteki
- Użyć 1 µL próbki do oceny wielkości biblioteki za pomocą bioanalizatora.
- Użyć 1 µL próbki do ilościowego oznaczenia molarności biblioteki za pomocą fluorescencyjnego testu Real time PCR, zgodnie z instrukcjami producenta.
- Rozcieńczanie biblioteki i sekwencjonowanie
- Rozcieńczyć biblioteki do stężenia 10 nM za pomocą Tris-HCl 10 mM. W celu łączenia bibliotek przenieść 5 µL każdej rozcieńczonej biblioteki do nowej probówki 1,5 mL, a następnie rozcieńczyć pulę do 4 nM w Tris-HCl 10 mM.
- W nowej probówce 1,5 mL wymieszać 5 µL rozcieńczonej puli z 5 µL 0,2 N NaOH, krótko wymieszać w wirówce typu vortex, odwirować i inkubować przez 5 min w temperaturze pokojowej w celu denaturacji bibliotek.
- Umieścić probówki na lodzie i dodać 990 µL schłodzonego buforu hybrydyzacyjnego (HT1). Odlać 300 µL zdenaturowanej puli do nowej probówki 1,5 mL i dodać 300 µL schłodzonego HT1, aby uzyskać końcową pulę biblioteki o stężeniu 10 pM.
- Równolegle wymieszać 2 µL kontrolnej biblioteki PhiX (10 nM) z 3 µL Tris-HCl 10 mM w probówce 1,5 mL. Dodać 5 µL NaOH 0,2 N, krótko wymieszać w wirówce typu vortex, odwirować i inkubować przez 5 min w temperaturze pokojowej w celu zdenaturowania rozcieńczonego PhiX. Umieścić probówkę na lodzie i dodać 990 µL schłodzonego HT1.
- Odlać 300 µL zdenaturowanego PhiX do nowej probówki 1,5 mL i dodać 300 µL schłodzonego HT1, aby uzyskać końcowe stężenie PhiX wynoszące 10 pM.
- W nowej probówce 1,5 mL wymieszać 510 µL zdenaturowanej puli bibliotek z 90 µL zdenaturowanej biblioteki PhiX, uzyskując w ten sposób końcową pulę 10 pM z 15% kontroli PhiX.
- Napipetować te 600 µL próbki do zbiornika Load Sample w rozmrożonym kartridżu z odczynnikami do sekwencjonowania i niezwłocznie przeprowadzić sekwencjonowanie single-read 150-cyklowe.
UWAGA: Kluczowe odczynniki i sekwencje primerów wymagane w tym protokole wymieniono w Tabeli 1.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Przebieg procedury skanowania retrowirusowego
Schemat przepływu pracy procedury skanowania retrowirusowego przedstawiono na Rycynie 1. Docelowa populacja komórek zostaje oczyszczona i transdukowana wektorem retrowirusowym pochodzącym z mLV, wykazującym ekspresję genu reporterowego eGFP. Transgen jest flankowany przez dwie identyczne długie powtórzenia końcowe (5' i 3' LTR), co zapewnia syntezę, odwrotn...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
W tym miejscu opisaliśmy protokół mapowania całego genomu miejsc integracji mLV, retrowirusa, który atakuje regiony chromatyny, epigenetycznie oznaczone jako aktywne promotory i wzmacniacze. Krytyczne etapy i/lub ograniczenia protokołu obejmują: (i) transdukcję mLV w docelowej populacji komórek; (ii) amplifikacja połączeń wirus-gospodarz metodą LM-PCR; (iii) odzyskanie dużej części miejsc integracji. Wektory retrowirusowe oparte na mLV skutecznie transdukują dzielące się komórki. Potencjalnym ograniczeniem tej techniki j...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca była wspierana przez granty Europejskiej Rady ds. Badań Naukowych (ERC-2010-AdG, GT-SKIN), włoskiego Ministerstwa Edukacji, Uniwersytetów i Badań (FIRB-Futuro w Ricerca 2010-RBFR10OS4G, FIRB-Futuro w Ricerca 2012-RBFR126B8I_003, EPIGEN Epigenomics Flagship Project), włoskiego Ministerstwa Zdrowia (Young researchers Call 2011 GR-2011-02352026) oraz Fundacji Imagine Institute (Paryż, Francja).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| PBS, pH 7,4 | ThermoScientific | 10010031 | lub równoważny |
| Płodowa surowica bydlęca | ThermoScientific | 16000044 | lub równoważna |
| probówka 0,2 ml | ogólny dostawca | ||
| laboratoryjny 1,5 ml probówki | ogólny dostawca | ||
| QIAGEN QIAmp DNA mini Kit | QIAGEN | 51306 | lub równoważna |
| ligaza DNA T4 | New England BioLabs | M0202T | |
| T4 Ligaza DNA Bufor reakcyjny | New England BioLabs | M0202T | |
| Linker Plus Nitka oligonukleotyd | ogólny dostawca | laboratoryjny 5'-PO4-TAGTCCCTTAAGCGGAG-3' (Stopień oczyszczenia: SDS-PAGE) | |
| Linker Minus Strand oligonukleotyd | ogólny dostawca | 5'-GTAATACGACTCACTATAGGGCTCCGCTTAAGGGAC-3' (Stopień oczyszczenia: SDS-PAGE) | |
| Tru9I | Roche-Sigma-Aldrich | 11464825001 | |
| Bufor SuRE/Cut M | Roche-Sigma-Aldrich | 11417983001 | |
| PstI | Roche-Sigma-Aldrich | 10798991001 | |
| Bufor SuRE/Cut H | Roche-Sigma-Aldrich | 11417991001 | |
| Platynowa polimeraza DNA Taq o wysokiej wierności | Invitrogen | 11304011 | |
| 10 mM dNTP Mix | Invitrogen | 18427013 | lub równoważny |
| Woda klasy PCR | Ogólny dostawca | ||
| 96-dołkowy termocykler (z podgrzewaną pokrywą) | Ogólny dostawca | ||
| Łącznik Elementarz | Ogólny dostawca | laboratoryjny 5'-GTAATACGACTCACTATAGGGC-3' (Stopień oczyszczenia: klasa PCR) | |
| Zobacz materiał MLV-3' Ogólny | dostawca | 5'-GACTTGTGGTCTCTCTCGTTCCTTGG-3' (Stopień oczyszczenia: klasa PCR) | |
| Łącznik zagnieżdżony starter 454 | ogólny dostawca | 5'-GCCTTGCCAGCCCCCTCAG[AGGGCTCCGCTTAAGGGAC](Stopień oczyszczania: SDS-PAGE) | |
| MLV-3' Zagnieżdżony starter LTR 454 | ogólny dostawca | 5'-GCCTCCCTCGCGCCATCAGTAGC[GGTCTCCTCTGAGTGATTGACTACC](Stopień oczyszczania: SDS-PAGE) | |
| linker zagnieżdżony starter Illumina | ogólny dostawca | 5'-TCGTCGGCAGCGTCAGATGTGTATAAGAGACAGAG-[AGGGCTCCGCTTAAGGGAC](Stopień oczyszczania: SDS-PAGE) | |
| MLV-3' Zagnieżdżony starter LTR Ogólny | dostawca | 5'-GTCTCGTGGGCTCGGAGATGTGTATAAGAGACAGAGAG-[GGTCTCCTCTGAGTGATTGACTACC](Stopień oczyszczania: SDS-PAGE) | |
| Roztwór octanu sodu (3M) pH 5.2 | ogólny dostawca | ||
| Etanol (bezwzględny) do biologii molekularnej | Sigma-Aldrich | E7023 | lub równoważny |
| Topo TA Zestaw do klonowania (z wektorem pCR2.1-TOPO) | Invitrogen | K4500-01 | |
| QIAquick Zestaw do ekstrakcji żelu | QIAGEN | 28704 | |
| Agaroza | Sigma-Aldrich | A9539 | lub równoważny |
| bromek etydyny | Sigma-Aldrich | E1510 | lub równoważny |
| 100 pz drabinka DNA | Invitrogen | 15628019 | lub równoważny |
| 6x Bufor ładujący | ThermoScientific | R0611 | lub równoważny |
| Spektrofotometr UV-Vis NanoDrop 2000 | ThermoScientific | ND-2000 | |
| Nextera XT Zestaw indeksów | Illumina | FC-131-1001 lub FC-131-1002 | |
| 2x KAPA HiFi Hot Start Ready Mix | KAPA Biosystems | KK2601 | |
| Stojak magnetyczny Dynal do probówek 2 ml | Invitrogen | 12321D | lub odpowiednik |
| Agencourt AMPure XP zestaw 60 ml | Beckman Coulter Genomics | A63881 | |
| Tris-HCl 10 mM, pH 8,5 | ogólny dostawca | ||
| System Agilent 2200 TapeStation | Agilent Technologies | G2964AA | lub równoważny |
| D1000 ScreenTape | Agilent Technologies | 5067-5582 | lub równoważny |
| D1000 Odczynniki | Agilent Technologies | 5067-5583 | lub równoważny |
| Zestaw kwantyfikacyjny biblioteki KAPA dla platform Illumina (ABI Prism) | KAPA Biosystems | KK4835 | |
| ABI Prism 7900HT Szybki system PCR w czasie rzeczywistym | Applied Biosystems | 4329003 | |
| NaOH 1,0 N, molekularny | laboratoriów | ||
| biologicznych HT1 (bufor hybrydyzacyjny) | Illumina | Dostarczany w zestawie | |
| MiSeq MiSeq Reagent Kit v3 (150 cykli) | Illumina | MS-102-3001 | |
| MiSeq System | Illumina | SY-410-1003 | |
| PhiX Control v3 | Illumina | FC-110-3001 |
Bibliografia
- Ernst, J., et al. Mapping and analysis of chromatin state dynamics in nine human cell types. Nature. 473 (7345), 43-49 (2011).
- Shlyueva, D., Stampfel, G., Stark, A. Transcriptional enhancers: from properties to genome-wide predictions. Nat Rev Genet. 15 (4), 272-286 (2014).
- Roadmap Epigenomics Consortium. Integrative analysis of 111 reference human epigenomes. Nature. 518 (7539), 317-330 (2015).
- Heintzman, N. D., et al. Histone modifications at human enhancers reflect global cell-type-specific gene expression. Nature. 459 (7243), 108-112 (2009).
- Creyghton, M. P., et al. Histone H3K27ac separates active from poised enhancers and predicts developmental state. Proc Natl Acad Sci U S A. 107 (50), 21931-21936 (2010).
- Hnisz, D., et al. Super-enhancers in the control of cell identity and disease. Cell. 155 (4), 934-947 (2013).
- Cattoglio, C., et al. High-definition mapping of retroviral integration sites identifies active regulatory elements in human multipotent hematopoietic progenitors. Blood. 116 (25), 5507-5517 (2010).
- Biasco, L., et al. Integration profile of retroviral vector in gene therapy treated patients is cell-specific according to gene expression and chromatin conformation of target cell. EMBO Mol Med. 3 (2), 89-101 (2011).
- De Ravin, S. S., et al. Enhancers are major targets for murine leukemia virus vector integration. J Virol. 88 (8), 4504-4513 (2014).
- LaFave, M. C., et al. mLV integration site selection is driven by strong enhancers and active promoters. Nucleic Acids Res. 42 (7), 4257-4269 (2014).
- Gupta, S. S., et al. Bromo- and extraterminal domain chromatin regulators serve as cofactors for murine leukemia virus integration. J Virol. 87 (23), 12721-12736 (2013).
- Sharma, A., et al. BET proteins promote efficient murine leukemia virus integration at transcription start sites. Proc Natl Acad Sci U S A. 110 (29), 12036-12041 (2013).
- De Rijck, J., et al. The BET family of proteins targets moloney murine leukemia virus integration near transcription start sites. Cell reports. 5 (4), 886-894 (2013).
- Romano, O., et al. Transcriptional, epigenetic and retroviral signatures identify regulatory regions involved in hematopoietic lineage commitment. Sci Rep. 6, 24724(2016).
- Cavazza, A., et al. Dynamic Transcriptional and Epigenetic Regulation of Human Epidermal Keratinocyte Differentiation. Stem Cell Reports. 6 (4), 618-632 (2016).
- Miller, A. D., Law, M. F., Verma, I. M. Generation of helper-free amphotropic retroviruses that transduce a dominant-acting, methotrexate-resistant dihydrofolate reductase gene. Mol Cell Biol. 5 (3), 431-437 (1985).
- Cattoglio, C., et al. High-definition mapping of retroviral integration sites defines the fate of allogeneic T cells after donor lymphocyte infusion. PLoS One. 5 (12), e15688(2010).
- Aiuti, A., et al. Lentiviral hematopoietic stem cell gene therapy in patients with Wiskott-Aldrich syndrome. Science. 341 (6148), 1233151(2013).
- Biffi, A., et al. Lentiviral hematopoietic stem cell gene therapy benefits metachromatic leukodystrophy. Science. 341 (6148), 1233158(2013).
- Gabriel, R., et al. Comprehensive genomic access to vector integration in clinical gene therapy. Nat Med. 15 (12), 1431-1436 (2009).
- Gillet, N. A., et al. The host genomic environment of the provirus determines the abundance of HTLV-1-infected T-cell clones. Blood. 117 (11), 3113-3122 (2011).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
