Tutaj prezentujemy protokół wywoływania paraliżu i zapalenia wzrokowo-rdzeniowego poprzez transfer limfocytów T specyficznych dla akwaporyny-4 (AQP4) z myszy AQP4-/- do myszy WT. Ponadto pokazujemy, jak wykorzystać seryjną optyczną tomografię koherentną do monitorowania dysfunkcji układu wzrokowego.
Artykuł metodologiczny
Indukcja paraliżu i uszkodzenia układu wzrokowego u myszy przez limfocyty T specyficzne dla Neuromyelitis Optica Autoantigen Aquaporin-4
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Chociaż uznaje się, że limfocyty T i przeciwciała specyficzne dla akwaporyny-4 (AQP4) uczestniczą w patogenezie zapalenia nerwu wzrokowego (NMO), autoimmunologicznej choroby demielinizacyjnej ludzkiego ośrodkowego układu nerwowego (OUN), stworzenie modelu ukierunkowanego na AQP4 z klinicznymi i histologicznymi objawami autoimmunizacji OUN okazało się wyzwaniem. Immunizacja myszy typu dzikiego (WT) peptydami AQP4 wywołała proliferację limfocytów T, chociaż te limfocyty T nie mogły przenosić choroby na myszy wcześniej biorcze. Niedawno zidentyfikowano dwa nowe epitopy limfocytów T AQP4, peptyd (p) 135-153 i p201-220, podczas badania odpowiedzi immunologicznej na AQP4 u myszy z niedoborem AQP4 (AQP4-/-), co sugeruje, że reaktywność limfocytów T na te epitopy jest zwykle kontrolowana przez selekcję grasiczo-ujemną. AQP4-/- Spolaryzowane limfocyty T Th17 przygotowane do paraliżu wywołanego p135-153 lub p201-220 u myszy WT biorcy, co było związane z głównie zapaleniem opon mózgowo-rdzeniowych rdzenia kręgowego i nerwów wzrokowych. Stan zapalny otaczający nerwy wzrokowe i zajęcie wewnętrznych warstw siatkówki (IRL) objawiały się zmianami w seryjnej optycznej koherentnej tomografii (OCT). W tym miejscu ilustrujemy podejścia zastosowane do stworzenia tego nowego modelu in vivo autoimmunizacji OUN ukierunkowanej na AQP4 (ATCA), który można teraz wykorzystać do badania mechanizmów umożliwiających rozwój patogennych limfocytów T specyficznych dla AQP4 i tego, jak mogą one współpracować z komórkami B w patogenezie NMO.
Wprowadzenie
Neuromyelitis optica (NMO) to autoimmunologiczna choroba demielinizacyjna ośrodkowego układu nerwowego (OUN), która powoduje nawracające epizody paraliżu i utraty wzroku prowadzące do trwałej niepełnosprawności neurologicznej1. NMO jest obecnie uważane przede wszystkim za humoralną chorobę autoimmunologiczną2, ponieważ jest związane z przeciwciałami (Igs) skierowanymi przeciwko akwaporynie-4 (AQP4), kanale wodnemu ulegającemu obfitej ekspresji na astrocytach3,4. Jednak zapalenie OUN jest warunkiem wstępnym dla wejścia do OUN AQP4 Ig5,6. W związku z tym nie było możliwe ustalenie modelu NMO poprzez transfer samych Ig anty-AQP4. Odkrycie, że (1) patogenne Ig specyficzne dla AQP4 u pacjentów z NMO to IgG11,2, podklasa Ig zależna od limfocytów T7 (2) limfocyty T są identyfikowane w zmianach NMO8,9 (3) NMO jest związany z niektórymi genami MHC II (np. HLA-DR17 (DRB1*0301))10 i (4) prozapalne komórki Th17 z ograniczeniami DR reaktywnymi AQP4 są ekspandowane u pacjentów z NMO11,12 wskazują, że limfocyty T specyficzne dla AQP4 odgrywają kluczową rolę w patogenezie NMO. Dlatego ważne jest, aby opracować modele zwierzęce, aby określić, w jaki sposób limfocyty T specyficzne dla AQP4 mogą przyczyniać się do patogenezy NMO.
Kilka lat temu u myszy typu dzikiego (WT) zidentyfikowano wiele epitopów limfocytów T AQP413,14 i rats15. Chociaż zaobserwowano, że limfocyty T reagujące na AQP4 mogą indukować zapalenie nerwu wzrokowo-rdzeniowego u naiwnych szczurów biorców15,16, nie zaobserwowano istotnych objawów klinicznych choroby OUN. Podobnie, bezpośrednia immunizacja myszy WT peptydami zawierającymi epitopy limfocytów T AQP4 14,17, lub transfer prozapalnych limfocytów T ukierunkowanych na te determinanty17, nie spowodował objawów klinicznych ani histologicznych dowodów autoimmunizacji OUN.
Ostatnio zaobserwowano, że immunizacja myszy z niedoborem C57BL/6 AQP4 (AQP4-/-) peptydem AQP4 (p) 135-153 lub p201-220, dwoma determinantami, które zgodnie z przewidywaniami wiążą MHC II (I-Ab) o wysokim powinowactwie18, wywołała silne odpowiedzi limfocytów T CD4+17. W przeciwieństwie do tego, te dwa peptydy wywołały tylko umiarkowane odpowiedzi proliferacyjne u myszy WT. Co więcej, repertuar receptora limfocytów T (TCR) używany do rozpoznawania tych determinantów przez limfocyty T z myszy AQP4-/- był wyjątkowy. Podsumowując, odkrycia te wskazują, że rozpoznawanie AQP4 przez limfocyty T jest regulowane przez negatywną selekcję grasicy. Komórki Th17 specyficzne dla AQP4 p135-153 lub p201-220 z myszy dawcy AQP4 /- wywołały paraliż u prawie 100% naiwnych myszy WT biorców; było to związane z naciekami wzrokowo-rdzeniowymi limfocytów T, limfocytów B i monocytów. Seryjna koherentna tomografia wzrokowo-rdzeniowa (OCT) wykazała dynamiczne zajęcie układu wzrokowego. Myszy z autoimmunizacją OUN za pośrednictwem limfocytów T ukierunkowaną na AQP4 (ATCA) wyzdrowiały po paraliżu i urazie układu wzrokowego. W przeciwieństwie do EAE indukowanego przez limfocyty T specyficzne dla p35-55 oligodendrocytów mieliny (MOG), które prowadziło do uporczywej choroby klinicznej, ATCA indukowane przez same limfocyty T nie wiązało się z utratą aksonów lub zmniejszeniem liczby komórek zwojowych siatkówki (RGC). Nasze wyniki wyraźnie wykazały, że istnieje wiele patogennych determinantów limfocytów T AQP4. Ten nowy model ATCA jest przydatny do badania mechanizmów kontrolujących rozwój patogennych limfocytów T specyficznych dla AQP4, uczenia się, w jaki sposób komórki te indukują zapalenie OUN i jak mogą współpracować z komórkami B i przeciwciałami specyficznymi dla AQP4 w celu promowania patogenezy NMO.
W niniejszym raporcie opisujemy protokoły używane do indukowania i oceny ATCA indukowanego przez limfocyty T. Zaczynamy od technik stosowanych do immunizacji, hodowli limfocytów T i polaryzacji Th17 w celu wygenerowania patogennych limfocytów T specyficznych dla AQP4, analizy cytometrii przepływowej w celu potwierdzenia polaryzacji i adoptywnego transferu tych limfocytów T. Następnie opisujemy metody stosowane do oceny choroby klinicznej i histologicznej oraz zastosowanie seryjnego OCT do monitorowania uszkodzenia układu wzrokowego u myszy biorców.
Protokół
Wszystkie procedury na zwierzętach zostały przeprowadzone zgodnie z wytycznymi eksperymentalnymi zatwierdzonymi przez Uniwersytet Kalifornijski, San Francisco Institutional Animal Care and Use Committee. Zakupiono samice myszy C57BL/6 (H-2b) w wieku 8 tygodni, a myszy C57BL/6 AQP4-/- dostarczył A. Verkman.
1. Immunizacja myszy peptydami AQP4
- Przygotuj kompletny zapas roboczy adiuwanta Freunda (CFA).
- Drobno zmielić wysuszony preparat M. tuberculosis (H37Ra) za pomocą moździerza i tłuczka.
- Dodać zmielony H37Ra do niekompletnego adiuwantu Freunda do końcowego stężenia 4 mg/ml. CFA może być przechowywany w temperaturze 4 °C przez okres do 6 miesięcy.
- Rozpuścić peptyd AQP4 liofilizowanego antygenu (Ag) w roztworze soli fizjologicznej buforowanej fosforanami (PBS) do końcowego stężenia 1 mg/ml. Przechowywać w temperaturze 4 °C lub na lodzie.
- Przygotować zestaw 2 strzykawek typu luer-lock, połączonych kranem, zawierających emulsję CFA/peptyd.
- Podłącz szklaną strzykawkę typu luer-lock bez tłoka do 3-drożnego nylonowego kranu z 2 męskimi złączami luer-lock. Zamknąć kurek, przesuwając dźwignię w kierunku strzykawki. Ustawić otwarty koniec strzykawki do góry, pozwalając strzykawce działać jak probówka. Umieść go w stojaku na tuby, aby zwiększyć stabilność.
- Odwirować materiał roboczy CFA i roztwór Ag. Dodać objętość peptydu / CFA w stosunku 1:1 do otwartej strzykawki. Wymagane jest 200 μl CFA/Ag (4 x 50 μL) na mysz.
UWAGA: Zazwyczaj około 1 ml preparatu jest tracone w kurku, co zmniejsza ilość dostępną do szczepienia. Dlatego ważne jest, aby uwzględnić to w obliczeniach wymaganej całkowitej objętości.
Przykład: Do immunizacji 5 myszy: (200 μl/zwierzę x 5 zwierząt) + 1 ml dodatkowej objętości = wymagane 2 ml całkowitego CFA/Ag. - Włożyć szklany tłok do strzykawki i trzymając go na miejscu, odwrócić strzykawkę tak, aby kran był skierowany do góry. Przełącz dźwignię kranu na nieużywane złącze żeńskie. Ostrożnie docisnąć szklany tłok w celu usunięcia nadmiaru powietrza ze strzykawki. Ciecz wypełnia drugie męskie przyłącze luer-lock kurka.
- Podłączyć drugą szklaną strzykawkę (tłok całkowicie włożony) do drugiego męskiego złącza luer-lock kurka. Powinien to być zamknięty system 2 szklanych strzykawek połączonych kranem zawierającym jak najmniej nadmiaru powietrza.
- Aby utworzyć emulsję, należy mieszać, naciskając tłoki, aby płyn przepływał naprzemiennie między 2 strzykawkami przez około 2 minuty. Schładzać strzykawki na lodzie przez około 10 minut. Powtarzać schładzanie i mieszanie, aż nastąpi wyraźna zmiana lepkości preparatu, w wyniku czego powstanie bardzo sztywna, biała emulsja. Strzykawki zawierające emulsję należy przechowywać w lodówce w temperaturze 4 °C lub przechowywać na lodzie.
- Przenieść całą emulsję do jednej szklanej strzykawki typu luer-lock, wyjąć pustą szklaną strzykawkę i zastąpić ją strzykawką typu luer-lock o pojemności 1 ml do wstrzykiwań. Napełnić nową strzykawkę emulsją, wyjąć ją z kranu i założyć igłę (25G x 5/8).
- "Przetestuj wodę" emulsję pod kątem konsystencji. Wylej kroplę emulsji do małego naczynia z wodą. Emulsja nie powinna się rozpraszać, co wskazuje, że nadaje się do wstrzykiwań.
- Jeśli emulsja dyspersjonuje się, nie jest gotowa do wstrzyknięcia; przenieść płyn z powrotem do szklanych strzykawek i kontynuować mieszanie, a następnie ponownie schłodzić, aż emulsja stanie się sztywna.
- Ponownie przetestuj emulsję, aż do uzyskania odpowiedniej konsystencji.
- Wstrzyknąć myszom AQP4-/- dawcy podskórnie (s.c.) emulsję zawierającą peptyd AQP4. Każda mysz otrzymuje 4 x 50 μL s.c. zastrzyki (łącznie 200 μL (100 μg peptydu)). 4 miejsca obejmują obie strony dolnej części brzucha, które spływają do pachwinowych węzłów chłonnych (LN) oraz obie strony ściany klatki piersiowej przyśrodkowo do każdej pachy, które spływają do pachowego LN. Transfer adopcyjny będzie wymagał 1-2 zaszczepionych myszy dawców na mysz biorcę.
2. Hodowla limfocytów T i polaryzacja prozapalnych limfocytów T
- 10-12 dni po szczepieniu zbierz LN od myszy.
- W tacce na lód przygotować szalki Petriego o średnicy 60 mm wyposażone w sitko do komórek (rozmiar oczek 70 μm) i zawierające schłodzone pożywki RPMI z 10% inaktywowaną termicznie płodową surowicą bydlęcą (FBS) i 100 U/ml penicyliny-100 μg/ml streptomycyny (ang. pen-strep) (RFPS).
- Poddaj myszy eutanazji przez narażenie na CO2 , a następnie zwichnięcie szyjki macicy. Zanurz myszy w 70% etanolu, a następnie przypnij każdą podkładkę do deski sekcyjnej.
- Wytnij nacięcie skóry w linii środkowej od pachwiny do szyi i w dół każdej nogi. Odciągnij skórę od otrzewnej i przypnij ją mocno do deski. Rozciąć LN pachwinowy i pachowy i umieścić na szalce Petriego zawierającej RFPS, na lodzie. 19
- W przypadku eksperymentów z transferem adopcyjnym należy połączyć LN ze wszystkich zwierząt w tej samej grupie immunizacji. W przypadku analiz cytometrii przepływowej użycia Vβ należy oddzielić LN od poszczególnych zwierząt.
- Umieść sitko komórkowe zawierające LN na probówce wirówkowej o pojemności 50 ml zawierającej RFPS. Użyj płaskiego końca sterylnego tłoka strzykawki o pojemności 5 ml, aby przecisnąć komórki LN przez sitko, przemując 20-30 ml RFPS, aby ułatwić odzyskanie komórek. Utrzymuj komórki LN na lodzie przez cały czas przetwarzania, aż do czasu hodowli.
- Umyć dwukrotnie, odwirować przy 393 x g przez 5 min. Po drugim płukaniu ponownie zawieś komórki LN w pożywce z limfocytów T (TCM). TCM zawiera RPMI z 10% inaktywowanym termicznie FBS, 292 μg/ml L-glutaminy, 110 μg/ml pirogronianu sodu oraz 55 μM 2-merkaptoetanolu i paciorkowca piórowego. Zazwyczaj stosuje się objętość 5 ml TCM na mysz dawcy.
- Policz komórki LN. Oczekiwana wydajność wynosi około 3-6 x 10⁷ komórek LN na uodpornionego dawcę myszy. Odłożyć 3-4 x 10⁶ na test proliferacji (patrz sekcja 3 poniżej).
- Skonfiguruj kultury polaryzujące do transferu adopcyjnego (sekcja 6).
- Przygotuj kulturę polaryzacyjną Th17 składającą się z 5 x 10⁶ komórek LN na ml z 10 μg / ml Ag, 20 ng / ml rekombinowanej mysiej interleukiny (IL)-23 i 10 ng / ml rekombinowanej myszy IL-6 w TCM.
- Alternatywnie, w przypadku polaryzacji Th1, przygotuj hodowlę 5 x 10⁶ komórek LN na ml z 10 μg / ml Ag i 10 ng / ml rekombinowanej myszy IL-12 w TCM.
- Dodać 2 ml (1 x 10⁷ komórek) na dołek polaryzującej mieszaniny kultur do 12-dołkowej płytki. Komórki LN od 2-4 myszy dawców wypełnią jedną 12-dołkową płytkę. Utrzymywać kultury w wilgotnym inkubatorze w temperaturze 37 °C z 5% CO2 przez 72 godziny.
- Sprawdź wzrokowo komórki LN w hodowli pod kątem aktywacji po 48 i 72 godzinach. Aktywowane komórki utworzą rozległe skupiska, a limfocyty T zwiększą swoją wielkość, stając się bardziej pleomorficzne. Wzrost metabolizmu spowoduje obniżenie pH w pożywce, zmieniając kolor z brzoskwiniowego na pomarańczowy. Jeśli pH jest wystarczająco niskie, aby zmienić kolor pożywki na żółty, dodaj 1 ml świeżego TCM, aby zapobiec toksyczności dla komórek w ciągu pozostałych 24 godzin.
- Przejdź do sekcji 6 w celu przeniesienia adopcyjnego. Skuteczność polaryzacji można sprawdzić za pomocą barwienia cytokinami wewnątrzkomórkowymi (ICS), jak opisano w sekcji 5.
- Skonfiguruj kultury przy użyciu LN od pojedynczych myszy do analizy cytometrii przepływowej powierzchniowej ekspresji Vβ (sekcja 4).
- Przygotuj 5 x 10⁶ komórek LN na ml z 10 μg/ml Ag w TCM.
- Dodać 2 ml (1 x 10⁷ komórek) kultury na studzienkę do płytki 12-dołkowej. Kultury należy przechowywać w wilgotnym inkubatorze w temperaturze 37 °C z 5% CO2 przez 10 dni. Przejdź do sekcji 4.
3. Test proliferacji
UWAGA: To ciąg dalszy z sekcji 2.4.
- Przygotuj 3-4 ml komórek LN w probówce, w proporcji 2 x 10⁶ komórek na ml w TCM.
- Delikatnie wymieszaj komórki, kilkakrotnie odwracając probówkę, a następnie przenieś do sterylnego koryta.
- Za pomocą pipetora wielokanałowego umieść 100 μl komórek na basenie na 96-dołkowej płytce do hodowli tkankowej z okrągłym dnem. Zazwyczaj płytka 15 dołków do trzykrotnego testowania stężeń 4 Ag i odniesienia bez Ag.
- Rozcieńczyć Ag w TCM w różnych stężeniach, zwykle 80, 20, 5, 1 i 0 μg/ml (dla 2x zapasów). Dodać 100 μl każdego stężenia w trzech egzemplarzach, aby uzyskać końcowe stężenie 40, 10, 2,5. 0,5 i 0 μg/ml. Inkubować przez około 72 godziny w temperaturze 37 °C.
UWAGA: Kroki od 3.5 do 3.7 dotyczą materiałów radioaktywnych. Właściwe stosowanie, monitorowanie i usuwanie materiałów promieniotwórczych powinno być prowadzone, zgodnie z regulacjami instytucjonalnymi i rządowymi. - Przygotować roboczy roztwór podstawowy 3H-tymidyny (40 μCi/ml), dodając 1 mCi 3H-tymidynę do 25 ml RPMI, i przechowywać go w temperaturze 4 °C. Odpipetować 0,5 ml roztworu roboczego do sterylnego koryta.
- Dodać 25 μl 3H-tymidyny (1 μCi) do dołka za pomocą pipety wielokanałowej. Inkubować przez dodatkowe 18 godzin w temperaturze 37 °C.
- Zbierz komórki na szklaną matę filtracyjną za pomocą 96-dołkowego kombajnu komórkowego i spłucz 70% etanolem. Po wysuszeniu zamknąć matę filtracyjną w plastikowej torbie na próbkę z 5 ml płynu scyntylacyjnego. Zmierz radioaktywność w każdym studzience za pomocą licznika scyntylacyjnego.
4. Analiza cytometrii przepływowej dla ekspresji TCR Vβ na powierzchni komórki
UWAGA: To jest kontynuacja z sekcji 2.6. Przeciwciała przeciwko mysim TCR Vβ 2, 3, 4, 5.1 i 5.2, 6, 7, 8.1 i 8.2, 8.3, 9, 10b, 11, 12, 13, 14 i 17a są dostępne na rynku do testowania ekspresji TCR Vβ.
- W celu wykrycia TCR Vβ należy usunąć limfocyty T z płytki hodowlanej, kilkakrotnie pipetując i przenieść komórki do probówki.
- Przemyć buforem FACS (FB) zawierającym 2% FBS, 0,1% azydku sodu i 2 mM EDTA w PBS.
- Przenieść komórki na 96-dołkową płytkę z dnem V o gęstości 1 x 10⁵ do 3 x 10⁶ komórek na studzienkę. Jeśli badany jest cały panel Vβ, komórki należy rozprowadzić w wielu studzienkach (jedna studzienka na badane Vβ).
- Wyklucz martwe komórki z analizy cytometrii przepływowej poprzez barwienie barwnikiem żywotności ALIVE/DEAD, który reaguje z wolnymi aminami wystawionymi przez komórki martwicze. Postępuj zgodnie z instrukcjami producenta dotyczącymi wirowania i ponownego zawieszania w barwniku żywotności. Inkubować na lodzie przez 10-20 min. Podczas procedur barwienia komórek chroń komórki przed światłem i trzymaj na lodzie.
- Po inkubacji umyj płytkę raz w FB. Aby wykryć TCR Vβ, zawiesić komórki w 100 μl FB zawierającym rozcieńczenie 1:100 przeciwciał dla CD4 (klon RM4-5) i TCR Vβ. Inkubować przez 15-60 minut na lodzie.
- Umyj płytkę raz w FB i utrwal komórki, dodając 200 μl 4% paraformaldehydu rozcieńczonego w PBS. Inkubować przez 20 minut na lodzie. Umyj płytkę w FB i przeanalizuj za pomocą cytometrii przepływowej.
5. Analiza cytometryczna przepływu do wewnątrzkomórkowej produkcji cytokin
- W przypadku barwienia cytokin wewnątrzkomórkowych (ICS) należy potraktować hodowle limfocytów T odczynnikiem hamującym transport białek w stosunku 1:1000 (np. GolgiPlug) w TCM, 4 godziny przed ICS, aby zapobiec wydzielaniu cytokin. W tym czasie aktywuj limfocyty T za pomocą 50 ng/ml 12-mirystynianu 13-octanu forbolu (PMA) i 500 ng/ml jonomycyny w celu indukowania produkcji białka.
- Po 4 godzinach hodowli w temperaturze 37 °C usunąć komórki z płytki hodowlanej, pipetując w górę i w dół, i przenieść do probówki wirówkowej (15 lub 50 ml).
- Umyj z FB. Ponownie zawiesić komórki w FB i przenieść na 96-dołkową płytkę z dnem w kształcie litery V o gęstości 5 x 10⁵ do 3 x 10⁶ komórek na studzienkę.
- Wybarwić komórki barwnikiem żywotności, jak opisano powyżej (sekcja 4.2). Po inkubacji umyj płytkę raz w FB.
- Dodać przeciwciała do wykrywania markerów powierzchniowych w następujący sposób:
- W celu wykrycia markerów powierzchniowych zawiesić komórki w 100 μl FB zawierającym rozcieńczenie przeciwciała dla CD4 w stosunku 1:100 (klon RM4-5).
- Opcjonalnie należy uwzględnić przeciwciała dla B220 (klon 30-F11) i CD11b (klon M1/70) w rozcieńczeniu 1:100, aby poprawić bramkowanie odpowiednio komórek B i monocytów/makrofagów. Ogólnie rzecz biorąc, PE-Cy7 anty-CD4, FITC anty-B220 i PerCP-Cy5.5 anty-CD11b działają dobrze. Wybór koniugatów przeciwciało/fluorochrom powinien być podyktowany konfiguracją cytometru przepływowego, który ma być użyty do analizy, a optymalne stężenia przeciwciał należy określić empirycznie.
- Inkubować przez 15-60 minut na lodzie.
- Umyj płytkę FB i ponownie zawieś komórki w 200 μl roztworu utrwalającego/przepuszczalnego na 20 minut na lodzie. To utrwali komórki i przepuszczalnie błony.
- W celu utrzymania przepuszczalności błon komórkowych podczas barwienia wewnątrzkomórkowego należy użyć buforu Perm/Wash (PW) (rozcieńczonego w stosunku 1:10 z wywaru 10X) zamiast FB. Umyj studzienki w 200 μl PW.
- W przypadku ICS należy przygotować rozcieńczenie przeciwciał przeciwko interferonowi (IFN)-γ i IL-17A w stosunku 1:100 przy użyciu 1x PW. Jedną z opcji jest APC anty-IFN-γ (klon XMG1.2) i PE anty-IL-17A (klon eBio17B7), które działają dobrze. Zawiesić komórki w 100 μl wewnątrzkomórkowego koktajlu przeciwciał, a następnie inkubować przez co najmniej 15 minut. Możliwe jest również kontynuowanie barwienia przez noc w temperaturze 4 °C.
- Umyć studzienki w 200 μl PW i ponownie zawiesić w FB do cytometrii przepływowej.
- Równolegle przygotuj niebarwioną próbkę (komórki w FB bez przeciwciał) w celu optymalizacji napięć detektora oraz pojedyncze barwione próbki dla każdego pojedynczego fluorochromu (tj. komórek lub kulek kompensacyjnych wybarwionych tylko jednym przeciwciałem/fluorochromem) w celu określenia wartości rozlewania się kompensacji.
- Za pomocą cytometru przepływowego uzyskaj ≥10 000 komórek (zdarzenia), bramkując na żywotnych (ŻYWYCH/MARTWYCH) komórkach CD4 +. Aby zapewnić dokładne bramkowanie limfocytów T, wyklucz komórki B220 + i CD11b + (odpowiednio limfocyty B i monocyty / makrofagi). W subpopulacji limfocytów T CD4 + określ odsetek komórek wykazujących ekspresję IFN-γ (linia Th1) lub IL-17A (linia Th17).
6. Adoptywny transfer patogennych limfocytów T specyficznych dla AQP4
UWAGA: Ten krok wynika z Sekcji 2.5: Hodowla limfocytów T i prozapalna polaryzacja limfocytów T.
- Odzyskaj spolaryzowane komórki z płytek 12-dołkowych, pipetując w górę iw dół w celu usunięcia i przenosząc je do probówki o pojemności 50 ml. Przechowywać na lodzie do momentu wstrzyknięcia.
- Policz komórki, przemyj dwukrotnie w zimnym PBS i przygotuj zawiesinę 1 x 10⁸ komórek/ml w PBS. Ogólnie rzecz biorąc, wstrzyknij komórki w ciągu godziny.
- Delikatnie wymieszać komórki, obracając je i przenieść do strzykawki o pojemności 1 ml w momencie wstrzyknięcia. Podawać 200 μl komórek (2 x 10⁷) dożylnie (dożylnie) każdej myszy przez żyłę ogonową.
- Wstrzyknąć każdej myszy biorcy i.p. 200 ng toksyny B. pertussis rozcieńczonej w 200 μl PBS tego dnia i 2 dni później. Codziennie monitoruj myszy pod kątem oznak klinicznej choroby.
7. Ocena kliniczna ATCA
- Codziennie badaj myszy biorców pod kątem klinicznych objawów autoimmunizacji OUN. Ogólnie rzecz biorąc, myszy będą wykazywać oznaki autoimmunizacji OUN 5-8 dni po adoptywnym transferze limfocytów T specyficznych dla AQP4. Myszy będą wykazywać kliniczne objawy dysfunkcji neurologicznej. Pomocne jest przeprowadzenie ocen na naiwnej myszy w celu zdefiniowania normalnych zdolności myszy.
- Oceń myszy pod kątem utraty tonu ogona. Delikatnie chwyć myszy u podstawy ogona i unieś je do pionu. Ogon, który opada w sposób ciągły, jest opisywany jako utrata tonu ogona (wynik 1). Utrata tonu ogona jest często pierwszą oznaką klinicznej choroby.
- Przetestuj odruch prostowania, kładąc mysz na plecach na płaskiej powierzchni. Powolne prostowanie jest oznaką braku koordynacji tułowia (wynik 2). Naiwna mysz całkowicie oprze się wszelkim próbom umieszczenia jej na grzbiecie, więc każde spowolnienie w zdolności do skrętu w prawo jest oceniane jako dysfunkcja. Typowe jest testowanie myszy 3-4 razy pod kątem tego odruchu.
- Oceń postawę i poruszanie się. Myszy zaczynają wykazywać zmianę postawy powodującą obniżenie lub przeciąganie bioder podczas poruszania się (wynik 2,5). Dalsze choroby skutkują monoplegią, całkowitym paraliżem jednej kończyny tylnej (wynik 3,0) i paraplegią, pełnym paraliżem obu kończyn tylnych (wynik 3,5). Umiarkowana kwadrapareza, osłabienie wszystkich czterech kończyn, powoduje bardzo powolny ruch do przodu (wynik 4). Ciężka kwadrapareza prawie nie pozwala na ruch do przodu (wynik 4,5). W końcu, przy ciężkiej chorobie, mogą stać się w stanie agonalnym lub umrzeć (wynik 5).
- Podawać myszom, które tracą zdolność do pobierania płynów lub pokarmów stałych, 1 ml 5% glukozy w soli fizjologicznej. Alternatywnie należy stosować suplementację płynnymi kubkami żelowymi, wysokokalorycznym żelem i z bekonem, aby przeciwdziałać odwodnieniu i niedoborowi żywności. Eutanazja konających myszy.
8. Przygotowanie tkanek i histologia
- Znieczulij myszy 100 mg/kg ketaminy i 10 mg/kg ksylazyny, a następnie przypnij każdą poduszkę stopy do deski preparcyjnej.
- Otwórz klatkę piersiową, odsłaniając serce. Naciąć wątrobę, aby umożliwić odpływ krwi. Przymocuj igłę motylkową do rurki pompy o zmiennej prędkości miniprzepływu, używając oddzielnego zbiornika na PBS i 10% formalinę. Włóż igłę do lewej komory serca i ukrwij 5 ml PBS, a następnie 25 ml 10% formaliny.
- Zdejmij głowę, a następnie oczy. Przetwarzaj oczy i siatkówki zgodnie z wcześniejszym opisem20. Przeciąć oczodoły, włóż nożyczki do nosa i przetnij czaszkę od przodu do tyłu z każdej strony.
- Wyjmij czaszkę, odsłoń nerwy wzrokowe, przetnij skrzyżowanie wzrokowe i umieść w kasecie między 2 piankowymi podkładkami.
- Zanurzyć w 10% formalinie (24 h), a następnie 50% etanolu (24 h), a następnie przenieść do 70% etanolu.
- Usuń mózg i kręgosłup i umieść w 10% formalinie. Szeregowe cięcie mózgów w płaszczyźnie koronalnej; Przekrój rdzenia kręgowego w strzałkowej (około połowy) i szeregowej płaszczyźnie czołowej (około 20 przekrojów na mysz).
- Rutynowo przetwarzaj próbki CNS pod kątem zatapiania parafiny. Wybarwić skrawki o grubości 8 μm hematoksyliną i eozyną (nerwy wzrokowe) lub Luxol fast blue-hematoksyliną i eozyną (mózg i rdzeń kręgowy).
- Oceń nerwy wzrokowe pod kątem obecności stanu zapalnego w obrębie nerwu i otaczających opon mózgowych (zapalenie nerwu wzrokowego) lub głównie w otaczających oponach mózgowych (zapalenie krocza nerwu wzrokowego).
- Policz ogniska zapalne opon mózgowych i miąższu (>10 skupionych komórek jednojądrzastych) w próbkach mózgu i rdzenia kręgowego dla każdej myszy.
9. Obrazowanie siatkówki in vivo za pomocą optycznej koherentnej tomografii (OCT)
UWAGA: Obrazowanie siatkówki OCT w domenie spektralnej myszy jest wykonywane przy użyciu komercyjnego sprzętu (np. Spectralis z TruTrack eye tracker) w celu uzyskania spójnej orientacji oka i redukcji artefaktów ruchu.
- Pięć minut przed obrazowaniem rozszerz źrenice 1% tropikamidem (jedna kropla na oko) i umieść mysz do obrazowania w komorze indukcyjnej znieczulenia, zapewniając stały przepływ 2 litrów na minutę (1,5% izofluranu). Włącz matę grzewczą i przygotuj klatkę rekonwalescencji po znieczuleniu.
- Umieść mysz na cylindrze obrazującym i odpowiednio przekieruj przepływ znieczulenia. Chroń oczy 0,3% hydroksypropylometylocelulozą, aby utrzymać nawilżenie oka i zapewnić ciągłość refrakcji. Umieść niestandardową soczewkę kontaktową na badanym oku.
- Kierując się obrazem dna oka w podczerwieni, skieruj laser na oko, upewniając się, że wiązka jest wyśrodkowana na głowie nerwu wzrokowego. Pionowe i poziome skany OCT powinny potwierdzić, że siatkówka leży prostopadle do lasera.
- Wykonaj 25 skanów B w trybie wysokiej rozdzielczości i rasteryzuj z 30 uśrednionych skanów A.
- Po zobrazowaniu obu oczu zdejmij soczewkę kontaktową i nałóż żel okulistyczny. Zostaw mysz w ciepłej klatce regeneracyjnej.
10. Przetwarzanie i analiza OCT
- Korzystaj z modułowego oprogramowania do obrazowania do automatycznej segmentacji.
- Ręcznie skoryguj segmenty odpowiadające wewnętrznej membranie ograniczającej (ILM) i wewnętrznej warstwie splotowatej (IPL), reprezentujące granice wewnętrznych warstw siatkówki (IRL)21.
- Sprawdź, czy warstwa włókien nerwowych siatkówki (RNFL) i warstwa komórek zwojowych (GCL) znajdują się w granicach IRL i nie zachodzą na siebie.
- Oblicz grubości IRL za pomocą badania Early Treatment Diabetic Retinopathy Study (ETDRS)2 siatki o średnicach 1, 2 i 3 mm wyśrodkowanych na tarczy nerwu wzrokowego i wyeksportuj do pliku arkusza kalkulacyjnego. Oprogramowanie oblicza grubość każdej warstwy siatkówki, uśredniając każdy sektor siatki. Dlatego wykluczony jest segment centralny, odpowiadający głowie nerwu wzrokowego.
- Analizuj różnice statystyczne między grupami w każdym punkcie czasowym. Przeanalizuj oba oczy dla każdej myszy, używając uogólnionych równań estymujących z wymienną macierzą korelacji i korektami dla wewnątrzobiektowych korelacji między oczami21.
Wyniki
W niniejszym protokole wykorzystaliśmy limfocyty T od dawców będących myszami C57BL/6 AQP4-/-. Podskórna immunizacja tych myszy peptydami AQP4 p135-153 lub p201-20, które zawierają patogenne epitopy limfocytów T, wywoła silne odpowiedzi proliferacyjne limfocytów T w drenujących węzłach chłonnych (Rysunek 1), podczas gdy dwa te peptydy indukowały znacznie słabszą proliferację limfocytów T u myszy WT. W porównaniu z tym immunizacja peptydem AQP4 p91-10, zawierającym niepatogenny determinant limfocytów T AQP413, lub MOG p35-5, peptydem mieliny aktywującym limfocyty T wywołujące eksperymentalne autoimmunizacyjne zapalenie mózgu i rdzenia kręgowego (EAE)2,23,24, indukowała podobną skalę proliferacji limfocytów T u myszy AQP4-/- oraz WT. Analiza wykorzystania TCR za pomocą cytometrii przepływowej z barwieniem poszczególnych łańcuchów Vβ lub rodzin Vβ wykazała, że limfocyty T specyficzne dla p135-153 i p201-20 pochodzące od myszy AQP4-/- wykorzystywały unikalne repertuary TCR. Selektywna hiperproliferacja AQP4 p135-153 i p201-20 u myszy AQP4-/-, a także unikalne wykorzystanie TCR (Rysunek 2), wskazały, że patogenne odpowiedzi limfocytów T na te determinanty są normalnie regulowane przez negatywną selekcję grasicową, co podkreśla znaczenie zastosowania limfocytów T od dawców AQP4-/- w niniejszym protokole.
Przed transferem adoptywnym w celu indukcji ATCA, komórki węzłów chłonnych od myszy uwrażliwionych na peptyd AQP4 hodowano in vitro przez trzy dni w warunkach polaryzacji do Th17 lub Th1. Stopień polaryzacji dawczych limfocytów T CD4+ potwierdzono za pomocą wewnątrzkomórkowego barwienia cytokin (ICS) i zmierzono metodą cytometrii przepływowej (Rysunek 3). Naiwnym myszom biorcom wstrzyknięto dożylnie 2 x 10⁷ dawczych limfocytów T specyficznych dla peptydu AQP4. Po około sześciu dniach u niemal 10% myszy biorców rozwinęły się kliniczne objawy autoimmunologicznej choroby OUN, w tym wiotki ogon i paraliż kończyn tylnych (Rysunek 4). Polaryzowane do Th17 limfocyty T specyficzne dla AQP4 indukowały cięższy przebieg kliniczny choroby niż limfocyty T specyficzne dla AQP4 polaryzowane do Th1. Reprezentatywna mysz, która otrzymała limfocyty T specyficzne dla peptydu AQP4 polaryzowane do Th17 i u której rozwinął się całkowity paraliż kończyn tylnych (paraplegia), jest przedstawiona w Filmie 1. W przeciwieństwie do myszy, u których rozwinęło się EAE po podaniu Th17 specyficznych dla MOG, myszy biorcy powróciły do zdrowia po chorobie klinicznej indukowanej przez Th17 specyficzne dla AQP4. Podobnie jak w przypadku EAE indukowanego przez komórki Th17 specyficzne dla MOG p35-5, choroba kliniczna indukowana przez komórki Th17 specyficzne dla AQP4 p135-153 lub p201-20 wiązała się z naciekaniem komórek jednojadrowych w miąższu OUN i oponach (Rysunek 5). W przypadku autoimmunizacji OUN indukowanej przez Th17 specyficzne dla AQP4 zmiany były liczniejsze w oponach niż w miąższu.
Zaangażowanie nerwu wzrokowego wykazano za pomocą oceny histologicznej oraz seryjnych badań OCT. Zarówno komórki Th17 specyficzne dla AQP4, jak i specyficzne dla MOG indukowały stan zapalny nerwu wzrokowego, który charakteryzował się obecnością komórek jednuklearnych. Podczas gdy komórki Th17 specyficzne dla AQP4 wywoływały okołozapalenie nerwu wzrokowego, komórki Th17 specyficzne dla MOG indukowały ciężkie zapalenie nerwu wzrokowego (Rysunek 5). W seryjnych badaniach OCT stan zapalny nerwu wzrokowego był widoczny poprzez obrzęk i zwiększenie grubości wewnętrznej warstwy siatkówki (IRL) w przebiegu choroby klinicznej indukowanej przez komórki Th17 specyficzne dla AQP4 lub MOG (Rysunek 6). W przypadku autoimmunizacji OUN indukowanej przez Th17 specyficzne dla AQP4, grubość IRL powróciła do wartości wyjściowej w miarę zdrowienia myszy z choroby klinicznej. Przeciwstawnie, utrzymywanie się EAE indukowanego przez komórki Th17 specyficzne dla MOG odpowiadało pocienczeniu IRL i, jak wykazaliśmy wcześniej17, wiązało się z utratą komórek zwojowych siatkówki.
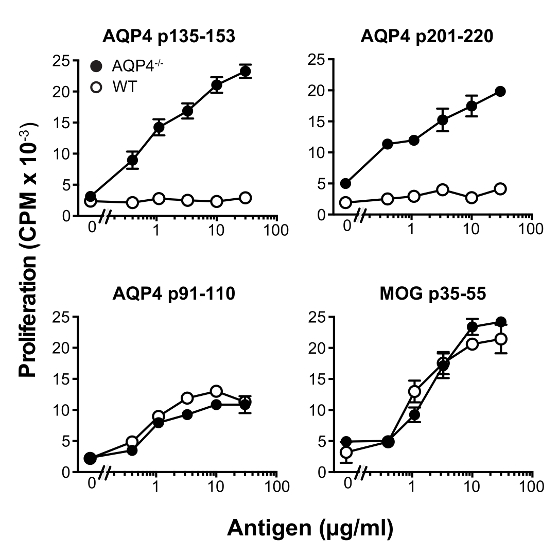
Rycina 1AQP4 p135-153 oraz p201-20 wywołują silną proliferację limfocytów T w AQP4-/- myszy, ale nie myszy WT. Myszy immunizowano podskórnie wskazanymi peptydami w CFA. Po jedenastu dniach usunięto węzły chłonne, a następnie inkubowano je bez antygenu lub z peptydem użytym do immunizacji. Proliferację mierzono za pomocą 3Włączenie H-tymidyny (średnia ± SEM, reprezentatywne dla 5 eksperymentów). Aby wyświetlić powiększoną wersję tej ryciny, kliknij tutaj.
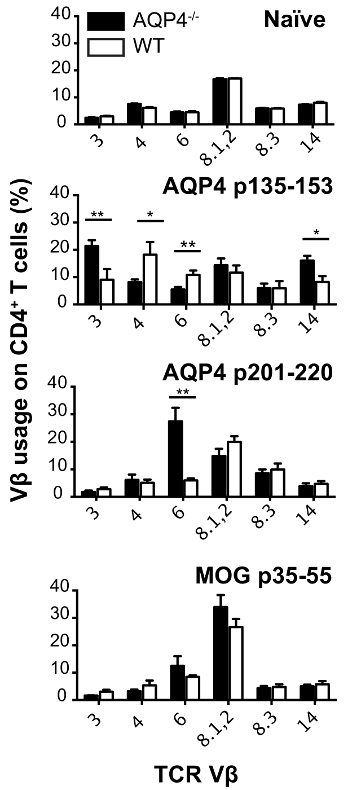
Rycina 2Limfocyty T specyficzne dla AQP4 z AQP4-/- myszy wykorzystują unikalne repertuary TCR. AQP4-/- myszy WT zaszczepiono wskazanymi peptydami. Po jedenastu dniach pobrano węzły chłonne i hodowano je z peptydem użytym do immunizacji. Zebrano komórki. Wykorzystanie TCR Vβ analizowano za pomocą cytometrii przepływowej (średnia ± SEM, n = 5). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
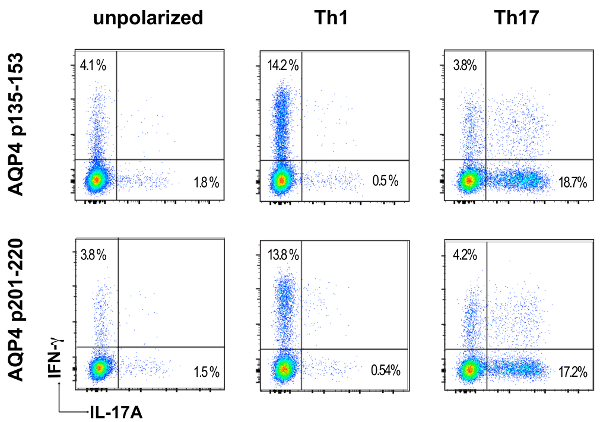
Rysunek 3Prozapalna polaryzacja donorowych limfocytów T specyficznych dla AQP4. Jedenaście dni po immunizacji za pomocą peptydów AQP4 p135-153 lub p201-20 pobrano komórki węzłów chłonnych i hodowano je w obecności peptydów użytych do immunizacji w warunkach niepolaryzujących oraz w warunkach polaryzujących w kierunku Th1 lub Th17. Polaryzację Th17 lub Th1 badano za pomocą ICS i cytometrii przepływowej pod kątem obecności odpowiednio IL-17 lub IFN-γ. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej figury.
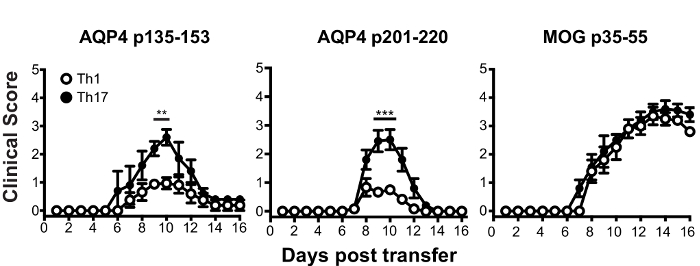
Rysunek 4T komórki specyficzne dla AQP4 spolaryzowane w kierunku Th17 indukują paraliż u myszy biorców typu WT. Myszy biorcy typu WT otrzymały 2 x 10⁷ donorskie limfocyty T zpolaryzowane do fenotypu Th17, swoiste dla p135-153 lub p201-20 białka AQP4 z AQP4-/- myszy. Jako kontrolę dodatnią zastosowano limfocyty T swoiste dla MOG o polaryzacji Th17. Wyniki są reprezentatywne dla 8 eksperymentów (n = 5/grupa). * p <0,05, ** p <0,01, *** p <0.001. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej figury.
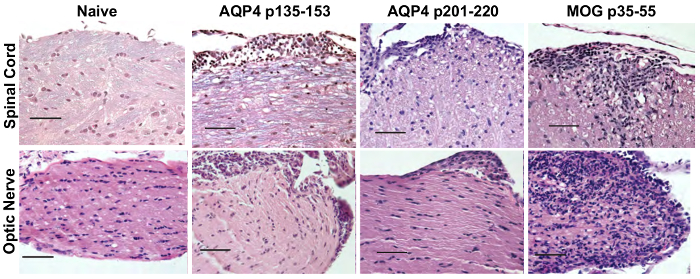
Rysunek 5Komórki Th17 specyficzne dla AQP4 indukują zapalenie wzrokowo-rdzeniowe u myszy typu WT. Myszy biorcze otrzymały 2 x 10⁷ komórki Th17 od dawcy, aktywowane AQP4 p135-153 lub p201-20, z AQP4-/- myszy lub komórki specyficzne dla Th17 MOG p35-5 i uśpiono je po 10 dniach. Przygotowano tkanki rdzenia kręgowego i nerwu wzrokowego, a następnie zabarwiono je H&E/LFB w celu oceny odpowiednio oznak stanu zapalnego i demielinizacji. Wyniki są reprezentatywne dla 5 myszy w grupie. Pasek skali = 50 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
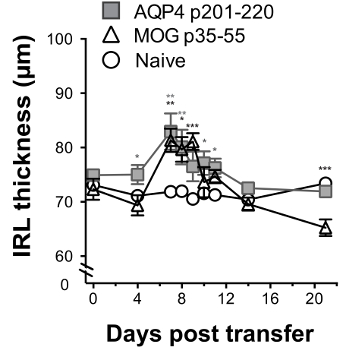
Rycina 6Zapalenie nerwu wzrokowego indukowane swoistymi dla AQP4 komórkami Th17 może być monitorowane za pomocą podłużnego badania OCT siatkówki. Myszy biorcy typu WT otrzymały 2 x 10⁷ donora spolaryzowane w kierunku Th17 limfocyty T swoiste dla AQP4 p201-20 lub MOG p35-5 w dniu 0. Badanie przeprowadzono za pomocą OCT w dniu 0 (przed podaniem limfocytów T), a następnie w dniach 4, 7, 8, 9, 10, 1, 14 i 21. Zmierzono grubość IRL (średnia ± SEM). Statystyki wskazują na porównanie z kontrolą naiwną. Wyniki są reprezentatywne dla 3 eksperymentów (5 myszy/grupa). * p <0,05, ** p <0,01, *** p <0.001. Kliknij tutaj, aby wyświetlić powiększoną wersję tej figury.
Dyskusja
AQP4 został zidentyfikowany jako główny cel w NMO IgG w 2005 r.3. Następnie uznano, że ważne będzie ustanowienie ukierunkowanego na AQP4 zwierzęcego modelu autoimmunizacji OUN. Taki model może być przydatny do zbadania, w jaki sposób limfocyty T i B specyficzne dla AQP4 uczestniczą w rozwoju autoimmunizacji OUN oraz do przetestowania potencjalnych środków terapeutycznych dla NMO. Chociaż identyfikacja epitopów limfocytów T specyficznych dla AQP4 u myszy typu dzikiego została po raz pierwszy zgłoszona w 2010 roku13, limfocyty T reagujące na te epitopy nie powodowały choroby klinicznej ani histologicznej14,17. Niemożność wygenerowania modelu autoimmunizacji OUN opartego na reaktywności immunologicznej na AQP4 pozostawała zagadką do 2015 roku, kiedy Jones i wsp.25 odkryło, że limfocyty T AQP4 p135-153 od myszy AQP4-/- były zdolne do wywoływania klinicznych i histologicznych objawów autoimmunizacji OUN u myszy WT. Co ciekawe, przewiduje się, że AQP4 p135-153 wiąże MHC II (I-A b) z wysokim powinowactwem17. Przewiduje się, że tylko jedna inna sekwencja aminokwasów AQP4, 201-220, wiąże I-Ab z podobnie wysokim powinowactwem. Rzeczywiście, zaobserwowaliśmy, że AQP4 p135-153 i p201-220 wywołują silną proliferację u myszy AQP4-/-, ale nie WT. Tutaj pokazaliśmy, w jaki sposób można wyizolować i rozprężyć encefalitogenne limfocyty T reaktywne Th17 AQP4 p135-153- i p201-220 od myszy AQP4-/. Po przeniesieniu do myszy biorcy WT, komórki Th17 reagujące na AQP4 dawcy wywołały paraliż, któremu towarzyszyły nacieki komórek jednojądrzastych w rdzeniu kręgowym i nerwie wzrokowym. Uszkodzenie aferentnego układu wzrokowego jest dobrze znane u pacjentów z AQP4-serododatnim NMOSD26. Tutaj zaobserwowaliśmy, że zapalenie nerwu wzrokowego wywołane przez komórki Th17 reaktywne AQP4 i MOG było wyraźne. Podczas gdy komórki Th17 specyficzne dla AQP4 indukowały zapalenie krocza nerwu wzrokowego, komórki Th17 specyficzne dla MOG indukowały ciężkie zapalenie nerwu wzrokowego. Opisaliśmy również techniki stosowane do monitorowania zapalenia nerwu wzrokowego wywołanego przez limfocyty T specyficzne dla AQP4 i specyficzne dla MOG za pomocą szeregowego OCT. Inni badacze powinni teraz być w stanie zastosować opisane tutaj protokoły, aby posunąć naprzód własne badania skoncentrowane na patogennych mechanizmach ATCA.
W naszym protokole można łatwo uniknąć trzech potencjalnych pułapek. Po pierwsze, adoptywny transfer ATCA wymaga użycia limfocytów T specyficznych dla AQP4 od myszy dawców AQP4-/- . W szczególności limfocyty T specyficzne dla dawcy WT AQP4 p135-153 nie powodowały ATCA u myszy WT biorcy. Po drugie, ważne jest, aby wykonać "test wodny" z kroplą emulsji peptydowej / CFA przed immunizacją myszy AQP4-/- (krok protokołu 1.5). Emulsja nie powinna dyspergować w wodzie, gdy nadaje się do wstrzykiwań s.c. Jeśli emulsja się rozproszy, należy ją ponownie wymieszać, ponownie schłodzić i powtórzyć próbę wodną. Wreszcie, aktywowane limfocyty T specyficzne dla antygenu OUN dawcy indukują autoimmunizację OUN skuteczniej niż limfocyty T w stanie spoczynku. Należy dokonać oględzin tych kultur pod mikroskopem świetlnym przed pobraniem limfocytów T dawcy w celu transferu adoptywnego. Szybko dzielące się komórki mogą tworzyć klastry, które można łatwo zidentyfikować. Ponadto, gdy hodowle zawierają wiele aktywowanych limfocytów T, pożywka może zmienić kolor z różowego na pomarańczowy, a nawet żółty z powodu obniżenia pH. Można również ocenić aktywację limfocytów T węzłów chłonnych AQP4 dawcy do proliferacji przez inkorporację 3H-tymidyny, jak opisano w kroku 3 protokołu.
Nasze odkrycie, że dwa patogenne epitopy limfocytów T AQP4 są (1) przewidywane do wiązania MHC II z wysokim powinowactwem i (2) wywołują silne odpowiedzi proliferacyjne w AQP4 - / -, ale nie u myszy WT, sugeruje, że limfocyty T ukierunkowane na te determinanty są zwykle kontrolowane przez negatywną selekcję grasicy17. Repertuar TCR wykorzystywany do rozpoznawania AQP4 p135-153 i p201-220 u myszy AQP4-/- jest unikalny (Figura 2), co jest również zgodne z delecją klonalną, w której pośredniczą komórki nabłonka rdzeniowego grasicy. Inne mechanizmy tolerogenne mogą normalnie hamować odpowiedź immunologiczną na AQP4. Po naszym wstępnym raporcie17, inna grupa wykazała również, że AQP4 p201-220 zawiera encefalitogenny determinant limfocytów T27. Gdy myszy z niedoborem limfocytów T α/β (TCRα-/-) zostały odtworzone za pomocą limfocytów T AQP4-/- CD4 + , możliwe było wywołanie encefalitogennej odpowiedzi limfocytów T specyficznej dla AQP4, ale nie odpowiedzi humoralnej specyficznej dla AQP4, co oznacza, że u myszy WT odpowiedzi komórek B specyficzne dla AQP4, podobne do odpowiedzi limfocytów T specyficznych dla AQP4, podlegają selekcji negatywnej. Rzeczywiście, utrata aksonów rdzenia kręgowego i RGC, której nie zaobserwowano u myszy WT z ATCA indukowanym przez same limfocyty T specyficzne dla AQP4, może wymagać udziału patogennych przeciwciał specyficznych dla AQP4. Oczywiste jest, że mysie modele autoimmunizacji OUN ukierunkowanej na AQP4 będą nadal ewoluować, gdy dowiemy się więcej o mechanizmach tolerogennych normalnie kontrolujących odporność limfocytów T i komórek B specyficznych dla AQP4.
Opracowywane są również inne modele autoimmunizacji OUN ukierunkowanej na AQP4 6,16,28,29,30. Każdy z nich może oferować korzyści w badaniu określonych aspektów, które są istotne dla patogenezy NMO. Limfocyty T specyficzne dla AQP4 zostały zidentyfikowane u szczurów WT 6,16,29. Te limfocyty T specyficzne dla AQP4 spowodowały zmiany histologiczne autoimmunizacji OUN, ale, podobnie jak w przypadku obserwacji u myszy, limfocyty T specyficzne dla AQP4 szczura WT nie powodują znaczących objawów klinicznych choroby. Dlatego mechanizmy tolerancji ograniczające odpowiedzi immunologiczne specyficzne dla limfocytów T i limfocytów B AQP4 u myszy WT działają również u szczurów. Niezależnie od tego, nie należy lekceważyć mocy wykorzystania modeli mysich do badania mechanizmów związanych z patogenezą choroby. Bogactwo myszy nokautujących, transgenicznych i reporterowych może być korzystne. Należy również zauważyć, że kilka fundamentalnych odkryć w zakresie autoimmunizacji zostało dokonanych przy użyciu mysich modeli EAE. Na przykład wykazanie, że klony limfocytów T specyficzne dla własnego antygenu mogą pośredniczyć w chorobie autoimmunologicznej31,32, identyfikacja roli kostymulacji limfocytów T w autoimmunizacji33 i odkrycie szlaku rozwojowego różnicowania Th1734 zostały po raz pierwszy opisane przy użyciu mysich modeli EAE. Korzystając z opracowanego przez nas mysiego modelu ATCA, mamy teraz środki do badania rozwoju i regulacji patogennych odpowiedzi immunologicznych specyficznych dla AQP4 in vivo, co powinno dostarczyć ważnych informacji związanych z patogenezą NMO.
Oświadczenia
S.A. Sagan, A. Cruz-Herranz, C.M. Spencer, P.P. Ho, L. Steinman, A.J. Green i R.A. Sobel nie informują o żadnych ujawnieniach. S.S. Zamvil jest zastępcą redaktora naczelnego czasopisma Neurology, Neuroimmunology and Neuroinflammation oraz członkiem rady doradczej Międzynarodowego Towarzystwa Neuroimmunologicznego. Zasiadał w radzie redakcyjnej czasopism Journal of Clinical Investigation, The Journal of Immunology i The Journal of Neurological Sciences, a także był członkiem komitetu ds. przeglądu grantów dla sekcji badawczej National Institutes of Health (NIH) Clinical Neuroimmunology and Brain Tumors (CNBT) oraz National Multiple Sclerosis Society (NMSS). Pełnił funkcję konsultanta i otrzymał honoraria od Biogen-Idec, EMD-Serono, Genzyme, Novartis, Roche/Genentech i Teva Pharmaceuticals, Inc., a także zasiadał lub zasiada w Radach Monitorujących Bezpieczeństwa Danych w firmach Lilly, BioMS, Teva i Opexa Therapeutics. Obecnie dr Zamvil otrzymuje granty badawcze od NIH, NMSS, The Maisin Foundation, Biogen i Celgene.
Podziękowania
Wsparcie zostało udzielone S.S.Z. przez National Institute of Health (RO1 AI073737 i RO1 NS092835-01), National Multiple Sclerosis Society (RG 4768, RG 5179 i RG 5180), Maisin Foundation i Guthy Jackson Charitable Foundation.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| M. tuberculosis H37Ra | BD Difco | 231141 | Dessicated, killed M. tuberculosis |
| Incomplete Freund's Adjuwant | BD Difco | 263910 | |
| AQP4 peptide p135-153 | Genemed | Niestandardowa | sekwencja peptydowa syntezy: LVTPPSVVGGLGVTMVHGN |
| Peptyd AQP4 p201-220 | Genemed | Niestandardowa | sekwencja peptydowa syntezy: HLFAINYTGASMNPARSFGP |
| Peptyd MOG p35-55 | Genemed / Auspep | Niestandardowa | sekwencja peptydowa syntezy: MEVGWYRSPFSRVVHLYRNGK |
| 3-kierunkowy kran | Kimble | 420163-4503 | |
| HyClone Płodowa surowica bydlęca (scharakteryzowana) | GE Opieka zdrowotna Nauki | biologiczne SH30071 | |
| Rekombinowana mysz IL-23 | R& D Systems (BioTechne) | 1887-ML | |
| Rekombinowana mysz IL-6 | R& D Systems (BioTechne) | 406-ML | |
| Mysz rekombinowana IL-12 | R& D Systems (BioTechne) | 419-ML | |
| Tymidyna [Metylo-3H] | PerkinElmer | NET027 | |
| Maty filtracyjne z włókna szklanego | PerkinElmer | 1450-421 | |
| Przeciwciała anty-mysie | eBioscience (Affymetrix) | [różne] | |
| Anty-mysz TCR Vβ Panel przesiewowy | BD Biosciences | 557004 | |
| LIVE/DEAD Możliwe do naprawienia barwienie martwych komórek | ThermoFisher Scientific | [różne] | |
| Paraformaldehyd (16%) | Mikroskopia elektronowa Sciences | 15710 | |
| Zestaw roztworu do utrwalania/przepuszczalności z GolgiPlug | BD Biosciences | 555028 | |
| 12-mirystynian-octan 13-mirysianu Phorbol (PMA) | Sigma-Aldrich | P8139 | |
| Jomomycyna (sól wapniowa) | Sigma-Aldrich | I0634 | |
| Toksyna krztuścowa z B. pertussis | List Laboratoria biologiczne | 181 | |
| 10% formalina | VWR | 89370-094 | |
| Pompa perystaltyczna o zmiennym przepływie | Fisher Scientific | 13-876-2 | |
| Piankowe podkładki do biopsji, prostokątne | Fisher Scientific | 22-038-221 | |
| Isothesia (izofluran, USP) | Henry Schein Zdrowie zwierząt | 050033 NDC: 11695-0500-2 | |
| Tropicamid Roztwór okulistyczny, USP (1%) | Akorn | NDC: 17478-102-12 | |
| Platforma obrazowania diagnostycznego Spectralis | Heidelberg Engineering |
Bibliografia
- Hardy, T. A., et al. Atypical inflammatory demyelinating syndromes of the CNS. Lancet Neurol. 15 (9), 967-981 (2016).
- Lennon, V. A., et al. A serum autoantibody marker of neuromyelitis optica: distinction from multiple sclerosis. Lancet. 364 (9451), 2106-2112 (2004).
- Lennon, V. A., Kryzer, T. J., Pittock, S. J., Verkman, A. S., Hinson, S. R. IgG marker of optic-spinal multiple sclerosis binds to the aquaporin-4 water channel. J Exp Med. 202 (4), 473-477 (2005).
- Zamvil, S. S., Slavin, A. J. Does MOG Ig-positive AQP4-seronegative opticospinal inflammatory disease justify a diagnosis of NMO spectrum disorder. Neurol Neuroimmunol Neuroinflamm. 2 (1), 62(2015).
- Bennett, J. L., et al. Intrathecal pathogenic anti-aquaporin-4 antibodies in early neuromyelitis optica. Ann Neurol. 66 (5), 617-629 (2009).
- Bradl, M., et al. Neuromyelitis optica: pathogenicity of patient immunoglobulin in vivo. Ann Neurol. 66 (5), 630-643 (2009).
- Nurieva, R. I., Chung, Y. Understanding the development and function of T follicular helper cells. Cell Mol Immunol. 7 (3), 190-197 (2010).
- Lucchinetti, C. F., et al. The pathology of an autoimmune astrocytopathy: lessons learned from neuromyelitis optica. Brain Pathol. 24 (1), 83-97 (2014).
- Zekeridou, A., Lennon, V. A. Aquaporin-4 autoimmunity. Neurol Neuroimmunol Neuroinflamm. 2 (4), 110(2015).
- Brum, D. G., et al. HLA-DRB association in neuromyelitis optica is different from that observed in multiple sclerosis. Mult Scler. 16 (1), 21-29 (2010).
- Varrin-Doyer, M., et al. Aquaporin 4-specific T cells in neuromyelitis optica exhibit a Th17 bias and recognize Clostridium ABC transporter. Ann Neurol. 72 (1), 53-64 (2012).
- Vaknin-Dembinsky, A., et al. T-cell responses to distinct AQP4 peptides in patients with neuromyelitis optica (NMO). Mult Scler Relat Disord. 6, 28-36 (2016).
- Nelson, P. A., et al. Immunodominant T cell determinants of aquaporin-4, the autoantigen associated with neuromyelitis optica. PLoS One. 5 (11), 15050(2010).
- Kalluri, S. R., et al. Functional characterization of aquaporin-4 specific T cells: towards a model for neuromyelitis optica. PLoS One. 6 (1), 16083(2011).
- Pohl, M., et al. Pathogenic T cell responses against aquaporin 4. Acta Neuropathol. 122 (1), 21-34 (2011).
- Zeka, B., et al. Highly encephalitogenic aquaporin 4-specific T cells and NMO-IgG jointly orchestrate lesion location and tissue damage in the CNS. Acta Neuropathol. 130 (6), 783-798 (2015).
- Sagan, S. A., et al. Tolerance checkpoint bypass permits emergence of pathogenic T cells to neuromyelitis optica autoantigen aquaporin-4. Proc Natl Acad Sci U S A. 113 (51), 14781-14786 (2016).
- Vita, R., et al. The immune epitope database (IEDB) 3.0. Nucleic Acids Res. 43, Database issue 405-412 (2015).
- Harrell, M. I., Iritani, B. M., Ruddell, A. Lymph node mapping in the mouse. J Immunol Methods. 332 (1-2), 170-174 (2008).
- Ivanova, E., Toychiev, A. H., Yee, C. W., Sagdullaev, B. T. Optimized protocol for retinal wholemount preparation for imaging and immunohistochemistry. J Vis Exp. (82), e51018(2013).
- Cruz-Herranz, A., et al. The APOSTEL recommendations for reporting quantitative optical coherence tomography studies. Neurology. 86 (24), 2303-2309 (2016).
- Mendel, I., Kerlero de Rosbo, N., Ben-Nun, A. A myelin oligodendrocyte glycoprotein peptide induces typical chronic experimental autoimmune encephalomyelitis in H-2b mice: fine specificity and T cell receptor V beta expression of encephalitogenic T cells. Eur J Immunol. 25 (7), 1951-1959 (1995).
- Shetty, A., et al. Immunodominant T-cell epitopes of MOG reside in its transmembrane and cytoplasmic domains in EAE. Neurol Neuroimmunol Neuroinflamm. 1 (2), 22(2014).
- Molnarfi, N., et al. MHC class II-dependent B cell APC function is required for induction of CNS autoimmunity independent of myelin-specific antibodies. J Exp Med. 210 (13), 2921-2937 (2013).
- Jones, M. V., Huang, H., Calabresi, P. A., Levy, M. Pathogenic aquaporin-4 reactive T cells are sufficient to induce mouse model of neuromyelitis optica. Acta Neuropathol Commun. 3, 28(2015).
- Oertel, F. C., et al. Microstructural visual system changes in AQP4-antiboby-seropositive NMOSD. Neurol. Neuroimmunol. Neuroinflamm. 4, 72(2017).
- Vogel, A. L., et al. Deletional tolerance prevents AQP4 directed autoimmunity in mice. Eur J Immunol. , (2017).
- Zhang, H., Verkman, A. S. Longitudinally extensive NMO spinal cord pathology produced by passive transfer of NMO-IgG in mice lacking complement inhibitor CD59. J Autoimmun. 53, 67-77 (2014).
- Zeka, B., et al. Aquaporin 4-specific T cells and NMO-IgG cause primary retinal damage in experimental NMO/SD. Acta Neuropathol Commun. 4 (1), 82(2016).
- Felix, C. M., Levin, M. H., Verkman, A. S. Complement-independent retinal pathology produced by intravitreal injection of neuromyelitis optica immunoglobulin G. J Neuroinflammation. 13 (1), 275(2016).
- Zamvil, S., et al. T-cell clones specific for myelin basic protein induce chronic relapsing paralysis and demyelination. Nature. 317 (6035), 355-358 (1985).
- Zamvil, S. S., et al. Encephalitogenic T cell clones specific for myelin basic protein. An unusual bias in antigen recognition. J Exp Med. 162 (6), 2107-2124 (1985).
- Kuchroo, V. K., et al. B7-1 and B7-2 costimulatory molecules activate differentially the Th1/Th2 developmental pathways: application to autoimmune disease therapy. Cell. 80 (5), 707-718 (1995).
- Bettelli, E., et al. Reciprocal developmental pathways for the generation of pathogenic effector TH17 and regulatory T cells. Nature. 441 (7090), 235-238 (2006).
Przedruki i uprawnienia
