Ilościowa ocena wzrostu bakterii jest niezbędna do zrozumienia fizjologii drobnoustrojów jako zjawiska na poziomie systemu. Wprowadzono protokół manipulacji eksperymentalnej i podejście analityczne, pozwalające na precyzyjną, wysokoprzepustową analizę wzrostu bakterii, który jest kluczowym przedmiotem zainteresowania biologii systemów.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Precyzyjna, wysokoprzepustowa analiza wzrostu bakterii
W tym artykule
Podsumowanie
Streszczenie
Wzrost bakterii jest centralnym pojęciem w rozwoju nowoczesnej fizjologii mikrobiologicznej, jak również w badaniu dynamiki komórkowej na poziomie systemów. Ostatnie badania wykazały korelacje między wzrostem bakterii a zdarzeniami obejmującymi cały genom, takimi jak redukcja genomu i reorganizacja transkryptomu. Prawidłowa analiza wzrostu bakterii ma kluczowe znaczenie dla zrozumienia zależnej od wzrostu koordynacji funkcji genów i składników komórkowych. W związku z tym wymagana jest dokładna ocena ilościowa wzrostu bakterii w sposób wysokoprzepustowy. Pojawiające się osiągnięcia technologiczne oferują nowe narzędzia eksperymentalne, które umożliwiają aktualizację metod stosowanych do badania wzrostu bakterii. Przedstawiony tutaj protokół wykorzystuje czytnik mikropłytek z wysoce zoptymalizowaną procedurą eksperymentalną do powtarzalnej i precyzyjnej oceny wzrostu bakterii. Protokół ten został wykorzystany do oceny wzrostu kilku wcześniej opisanych szczepów Escherichia coli. Główne etapy protokołu są następujące: przygotowanie dużej liczby zapasów komórek w małych fiolkach do powtarzających się testów z powtarzalnymi wynikami, użycie 96-dołkowych płytek do wysokoprzepustowej oceny wzrostu oraz ręczne obliczenie dwóch głównych parametrów (tj. maksymalnego tempa wzrostu i gęstości zaludnienia) reprezentujących dynamikę wzrostu. W porównaniu z tradycyjnym testem jednostki tworzącej kolonię (CFU), który zlicza komórki hodowane w szklanych probówkach w czasie na płytkach agarowych, obecna metoda jest bardziej wydajna i zapewnia bardziej szczegółowe zapisy czasowe zmian wzrostu, ale ma bardziej rygorystyczną granicę wykrywalności przy niskiej gęstości populacji. Podsumowując, opisana metoda jest korzystna dla precyzyjnej i powtarzalnej wysokoprzepustowej analizy wzrostu bakterii, która może być wykorzystana do wyciągnięcia wniosków koncepcyjnych lub do poczynienia obserwacji teoretycznych.
Wprowadzenie
Badania mikrobiologiczne często rozpoczynają się od hodowli komórek bakteryjnych i oceny krzywych wzrostu bakterii, które stanowią fundamentalne zjawisko fizjologii bakteryjnej1,2,3. Podstawowe zasady hodowli są szeroko dostępne w opublikowanej literaturze naukowej i podręcznikach, ponieważ hodowla bakteryjna jest podstawową metodologią. Na poziomie ławki tradycyjnie znaczna uwaga skupiała się na optymalizacji pożywek wzrostowych i warunków hodowli, ale kontrolowanie tempa wzrostu, które prawdopodobnie zapewniłoby jeszcze lepsze zrozumienie fizjologii drobnoustrojów, nie było szeroko badane4. W przypadku bakterii rosnących wykładniczo kluczowym parametrem stanu komórkowego jest tempo wzrostu, które według doniesień jest skoordynowane z genomem, transkryptomem i proteomem5,6,7,8. W związku z tym ilościowa ocena wzrostu bakterii ma kluczowe znaczenie dla zrozumienia fizjologii drobnoustrojów.
Aby ocenić wzrost bakterii, metody eksperymentalne używane do szacowania biomasy są dobrze znane9,10 i opierają się na wykrywaniu parametrów biochemicznych, fizycznych lub biologicznych, takich jak zmętnienie optyczne. Ponadto metody analityczne stosowane do uchwycenia dynamicznych właściwości zmian wzrostu są zwykle oparte na ustalonych modelach nieliniowych11,12,13, na przykład równania logistyczne. Dynamikę wzrostu uzyskuje się na ogół poprzez czasowe pobieranie próbek wzrostu komórek w hodowli poprzez pomiar zmętnienia optycznego lub wykonywanie testów jednostek tworzących kolonie (CFU). Ograniczeniem tych metod hodowli i wykrywania jest to, że punkty danych nie są prawdziwym odzwierciedleniem dynamiki populacji, ponieważ odstępy między pomiarami są często wyrażone w godzinach, a warunki hodowli (np. zmiany temperatury i napowietrzenia) są zaburzone w momencie pobierania próbek. Kultura i techniki analizy muszą być aktualizowane z wykorzystaniem najnowszych osiągnięć w technologii i zrozumieniu. Najnowsze osiągnięcia w dziedzinie czytników mikropłytek pozwalają na obserwację rozwoju bakterii w czasie rzeczywistym i znacznie obniżają koszty pracy. Korzystając z tych zaawansowanych urządzeń, najnowsze badania nad wzrostem bakterii opisały metody analityczne do pomiarów o wysokiej przepustowości14,15.
Celem tego protokołu jest ocena precyzyjnej dynamiki wzrostu w sposób wysokoprzepustowy, co będzie cenne dla badań ilościowych, które ostatecznie odpowiedzą na pytania, jak określa się tempo wzrostu i jakie czynniki wpływają na tempo wzrostu. Protokół odnosi się do wszystkich czynników, które powinny być brane pod uwagę w celu powtarzalnego i precyzyjnego ilościowego oznaczania wzrostu bakterii. Metoda eksperymentalna i analiza zostały szczegółowo opisane w tekście głównym. Metoda ta pozwala na precyzyjną i powtarzalną analizę wzrostu bakterii w sposób wysokoprzepustowy. Mikrobiolodzy mogą korzystać z tego protokołu, aby uzyskać dodatkowe wyniki ilościowe na podstawie dowodów eksperymentalnych. Protokół ten może być również wykorzystany do badań z zakresu biologii systemów, które próbują wyciągnąć wnioski koncepcyjne lub uzyskać teoretyczny przegląd wzrostu.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Przygotowanie pożywki do hodowli
UWAGA: Skład chemiczny pożywki minimalnej M63 jest następujący: 62 mM K2HPO4, 39 mM KH2PO4, 15 mM (NH4)2SO4, 1.8 µM FeSO4, 15 µM tiaminy-HCl, 0.2 mM MgSO4 oraz 22 mM glukozy. Pożywkę M63 przygotowuje się poprzez zmieszanie trzech roztworów stokowych: roztworu Five X, 20% glukozy oraz roztworu MgSO4 i tiaminy. Wszystkie roztwory przechowywać w temperaturze 4 °C.
- Przygotowanie roztworu pięciokrotnego (Five X)
- Aby przygotować roztwór FeSO4, należy za pomocą pipety elektrycznej i jednorazowej pipety serologicznej dodać ddH2O do probówki do wirowania o pojemności 50 mL. Za pomocą pipety P-200 dodać 0,06 mL HCl, aby uzyskać roztwór 0,01 M HCl. Dodać 36 mg FeSO4-7H2O i dokładnie wymieszać.
- Odmierzyć 160 mL ddH2O w cylindrze mierniczym i przelać do zlewki o pojemności 500 mL. Dodać w następującej kolejności: 10,72 g K2HPO4, 5,24 g KH2PO4, 2,0 g (NH4)2SO4 oraz 0,5 mL roztworu FeSO4 (przygotowanego w kroku 1.1.1).
- Za pomocą precyzyjnego pH-metru dostosować pH do wartości 7,0, dodając 2 M KOH. Przelać roztwór do cylindra mierniczego i uzupełnić ddH2O do całkowitej objętości 200 mL. Zsterylizować roztwór za pomocą jednostki filtrującej o pojemności 250 mL (PVDF, 0,22 µM).
- Przygotowanie 20% roztworu glukozy
- Odmierzyć 200 mL ddH2O w cylindrze mierniczym i przelać do zlewki o pojemności 500 mL. Podczas mieszania za pomocą mieszadła magnetycznego dodać 50 g glukozy. Rozcieńczyć roztwór w cylindrze mierniczym do całkowitej objętości 250 mL. Zsterylizować roztwór zgodnie z opisem w kroku 1.1.3.
- Przygotowanie roztworu MgSO4 z tiaminą
- Dodać 150 mL ddH2O do zlewki o pojemności 500 mL. Podczas mieszania mieszadłem magnetycznym dodać 1,0 g tiaminy-HCl oraz 10 g MgSO4-7H2O. Rozcieńczyć roztwór w cylindrze mierniczym do całkowitej objętości 200 mL. Zsterylizować roztwór zgodnie z opisem w kroku 1.1.3.
- Przygotowanie minimalnego podłoża M63
- Umieścić roztwór pięciokrotny, 20% roztwór glukozy, roztwór MgSO4 z tiaminą, pipetę elektryczną, pipetę P-200 oraz końcówki do pipety o pojemności 200 µL na czystej stole laboratoryjnej.
- Odmierzyć 155,8 mL ddH2O w cylindrze mierniczym i przelać do zlewki o pojemności 500 mL.
- Za pomocą pipety elektrycznej i jednorazowej pipety serologicznej dodać 40 mL roztworu pięciokrotnego oraz 4 mL 20% roztworu glukozy do odmierzonej ilości ddH2O. Następnie, za pomocą pipety P-200, dodać 0,2 mL roztworu MgSO4 z tiaminą. Zsterylizować roztwór zgodnie z opisem w kroku 1.1.3.
2. Przygotowanie zapasu w glicerolu
- Hodowla komórek
UWAGA: Szczepy bakteryjne (np. W3110 i jego szczepy o zredukowanym genomie) są dostępne w bankach szczepów. Szczepy są zazwyczaj otrzymywane w formie kolonii na płytkach z agarem.- Umieścić na stole z laminarnym przepływem powietrza pięć wysterylizowanych probówek szklanych z silikonowymi zatyczkami, pipetę elektroniczną P-1,000, końcówki do pipety 1,000-µL, pipetę P-200, końcówki do pipety 200-µL oraz docelowe szczepy (kolonie na płytkach).
- Opać wylot probówki szklanej nad palnikiem Bunsena przed otwarciem silikonowej zatyczki. Opać silikonową zatyczkę w płomieniu po otwarciu probówki, a następnie lekko założyć zatyczkę z powrotem na probówkę szklaną.
- Za pomocą pipety elektronicznej i jednorazowej pipety serologicznej dodać 5 mL M63 do jednej z probówek szklanych oraz 4,5 mL M63 do pozostałych czterech probówek.
- Za pomocą końcówki P-200 pobrać kolonię i zaszczepić ją w probówce szklanej zawierającej 5 mL M63.
- Wymieszać zawartość probówki na vortexie, aby uzyskać zawiesinę. Następnie rozcieńczyć roztwór 10-krotnie, przenosząc 0,5 mL tego roztworu do jednej z czterech probówek zawierających 4,5 mL M63.
- Powtórzyć proces opisany w kroku 2.1.5 dla pozostałych probówek. Seria rozcieńczeń o pięciu różnych stężeniach (rozcieńczenia 1, 10, 100, 1000 i 10 000) jest teraz gotowa.
- Zasterylizować wyloty probówek szklanych oraz silikonowe zatyczki w sposób opisany w kroku 2.1.2. Zamknąć probówki zatyczkami. Aby uniknąć kontaminacji, nie zgniatać silikonowych zatyczek.
- Umieścić pięć probówek w wstępnie ogrzanym inkubatorze z wytrząsaniem w temperaturze 37 °C i wytrząsać z prędkością 200 rpm. Inkubować hodowlę przez noc lub od 10 do 30 h.
- Wybór hodowli do przygotowania banku w glicerolu
- Umieścić na stole z laminarnym przepływem powietrza wstępnie ogrzane podłoże M63 w temperaturze pokojowej, pipetę P-1,000, końcówki do pipety 1,000-µL oraz jednorazową kuwetę.
- Za pomocą P-1,000 dodać 1000 µL M63 do jednorazowej kuwety. Umieścić jednorazową kuwetę w spektrofotometrze, uruchomić program przy stałej długości fali 600 nm i zmierzyć próbkę kontrolną (blank).
- Przenieść pięć probówek szklanych z inkubatora z wytrząsaniem na stół z laminarnym przepływem powietrza.
- Wylać M63 z jednorazowej kuwety i za pomocą P-1,000 dodać 1,000 µL hodowli do tej samej jednorazowej kuwety. Zmierzyć mętność optyczną hodowli komórkowej (OD600) zgodnie z opisem w kroku 2.2.2.
UWAGA: Aby uniknąć kontaminacji i uzyskać precyzyjny pomiar, należy opalić probówki szklane i zatyczki w płomieniu zgodnie z opisem oraz wymieszać hodowlę na vortexie przed pobraniem próbki. W celu zapewnienia wiarygodnych wyników zaleca się powtórne pomiary, szczególnie gdy gęstość komórek jest niska. - Z pięciu hodowli komórkowych wybrać do przygotowania banku w glicerolu tę, która znajduje się w wczesnej fazie wzrostu wykładniczego (OD600= 0,01 - 0,05).
UWAGA: Jeśli kilka hodowli ma gęstość mieszczącą się w optymalnym zakresie, zazwyczaj wybiera się tę najbliższą wartości 0,05.
- Przygotowanie banków w glicerolu do powtarzalnych testów.
UWAGA: Opis dotyczy przygotowania dziesięciu banków. W zależności od wymagań eksperymentalnych można przygotować większą lub mniejszą ilość.- Umieścić na stole z laminarnym przepływem powietrza wysterylizowany 60% roztwór glicerolu, dziesięć wysterylizowanych mikroprowówek 1,5-mL, pipety P-1,000 i P-200, końcówki do pipet 1,000- i 200-µL oraz statyw do mikroprowówek.
- Do mikroprowówki 1,5-mL dodać 250 µL wysterylizowanego 60% roztworu glicerolu i 750 µL wybranej hodowli komórkowej, a następnie wymieszać poprzez pipetowanie.
UWAGA: Objętość banku jest zmienna, ale zawsze należy zachować stosunek 1:3 glicerolu 60% do hodowli komórkowej; daje to końcowe stężenie 15% glicerolu. - Umieścić pozostałe dziewięć mikroprowówek w statywie i do każdej z nich przelać 100 µL mieszaniny przygotowanej w kroku 2.3.2. Otrzymano dziesięć identycznych banków w glicerolu do przyszłego wykorzystania.
- Przechowywać banki w zamrażarce niskotemperaturowej w temperaturze -80 °C.
3. Pozyskiwanie krzywych wzrostu
- Konfiguracja czytnika mikropłytek.
UWAGA: Terminy podane w cudzysłowie odpowiadają konkretnemu sformułowaniu użytemu w czytniku płytek wykorzystanym w tym protokole (patrz Tabela Materiałów).- Uruchom oprogramowanie. Otwórz „Protocols” w „Task Manager” i wybierz „Create New”. Wybierz „Standard Protocol”.
- Otwórz „Procedure” i dostosuj ustawienia. Otwórz „Set Temperature” i zaznacz „Incubator On”. Ustaw „Temperature” na 37 °C oraz „Gradient” na 0 °C. Zaznacz „Preheat” przed przejściem do następnego kroku. Otwórz „Start Kinetic”, ustaw „Run time” na 24:00:00 lub 48:00:00 oraz „Interval” na 00:30:00 lub 01:00:00.
UWAGA: Odczyt całej płytki 96-dołkowej trwa około 1 min. - Otwórz „Shake” i ustaw „Shake Mode” na „Linear”. Zaznacz „Constitution Shake” i ustaw „Frequency” na 567 cpm. Otwórz „Read”, zaznacz „Absorbance”, „Endpoint/Kinetic” oraz „Monochromators”. Ustaw „Wavelength” na 600.
- Kliknij „Validate”, aby potwierdzić poprawność procedury. Kliknij „Save”, aby zapisać ją jako nowy program do przyszłego użytku.
- Rejestracja wzrostu w czasie rzeczywistym
- Narysuj piktogram płytki 96-dołkowej (tabela 8 × 12), aby zaznaczyć położenie zaszczepionych próbek kultur na płytce. Wydrukuj tabelę i używaj jej jako punktu odniesienia podczas eksperymentu.
UWAGA: Dołki znajdujące się na krawędziach mikropłytki powinny zawierać wyłącznie czyste podłoże ze względu na parowanie. - Umieść na czystym blacie sterylną 96-dołkową mikropłytkę z płaskim dnem i pokrywką, końcówki do pipety P-1000 (1000-µL), końcówki do pipety P-200 (200-µL), kilka mikropoprobek 1,5-mL, pipetę 8-kanałową, sterylną kuwetę na odczynniki, podłoże M63 w temperaturze pokojowej oraz zapasy glicerolowe (przygotowane w kroku 2.3).
- Dodaj około 25 mL M63 do kuwety na odczynniki. Używaj tego zapasu do wszystkich kolejnych kroków.
- Dodaj 900 µL M63 do mikropoprobek w celu przygotowania rozcieńczeń seryjnych.
- Rozmroź zapas glicerolowy w temperaturze pokojowej. Dodaj 900 µL M63 do rozmrożonego zapasu glicerolowego i wymieszaj w wirówce typu vortex. Otrzymamy w ten sposób 10-krotne rozcieńczenie pierwotnego zapasu glicerolowego.
- Przenieś 100 µL 10-krotnego rozcieńczenia do kolejnej mikroprobówki zawierającej 900 µL M63 i wymieszaj w vortexie. Otrzymamy w ten sposób 100-krotne rozcieńczenie.
- Powtarzaj krok 3.2.6 do momentu uzyskania pożądanej liczby rozcieńczeń.
- Wypełnij dołki na krawędzi mikropłytki 200 µL M63 za pomocą pipety 8-kanałowej (P-200).
UWAGA: Dołki te mogą służyć jako próba blank. - Nanieś 200 µL każdej z rozcieńczonych próbek przygotowanych w krokach 3.2.4 – 3.2.7 do dołków mikropłytki zgodnie z tabelą referencyjną (krok 3.2.1). Przed naniesieniem wymieszaj rozcieńczone próbki w vortexie; każdą próbkę nanieś do kilku dołków w różnych miejscach płytki.
- Umieść 96-dołkową mikropłytkę w czytniku.
- Otwórz „Read Now” w „Task Manager” i wybierz program (sekcja 3.1). Kliknij „OK”, aby rozpocząć pomiar. Zapisz rejestrację jako nowy plik eksperymentalny do analizy danych (sekcja 4).
- Narysuj piktogram płytki 96-dołkowej (tabela 8 × 12), aby zaznaczyć położenie zaszczepionych próbek kultur na płytce. Wydrukuj tabelę i używaj jej jako punktu odniesienia podczas eksperymentu.
4. Analiza danych
- Wyeksportuj wyniki danych o tempie wzrostu w czasie rzeczywistym (sekcja 3.2) na pamięć USB w formie pliku tekstowego.
UWAGA: Wyniki sformatowane dla płytki 96-dołkowej (krzywe) będą wyświetlane na czytniku płytek w czasie rzeczywistym. Godzinowe rekordy (wartości OD) można wyeksportować jako tabelę; wiersze i kolumny reprezentują odpowiednio numery dołków (np. A1, B1) oraz czas pomiaru (np. 00:00:59). - Otwórz plik tekstowy w oprogramowaniu arkusza kalkulacyjnego.
- Skopiuj godzinowe odczyty OD600 z mikropłytki 96-dołkowej do nowego arkusza w celu dalszej analizy.
- Odejmij odczyty tła w czasie zero od godzinowych odczytów dla każdego dołka z próbką.
UWAGA: Dla ułatwienia jako wartość tła można zastosować średnią wartość z dołków kontrolnych zawierających M63 (krok 3.2.8). - Oblicz średnią z pięciu kolejnych odczytów OD600, aby oszacować maksymalną gęstość populacji.
UWAGA: Najwyższą wartość średnią z pięciu kolejnych odczytów OD600 definiuje się jako maksymalne OD600 dla odpowiadającej im krzywej wzrostu. - Oblicz tempo wzrostu, µ (h-1), stosując poniższe równanie dla wszystkich par kolejnych wartości OD600:
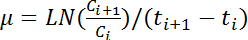
UWAGA: W tym równaniu Ci i Ci+1 reprezentują wartości OD600 dla dowolnych dwóch kolejnych punktów czasowych (odpowiednio ti i ti+1). LN oznacza logarytm naturalny. - Oblicz zmiany tempa wzrostu w czasie na podstawie godzinowych odczytów OD600 zgodnie z krokiem 4.6. Oblicz średnią i odchylenie standardowe z pięciu kolejnych temp wzrostu, aby oszacować maksymalne tempo wzrostu.
UWAGA: Najwyższą średnią przy najmniejszym odchyleniu standardowym definiuje się jako maksymalne tempo wzrostu dla odpowiadającej im krzywej wzrostu.
5. Potwierdzenie globalnego błędu odczytów z płytek 96-dołkowych (opcjonalnie)
UWAGA: Zarówno czytnik płytek, jak i jednorazowa płytka 96-dołkowa mogą powodować błędy pomiarowe. Aby uzyskać wysoce precyzyjne i powtarzalne wyniki ilościowe, zdecydowanie zaleca się potwierdzenie globalnego błędu systematycznego płytki 96-dołkowej.
- Przygotować płytkę 96-dołkową oraz czytnik płytek do testu błędu systematycznego (bias test) zgodnie z opisem w sekcji 3.2.2.
- Do sterylnej probówki wirówkowej o pojemności 50 mL dodać 20 mL pożywki M63. Do tej samej probówki dodać stok glicerolu i wymieszać w wirówce typu vortex. Przenieść zawiesinę do sterylnego zbiornika na odczynniki.
- Za pomocą pipety 8-kanałowej przenieść 200 µL zawiesiny do płytki 96-dołkowej.
- Umieścić płytkę 96-dołkową w czytniku płytek i rozpocząć pomiar.
- Rejestrować godzinowe odczyty OD600 i przeanalizować je zgodnie z opisem w sekcji 4. Porównać obliczoną maksymalną szybkość wzrostu i gęstość populacji dla każdego dołka, aby określić błąd lokalizacyjny odczytów z płytki 96-dołkowej.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Opisana metoda umożliwia rejestrację dynamicznego wzrostu bakterii w sposób ciągły i wysokoprzepustowy dzięki zastosowaniu czytnika w formacie 96-dołkowym, który wykonuje wielokrotne pomiary gęstości optycznej w różnych odstępach czasu (od minut, przez godziny, aż po dni). Krzywe wzrostu zestawu szczepów E. coli wykazujących różnorodne genomy mogą zostać precyzyjnie uzyskane w ramach jednego eksperymentu (Rycina 1A). W porównaniu z opisaną metodą, me...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Kluczowe kroki w protokole obejmują przygotowanie wspólnego zapasu komórek rosnących wykładniczo i replikację tych samych próbek w wielu studzienkach w różnych pozycjach na mikropłytce. Wcześniej mikrobiolodzy rozpoczynali hodowlę od nocnej hodowli wstępnej. Chociaż ta metoda może skrócić czas opóźnienia wzrostu bakterii, trudno jest uzyskać powtarzalne krzywe wzrostu. Jak pokazano na rysunku 2, niezależne pomiary z wykorzystaniem popularnych zapasów glicerolu dały prawie identyczne krzywe w...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Dziękujemy Kohei Tsuchiya za dostarczenie przykładu testu CFU. Prace te zostały częściowo wsparte finansowo przez Grant-in-Aid for Scientific Research (C) nr 26506003 (dla BWY) z Ministerstwa Edukacji, Kultury, Sportu, Nauki i Technologii Japonii.
Podziękowania
Autorzy nie mają nic do ujawnienia.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| K2HPO4 | Wako | 164-04295 | |
| KH2PO4 | Wako | 166-04255 | |
| (NH4)2SO4 | Wako | 019-03435 | |
| MgSO4-7H2O | Wako | 138-00415 | |
| Tiamina-HCl | Wako | 201-00852 | |
| glukoza | Wako | 049-31165 | |
| HCl | Wako | 080-01066 | |
| Siarczan żelaza (II) siedmiowodny (FeSO4-7H2O) | Wako | 094-01082 | |
| KOH | Wako | 168-21815 | |
| Glycerol | Wako | 075-00611 | |
| Probówka wirówkowa (50 mL, sterylizowana) | WATSON | 1342-050S | |
| Końcówki do pipet, 200 i mikro; L | WATSON | 110-705Y Końcówki | |
| do pipet, 1,000 &mikro; L | WATSON | 110-8040 | |
| Mikroprobówka (1,5 ml) | Pipeta wielokanałowa WATSON | 131-715C | |
| WATSON | NT-8200 | ||
| PASORINA | JAKO JEDNO | 2-4990-02 | |
| Szklany cylinder (200 ml) | AS ONE | 1-8562-07 | |
| Precyzyjny miernik pH | AS ONE | AS800 / 1-054-01 | |
| Pipetman P-200 | GILSON | 1-6855-05 | |
| Pipetman P-1000 | GILSON | 1-6855-06 | |
| Jednorazowe pipety serolocywe (10 ml) | Jednorazowe | ||
| (25 ml) | |||
| BM Bio | 801-02Y | ||
| Vortex | BM Bio | BM-V1 | |
| Corning Costar 96-dołkowa mikropłytka z pokrywką (płaska dno, przezroczysta) | Sigma-Aldrich | Corning, 3370 | |
| Zbiornik na odczynniki Corning Costar (50 ml) | Sigma-Aldrich | Corning, 4870 | |
| Stericup GV PVDF (250 mL, 0,22 µ M) | Merck Millipore | SCGVU02RE | |
| Pipet-Aid XP | DRUMMOND | 4-000-101 | |
| Bioshaker (BR-23UM MR) | TAITEC | 0053778-000 | |
| Komórka do utylizacji (1,5 ml) | Kartell | 1938 / 2-478-02 | |
| DU 730 Life Science Spektrofotometr UV/Vis | Beckman Coulter | A23616 | |
| EPOCH2 | BioTek | 2014- EP2-002 / EPOCH2T | |
| Zlewka (500 mL) | IWAKI | 82-0008 | |
| BIO czysta ławka | Panasonic | MCV-B131F | |
| Rurki szklane | NICHIDEN RIKA GLASS | P-10M~P-30 /101019 | |
| Korki z gumy silikonowej | ShinEtsu Polymer | T-19 | |
| Szczepy bakteryjne | Organizacja banku szczepów; Narodowy Projekt Zasobów Biologicznych (NBRP) w Japonii |
Bibliografia
- Kovarova-Kovar, K., Egli, T. Growth kinetics of suspended microbial cells: from single-substrate-controlled growth to mixed-substrate kinetics. Microbiol Mol Biol Rev. 62 (3), 646-666 (1998).
- Soupene, E., et al. Physiological studies of Escherichia coli strain MG1655: growth defects and apparent cross-regulation of gene expression. J Bacteriol. 185 (18), 5611-5626 (2003).
- Sezonov, G., Joseleau-Petit, D., D'Ari, R. Escherichia coli physiology in Luria-Bertani broth. J Bacteriol. 189 (23), 8746-8749 (2007).
- Egli, T. Microbial growth and physiology: a call for better craftsmanship. Front Microbiol. 6, 287(2015).
- Kurokawa, M., Seno, S., Matsuda, H., Ying, B. W. Correlation between genome reduction and bacterial growth. DNA Res. 23 (6), 517-525 (2016).
- Matsumoto, Y., Murakami, Y., Tsuru, S., Ying, B. W., Yomo, T. Growth rate-coordinated transcriptome reorganization in bacteria. BMC Genomics. 14, 808(2013).
- Nahku, R., et al. Specific growth rate dependent transcriptome profiling of Escherichia coli K12 MG1655 in accelerostat cultures. J Biotechnol. 145 (1), 60-65 (2010).
- Dai, X., et al. Reduction of translating ribosomes enables Escherichia coli to maintain elongation rates during slow growth. Nat Microbiol. 2, 16231(2016).
- Madrid, R. E., Felice, C. J. Microbial biomass estimation. Crit Rev Biotechnol. 25 (3), 97-112 (2005).
- Harris, C. M., Kell, D. B. The estimation of microbial biomass. Biosensors. 1 (1), 17-84 (1985).
- Yates, G. T., Smotzer, T. On the lag phase and initial decline of microbial growth curves. J Theor Biol. 244 (3), 511-517 (2007).
- Kargi, F. Re-interpretation of the logistic equation for batch microbial growth in relation to Monod kinetics. Lett Appl Microbiol. 48 (4), 398-401 (2009).
- Peleg, M., Corradini, M. G. Microbial growth curves: what the models tell us and what they cannot. Crit Rev Food Sci Nutr. 51 (10), 917-945 (2011).
- Sprouffske, K., Wagner, A. Growthcurver: an R package for obtaining interpretable metrics from microbial growth curves. BMC Bioinformatics. 17, 172(2016).
- Hall, B. G., Acar, H., Nandipati, A., Barlow, M. Growth rates made easy. Mol Biol Evol. 31 (1), 232-238 (2014).
- Hermsen, R., Okano, H., You, C., Werner, N., Hwa, T. A growth-rate composition formula for the growth of E.coli on co-utilized carbon substrates. Mol Syst Biol. 11 (4), 801(2015).
- Engen, S., Saether, B. E. r- and K-selection in fluctuating populations is determined by the evolutionary trade-off between two fitness measures: Growth rate and lifetime reproductive success. Evolution. 71 (1), 167-173 (2017).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
