W tym protokole, fluorescencyjnie znakowane T. cruzi zostały wstrzyknięte do przezroczystych larw danio pręgowanego, a ruchliwość pasożyta zaobserwowano in vivo za pomocą mikroskopii fluorescencyjnej z użyciem arkusza świetlnego.
Artykuł metodologiczny
Ustanowienie larw danio pręgowanego jako modelu zwierzęcego do badania ruchliwości Trypanosoma cruzi in vivo
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Choroba Chagasa to pasożytnicza infekcja wywoływana przez Trypanosoma cruzi, której ruchliwość jest ważna nie tylko dla lokalizacji, ale także dla wiązania i inwazji komórkowej. Obecne modele zwierzęce do badań nad T. cruzi pozwalają na ograniczoną obserwację pasożytów in vivo, co stanowi wyzwanie dla zrozumienia zachowania pasożytów w początkowych stadiach infekcji u ludzi. Ten pierwotniak ma stadium wiciowe zarówno u gospodarzy wektorowych, jak i ssaków, ale nie ma badań opisujących jego ruchliwość in vivo. Celem tego projektu było stworzenie modelu żywego kręgowca danio pręgowanego w celu oceny ruchliwości T. cruzi w układzie naczyniowym. Przezroczyste larwy danio pręgowanego wstrzyknięto znakowanymi fluorescencyjnie trypomastigotami i obserwowano za pomocą mikroskopii fluorescencyjnej arkuszy świetlnych (LSFM), nieinwazyjnej metody wizualizacji żywych organizmów z wysoką rozdzielczością optyczną. Pasożyty można było wizualizować przez dłuższy czas ze względu na stosunkowo niskie ryzyko fotouszkodzeń tej techniki w porównaniu z mikroskopią konfokalną lub epifluorescencyjną. Zaobserwowano, że pasożyty T. cruzi przemieszczają się w układzie krwionośnym żywych ryb pręgowanych w naczyniach krwionośnych i żółtku o różnej wielkości. Można je było również zobaczyć przyczepione do ściany woreczka żółtkowego i zastawki przedsionkowo-komorowej pomimo silnych sił związanych ze skurczami serca. LSFM larw danio pręgowanego zaszczepionych T. cruzi jest cenną metodą, którą można wykorzystać do wizualizacji krążących pasożytów i oceny ich tropizmu, wzorców migracji i ruchliwości w dynamicznym środowisku układu sercowo-naczyniowego żywego zwierzęcia.
Wprowadzenie
Choroba Chagasa jest wywoływana przez pasożytniczego pierwotniaka T. cruzi. Około 6 do 7 milionów ludzi na całym świecie jest zarażonych T. cruzi. Choroba jest przenoszona głównie w Ameryce Łacińskiej, ale została zgłoszona w Stanach Zjednoczonych, Kanadzie i wielu krajach Europy, a także niektórych krajach Zachodniego Pacyfiku, głównie z powodu migracji zakażonych osób1. Chagas jest w dużej mierze przenoszony przez wektory i przenoszony na ludzi przez kontakt z kałem owadów hematofagicznych z podrodziny Triatominae, powszechnie znanych jako "pluskwy całujące". Jednak T. cruzi może być również przenoszony przez transfuzję krwi, pionowe przeniesienie z matki na dziecko lub spożycie żywności skażonej pasożytami2. Ostra faza infekcji przebiega głównie bezobjawowo lub konstytutywnie objawowo i trwa od 6 do 8 tygodni, po czym zaangażowanie układu odpornościowego kontroluje obciążenie pasożytami, ale nie eliminuje całkowicie infekcji3. Większość osób wchodzi wtedy w przewlekłą fazę bezobjawową; Jednak u prawie 30% pacjentów rozwija się objawowa faza przewlekła, w której upośledzony jest układ sercowy, a rzadziej układ trawienny i nerwowy4. Scenariusz ten stanowi wyzwanie dla leczenia i kontroli choroby, ponieważ nie ma dostępnych szczepionek, a istnieją tylko dwa skuteczne leki na Chagasa: benznidazol i nifurtimoks. Obie terapie wymagają długotrwałego podawania i mogą mieć poważne skutki uboczne2.
Lepsze zrozumienie zachowania T. cruzi in vivo jest kluczem do określenia migracji pasożytów, przywiązania komórkowego i inwazji wewnątrz gospodarza; brak modeli in vivo ogranicza rozwój nowych podejść terapeutycznych. Badania in vitro zakażenia T. cruzi wykazały, że ruchliwość trypomastigotes jest ważna dla wiązania się z błonami komórkowymi gospodarza i późniejszej inwazji komórkowej5. Wykazano, że wyczerpanie energii u trypomastigotów w kokulturze z podatną linią komórkową zmniejsza inwazję komórkową6. Co ciekawe, u trypanosomatydów ruch wiciowców został również scharakteryzowany jako mechanizm unikania przeciwciał specyficznych dla pasożyta7.
Ruchliwość wiciowców została gruntownie zbadana in vitro u Trypanosoma brucei, blisko spokrewnionego pasożyta, który powoduje afrykańską trypanosomatozę8. Badania in vitro ruchliwości tych trypanosomów wykazały, że symulacja warunków krwi lub płynów ustrojowych, w tym lepkości i obecności przeszkód reprezentatywnych dla komórek krwi, jest ważna dla ruchu pasożyta do przodu9. Do tej pory nie udało się zobrazować ruchu pasożytów w krwiobiegu in vivo.
Larwy danio pręgowanego są potężnym modelem do badania interakcji gospodarz-patogen in vivo. Są małe, niedrogie i stosunkowo łatwe w hodowli w porównaniu z innymi uznanymi modelami kręgowców dla choroby Chagasa. Danio pręgowany ma wrodzony i adaptacyjny układ odpornościowy podobny do ludzkiego, ale ich adaptacyjny układ odpornościowy zaczyna się rozwijać po 4 dniach od zapłodnienia (dpf) i nie osiąga dojrzałości przez kolejne kilka tygodni10. We wczesnym okresie rozwoju, kiedy obecne są tylko makrofagi, istnieje duże okno do badania zachowania pasożytów bez natychmiastowej ingerencji immunologicznej10. Jednak największą zaletą wykorzystania larw danio pręgowanego jako modelu kręgowców do badania zachowania patogenów jest ich przezroczystość optyczna, dzięki czemu są one podatne na badania mikroskopowe i obrazowanie11. Ponadto istnieje wiele narzędzi do manipulowania genetyką ryb. Na przykład szczep Casper to zmutowana linia danio pręgowanego bez pigmentacji, co sprawia, że zwierzę jest całkowicie przezroczyste i przydatne do wizualizacji poszczególnych narządów oraz do śledzenia w czasie rzeczywistym wstrzykniętych komórek12.
Kluczowym ograniczeniem obserwacji podłużnej szybko poruszających się pasożytów u żywych ryb pręgowanego przy użyciu mikroskopii konfokalnej lub epifluorescencyjnej jest niemożność obrazowania przy dużych prędkościach akwizycji i dużych głębokościach penetracji przy dobrej jakości obrazu i niskim ryzyku fotouszkodzenia. Mikryskopia fluorescencyjna arkusza świetlnego (LSFM) to nowa technika obrazowania, która pokonuje te ograniczenia, aby umożliwić te obserwacje. Dzięki zastosowaniu jednego obiektywu do wykrywania fluorescencji i drugiego ortogonalnego obiektywu oświetleniowego, który oświetla tylko płaszczyznę ogniskową obiektywu detekcji, możliwe jest uzyskanie przekrojów optycznych o wysokiej rozdzielczości, jak w mikroskopie konfokalnym, ale ze znacznie zmniejszonymi uszkodzeniami fotowizualnymi, nawet w odniesieniu do mikroskopii epifluorescencyjnej13. Zastosowana tutaj technika LSFM nazywa się mikroskopią oświetlenia w jednej płaszczyźnie (SPIM), w której cienki arkusz światła oświetla pojedynczą płaszczyznę w larwach danio pręgowanego.
Celem tej metodologii jest ustanowienie larw danio pręgowanego jako realnego modelu niezakaźnego do zrozumienia ruchliwości T. cruzi i związanych z nią zachowań in vivo. Aby to osiągnąć, wstrzyknęliśmy przezroczyste larwy danio pręgowanego z fluorescencyjnie znakowanymi trypomastigotami, formą komórkową odpowiedzialną za zakażenie ludzi, i zidentyfikowaliśmy ruch T. cruzi w krążeniu sercowo-naczyniowym danio pręgowanego za pomocą LSFM.
Protokół
Następujące protokoły zostały zatwierdzone przez Instytucjonalny Komitet ds. Opieki i Użytkowania Zwierząt Uniwersytetu Los Andes (CICUAL). Należy ściśle przestrzegać wytycznych dotyczących poziomu bezpieczeństwa biologicznego 2 (BSL-2), aby zapobiec skażeniu patogenem T. cruzi.
Uwaga: Opieka i utrzymanie zwierząt: Casper danio pręgowany, genetycznie zmodyfikowany szczep danio pręgowanego (Danio rerio) jest używany w tym protokole ze względu na ich cenną przezroczystość optyczną we wszystkich stadiach rozwoju. Ryby są manipulowane przy użyciu optymalnych warunków opieki dla gatunku14, w 14-godzinnym cyklu świetlnym-10-godzinnym ciemnym, w temperaturze 28 ± 1 °C, w wielozbiornikowym systemie recyrkulacyjnym o kontrolowanym pH (7,0-7,4). Zwierzęta karmione są dwa razy dziennie żywymi krewetkami solankowymi (Artemia salina) i wzbogacane pokarmem hodowlanym. Wszystkie protokoły zostały zatwierdzone przez CICUAL na Universidad de los Andes (C.FUA_14-017).
1. Przygotowanie wody jajecznej
- Przygotować 0,6 g/l soli akwariowej w wodzie poddanej odwróconej osmozie (RO) lub dejonizowanej (DI) i dodać 0,01 mg/l błękitu metylenowego do roztworu.
Uwaga: Zmierzona przewodność powinna wynosić 400-500 μS/cm, a poziom pH 7,2-7,9. Aby obniżyć pH, napowietrzaj wodę z jajka przez kilka godzin.
2. Przygotowanie roztworu podstawowego Trikainy
- Przygotować 0,4% roztwór podstawowy tricainy, rozpuszczając 400 mg tricainy (MS-222) w 97,9 ml wody destylowanej (ddH2O). Po całkowitym rozpuszczeniu proszku dostosuj pH do 7,0 za pomocą 2,1 ml 1M Tris (pH 9,0) i wstaw roztwór do lodówki.
3. Przygotowanie 1,0% agarozy o niskiej temperaturze topnienia
- Rozpuść proszek agarozy o niskiej temperaturze topnienia w wodzie jajecznej do końcowego stężenia 1,0%. Podgrzej mieszaninę w kuchence mikrofalowej lub na gorącej płycie, ciągle mieszając, aż roztwór agarozy stanie się jednorodny.
- Przechowywać podwielokrotności w temperaturze 4 °C nie dłużej niż tydzień.
4. Test krycia i pobieranie zarodków
- Trzy dni przed wstrzyknięciami należy założyć krycia przy użyciu zdrowych par samców i samic ryb w zbiornikach hodowlanych. Wzbogacenie szklanymi kulkami i sztucznymi roślinami usprawnia tarło. Krycia należy zakładać w godzinach popołudniowych i pozostawiać na noc.
- Następnego ranka zbierz ikrę, opróżniając zbiornik przez sitko i myjąc jaja wodą z jaj. Usuń wszystkie jajka, odwracając sitko i wlewając przez nie wodę jajeczną na szalkę Petriego. Aby utrzymać zarodki w zdrowiu, oczyść ich wodę, usuwając wszelkie zanieczyszczenia i martwe zarodki za pomocą plastikowej pipety transferowej.
- Przenieść zarodki do inkubatora w stabilnej temperaturze 28,5 °C, aby umożliwić rozwój zarodków zgodnie ze standardami oceny stopnia zasiedlenia danio pręgowanego15. Badaj zarodki dwa razy dziennie i wyrzuć niezdolne do życia jaja, aby utrzymać lęg w zdrowiu.
5. Dechorionacja zarodka
Uwaga: Ta procedura jest wymagana, jeśli zarodki nie wykluły się w momencie wstrzyknięcia. W tej procedurze "larwy" to zwierzęta, które nie mają kosmówki od 48 godzin po zapłodnieniu (hpf).
- W dniu eksperymentu umieść szalkę Petriego zawierającą zdrowe zarodki pod stereoskopem preparacyjnym.
- Chwyć przeciwległe końce kosmówki dwoma ostrymi kleszczami (Dumont #5) i delikatnie rozerwij i rozciągnij kosmówkę. Jednorazowo wstrzykuje się około 5-6 larw, a zazwyczaj obrazuje się 3-4 .
- Usuń kosmówkę z wody za pomocą pipety transferowej.
6. Przygotowanie materiału do iniekcji
- Przygotuj igły 1,0 mm za pomocą cienkościennych szklanych kapilar i ściągacza do mikropipet z następującymi ustawieniami: 2 lekkie ciężarki + 1 duża waga, 2 mm górny uchwyt + 5 mm dolny uchwyt, 75,9 °C (krok 1) + 78,2 °C (krok 2). Przechowuj igły na szalce Petriego na pasku plasteliny. Idealna igła powinna mieć wąską końcówkę, ponieważ T. cruzi mierzy około 20 x 1-3 μm i łatwo przechodzi przez igłę. Długość końcówki może się różnić: dłuższa końcówka jest przydatna do dotarcia do głębszych struktur, ale krótsza końcówka będzie sztywniejsza, co ułatwi użytkownikowi wstrzykiwanie.
Uwaga: Rozmiar końcówki igły zależy od użytej temperatury: wyższa temperatura w kroku 2 skutkuje dłuższą i cieńszą końcówką. - Przygotuj 1,5% roztwór agarozy w ddH2O i przelej go na 10 cm szalkę Petriego. Przykryj na głębokość około 1,0 cm.
- Umieść prefabrykowaną formę do mikroiniekcji na agarozie i pozwól jej zastygnąć.
- Wyjmij prefabrykowaną formę do mikroiniekcji i dodaj wodę jajeczną do przechowywania w temperaturze 4 °C. Zapobiega to wysychaniu agarozy.
- Dodać wodę jajeczną do roztworu podstawowego tricainy do końcowego stężenia 150 mg/l. Przechowywać w temperaturze 4 °C.
7. Hodowla komórkowa dla wzrostu pasożytów
- Pasożyty są utrzymywane w ludzkiej linii komórkowej gwiaździaka (CRL-1718) przy użyciu metody opisanej przez Vargasa-Zambrano i wsp.16
- Rozpocząć hodowlę komórek ludzkich w kolbach hodowlanych T25 (powierzchnia = 25 cm2) o gęstości 2 x 10⁵ lub 4 x 10⁵ komórek w 4 ml pożywki RPMI-1640 z 10% płodową surowicą cielęcą (FCS), uzupełnioną 2 mM L-glutaminą, 4,5 g/L glukozy, 10 mM HEPES, 1 mM pirogronian, i 1% penicylina-streptomycyna (określane jako "pożywka kompletna"). Inkubować kultury gwiaździaków w temperaturze 37 °C w środowisku o stężeniu 5% CO2 .
- Gdy monowarstwa zlewa się, odłącz komórki za pomocą 2 ml 0,25% trypsyny-EDTA, inkubując je przez 3 minuty w temperaturze 37 °C. Sprawdź wzrokowo komórki pod kątem oderwania i zablokuj roztwór trypsyny za pomocą 3 ml RPMI-1640 z 10% FCS w probówce o pojemności 15 ml.
- Odwirować zawiesinę komórkową przez 5 minut przy 1 350 x g.
- Umyć otrzymany osad komórkowy w pożywce DMEM w probówce o pojemności 15 ml i odwirować przez 5 minut w temperaturze 1 350 x g w temperaturze 22 °C.
- Policz komórki ręcznie w komorze Neubauera i sprawdź żywotność w mikroskopie świetlnym przy 40-krotnym powiększeniu.
- Delikatnie ponownie zawiesić osad komórkowy w 4 ml kompletnej pożywki i użyć go do stworzenia nowych kultur komórkowych przy użyciu 2 x 10 5 komórek na kolbę hodowlaną T25.
8. T. cruzi Kultura i etykietowanie
- Pasożyty to szczep pierwotnie uzyskany od zakażonego człowieka i scharakteryzowany jako szczep T. cruzi DA (MHOM/CO/01/DA), genotyp Discrete Typing Unit (DTU) TcI16. Po 3 lub 4 dniach hodowli zebrać poruszające się pasożyty z supernatantu ludzkiej hodowli komórek gwiaździaka i wirować przez 5 minut przy 1,350 x g. Wyrzuć pożywkę.
Uwaga: Pasożyty w kompletnej pożywce mogą być używane do ponownej hodowli w stosunku 1:1 z komórkami gwiaździaka w kolbach hodowlanych T25. - Delikatnie zawiesić osad w 10 ml sterylnego 1x buforu fosforanowego soli fizjologicznej (PBS) z 0,1% FCS i wirować przez 5 minut przy 1,350 x g.
- Odrzucić supernatant i ponownie zawiesić w 1 ml PBS. Weź 10 μl do policzenia swobodnie pływających pasożytów w komorze Neubauera.
- Pobrać resztę ponownie zawieszonych pasożytów (990 μl) i dodać 1 μl estru sukcynimidylu dioctanu karboksyfluoresceiny (CFSE), końcowe stężenie 5,0 μM. Inkubować przez 10 minut w temperaturze pokojowej.
Uwaga: Zapas CFSE na poziomie 5 mM powinien być podawany i utrzymywany w temperaturze -20 °C. - Osadzanie pasożytów (1 350 x g, 5 min). Rozpuść osad pasożyta, przesuwając probówkę i przemyj w 10 ml 1x PBS-0,1% FCS, a następnie odwiruj (1 350 x g, 5 min).
- Odrzucić supernatant i delikatnie ponownie zawiesić znakowany osad pasożyta w 1X PBS o odpowiedniej objętości, aby uzyskać końcowe stężenie około 10-20 pasożytów/nL do wstrzykiwań.
- Użyj małej objętości (∼10 μl, około 1 x 10⁴ -2 x 10⁴ pasożytów) trypomastigotów, aby ocenić żywotność i oznakowanie. Odwrócony mikroskop fluorescencyjny może być używany do bezpośredniej wizualizacji pasożytów. W trybie światła przechodzącego sprawdź, czy pasożyty się poruszają. W trybie fluorescencji użyj filtra izotiocyjanianu fluoresceiny (FITC) do oceny znakowania pasożytów.
9. Wstrzykiwanie larw danio pręgowanego
- Ładowanie pasożytów
- Pobrać 10 μl pasożytów z zawiesiny (100 μl) i załadować je do szczelnie zamkniętych szklanych igieł za pomocą końcówki do pipety do mikroładowarki o pojemności 10 μl.
- Włóż szklaną igłę do uchwytu igły mikromanipulatora, użyj podstawki magnetycznej i umieść obok stereoskopu.
- Używając cienkich kleszczyków pod stereoskopem, przeciąć igłę, tworząc, otwarty koniec i zmierzyć wielkość kropli, aby uzyskać objętość wstrzyknięcia 1 nL (odpowiada to średnicy kulki 0,12-0,13 mm mierzonej w oleju mineralnym17). Preferowana jest dłuższa końcówka, aby igła mogła dotrzeć do struktur głęboko wewnątrz ryby bez uszkadzania tkanki. W tym protokole używana jest igła, ale można również użyć igły skośnej.
- Montażu
- Znieczulić larwy o sile 48 hpf za pomocą 150 mg/l trikainy. Sprawdź, czy nie reagują na dotyk, ale upewnij się, że serce bije.
- Umieść larwy w formie agarozy do mikroiniekcji w pozycji bocznej.
- Umieść uchwyt igły obok stereoskopu i wyreguluj mikromanipulator tak, aby końcówka igły znajdowała się w środku pola widzenia. Przesunąć szalkę Petriego przygotowaną w krokach 6.2-6.4 tak, aby żółtko larwy znajdowało się blisko końcówki igły. Sprawdź stan larwy, aby upewnić się, że serce nadal bije.
- Ustaw wartości mikrowtryskiwacza w następujący sposób: ciśnienie wtrysku 9,6 funta na cal (psi); ciśnienie podtrzymania: 20 psi; zakres bramkowania 100 ms; wartość okresu 1,9 (odpowiada 10,9 ms). Objętość wstrzyknięcia powinna wynosić od 1 do 3 nL, przy około 10-20 pasożytach/nL.
10. Wstrzyknięcie pasożyta
- Wstrzyknąć rybę do górnej przedniej części żółtka w przewodzie Cuviera. Ten etap powinien być praktykowany, aby zapewnić zwierzęciu przeżycie po wstrzyknięciu. Pomyślne wstrzyknięcie 5-6 larw zajmuje około 10 minut.
- Jako kontrolę wstrzyknąć 1-2 larwy o tej samej objętości nośnika (1x PBS).
- Natychmiast przenieś larwę do świeżej wody z jaj.
11. LSFM Montaż wstrzykniętych larw
- Przenieś larwę z wstrzykniętymi pasożytami na pustą szalkę Petriego i ostrożnie usuń otaczającą wodę za pomocą plastikowej pipety i chłonnego papieru. Natychmiast dodać 100 μl podgrzanej 1,0% agarozy o niskiej temperaturze topnienia (patrz krok 3 w celu przygotowania agarozy), aby przykryć larwę. Upewnij się, że temperatura agarozy nie przekracza 40 °C.
- Włóż prosty drut do szklanej kapilary o średnicy 1,0 mm i użyj go jako tłoka do zasysania larwy w pozycji pionowej. Upewnij się, że zostawiłeś niewielką ilość agarozy nad larwą. Poczekaj, aż agaroza zestali się przed odsłonięciem larwy (zajmie to kilka minut). W razie potrzeby wypchnij nadmiar agarozy poniżej larwy i odetnij ją.
- Umieść kapilarę w uchwycie na próbkę mikroskopu i wypchnij koniec zawierający larwę, aż zwisa z kapilary. Komora na próbkę powinna być wypełniona roztworem trykainy (150 mg/l) i temperaturę ustawioną na 28 °C.
- Umieść larwę przed źrenicą obiektywu wykrywania za pomocą systemu mikromanipulatora XYZ. W przypadku obrotów wokół osi pionowej należy użyć etapu obrotu. Pozycjonowanie larwy powinno odbywać się w trybie światła przechodzącego, aby wyraźnie zidentyfikować struktury larwalne.
12. Obrazowanie LSFM wstrzykniętych pasożytów
- Zmień na tryb fluorescencji i dostosuj intensywność oświetlenia, a także czas ekspozycji, aby zmniejszyć fotouszkodzenia i zoptymalizować rozdzielczość czasu. W tych konkretnych eksperymentach użyliśmy mocy 2,8-3,0 mW dla próbki i naświetliliśmy każdą klatkę przez 200 ms za pomocą kamery z pikselami 6,45 μm i ~70% wydajnością kwantową na długościach fal detekcji. Te ustawienia powinny skutkować odpowiednio naświetlonymi obrazami z prędkością około 5 klatek/s. Upewnij się, że używasz obiektywu o najwyższym możliwym otworze przysłony numerycznej.
- Rozpocznij pozyskiwanie wideo w regionie zainteresowania (ROI). W naszym przypadku obserwuje się pasożyty przyczepione do zastawek i swobodnie poruszające się w okolicy serca. Zaleca się nakręcenie filmu przedstawiającego pojedynczą płaszczyznę w czasie lub użycie mikromanipulatora lub systemu piezo-galvo do ustawiania ostrości na różnych płaszczyznach, podczas gdy pasożyt się porusza.
Uwaga: Ta procedura jest przydatna w przypadku krótkich czasów akwizycji do 2 godzin. W celu długoterminowego pozyskania larwy powinny być montowane przy użyciu alternatywnych metod20.
13. Przetwarzanie obrazów i analiza pozyskanych danych
Uwaga: Przetwarzanie obrazu zostało przeprowadzone na komputerze osobistym z procesorem 2,90 GHz, 8,00 GB pamięci i kartą graficzną z 1,00 GB pamięci.
- Otwórz pozyskany zestaw danych w wybranym oprogramowaniu do przetwarzania obrazów. Otwarte oprogramowanie FiJi jest zalecane do przetwarzania i analizy danych LSFM21.
- W oprogramowaniu do analizy obrazu dostosuj poziomy jasności i kontrastu, aby poprawić obrazy.
Uwaga: W tym przypadku nie są używane żadne stałe parametry, ale wybranie opcji "Auto" może być przydatne do uzyskania początkowego ulepszenia. - Wybierz ROI.
Uwaga: Do śledzenia poszczególnych pasożytów, FiJi ma dostępne zarówno ręczne, jak i automatyczne wtyczki śledzące.
14. Odzyskiwanie zobrazowanych larw
- Ostrożnie usuń larwę z agarozy za pomocą cienkich kleszczy i pętli do włosów. Przenieś rybę z powrotem do świeżej wody z jajami i sprawdź, czy wyzdrowieje po 15 minutach. Umieścić larwę z powrotem w inkubatorze w temperaturze 28 ± 0,5 °C.
- Alternatywnie należy przystąpić do eutanazji zobrazowanych larw za pomocą przedawkowania tricainy. Następnie należy wprowadzić larwy do roztworu podchlorynu sodu (6,15% NaClO) na 5 minut, aby zabić pasożyta. Utylizować zgodnie ze standardowymi protokołami instytucji.
Wyniki
Optymalne warunki wstrzykiwania:
Grupy larw zebrafish były wstrzykiwane w 24, 48, 72, 96 i 120 hpf w różnych miejscach anatomicznych, a ich przeżywalność była badana codziennie przez 5 dni. Po 5 dniach od wstrzyknięcia przeżywalność embrionów wstrzykniętych w 24 hpf wyniosła 6,25% (2/32), podczas gdy przeżyło 95% (38/40) larw wstrzykniętych w 48 hpf. Jako kontrolę larwy wstrzykiwano 1x PBS jako nośnik. Nie stwierdzono różnic w przeżywalności między larwami wstrzykniętymi nośnikiem a larwami wstrzykniętymi pasożytem, co wskazuje na brak wpływu pasożyta na wskaźnik przeżywalności ryb (p = 0,08). Larwy wstrzyknięte między 72 a 120 hpf wykazały wskaźniki przeżywalności porównywalne do larw wstrzykniętych w 48 hpf przy stałej objętości wstrzyknięcia. We wszystkich opisanych tutaj procedurach zastosowano larwy w 48 hpf ze względu na łatwość manipulacji, rozwinięte organy oraz łatwo penetrowalną skórę, która nie ulegała widocznemu uszkodzeniu po wstrzyknięciu.
Larwy w 48 hpf wstrzykiwano do przestrzeni osierdziowej, mięśnia ogonowego, komory tylnego mózgu, pęcherzyka słuchowego, notochordu oraz do przewodu Cuviera w worku żółtkowym. Nie stwierdzono różnic w przeżywalności larw w zależności od miejsca wstrzyknięcia. Jednak najszybciej i najłatwiej można było wykonać wstrzyknięcie w obszarze przewodu Cuviera, znajdującego się w przedniej części worka żółtkowego (Rycina 1, Film 1). Wstrzyknięcia w tym miejscu pozwoliły na wprowadzenie większych objętości przy mniejszym ryzyku uszkodzenia struktur żywotnych. Ponadto w okresie od 24 do 72 hpf obszar ten jest optymalnym miejscem do bezpośredniego dostępu do rozwijającego się układu naczyniowego i serca1.
Wizualizacja pasożytów przy użyciu LSFM:
W ciągu 8–10 min po wstrzyknięciu T. cruzi do przewodu Cuviera; pasożyty zidentyfikowano w larwach zebrafish przy użyciu LSFM dzięki sygnałowi fluorescencyjnemu CFSE oraz przejrzystości optycznej larw. Po inokulacji zaobserwowano pasożyty albo przylegające do ścian wokół układu krwionośnego, albo przemieszczające się zgodnie z kierunkiem przepływu krwi (Rysunek 2, Rysunek 3). Gdy pasożyt pozostaje przytwierdzony do struktury serca, takiej jak zastawka przedsionkowo-komorowa, oscyluje on zgodnie ze skurczami serca, co wskazuje, że molekularne mechanizmy adhezji pasożytów mogą być skuteczne w naszym modelu kręgowca (Movie 2, Movie 3, Supplemental movie 1). T. cruzi przylegały również do ścianek pęcherzyka żółtkowego larwy ( Rycina 2, Film 2), struktura, która zostanie później wchłonięta i stanie się częścią jelita danio pręgowanego22Może to być zbliżone do procesów zachodzących podczas fazy choroby przewlekłej u zainfekowanych ludzi, w której pasożyty znajdują się w kardiomiocytach oraz w układzie nerwowym przewodu pokarmowego.23,24Gdy nie były przytwierdzone, pasożyty dryfowały w krwiobiegu w tym samym kierunku co erytrocyty ( Rycina 3, Film 4). Pasożyty można było zaobserwować w naczyniach o różnej wielkości, jednak występowały one liczniej w przestrzeni osierdziowej oraz w przyległym obszarze żółtka z przepływem krwi ( Rysunek 2, Rysunek 3, Film uzupełniający 2).
W 10. minucie po wstrzyknięciu trudniej było zlokalizować pojedyncze formy pasożyta ze względu na ich rozmieszczenie wzdłuż naczyń krwionośnych oraz brak możliwości szybkiego przeglądu różnych miejsc anatomicznych ryby z powodu ograniczonego pola widzenia LSFM (przy powiększeniu 40X). Po 24 godzinach od wstrzyknięcia (hpi) sygnał CFSE zaczyna gromadzić się w obszarze w pobliżu rozwijającego się jelita (Rycina uzupełniająca 1).
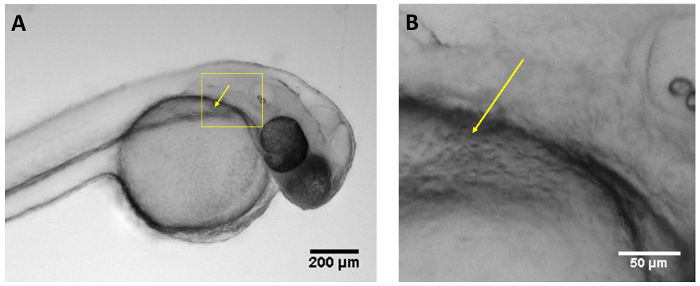
Rycina 1: Optymalne miejsce wstrzyknięcia. (A) Obraz larwy w 48. godzinie rozwoju (hpf) przedstawiający optymalne miejsce wstrzyknięcia w obrębie przewodu Cuviera (żółta strzałka) przy użyciu standardowego stereomikroskopu. (B) Powiększony widok zaznaczonego obszaru w punkcie A, przedstawiający przewód Cuviera (żółta strzałka). Pasek skali = 200 µm (A), 50 µm (B). Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
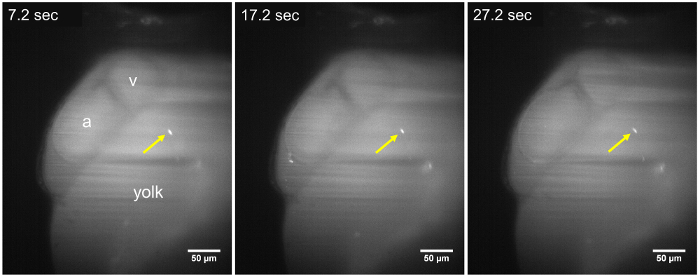
Rysunek 2: Obrazy LSFM statycznego pasożyta w larwie w 48. godzinie po zapłodnieniu (hpf). The T. cruzi pasożyt (żółta strzałka) pozostaje przyległy do ścian worka żółtkowego przez cały czas trwania sekwencji time-lapse (7,2 s, 17,2 s i 27,2 s), około 15 min po wstrzyknięciu pasożyta. W okresie akwizycji wynoszącym co najmniej 30 s nie obserwuje się zmiany położenia pasożyta. a, przedsionek; v, komora. Pasek skali = 50 µm. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tego rysunku.
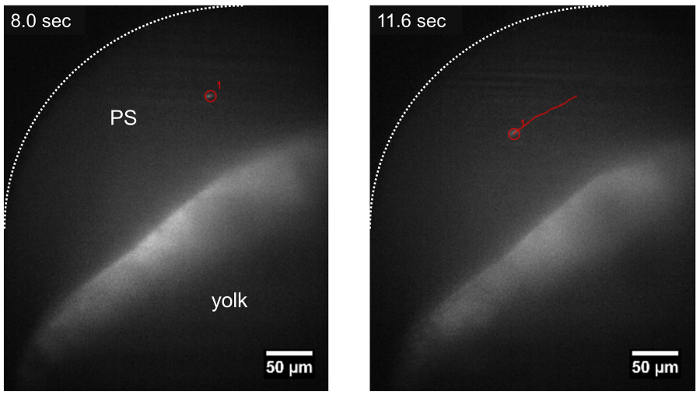
Rysunek 3: Trajektoria pasożyta przemieszczającego się w przestrzeni osierdziowej z wykorzystaniem LSFM. The T. cruzi pasożyta można śledzić podczas przemieszczania się w przestrzeni osierdziowej (PS), zgodnie z kierunkiem przepływu krwi (ścieżka zaznaczona na czerwono), około 15 min po wstrzyknięciu pasożyta. Pasek skali = 50 µm. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
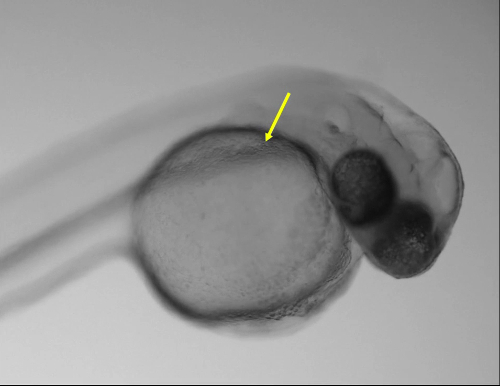
Film 1: Krążenie krwi w dolinie żółtka u larwy w 48. godzinie po zapłodnieniu. Film przedstawiający larvę w 48. godzinie rozwoju (hpf), ukazujący krążenie krwi w przewodzie Cuviera przy użyciu zwykłego stereomikroskopu. W trakcie nagrania ostrość ustawiana jest na różnych obszarach, aby ukazać krwinki przepływające przez przewód. Żółta strzałka wskazuje optymalne miejsce wstrzyknięcia. Film został zarejestrowany około 10–15 min po wstrzyknięciu pasożyta. Prosimy o kliknięcie tutaj, aby pobrać wideo.
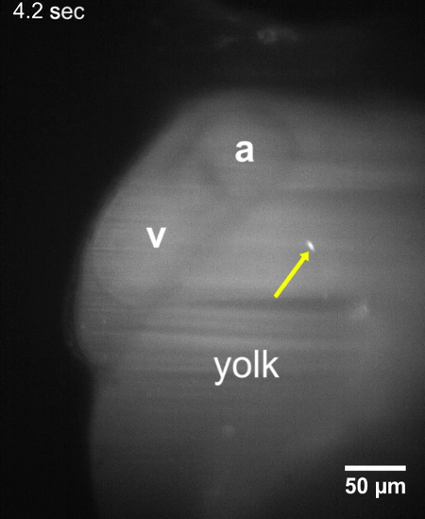
Film 2: T. cruzi pasożyty przytwierdzone do ścian woreczka żółtkowego. Film LSFM larwy w 48. godzinie po zapłodnieniu (hpf) pokazujący, że T. cruzi pasożyty pozostają przytwierdzone do pęcherzyka żółtkowego przez około 10–15 min po wstrzyknięciu pasożyta. W czasie trwania akwizycji wynoszącym co najmniej 30 s nie zaobserwowano zmiany położenia pasożyta. a, przedsionek; v, komora. Prosimy kliknąć tutaj, aby pobrać wideo.
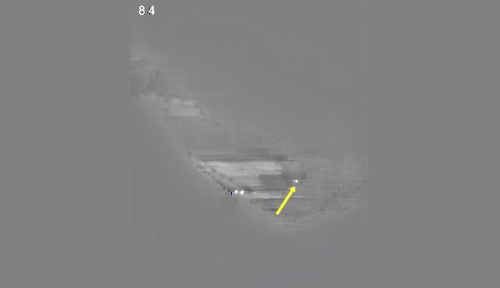
Film 3: T. cruzi pasożyty przyczepione do ścian serca. Film LSFM larwy w 48. godzinie po zapłodnieniu (hpf), pokazujący, że T. cruzi pasożyty pozostają przytwierdzone do ściany układu sercowo-naczyniowego, pomimo silnych skurczów serca około 10–15 min po wstrzyknięciu pasożytów. Erytrocyty są widoczne jako czarne, zaokrąglone cienie. Kliknij tutaj, aby pobrać film.
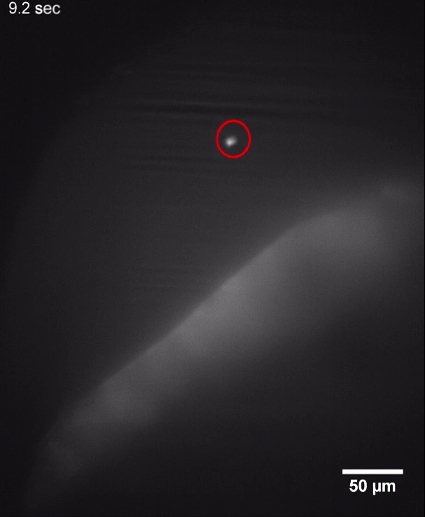
Film 4: Pasożyty poruszające się w przestrzeni osierdziowej. Film LSFM larwy w 48 hpf pokazujący T. cruzi pasożyty dryfujące w przestrzeni osierdziowej. Można śledzić dwa pasożyty w różnych punktach czasowych (ID 1, w czerwonym okręgu, oraz ID 2 w żółtym okręgu), poruszające się po podobnej trajektorii. Film został zarejestrowany około 10–15 min po wstrzyknięciu pasożytów. Kliknij tutaj, aby pobrać film.
Rysunek uzupełniający 1: Akumulacja sygnału fluorescencyjnego CFSE w żółtku. Obrazy stereoskopowe larwy typu dzikiego, wstrzykniętej w 48 hpf w obszarze przewodu Cuviera. Sygnał fluorescencyjny CFSE stopniowo gromadzi się w żółtku po dwóch dniach od wstrzyknięcia (48 hpi). Pasek skali = 50 µm. Proszę kliknąć tutaj, aby pobrać rysunek.
Film uzupełniający 1: Pasożyty przytwierdzone do ścian i zastawek układu krwionośnego. Obrazy z serii czasowej wykonane stereoskopem larwy typu dzikiego, w którą wstrzyknięto pasożyty w 48 hpf. Obrazy rejestrowano w odstępach 0,2 s, uchwycając pasożyty T. cruzi poruszające się synchronicznie ze skurczami mięśnia sercowego w obrębie zastawki przedsionkowo-komorowej. Film nagrano około 30 min po wstrzyknięciu pasożyta. Kliknij tutaj, aby pobrać wideo.
Film dodatkowy 2: Pasożyty przemieszczające się i przylegające w przestrzeni okołokomorowej oraz w żółtku. Film LSFM larwy w 48 hpf pokazujący pasożyty T. cruzi dryfujące lub przylegające do przestrzeni osierdziowej lub żółtka. Przez pierwsze 5 s widoczny jest obraz w świetle przechodzącym. Obraz fluorescencyjny widoczny jest od 5,2 do 25,8 s. Film nagrano około 10-15 min po wstrzyknięciu pasożytów. Kliknij tutaj, aby pobrać wideo.
Dyskusja
Badanie to podkreśla zalety danio pręgowanego jako modelu zwierzęcego do badania zachowania patogenów in vivo. W szczególności w niniejszym badaniu zaproponowano metodę wizualizacji patogenu T. cruzi w jego naturalnym środowisku: krążeniu hematycznym . Środowisko mikrośrodowiska krążenia u ryb jest porównywalne do środowiska ssaków, a trypanosomatydy wykształciły mechanizmy podróżowania, unikania układu odpornościowego i przyczepiania się do komórek w celu infekcji w tym środowisku25. Protokół ten zawiera opis optymalnej procedury hodowli T. cruzi w ludzkiej linii komórkowej, a następnie izolacji form wiciowych w celu znakowania fluorescencyjnego. Następnie pokazuje odpowiednie ustawienia do pomyślnego wstrzyknięcia pasożytów do przezroczystego danio pręgowanego w celu późniejszego montażu i wizualizacji za pomocą LSFM. Wreszcie, protokół ten zawiera sugestie dotyczące wydajnego i skutecznego obrazowania in vivo lokalizacji pasożyta i jego ruchu w krążeniu przy użyciu LSFM.
Wić trypanosomów wyłania się z tylnej części, wypływając z ciała komórki i zwisa swobodnie w przedniej części organizmu26. T. cruzi napędza się poprzez machanie wicią przed ciałem, co faluje całym ciałem pasożyta. Ruch wiciowy jest nie tylko niezbędny do ruchliwości pasożyta, jak w przypadku T. brucei27 (czynnik wywołujący trypanosomatozę afrykańską), ale jest również wykorzystywany do infekcji komórkowej, jak wykazano w przypadku T. cruzi 5,28. Chociaż danio pręgowany nie jest naturalnym żywicielem T. cruzi, ruchliwość pasożyta można badać w rozwijającym się układzie krążenia sercowo-naczyniowego przy użyciu opisanych tutaj protokołów. Ponadto istnieją gatunki trypanosomów, które infekują karpiowate, klasę danio pręgowanego, takie jak T. carassii i T. borreli25. Te gatunki pasożytów mogą być wykorzystywane do badania w czasie rzeczywistym ruchów i mechanizmów przyczepiania się tych trypanosomatydów; Takie badania mogą dać wgląd w proces infekcji komórek ssaków.
W tym badaniu zaobserwowano, że wstrzyknięte ruchliwe pasożyty T. cruzi przemieszczają się przez krążenie sercowo-naczyniowe zaszczepionych ryb, poruszając się wraz z nieprzezroczystymi erytrocytami i przylegając do struktur w ścianach układu sercowo-naczyniowego. Użyliśmy domowej konstrukcji LSFM z 10-krotnym achromatycznym obiektywem powietrznym o dużej odległości roboczej (17,6 mm) dla ramienia oświetleniowego o aperturze numerycznej 0,25. W ramieniu detekcyjnym zastosowano 40-krotny apochromatyczny obiektyw zanurzeniowy z aperturą numeryczną 0,8 i odległością roboczą 3,5 mm. Obiektyw detekcji był zanurzony w komorze próbki, podczas gdy obiektyw oświetleniowy znajdował się na zewnątrz komory. Port w komorze uszczelniony szkiełkiem nakrywkowym i klejem optycznym pozwalał na wejście wiązki świetlnej do komory, jak to przedstawiono w Lorenzo i wsp.18 Do oświetlenia użyliśmy lasera DPSS o mocy 50 mW i długości fali 488 nm, którego moc była modulowana przez przestrajalny filtr optyczny Acousto. W ścieżce detekcji wykorzystano filtry kompatybilne z Green Fluorescent Protein (GFP) lub FITC. Do tego zastosowania powinien być odpowiedni mikroskop z arkuszami świetlnymi wyposażony w kapilarny uchwyt na próbkę (najlepiej z automatycznym obracaniem) i kontrolę temperatury komory próbki. W razie potrzeby mikroskop należy wyrównać i skalibrować zgodnie z instrukcjami producenta lub standardowymi protokołami laboratoryjnymi użytkownika. W tym protokole sterowaliśmy mikroskopem za pomocą oprogramowania SPIM19.
Ważne jest, aby pamiętać, że w krążeniu danio pręgowanego pasożytnicze przyczepianie larw jest skuteczne. W żyle kardynalnej pasożyty pozostawały przyczepione do kilku minut; W sercu trzymały się zastawek i ścian, oscylując skurczami serca. Pozostają dalsze badania w celu wyjaśnienia, czy T. cruzi oddziałuje z przepływającymi erytrocytami, które dryfują w kierunku przepływu krwi. Wcześniejsze badania in vitro wykazały, że obecność struktur stałych (tj. komórek krwi) lub zwiększona lepkość płynu naśladująca krew in vitro ma znaczący wpływ na ruchliwość i prędkość pasożyta9.
Istnieje wiele pytań dotyczących przebiegu zakażenia T. cruzi u ludzi po ucieczce amastigotów z komórek fagocytarnych, początkowo zakażonych komórek typu29. Na przykład, w jaki sposób docierają do narządów docelowych? Jakie są mechanizmy tropizmu dla preferowanych narządów, takich jak układ sercowy, pokarmowy i ośrodkowy układ nerwowy? Co ciekawe, w tym badaniu pasożyty zostały początkowo zobrazowane w sercu, ponieważ było to miejsce o największym zagęszczeniu pasożytów. Jednak sygnał CFSE kumulował się następnie w rozwijającym się jelicie przez 7 dni po wstrzyknięciu. Chociaż anatomia ryb i ssaków jest inna, wyniki tego badania wskazują na formę tropizmu, ponieważ zaobserwowano, że pasożyty wykazywały tropizm w stosunku do znanych preferowanych narządów docelowych pomimo różnic w organizmie. Jedno z istotnych ograniczeń tego badania dotyczy temperatury stosowanej w eksperymentach. Larwy danio pręgowanego powinny być przechowywane w temperaturze około 28 °C podczas całego zabiegu. Chociaż temperatura ta może być podobna do temperatury żywiciela-wektora (owadów z podrodziny Triatominae), różni się ona znacznie od temperatury ssaków stałocieplnych, które wchodzą w skład żywicieli końcowych (około 37 °C). Wiadomo, że T. cruzi ma żywe formy wiciowe u obu gospodarzy; Należy jednak pamiętać, że czynnik ten może mieć wpływ na zachowanie zwierzęcia in vivo.
Chociaż adaptacyjny układ odpornościowy ryby nie jest dojrzały do 4 tygodni po zapłodnieniu, wrodzony układ odpornościowy jest aktywny na wczesnym etapie rozwoju10. Już w wieku 48 lub 96 hpf zaobserwowano, że komórki fagocytarne pochłonęły znakowane trypanosomy (dane nie pokazane). Ogranicza to okno czasowe na wizualizację pasożyta. Jeśli jednak badanie miałoby koncentrować się na ocenie odpowiedzi immunologicznej ryby, może być zalecane wstrzyknięcie w późniejszych etapach. Również wstrzykiwanie pasożytów do transgenicznych linii rybnych ze znakowanymi makrofagami lub innymi komórkami układu odpornościowego może być przydatne w badaniu przyczepiania się pasożytów i możliwych mechanizmów endocytozy. Ważne jest, aby pamiętać, że jeśli pasożyty są znakowane CFSE, znaczniki komórek transgenicznych nie powinny być GFP i wymagany jest marker na żółtym lub czerwonym końcu spektrum.
Aby ocenić szczegółowy kierunek przemieszczania się pasożytów, przydatne może być prześledzenie ich trajektorii w 3 wymiarach (3D). Do wizualizacji 3D i rekonstrukcji procesu niezbędny jest system o dużej prędkości. Dzięki sprzętowi użytemu w tym protokole możliwe jest uwidocznienie pasożytów tylko w jednej płaszczyźnie. W tym przypadku priorytetem było dla nas utrzymanie stabilności płaszczyzny ogniskowej podczas ruchu pasożyta i rejestrowanie jego trajektorii w jednej płaszczyźnie.
Zaproponowana tutaj metodologia toruje drogę do dalszych badań nad zachowaniem pasożytów w krążeniu sercowo-naczyniowym. Podsumowując, podstawowymi etapami obrazowania żywych fluorescencyjnych pasożytów wewnątrz larw danio pręgowanego są: (i) wykorzystanie wcześnie wyklutych zarodków (24-48 hpf) lub larw lub zwierząt o mocy 72-96 hpf bez pigmentacji, tak aby były przezroczyste i łatwe do wstrzyknięcia; (ii) zobrazować larwy tak szybko, jak to możliwe po wstrzyknięciu, aby uniknąć usunięcia pasożyta przez komórki fagocytarne; oraz (iii) skoncentrować LSFM na miejscu zainteresowania (np. okolicy osierdzia) i utrzymać ostrość. Ta nowatorska procedura pozwala na wizualizację trypomastigotów w środowisku porównywalnym z ich naturalną niszą infekcyjną, zapewniając po raz pierwszy możliwość zbadania T. cruzi w żywym organizmie.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca była wspierana przez Convocatoria Interfacultades z Vicerrectoría de Investigaciones de la Universidad de los Andes, oraz program stypendialny USAID Research and Innovation Fellowship. Dziękujemy Juanowi Rafaelowi Buitrago i Yeferzonowi Ardili za utrzymanie ryb i pomoc.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,5-10 &m; L Mikropipeta | Fisherbrand | 21-377-815 | |
| Agaroza RA | Amresco | N605 | Regularna |
| Agaroza SFR | Amresco | J234 | Niska temperatura topnienia |
| Sól akwariowa | Instant ocean | SS15-10 | |
| Komora zliczania komórek | Boeco | Neubauer | |
| Kolby do hodowli komórkowych | Corning | 430639 | |
| Wirówka | Sorvall | Legend RT | |
| CFSE | ThermoFisher | C34554 | |
| Cel detekcji | Nikon 40x 0.8NA | 40x CFI APO NIR | |
| DMEM średni | Sigma-Aldrich | D5648 | |
| Dumont #5 drobne | kleszcze Światowa precyzja Instrumenty | ||
| Sól metanosulfonianu etylu 3-aminobenzoesanu (Trikaina) | Sigma-Aldrich | A5040 | |
| Surowica cielęca płodu (FCS) | Eurobio | CVFSVF00-01 | |
| Filtr | Chroma | ET-525/50M | |
| Szklane kapilary do montażu zarodków | Vitrez Medical | 160215 | |
| Szklane kapilary do ciągnięcia igieł | Światowe instrumenty precyzyjne | TW100-4 | |
| Glukoza | Gibco | A2494001 | |
| HEPES | Gibco | 156300-80 | |
| Inkubator | Thermo Corporation | Revco | |
| Larwa mikrowtryskiwacz | Adaptacyjne narzędzia naukowe | I-34 | |
| Kryształaz | laserowy | DL488-050 | |
| L-glutamina | Gibco | 250300-81 | |
| Błękit metylenowy | Albor Quí micos | 12223 | |
| Mikromanipulator | System mikromanipulacyjny Narishige | MN-153 | |
| Instrument Sutter | MP-200 | Do LSFM | |
| Urządzenie do ściągania mikropipet | Mikroskop Narishige | PC-10 | |
| Mikroskop Olympus | CX31 | ||
| (odwrócony) | Olympus | CKX41 | |
| Mikroskop uniwersalny | Nikon | AZ100M | |
| Komora licząca Neubauer | Boeco Niemcy | ||
| Penicylina-streptomycyna | Gibco | 15140-163 | |
| szalka Petriego 94x16 | Greiner bio-one | 633181 | |
| Plastikowa pipeta | Pasteura Fisherbrand | 11577722 | |
| Stopień rotacji | Newport | CONEX-PR50CC | |
| RPMI-1640 średni | Sigma-Aldrich | R4130 | |
| Pirogronian sodu | Gibco | 11360-070 | |
| Stereoskop | Nikon | C-LEDS | |
| Tricaine (MS-222) | Sigma-Aldrich | 886-86-2 | |
| TRIS | Amresco | M151 | |
| Trypsin-EDTA (0.25%) | Gibco | R-001-100 | |
| Tubki 15 ml | Corning | 05-527-90 |
Bibliografia
- WHO. Chagas disease (American trypanosomiasis). , http://www.who.int/mediacentre/factsheets/fs340/en/ (2017).
- Bern, C. Chagas's Disease. New England Journal of Medicine. 373 (5), 456-466 (2015).
- Sosa Estani, S., Segura, E. L., Ruiz, A. M., Velazquez, E., Porcel, B. M., Yampotis, C. Efficacy of chemotherapy with benznidazole in children in the indeterminate phase of Chagas’ disease. The American Journal of Tropical Medicine and Hygiene. 59 (4), 526-529 (1998).
- Rosas, F., Roa, N., Cucunuba, Z. M., Cuellar, A., Gonzalez, J. M., Puerta, J. C. Chagasic Cardiomyopathy. Cardiomyopathies - From Basic Research to Clinical Management. , (2012).
- Finkelsztein, E. J., et al. Altering the motility of Trypanosoma cruzi with rabbit polyclonal anti-peptide antibodies reduces infection to susceptible mammalian cells. Experimental Parasitology. 150, 36-43 (2015).
- Martins, R. M., Covarrubias, C., Rojas, R. G., Silber, A. M., Yoshida, N. Use of L-Proline and ATP Production by Trypanosoma cruzi Metacyclic Forms as Requirements for Host Cell Invasion. Infection and Immunity. 77 (7), 3023-3032 (2009).
- Engstler, M., et al. Hydrodynamic Flow-Mediated Protein Sorting on the Cell Surface of Trypanosomes. Cell. 131 (3), 505-515 (2007).
- Uppaluri, S., et al. Impact of Microscopic Motility on the Swimming Behavior of Parasites: Straighter Trypanosomes are More Directional. PLoS Computational Biology. 7 (6), e1002058(2011).
- Heddergott, N., et al. Trypanosome Motion Represents an Adaptation to the Crowded Environment of the Vertebrate Bloodstream. PLoS Pathogens. 8 (11), e1003023(2012).
- Gratacap, R. L., Wheeler, R. T. Utilization of zebrafish for intravital study of eukaryotic pathogen–host interactions. Developmental & Comparative Immunology. 46 (1), 108-115 (2014).
- Meijer, A. H., Spaink, H. P. Host-Pathogen Interactions Made Transparent with the Zebrafish Model. Current Drug Targets. 12 (7), 1000-1017 (2011).
- White, R. M., et al. Transparent Adult Zebrafish as a Tool for In Vivo Transplantation Analysis. Cell Stem Cell. 2 (2), 183-189 (2008).
- Huisken, J. Slicing embryos gently with laser light sheets. BioEssays. 34 (5), 406-411 (2012).
- Westerfield, M. The zebrafish book: A guide for the laboratory use of zebrafish (Danio rerio). , University of Oregon Press. Eugene. http://zfin.org/zf_info/zfbook/zfbk.html (2000).
- Kimmel, C. B., Ballard, W. W., Kimmel, S. R., Ullmann, B., Schilling, T. F. Stages of embryonic development of the zebrafish. Developmental Dynamics. 203 (3), 253-310 (1995).
- Vargas-Zambrano, J. C., Lasso, P., Cuellar, A., Puerta, C. J., González, J. M. A human astrocytoma cell line is highly susceptible to infection with Trypanosoma cruzi. Memórias do Instituto Oswaldo Cruz. 108 (2), 212-219 (2013).
- Rosen, J. N., Sweeney, M. F., Mably, J. D. Microinjection of Zebrafish Embryos to Analyze Gene Function. JoVE (Journal of Visualized Experiments). (25), e1115-e1115 (2009).
- Lorenzo, C., et al. Live cell division dynamics monitoring in 3D large spheroid tumor models using light sheet microscopy. Cell Division. 6, 22(2011).
- Edelstein, A. D., Tsuchida, M. A., Amodaj, N., Pinkard, H., Vale, R. D., Stuurman, N. Advanced methods of microscope control using μManager software. Journal of Biological Methods. 1 (2), e10(2014).
- Weber, M., Mickoleit, M., Huisken, J. Multilayer Mounting for Long-term Light Sheet Microscopy of Zebrafish. Journal of Visualized Experiments. (84), (2014).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nature Methods. 9 (7), 676-682 (2012).
- Ng, A. N. Y., et al. Formation of the digestive system in zebrafish: III. Intestinal epithelium morphogenesis. Developmental Biology. 286 (1), 114-135 (2005).
- Higuchi, M. D. L., et al. Correlation between Trypanosoma cruzi parasitism and myocardial inflammatory infiltrate in human chronic chagasic myocarditis: Light microscopy and immunohistochemical findings. Cardiovascular Pathology: The Official Journal of the Society for Cardiovascular Pathology. 2 (2), 101-106 (1993).
- Vago, A. R., Silva, D. M., Adad, S. J., Correa-Oliveira, R., d'Avila Reis, D. Chronic Chagas disease: presence of parasite DNA in the oesophagus of patients without megaoesophagus. Transactions of the Royal Society of Tropical Medicine and Hygiene. 97 (3), 308-309 (2003).
- Wiegertjes, G. F., Forlenza, M., Joerink, M., Scharsack, J. P. Parasite infections revisited. Developmental & Comparative Immunology. 29 (9), 749-758 (2005).
- De Souza, W. Basic cell biology of Trypanosoma cruzi. Current Pharmaceutical Design. 8 (4), 269-285 (2002).
- Langousis, G., Hill, K. L. Motility and more: the flagellum of Trypanosoma brucei. Nature Reviews. Microbiology. 12 (7), 505-518 (2014).
- Johnson, C. A., et al. Cellular response to Trypanosoma cruzi infection induces secretion of defensin α-1, which damages the flagellum, neutralizes trypanosome motility, and inhibits infection. Infection and Immunity. 81 (11), 4139-4148 (2013).
- Magalhães, L. M. D., Viana, A., Chiari, E., Galvão, L. M. C., Gollob, K. J., Dutra, W. O. Differential Activation of Human Monocytes and Lymphocytes by Distinct Strains of Trypanosoma cruzi. PLoS neglected tropical diseases. 9 (7), e0003816(2015).
Przedruki i uprawnienia
