Opisujemy procedurę histochemiczną, która ujawnia charakterystyczne wzorce barwienia laminarnego i powierzchniowego w różnych obszarach mózgu. Wzór barwienia może być używany w połączeniu z innymi markerami anatomicznymi, aby niezawodnie rozróżniać warstwy i regiony w rozwijającym się i dorosłym mózgu.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Zastosowanie synaptycznej histochemii w celu ujawnienia różnych regionów i blaszek w rozwijającym się i dorosłym mózgu
W tym artykule
Podsumowanie
Streszczenie
Charakterystyka anatomicznej i funkcjonalnej organizacji i rozwoju mózgu wymaga dokładnej identyfikacji odrębnych obwodów i regionów neuronalnych w niedojrzałym i dorosłym mózgu. Tutaj opisujemy procedurę barwienia histochemicznego, która ujawnia różnice we wzorach barwienia między różnymi warstwami i regionami mózgu. Inni wykorzystali tę procedurę nie tylko do ujawnienia rozmieszczenia neuronów i obwodów zawierających w mózgu, ale także do pomyślnego wyznaczenia granic powierzchniowych i laminarnych w rozwijającym się i dorosłym mózgu u kilku gatunków. Tutaj ilustrujemy tę procedurę barwienia obrazami z rozwijających się i dorosłych mózgów fretek. Ujawniamy wzór barwienia, który służy jako anatomiczny marker obszarów i warstw i może być niezawodnie używany do rozróżniania obszarów kory wzrokowej w rozwijającej się i dorosłej korze wzrokowej. Głównym celem tego protokołu jest przedstawienie metody histochemicznej, która pozwala na dokładną identyfikację warstw i regionów w rozwijającym się i dorosłym mózgu, gdzie inne metody tego nie robią. Po drugie, w połączeniu z densytometryczną analizą obrazu, metoda ta pozwala ocenić rozkład synaptycznego, aby ujawnić potencjalne zmiany w trakcie rozwoju. Protokół ten szczegółowo opisuje odczynniki, narzędzia i kroki niezbędne do sukcesywnego barwienia zamrożonych fragmentów mózgu. Chociaż protokół ten jest opisany przy użyciu tkanki mózgowej fretki, można go łatwo dostosować do stosowania u gryzoni, kotów lub małp, a także w innych obszarach mózgu.
Wprowadzenie
Plamy histologiczne były tradycyjnie używane do pomocy w identyfikacji obszarów korowych u różnych gatunków poprzez ujawnianie różnic w cechach architektonicznych. Połączone zastosowanie technik histochemicznych, takich jak substancja Nissl, reaktywność oksydazy cytochromowej (CO) lub mielina, może okazać się owocne, ponieważ ujawniają podobne granice powierzchniowe w dorosłym mózgu. Jednak te plamy histochemiczne nie zawsze odpowiednio ujawniają wyraźne granice między obszarami i warstwami kory mózgowej w niedojrzałym mózgu.
W ośrodkowym układzie nerwowym pełni kilka kluczowych funkcji, takich jak stabilizacja struktury DNA, działanie jako kofaktor enzymu, udział w licznych funkcjach regulacyjnych oraz działanie jako neuromodulator poprzez swoją obecność w pęcherzykach synaptycznych1. synaptyczny jest wyjątkowy, ponieważ można go uwidocznić za pomocą metod histologicznych, podczas gdy związany z białkiem nie może być wizualizowany2. Ta cecha została wykorzystana do ujawnienia synaptycznego wzorca w różnych regionach kory mózgowej, a synaptyczna histochemia została wykorzystana w wielu badaniach. Podzbiór neuronów glutaminergiczny w korze mózgowej zawiera w pęcherzykach presynaptycznych w ich końcach aksonów3,4. Badania histochemiczne wykazały niejednorodny rozkład synaptycznego w korze mózgowej5,6,7. Wydaje się, że istnieje różny powierzchniowy i laminarny rozkład histochemicznie reaktywnego w różnych obszarach kory mózgowej (np. kora wzrokowa kontra kora somatosensoryczna) lub warstwach (np. poziomy w warstwach nadziarnistych i podziarnistych pierwszorzędowej kory wzrokowej są znacznie wyższe niż w warstwie wejściowej IV wzgórza przy stosunkowo niskich poziomach synaptycznego)5,8,9. Niejednorodność synaptycznego barwienia obserwowana w korze jest szczególnie korzystna, ponieważ ułatwia identyfikację powierzchniową i laminarną.
Tutaj prezentujemy szczegółowy opis synaptycznej procedury histochemicznej, która jest zmodyfikowaną wersją metody Danschera z 1982 roku10. Metoda ta wykorzystuje selenit wstrzykiwany dootrzewnowo (IP) zwierzętom jako czynnik chelatujący. selenit przemieszcza się do mózgu, aby reagować z pulami wolnego znajdującymi się w pęcherzykach podzbioru synaps glutaminergicznego w mózgu. W wyniku tej reakcji powstaje osad, który może być następnie wzmocniony przez rozwój srebra2,10,11.
Ta procedura ujawnia laminarne i powierzchniowe wzorce synaptycznego barwienia; analiza densytometryczna może być wykorzystana do oceny tych wzorców zarówno jakościowo, jak i ilościowo w dorosłym i niedojrzałym mózgu, do badania efektów innych interwencji, takich jak manipulacje sensoryczne, środowiskowe, farmakologiczne lub genetyczne. Co więcej, można również chcieć ocenić potencjalne zmiany rozwojowe w dystrybucji synaptycznego w innych strukturach korowych lub podkorowych w innych systemach modelowych. Informacje ilościowe, które analiza densytometryczna dostarcza w tej metodzie, mogą być korzystne dla śledzenia rozwoju mózgu w czasie. Protokół ten stanowi uzupełnienie innych markerów immunologicznych i histochemicznych w celu ujawnienia granic laminarnych i powierzchniowych.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Poniższy protokół jest zgodny z wytycznymi dotyczącymi opieki nad zwierzętami ustanowionymi przez Institutional Animal Care and Use Committee (IACUC) w The City College of New York, które są zgodne ze wszystkimi odpowiednimi wytycznymi stanowymi i federalnymi. Zastosowanie znieczulenia jest odpowiednie dla fretkek i powinno być modyfikowane w zależności od badanych gatunków.
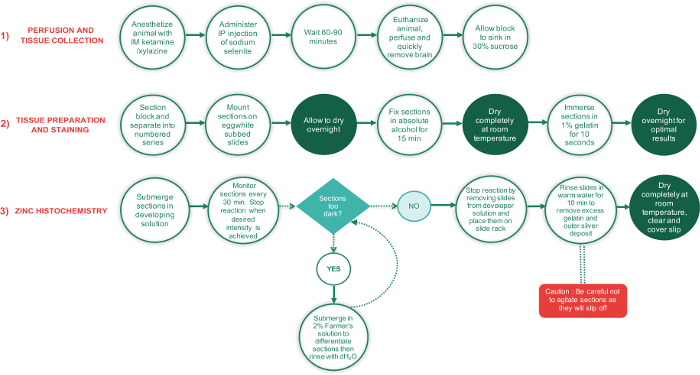
Rycina 1: Schemat blokowy przedstawiający główne etapy trzech faz niniejszego protokołu oraz czas wymagany do ukończenia każdego kroku. Okresy wymagające całkowitego wyschnięcia skrawków zaznaczono zielonymi okręgami, natomiast wszystkie pozostałe etapy znajdują się w białych okręgach. Zielony romb stanowi punkt decyzyjny, a czerwony prostokąt oznacza krok krytyczny, który należy wykonać ze szczególną starannością. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
1. Kroki przygotowawcze (podkładanie szkiełek i przygotowywanie roztworów)
- Umyj niepowlekane szkiełka detergentem w gorącej wodzie i wypłucz kilkakrotnie w ciepłej wodzie, a następnie przepłucz wodą destylowaną, aby całkowicie usunąć wszelkie zabrudzenia lub zanieczyszczenia. Pozostaw szkiełka do wyschnięcia w temperaturze pokojowej lub w inkubatorze w 37 °C.
- Gdy szkiełka będą całkowicie suche, nanieś palcami lub pędzlem cienką, równomierną warstwę białka jaja na każde szkiełko. Pozostaw do wyschnięcia w inkubatorze w 60 °C przez 20 - 30 min. Aby uzyskać optymalne wyniki i zapobiec odklejaniu się skrawków, nanieś drugą warstwę białka jaja i ponownie wysusz w inkubatorze w 60 °C.
- Przygotuj 1% roztwór żelatyny, rozpuszczając 1 g żelatyny w 100 mL gorącej wody (60 °C), a następnie pozwól mu ostygnąć do temperatury pokojowej.
- Przygotuj 200 mL roztworu wywoływacza zgodnie z poniższym opisem do wykorzystania w sekcji 4.
- Przygotuj roztwór gumy arabskiej, dodając powoli 40 g w kilku partiach do 120 mL gorącej wody (w ten sposób rozpuszcza się łatwiej). Cały czas mieszaj roztwór szklaną prętką. Po całkowitym rozpuszczeniu zdejmij roztwór z ogniu i pozostaw do ostygnięcia przez kilka minut, a następnie przefiltruj przez sicie z 6 - 8 warstw gazy.
- Przygotuj bufor cytrynianowy, dodając 5,04 g kwasu cytrynowego oraz 4,7 g cytrynianu sodu do 20 mL dH2O i rozpuszczając mieszaninę. Upewnij się, że pH tego roztworu wynosi 4,0 w 25 °C. W razie potrzeby skoryguj pH, dodając do roztworu wodorotlenek sodu lub kwas solny.
- Przygotuj roztwór hydrochinonu, podgrzewając 30 mL dH2O i rozpuszczając w nim 1,7 g hydrochinonu.
UWAGA: Podgrzanie roztworu hydrochinonu jest niezbędne, aby umożliwić jego łatwe rozpuszczenie, ponieważ hydrochinon nie rozpuszcza się łatwo w wodzie w temperaturze pokojowej. Należy uważać, aby temperatura wody nie przekroczyła 60 °C, w przeciwnym razie hydrochinon może ulec utlenieniu. Jeśli roztwór stanie się żółty, należy go wylać i przygotować nową porcję. - Przygotuj roztwór mleczanu srebra, rozpuszczając 0,22 g w 30 mL dH2O.
- Wymieszaj roztwory (1.4.1 - 1.4.4) w opisanej kolejności w momencie rozpoczęcia reakcji (tzn. po skrawaniu, suszeniu i utrwalaniu) (Rysunek 2). Na końcu dodaj roztwór mleczanu srebra. Upewnij się, że ten krok zostanie wykonany szybko, a roztwór wywoływacza zostanie umieszczony w ciemności do czasu reakcji ze skrawkami, ponieważ mleczan srebra jest światłoczuły.
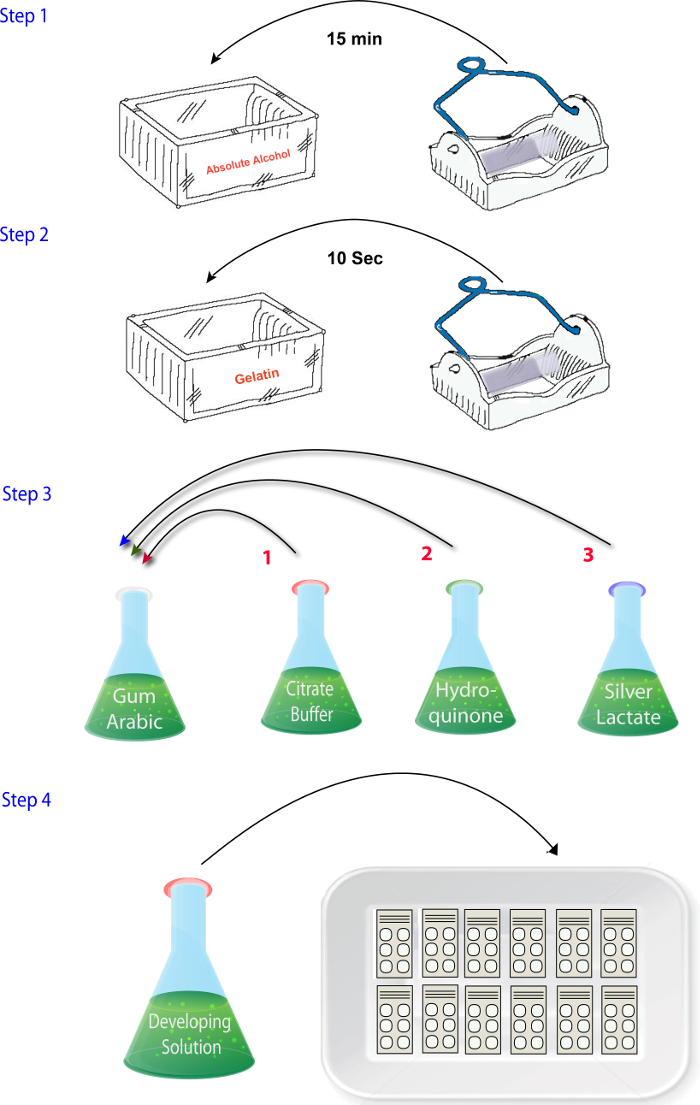
Rycina 2: Schemat ilustrujący sekwencję kroków związanych z mieszaniem odczynników w fazie histochemii cynku protokołu. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
2. Postępowanie ze zwierzętami i znieczulenie
- Przed sedacją zwierzęcia przygotować 1% roztwór selenitu sodu (Na2SeO3), rozpuszczając 10 mg selenitu sodu w 1 mL dH2O.
- Znieczulić zwierzę poprzez domięśniowy zastrzyk z ketaminy (25 mg/kg) i ksylazyny (2 mg/kg).
UWAGA: Odpowiedni poziom znieczulenia należy zweryfikować, sprawdzając odruch cofania łapy. - Wstrzyknąć dootrzewnowo (IP) roztwór selenitu sodu jako chelatora cynku (15 mg/kg).
UWAGA: Toksyczność selenitu sodu może różnić się w zależności od wieku zwierzęcia lub gatunku. - Odczekać od 60 do 90 min, aby selenit sodu dotarł do mózgu. W tym czasie należy bezwzględnie upewnić się, że zwierzę jest odpowiednio zsedowane i nie reaguje na bodźce, dlatego należy sprawdzać głębokość znieczulenia co 5 min.
- Podczas okresu działania selenitu, gdy zwierzę jest pod wpływem znieczulenia, należy upewnić się, że oczy są zamknięte, aby zapobiec ich wysychaniu, lub zastosować maść okulistyczną w celu utrzymania ich wilgotności.
3. Przygotowanie i barwienie tkanek
- Uśmierć zwierzę poprzez podanie przedawki pentobarbitalu sodowego (100 mg/kg, i.p.).
- Wykonaj perfuzję transkardialną roztworem soli fizjologicznej przez 1 min, a następnie 4% paraformaldehydem przez 20 min. Na koniec podaj roztwór 4% paraformaldehydu i 10% sacharozy (całkowity czas fiksacji wynosi 1 h).
- Odetnij głowę za pomocą dużych nożyczek chirurgicznych.
- Za pomocą skalpela wykonaj nacięcie w linii środkowej od nosa do szyi, aby odsłonić czaszkę.
- Ostrożnie wyjmij mózg i oddziel półkule za pomocą ostrza.
- Zablokuj tylną część mózgu i przeprowadź postfiksację w 4% paraformaldehydzie w 0,1 M buforze fosforanowym (PB) przez kilka godzin.
- Umieść bloki w 30% roztworze sacharozy w 0,1 M PB i poczekaj, aż mózg opadnie na dno.
UWAGA: Zastąpienie 4% paraformaldehydu i 30% roztworu sacharozy roztworem 30% sacharozy w 0,1 M PB w celu zatopienia mózgu ogranicza ekspozycję tkanki na paraformaldehyd, co może wpłynąć na jakość barwienia. - Gdy mózg opadnie, wykonaj półtangencjalne cięcia o grubości 40 µm przez korę wzrokową lub obszar zainteresowania, używając mikrotomu ślizgowego z zamrażarką lub kriotomu. Można to osiągnąć, kładąc blok powierzchnią przyśrodkową do dołu i delikatnie spłaszczając go za pomocą szkiełka przedmiotowego.
- Zbierz skrawki pędzlem i przechowuj w kasetce z solą fizjologiczną buforowaną fosforanem (PBS).
- Podziel skrawki na osobne, ponumerowane serie. Natychmiast przymocuj jedną lub dwie serie skrawków mózgu do szkiełek pokrytych białkiem jaja (sekcja 1), pozostaw do wyschnięcia przez noc w temperaturze pokojowej i przetwórz skrawki histochemicznie w celu wykazania cynku synaptycznego.
UWAGA: Inne serie mogą zostać przetworzone w celu wykazania innych markerów porównawczych, takich jak mielina12 lub cytochromoksydaza zgodnie z zmodyfikowanym protokołem13: inkubuj przez 2 - 8 h w 40 °C z 3% sacharozą, 0,015% cytochromu C, 0,015% katalazy i 0,02% diaminobenzydyny w 0,1 M PB. Substancja Nissla może być również użyta jako marker histologiczny do rozróżnienia obszarów kory wzrokowej. Te pozostałe barwienia histologiczne nie wymagają mocowania skrawków mózgu na szkiełkach pokrytych białkiem jaja, więc można zamiast nich użyć tradycyjnych szkiełek pokrytych żelatyną.
4. Histochemia cynku synaptycznego
- Utwierdź przekroje zamocowane na szkiełkach w alkoholu absolutnym przez 15 min, a następnie pozostaw do całkowitego wyschnięcia w temperaturze pokojowej przez 1 h.
- Krótko zanurz przekroje na 10 s w 1% roztworze żelatyny (sekcja 1) i pozostaw do wyschnięcia przez noc w temperaturze pokojowej.
UWAGA: Dla uzyskania optymalnych wyników należy pozostawić przekroje do wyschnięcia przez noc. Pozostawienie przekrojów do wyschnięcia przez noc zapewnia lepsze barwienie tkanek. - Wymieszaj roztwory zgodnie z opisem w kroku 1.8 natychmiast przed przystąpieniem do reakcji z przekrojami.
- Przeprowadź reakcję, układając szkiełka obok siebie w szklanej lub plastikowej kuwecie i wlewając na nie roztwór wywołujący. Upewnij się, że szkiełka są całkowicie zanurzone w roztworze, a następnie przenieś kuwetę w ciemne miejsce lub przykryj pudełkiem nieprzepuszczającym światła.
UWAGA: Można użyć plastikowej kuwety o wymiarach około 12 cali długości i 8 cali szerokości, w której mieści się dokładnie 18 szkiełek. Całkowita objętość 200 mL roztworu wywołującego jest wystarczająca do pełnego zanurzenia szkiełek; należy zatem upewnić się, że użyto odpowiedniej objętości dla liczby szkiełek przeznaczonych do reakcji i odpowiednio dostosować proporcje składników. Zaleca się stosowanie kuwety plastikowej lub szklanej zamiast metalowej, ponieważ między mleczanem srebra w roztworze wywołującym a żelazem lub innymi metalami występującymi w kuwetach metalowych może dojść do reakcji krzyżowej.
- Przeprowadź reakcję, układając szkiełka obok siebie w szklanej lub plastikowej kuwecie i wlewając na nie roztwór wywołujący. Upewnij się, że szkiełka są całkowicie zanurzone w roztworze, a następnie przenieś kuwetę w ciemne miejsce lub przykryj pudełkiem nieprzepuszczającym światła.
- Monitoruj przebieg reakcji, dokonując oględzin przekrojów co 30 min. Pełne wywołanie przekrojów trwa zazwyczaj od 120 do 180 min.
- W przypadku zbyt intensywnego zabarwienia przekrojów (patrz Rysunek 3a), przeprowadź odbarwianie w 2% roztworze Farmera (9 części 2% tiosiarczanu sodu w dH2O i 1 część 2% ferrycyjanianu potasu w dH2O) przez 1 - 2 min.
UWAGA: Przykładowy przekrój ze słabym zabarwieniem przedstawiono na Rysunku 3b. - Po uzyskaniu pożądanej intensywności przerwij reakcję, wyjmując szkiełka z kuwety i umieszczając je w statywie do szkiełek.
- Umieść statyw w dużym szklanym naczyniu do barwienia i płucz szkiełka w ciepłej (40 - 50 °C) bieżącej wodzie przez 10 min, aby usunąć warstwę żelatyny oraz zewnętrzny osad srebra.
UWAGA: Należy uważać, aby nie potrząsać statywem, by zapobiec zsunięciu się przekrojów. Pożądaną intensywność przekroju uzyskuje się, gdy widoczna jest wystarczająca zmienność laminarna, a przekroje są odpowiednio ciemne, ale nie przereagowane (patrz Rysunek 4a). - Pozostaw szkiełka do wyschnięcia w temperaturze pokojowej, a następnie odwodnij w 100% EtOH (5 min), przejaśnij w ksylenie (5 min) i przykryj szkiełkiem za pomocą medium montażowego. Alternatywnie, umieść szkiełka w rosnącej serii stężeń alkoholu, a następnie odwodnij, przejaśnij i przykryj szkiełkiem.
- W charakterze kontroli negatywnej wykorzystaj przekroje od zwierząt, które nie były wcześniej poddane traktowaniu selenitem. Amplifikacja srebra w tych przekrojach nie powinna dać zabarwienia.
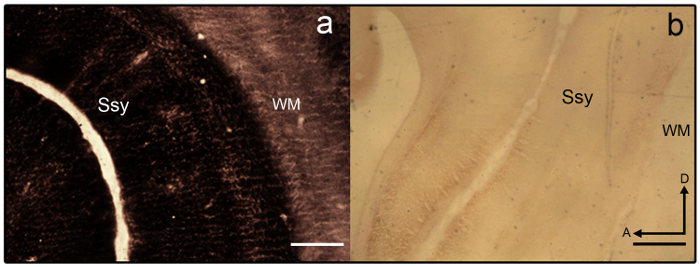
Rycina 3: Barwienie cynku synaptycznego w mózgu młodego fretki. Fotomikrografie półtangencjalnych przekrojów barwionych cynkiem w mózgu młodego fretki, które są a) przebarwione i b) niedobarwione. Granice obszarów są trudne do rozróżnienia ze względu na brak zmienności warstwowej. Istota biała jest również intensywnie zabarwiona. Ssy kora suprasylvian, WM istota biała, A przednia, D grzbietowa. Pasek skali = 500 µm (a-b). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
5. Rozróżnianie granic obszarów i akwizycja obrazu
- Wykorzystać cechy architektoniczne różnych obszarów mózgu do identyfikacji obszarowej i laminarnej.
UWAGA: Na przykład w rozwijającej się korze retrosplenialnej szczura14 autorzy wykazali przejściową modularność charakteryzującą się intensywnym barwieniem na cynk, która nie występuje u osobników dorosłych, ale może zostać wykorzystana do opisu organizacji kory podczas rozwoju u tego gatunku. W innym badaniu15 autorzy wykazali swoistość rozkładu cynku synaptycznego w różnych jądrach migdałowatego małpy makaka, co ułatwia identyfikację tych podziałów. Obszary kory wzrokowej w rozwijającym się i dorosłym mózgu fretki zostały opisane wcześniej16,17,18, a podział architektoniczny neocortex wiewiórki szarej został opisany w pracy19. Ponadto histochemia cynku była wcześniej stosowana do rozróżniania obszarów w korze wzrokowej dorosłej małpy8, rozwijającej się i dorosłej kory wzrokowej kota5, rozwijającej się kory somatosensorycznej szczura9,20 oraz dorosłej kory somatosensorycznej myszy6,21. Jeśli są dostępne, porównać wzór barwienia w przekrojach mózgu barwionych na mielinę, oksydazę cytochromową (CO) oraz cynk synaptyczny, aby potwierdzić granice obszarów u osobników dorosłych. W przekrojach półtangencjalnych kory wzrokowej fretki barwionych na cynk synaptyczny występują wyraźne różnice między obszarami kory wzrokowej, które ułatwiają identyfikację obszarową. Na przykład obszary 17 i 18 dorosłej fretki wykazują wysokie nasilenie barwienia na cynk synaptyczny w warstwach I-III i V. Warstwa VI barwi się mniej intensywnie, podczas gdy w warstwie IV cynk niemal nie występuje. Wyraźny brak barwienia na cynk w warstwie IV obszarów 17 i 18 kontrastuje z ciemno barwionym pasmem występującym w warstwie IV w przekrojach barwionych na CO. Jednakże warstwa IV obszaru 17 w przekrojach barwionych na CO zachowuje ostrą granicę z warstwami III i V, natomiast warstwa IV w obszarze 18 charakteryzuje się subtelnym spadkiem intensywności barwienia, a jej górna granica w warstwie III jest mniej wyraźna. - Obejrzeć preparaty przy użyciu mikroskopii w świetle przechodzącym z obiektywem o małym powiększeniu (powiększenie 2X lub 4X) i sfotografować interesujące obszary.
- Zwiększyć kontrast i jasność mikrofotografii za pomocą oprogramowania do przetwarzania obrazów. Obrazy pozyskane do pomiarów gęstości optycznej nie powinny być w żaden sposób modyfikowane.
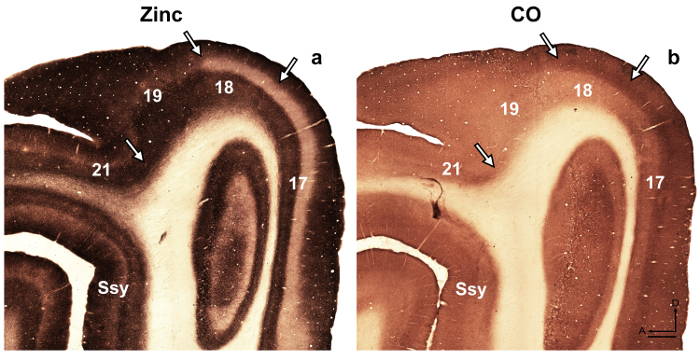
Rycina 4: Barwienie na cynk synaptyczny w mózgu dorosłego fretki pozwala rozróżnić poszczególne obszary kory wzrokowej. Fotomikrografie sąsiadujących przekrojów półtangencjalnych barwionych na (a) cynk synaptyczny lub (b) cytochrom oksydazę (CO) u osobnika dorosłego. Strzałki wskazują granice obszarów. Ssy kora suprasylviana, A przednia, D grzbietowa. Pasek skali = 500 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
6. Densitometria (opcjonalnie)
UWAGA: Analiza densytometryczna może być wykorzystana do oceny rozkładu cynku synaptycznego w mózgu poprzez pomiar gęstości optycznej reprezentatywnych przekrojów barwionych na cynk w obszarach zainteresowania. Metoda ta jest również przydatna do śledzenia potencjalnych zmian w poziomach cynku synaptycznego w trakcie rozwoju.
- Wykorzystując wybrane skrawki barwione cynkiem, należy z otrzymanych mikrofotografii obszaru zainteresowania losowo wybrać kolumny korowe (fotomikrografie kolumnowe) o odpowiedniej szerokości (można zastosować kolumnę o szerokości 450 µm). Kolumna korowa to obszar obejmujący wszystkie warstwy kory, od powierzchni opon miękkich do istoty białej.
- Należy wybrać odpowiednią liczbę kolumn próbnych z kilku różnych skrawków mózgu w każdym obszarze zainteresowania.
- Przenieść obrazy próbne reprezentatywnych kolumn do oprogramowania do przetwarzania obrazów.
- Użyć prostokątnego narzędzia zaznaczania, aby objąć całą kolumnę korową.
- Użyć narzędzia odwracania (invert), aby utworzyć obraz o odwróconym kontraście, podobny do negatywu fotograficznego kolumny.
UWAGA: Odwrócenie kontrastu obrazów wykonuje się w celu uzyskania wysokich wartości gęstości optycznej dla wysokich poziomów cynku synaptycznego i niskich wartości gęstości optycznej dla niskich poziomów cynku synaptycznego. Jest to bardziej intuicyjny sposób przedstawiania wykresów profili, podobnych do tych widocznych na Ryc. 5. - Wygenerować profile gęstości optycznej z tych obrazów, korzystając z narzędzia plot profile w celu utworzenia dwuwymiarowego wykresu intensywności pikseli wzdłuż linii.
- Użyć opcji wykresu, aby przekształcić wykres profilu w profil pionowy, a następnie ponownie kliknąć plot profile.
UWAGA: Oś x reprezentuje odległość wzdłuż linii, a oś y reprezentuje intensywność pikseli. Zatem każda wartość profilu wykresu odzwierciedla średnią wartość skali szarości na danej głębokości w całej szerokości kolumny. - Otworzyć wartości profilu wykresu jako pliki tekstowe w arkuszu kalkulacyjnym, znormalizować je i przedstawić w formie wykresów (patrz Ryc. 5).
UWAGA: Do porównywania pomiarów ilościowych zaleca się stosowanie względnej gęstości cynku synaptycznego, ponieważ wyniki mogą być zaburzone przez zmienność ogólnej intensywności barwienia wynikającą z różnych czasów reakcji, podatności tkanki na barwienie, a także innych zmiennych. - Obliczyć względną gęstość cynku, wykonując najpierw uśrednianie prostokątne (boxcar average) wartości profilu wykresu w celu wygładzenia danych.
UWAGA: Osiąga się to poprzez uśrednianie, na przykład, każdych kolejnych 20 lub 30 pikseli (1 piksel = 2.5 µm) w głąb, a następnie normalizację do maksymalnej intensywności dla każdej próbki. Zatem każda średnia wartość profilu wykresu odzwierciedla średnią wartość skali szarości na danej głębokości (wartości skali szarości mieszczą się w zakresie od 0 do 255). Można zastosować inną metodę normalizacji, najpierw uzyskując wartości gęstości optycznej istoty białej (WM) z obszarów próbnych, które obejmują leżącą u podstawy istotę białą w obszarach zainteresowania. Idealnie jest wybrać kilka obszarów o jak najsłabszym barwieniu, aby uzyskać średnią wartość WM. Średnie wartości gęstości optycznej są następnie dzielone przez średnie wartości WM w celu uzyskania wartości znormalizowanych do WM. - Wyznaczyć średnie wartości gęstości optycznej w określonych warstwach obszarów zainteresowania w celu przeprowadzenia porównań ilościowych.
UWAGA: Na przykład średnia minimalna wartość gęstości optycznej w warstwie IV obszarów kory wzrokowej fretki jest wyznaczana poprzez objęcie najsłabiej zabarwionego regionu zakresem ±5 pikseli. - Obliczyć średnie wartości gęstości optycznej w warstwach supragranularnych i infragranularnych obszarów kory wzrokowej fretki, obejmując najciemniej zabarwiony region zakresem ±5 pikseli, aby wyznaczyć średnią wartość maksymalną.
- Upewnić się, że średnie wartości gęstości optycznej zostały pobrane z wnętrza konkretnych warstw.
UWAGA: Niezbędne jest zweryfikowanie granic tych warstw na obrazach o odwróconym kontraście poprzez porównanie ich z oryginalnymi mikrofotografiami, a także z sąsiednim skrawkiem CO. Gwarantuje to, że pomiary nie obejmują warstw sąsiednich.
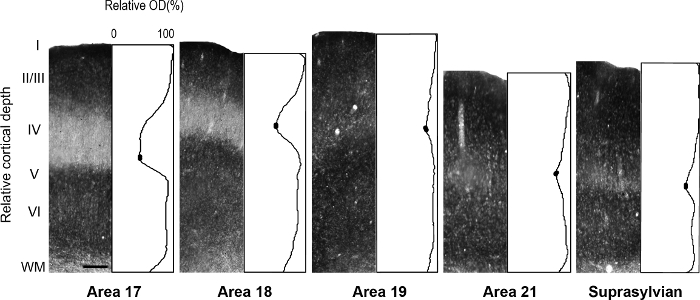
Rycina 5: Rozkład laminearny cynku synaptycznego w różnych obszarach kory wzrokowej u dorosłego fretki. Reprezentatywne mikrofotografie kolumn przechodzących przez wszystkie warstwy kory wraz z odpowiadającymi im znormalizowanymi profilami gęstości optycznej u dorosłego osobnika. Niska gęstość cynku synaptycznego w warstwie IV obszarów 17 i 18 u dorosłych osobników jest wskazana przez dołek na wykresie profilu. Na każdym wykresie profilu wypełnione owale w dołku warstwy IV wskazują wartości użyte do określenia średniej minimalnej wartości intensywności pikseli. Pasek skali = 200 µm. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Główne kroki związane z tym protokołem barwienia sekcji mózgu pod kątem synaptycznego są przedstawione na schemacie blokowym w Rysunek 1. Protokół można podzielić na trzy fazy: 1) Perfuzja i pobranie tkanek, 2) Przygotowanie i barwienie tkanek oraz 3) Histochemia. Krótko mówiąc, w pierwszej fazie protokołu zwierzę jest znieczulane i wstrzykuje się mu IP odpowiednią dawkę seleninu sodu. Po upływie odpowiedniego czasu (najlepiej 60 - 90 minut) zwierzę jest nast...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
W obecnym badaniu zastosowano technikę histochemiczną opartą na zmodyfikowanej wersji metody Danschera (1982)10, za pomocą której synaptyczna lokalizacja może być wykryta i uwidoczniona w mózgu. Metoda ta zasadniczo polega na wstrzyknięciu zwierzęciu chelatora seleninu sodu (Na2SeO3) (15 mg/kg). Po wstrzyknięciu selenit przemieszcza się do mózgu i wiąże się z wolnym, który jest zlokalizowany w pęcherzykach presynaptycznych neuronów zawierających. Jony związane z cząsteczkami ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca była wspierana przez granty z National Center for Research Resources (2G12RR03060-26A1); Narodowy Instytut Zdrowia Mniejszości i Dysproporcji Zdrowotnych (8G12MD007603-27) z Narodowych Instytutów Zdrowia; Kongres Kadry Zawodowej – Uniwersytet Miejski w Nowym Jorku (PSC-CUNY); oraz Grant Badawczy Wydziału (FRG II) Amerykański Uniwersytet w Szardży. Dziękujemy Vidyasagar Sriramoju za zapoznanie nas z tymi metodami.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Euthasol (roztwór do eutanazji) | Henry Schein | 710101 | |
| Selenin sodu | Sigma-Aldrich | 214485 | |
| Ketamina (Ketaved) | Henry Schein | 48858 | 100 mg / ml do wstrzykiwań |
| Ksylazyna (znieczulona) | Henry Schein | 33198 | 100 mg / ml do wstrzykiwań |
| Paraformaldehyd | Sigma-Aldrich | F8775 | Rozcieńczony do 4% |
| Guma arabska | Sigma-Aldrich | G9752-500G | |
| Kwas cytrynowy | Sigma-Aldrich | C1909 | |
| Cytrynian sodu | Sigma-Aldrich | W302600 | |
| Hydrochinon | Sigma-Aldrich | H9003 | |
| Mleczan srebra | Sigma-Aldrich | 85210 | |
| Żelatyna rybna | Sigma-Aldrich | G7765 | |
| Cytochrom c | Sigma-Aldrich | C2506 | (Typ III, z serca konia) |
| Catalse | Sigma-Aldrich | C10 | |
| Sacharoza | Domino | ||
| Ksylen Fisher | Scientific | X5P-1GAL | |
| Permount Fisher Scientific | SP15-500 | ||
| 100% etanol | Fisher Scientific | A406-20 | Służy do odwadniania przed montażem szkiełek |
| nakrywkowych | Laboratoria Badań Mózgu | #3660-1 | |
| Matowe szkiełka bez podkładu | Laboratoria Badań Mózgu | #3875-FR | |
| Microtome | American Optical Company | 860 | |
| Mikroskop | Olympus | BX-60 | |
| Adope Photoshop | Adobe Systems, San Jose, CA | Aby złożyć obrazy | |
| ImageJ | Bezpłatne oprogramowanie można pobrać ze strony http://rsb.info.nih.gov/ij/ | Do pomiarów densometrycznych | |
| Plastikowa taca | zanurzenia szkiełek w roztworze deweloperskim | użyć | |
| Płyta grzejna | Można użyć |
Bibliografia
- Nakashima, A., Dyck, R. H. Zinc and cortical plasticity. Brain Res. Rev. 59, 347-373 (2009).
- Frederickson, C. J. Neurobiology of zinc and zinc-containing neurons. Int Rev Neurobiol. 31, 145-238 (1989).
- Beaulieu, C., Dyck, R., Cynader, M. Enrichment of glutamate in zinc-containing terminals of the cat visual cortex. NeuroReport. 3 (10), 861-864 (1992).
- Martinez-Guijarro, F. J., Soriano, E., Del Rio, J. A., Lopez-Garcia, C. Zinc-positive boutons in the cerebral cortex of lizards show glutamate immunoreactivity. J Neurocytol. 20 (10), 834-843 (1991).
- Dyck, R., Beaulieu, C., Cynader, M. Histochemical localization of synaptic zinc in the developing cat visual cortex. J Comp Neurol. 329 (1), 53-67 (1993).
- Garrett, B., Geneser, F. A., Slomianka, L. Distribution of acetylcholinesterase and zinc in the visual cortex of the mouse. Anat Embryol. (Berl). 184 (5), 461-468 (1991).
- Garrett, B., Osterballe, R., Slomianka, L., Geneser, F. A. Cytoarchitecture and staining for acetylcholinesterase and zinc in the visual cortex of the Parma wallaby (Macropus parma). Brain Behav Evol. 43 (3), 162-172 (1994).
- Dyck, R., Cynader, M. An interdigitated columnar mosaic of cytochrome oxidase, zinc, and neurotransmitter-related molecules in cat and monkey visual cortex. Proc. Natl. Acad. Sci. (90), 9066-9069 (1993).
- Land, P. W., Akhtar, N. D. Experience-dependent alteration of synaptic zinc in rat somatosensory barrel cortex. Somatosens Mot Res. 16 (2), 139-150 (1999).
- Danscher, G. Exogenous selenium in the brain: a histochemical technique for light and electron microscopic localization of catalytic selenium bonds. Histochemistry. 76, 281-293 (1982).
- Danscher, G., Howell, G., Perez-Clausell, J., Hertel, N. The dithizone, Timm's sulphide silver and the selenium methods demonstrate a chelatable pool of zinc in CNS: a proton activation (PIXE) analysis of carbon tetrachloride extracts from rat brains and spinal cords intravitall treated with dithizone. Histochemistry. 83, 419-422 (1985).
- Gallyas, F. Silver staining of myelin by means of physical development. Neurol Res. 1 (2), 203-209 (1979).
- Wong-Riley, M. Changes in the visual system of monocularly sutured or enucleated cats demonstrable with cytochrome oxidase histochemistry. Brain Res. 171 (1), 11-28 (1979).
- Miró-Bernié, N., Ichinohe, N., Perez-Clausell, J., Rockland, K. S. Zinc-rich transient vertical modules in the rat retrosplenial cortex during postnatal development. J Neurosci. 138 (2), 523-535 (2006).
- Ichinohe, N., Rockland, K. S. Distribution of synaptic zinc in the macaque monkey amygdala. J Comp Neurol. 489 (2), 135-147 (2005).
- Innocenti, G. M., Manger, P. R., Masiello, I., Colin, I., Tettoni, L. Architecture and callosal connections of visual areas 17, 18, 19 and 21 in the ferret (Mustela putorius). Cereb Cortex. 12 (4), 411-422 (2002).
- Khalil, R., Levitt, J. B. Zinc histochemistry reveals circuit refinement and distinguishes visual areas in the developing ferret cerebral cortex. Brain Struct Funct. 218, 1293-1306 (2013).
- Manger, P. R., Masiello, I., Innocenti, G. M. Areal organization of the posterior parietal cortex of the ferret (Mustela putorius). Cereb Cortex. 12, 1280-1297 (2002).
- Wong, P., Kaas, J. H. Architectonic subdivisions of neocortex in the gray squirrel (Sciurus carolinensis.). The anatomical record. 291, 1301-1333 (2008).
- Land, P. W., Shamalla-Hannah, L. Experience-dependent plasticity of zinc-containing cortical circuits during a critical period of postnatal development. J Comp Neurol. 447 (1), 43-56 (2002).
- Czupryn, A., Skangiel-Kramska, J. Distribution of synaptic zinc in the developing mouse somatosensory barrel cortex. J Comp Neurol. 386, 652-660 (1997).
- Timm, F. Zur Histochemie der Schwermetalle. Das Sulfid-Silber-Verfahren. Dtsch Z ges gerichtl Med. 46, 706-711 (1958).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
