Długoterminowe badania są niezbędne do zrozumienia procesu ewolucji i mechanizmów adaptacji. Ogólnie rzecz biorąc, badania te wymagają zobowiązań wykraczających poza okres życia badaczy. W tym miejscu opisano potężną metodę, która radykalnie przyspiesza najnowocześniejsze gromadzenie danych w celu generowania danych podłużnych w systemach naturalnych.
Artykuł metodologiczny
Wskrzeszenie uśpionej rozwielitki magna: protokół i zastosowania
W tym artykule
Podsumowanie
Streszczenie
Długoterminowe badania umożliwiają identyfikację procesów ekoewolucyjnych, które zachodzą w dłuższych okresach czasu. Ponadto dostarczają kluczowych danych empirycznych, które można wykorzystać w modelowaniu predykcyjnym do prognozowania ewolucyjnych reakcji naturalnych ekosystemów na przyszłe zmiany środowiskowe. Jednakże, z wyjątkiem kilku wyjątkowych przypadków, długoterminowe badania są rzadkie ze względu na trudności logistyczne związane z dostępem do próbek tymczasowych. Dynamika czasowa jest często badana w laboratorium lub w kontrolowanych eksperymentach mezokosmicznych z wyjątkowymi badaniami, które rekonstruują ewolucję naturalnych populacji w środowisku naturalnym.
Tutaj zapewniona jest standardowa procedura operacyjna (SOP) mająca na celu ożywienie lub wskrzeszenie uśpionej Daphnia magna, szeroko rozpowszechnionego gatunku zooplanktonu w ekosystemach wodnych, aby radykalnie przyspieszyć najnowocześniejsze zbieranie danych podłużnych w systemach naturalnych. Dziedzina ekologii zmartwychwstania została zdefiniowana w 1999 roku przez Kerfoota i współpracowników, mimo że pierwsze próby wyklucia się jaj zooplanktonu z pieluzy sięgają końca lat 80. Od czasu przełomowej pracy Kerfoota, metodologia wskrzeszania gatunków zooplanktonu jest coraz częściej stosowana, choć propaguje się w laboratoriach tylko poprzez bezpośredni transfer wiedzy. W tym miejscu opisano SOP, który zapewnia krok po kroku protokół dotyczący praktyki wskrzeszania uśpionych jaj rozwielitki magna.
Dwa kluczowe badania są dostarczane, w których mierzona jest reakcja na ocieplenie zmartwychwstałych populacji Daphnia magna, wykorzystując możliwość badania historycznych i współczesnych populacji w tych samych warunkach. Na koniec omówiono zastosowanie technologii sekwencjonowania nowej generacji do ożywionych lub nadal uśpionych etapów. Technologie te zapewniają bezprecedensową moc w analizowaniu procesów i mechanizmów ewolucji, jeśli zostaną zastosowane do populacji, które doświadczyły zmian presji selekcyjnej w czasie.
Wprowadzenie
Długoterminowe badania są kluczowe dla zrozumienia procesów ekologicznych i ewolucyjnych w przyrodzie oraz dla oceny, jak gatunki reagują i utrzymują się podczas zmian środowiskowych1. Dzieje się tak, ponieważ procesy ekoewolucyjne zachodzą z pokolenia na pokolenie, a zmiany w środowisku zachodzą w długich okresach czasu. Co więcej, długoterminowe badania dostarczają kluczowych danych empirycznych, które poprawiają dokładność modelowania predykcyjnego w celu prognozowania ewolucyjnych reakcji naturalnych ekosystemów na zmiany środowiskowe2. Dokładność tych modeli ma kluczowe znaczenie dla wdrażania strategii zarządzania i ochrony w celu zachowania różnorodności biologicznej i usług ekosystemowych.
Wyłączając kilka wyjątkowych przypadków (np. zięby z Galapagos Darwin3 i glony4), długoterminowe badania są w dużej mierze ograniczone do gatunków o krótkim czasie generacji, które mogą być rozmnażane w laboratorium5,6,7,8. W związku z tym procesy leżące u podstaw dynamiki ewolucyjnej pozostają nieuchwytne. Ze względu na trudności logistyczne związane z dostępem do próbek czasowych, dane empiryczne są częściej badane w kontekście przestrzennym niż czasowym, a czasowe procesy ekoewolucyjne są wnioskowane lub modelowane na podstawie danych przestrzennych. Podejście to jest znane jako podstawienie "przestrzeń za czas" 9, przy czym przestrzeń jest adoptowana jako substytut do badania temporalnej dynamiki ewolucyjnej. Głównym ograniczeniem substytucji "przestrzeń za czas" jest to, że tempo adaptacji w różnych skalach przestrzennych różni się od zmienności czasowej w tej samej populacji; W związku z tym wnioski oparte na zamianie czasu na przestrzeń są stronnicze10.
Potężna alternatywa, która pozwala badać dynamikę ewolucji w naturalnych ekosystemach na przestrzeni czasu, to analiza zmian ekologicznych i genetycznych u gatunków wytwarzających stany uśpienia11. Te uśpione stadia kumulują się, tworząc warstwowe archiwa biologiczne, które można dokładnie datować i scharakteryzować paleolimnologicznie12,13. Co ważne, te uśpione stadia mogą być reanimowane i wykorzystywane w eksperymentach laboratoryjnych, gdzie można bezpośrednio zmierzyć ich ewolucyjną reakcję na zmiany środowiskowe. Populacje historyczne mogą rywalizować z ich współcześnie wyewoluowanymi potomkami w celu zbadania zmian przystosowania i funkcji genów ewoluujących wraz ze zmianami środowiskowymi14,15,16.
Uśpione etapy obejmują nasiona, cysty, zarodniki i banki jaj. Chociaż pierwsze badania nad reanimowanymi uśpionymi jajami pochodzą z późnych lat 80. XX wieku17, a w kilku badaniach zastosowano tę technikę na początku lat 90. 18,19, dziedzina Ekologii Zmartwychwstania została formalnie ustanowiona przez przełomową pracę Kerfoota i współpracowników w 199920. Praktyka ta była stosowana głównie w rekonstrukcjach paleolimnologicznych gatunków słodkowodnych17,21,22. Jednak SOP nie jest jeszcze dostępna. W tym miejscu przedstawiono szczegółowy opis protokołu wskrzeszania stosowanego do uśpionych jaj gatunku zooplanktonu Daphnia magna, od pobierania próbek osadu do zakładania kultur klonalnych od piskląt. Omówiono etapy SOP, które można łatwo przenieść na inne gatunki rozwielitek, a także kroki, które mogą wymagać dodatkowej optymalizacji.
Daphnia to słodkowodne zooplanktery obecne w większości siedlisk loticznych23 . Gatunki Daphnia są albo obligatoryjnymi partenogenami bezpłciowymi, albo cyklicznymi. D. magna jest cyklicznym partenogenem, który rozmnaża się klonalnie w sprzyjających warunkach środowiskowych24. Kiedy warunki środowiskowe pogarszają się, następuje produkcja samców, a rekombinacja płciowa prowadzi do powstania zapłodnionych jaj, które wchodzą w stan spoczynku, chronione przed środowiskiem przez chitynowy przypadek zwany ephippium. Część tych uśpionych jaj wykluwa się, gdy powracają sprzyjające warunki środowiskowe. Jednak duża część uśpionego banku jaj nigdy nie ma szansy się wykluć, a tym samym z czasem zbudować archiwów biologicznych. Uśpione stadia pozostają zakopane w osadach jezior i stawów i mogą zostać wskrzeszone w celu badania dynamiki ewolucyjnej w dłuższych okresach czasu. Ponieważ uśpione jaja D. magna są wynikiem rekombinacji płciowej, są dobrą reprezentacją naturalnej różnorodności genetycznej gatunku25. Co więcej, można je utrzymać poprzez rozmnażanie klonalne w laboratorium. Cechy te zapewniają unikalną przewagę izogenicznych organizmów modelowych, przy jednoczesnym zachowaniu naturalnej różnorodności genetycznej.
Przedstawiono dwa kluczowe badania, aby pokazać korzyści płynące z bezpośredniego porównania historycznych i współczesnych potomków tej samej populacji D. magna, doświadczających presji selekcji środowiskowej w czasie. Okazy D. magna zostały wskrzeszone z jeziora Ring (Dania), płytkiego (5 m głębokości, powierzchnia 22 ha) stawu mieszanego, w którym z czasem nastąpił wzrost średniej temperatury i występowanie fal upałów. (Sub)populacje D. magna zostały wskrzeszone wzdłuż tego gradientu czasowego obejmującego 60 lat (1960–2005) i badane w celu zbadania ewolucyjnej reakcji na ocieplenie temperatury. W pierwszym badaniu w powszechnym eksperymencie ogrodowym zmierzono zmiany w cechach historii życia związanych ze sprawnością fizyczną w odpowiedzi na wzrost temperatury o +6 °C, zgodnie z przewidywaniami Międzyrządowego Zespołu ds. Zmian Klimatu na najbliższe 100 lat26. W drugim badaniu wykorzystano eksperyment mezokosmiczny do zmierzenia zdolności konkurencyjnych trzech (sub)populacji w warunkach ocieplenia. Połączone eksperymenty pokazują, że w obecności ocieplenia jako jedynego stresu, wszystkie cechy historii życia i populacje wykazują wysoki poziom plastyczności i mają równe zdolności konkurencyjne. Wyniki te sugerują, że ocieplenie jako pojedynczy stres nie pociąga za sobą znacznych kosztów sprawności, przynajmniej w badanej populacji.
Protokół
Poniższa standardowa procedura operacyjna (SOP) zawiera opis krok po kroku protokołu wykorzystywanego do wskrzeszania uśpionych jaj Daphnia magna, w tym szczegółowy opis pobierania próbek, izolacji ephippiów z osadu oraz tworzenia kultur klonalnych (Rysunek 1).

Rysunek 1: Przewodnik krok po kroku po wskrzeszaniu Daphnia magna. Osady z naturalnego siedliska słodkowodnego (A) są pobierane za pomocą tłokowego pobieracza rdzeni (B). Rdzeń osadu (C) jest dzielony na kolejne warstwy o grubości 1 lub 0,5 cm (D). Każda warstwa osadu jest przechowywana w szczelnym woreczku strunowym (E) w ciemności i niskiej temperaturze (4 °C). Każda warstwa osadu jest ważona i przesiewana za pomocą sit geologicznych (oczka o rozmiarze 1 mm i 125 µm, F). Tace z białym tłem są wykorzystywane do izolacji ephippiów Daphnia magna (G). Odkapsułkowane jaja w stanie uśpienia (H) są przenoszone do szalek Petriego i poddawane bodźcom świetlnym oraz temperaturowym w celu wywołania wyklucia. Nowo wyklute osobniki są przenoszone do osobnych słoików (I) w celu stworzenia linii izoklonalnych. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
1. Pobieranie próbek z rdzeni osadów
- Pobieranie próbek osadów z jezior lub stawów za pomocą próbnika tłokowego. W niniejszym protokole wykorzystano urządzenie Big Ben27, rura rdzeniowa o długości około 1,5 m i średnicy wewnętrznej 14 cm. Big Ben składa się z tłoka na linie oraz głowicy rdzeniarki, do której przymocowane są pręty służące do wbijania rury w osad. Chwytacz rdzenia wspomaga podtrzymanie rury rdzeniowej po jej wypełnieniu osadem. W celu wydobycia osadu zastosowano ramę, która utrzymuje rurę rdzeniową w pozycji pionowej i nieruchomej, oraz zmodyfikowany podnośnik hydrauliczny do butelek, który służy do wypychania tłoka do góry podczas procesu ekstruzji (Wideo uzupełniające 1).
- W przypadku płytkich zbiorników o głębokości poniżej 1 m należy zastosować pleksiglasowy pobieracz rdzeni grawitacyjnych o średnicy nieprzekraczającej 6 cm, wbijany w osad ręcznie.
- W przypadku jezior głębokich (>(głębokość 6 m), należy użyć tłokowych pobieraczy rdzeni Livingstona28 lub jednorazowych pobieraków osadów Griffitha przy użyciu zakotwiczonej pontonowej łodzi motorowej. Pistonowy pobierak z prętem wbijającym typu Livingstone może być stosowany w wodach o głębokości do około 30 m w celu pobrania kolejnych jednocentrycznych odcinków osadów jeziornych o konsystencji od miękkich do skonsolidowanych. Jednorazowy pobierak Griffitha składa się z prostej, lecz wytrzymałej głowicy, która łączy standardowe rurki z poliwęglanu z prętami wbijającymi Livingstone. Pobieraki są wbijane w osad za pomocą prętów, a tłok zapewnia ssanie niezbędne do odzyskania osadu (Rycina 2).
- W celu pobierania ciągłych, niezakłóconych rdzeni należy zastosować wibrowibrowiercenie (vibracoring). Próbnik i ten typu umożliwiają pobór na różnych głębokościach wody i pozwalają na pozyskanie rdzeni o różnej długości, w zależności od litologii osadów. Wibracje o niskiej amplitudzie, przenoszone z głowicy wibrowiertnicy w dół przez przymocowaną rurę rdzeniową, powodują upłynnienie osadów, co umożliwia penetrację rury rdzeniowej połączonej z jednostką wibrowiertnicy w upłynniony materiał. Niektóre wibrowiertnice są małe, lekkie i przenośne, inne zaś stanowią duże, ciężkie jednostki, które mogą być rozmieszczane wyłącznie z dużych jednostek pływających. Wybór próbników zależy od litologii osadu.
- Przekrój rdzeń poziomo na warstwy o grubości 1 cm lub mniej, używając płaskiej metalowej powierzchni (Film uzupełniający 1). Próbniki osadów, takie jak ten użyty w niniejszym doświadczeniu, są zaprojektowane w celu zmniejszenia ciśnienia hydrostatycznego podczas wysuwania rdzenia, co ogranicza zaburzenia warstw osadów. W przypadku stosowania innych próbników, zewnętrzną warstwę każdej warstwy osadu można usunąć za pomocą ostrza typu wycinaka, aby ograniczyć kontaminację między warstwami.
- Zbierz każdą warstwę osadu do oddzielnej torby do pobierania próbek (Wideo uzupełniające 1), a następnie przechowywać w ciemności i w niskiej temperaturze (4 °C) warunków.
- Należy pobrać co najmniej 5 g osadu z wszystkich warstw w celu przeprowadzenia datowania radiometrycznego. Ponieważ datowanie radiometryczne jest uznanym protokołem, w celu uzyskania szczegółowego opisu analizy datowania należy odnieść się do istniejących publikacji.12,13.

Rysunek 2: Schemat procedury pobierania rdzeni metodą tłokową. Próbnik tłokowy to pusta rurka z wewnętrzną ruchomą uszczelką (tłokiem), która wytwarza słabą próżnię. W momencie, gdy tłok dotyka granicy osad-woda, ciężar wpycha rurkę rdzeniową w osad, a próżnia powoduje, że pobierany osad wnika do rurki i przesuwa się w górę bez zaburzania warstw osadów. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
2. Przesiewanie warstw osadów
- Za pomocą wagi precyzyjnej zważ każdą warstwę osadu do późniejszego wykorzystania. Wykorzystaj powierzchnię oraz masę do obliczenia gęstości gatunków w jeziorze.
- Przesiej każdą warstwę osadu, używając dwóch ułożonych jedno nad drugim sit geologicznych. Pierwsze sito ma rozmiar oczka 1 mm i oddziela glinę, duże bezkręgowce oraz materię cząsteczkową, np. nasiona, rośliny i owady z pozostałej części osadu. Drugie sito posiada oczka o rozmiarze 125 µm oraz oddziela *D. manga* ephippia i drobne cząstki z pozostałości osadu (Film uzupełniający 2).
- Przenieś małe alikwoty zebranego osadu na 125 µm przez sito o określonej gęstości oczek na tackę z białym tłem. W zależności od rodzaju osadu, przy każdym przenoszeniu można przekładać mniejsze lub większe alikwoty osadu.
- Do białej tacki do pobierania próbek należy dodać niewielkie objętości pożywki (do 200 ml), aby ponownie zawiesić przeniesioną frakcję osadu i ułatwić wizualną identyfikację efipii (Rycina 3). Medium użyte do resuspensji osadu może stanowić odchlorowana woda z kranu, woda z otworu wiertniczego lub COMBO29lub pożywka ADaM (Aachener Daphnien)30W dalszej części tekstu termin „pożywka” będzie odnosić się do każdego z wymienionych roztworów lub do wszystkich nich razem.

Rysunek 3: Daphnia magna epifium Uśpiony Daphnia magna jaja bezpośrednio po dekapsulacji. Ephippium (A), wewnętrzna błona jaja (B), a także jaja w stanie uśpienia (C) są przedstawione. Skala = 500 µm.
3. Dekapsulacja ephippia i wykluwanie
- Za pomocą jednorazowej pipety Pasteura lub pęsety do mikrodisekcji przenieś poszczególne efipia do szalek Petri wypełnionych 10 mL pożywki. Użyj co najmniej jednej szalki Petri na każdą warstwę osadu.
- Pod mikroskopem stereoskopowym usuń otoczki z każdego efipium za pomocą pęsety do mikrodisekcji, siłowo otwierając chitynową osłonkę (Supplementary Video 3). Delikatnie usuń wewnętrzną błonę jaja spoczynkowego, uważając, aby nie uszkodzić jaj, a następnie przenieś je do szalki Petri z pożywką za pomocą pipety Pasteura. Dekapsulacja zwiększa powodzenie wyklucia u D. magna; jednakże może nie być wymagana lub może być trudna w przypadku innych gatunków Daphnia wytwarzających mniejsze efipia.
- Aby wywołać wyklucie, poddaj dekapsulowane jaja działaniu światła o pełnym spektrum w fotoperiodzie dnia długiego (16:8 światło:ciemność) oraz wysokiej temperaturze (20 ± 1 °C) w urządzeniu do kontroli temperatury (inkubatorze) lub w pomieszczeniu. Wyklucie następuje w czasie od 48 h do kilku tygodni (do czterech; Supplementary Video 4). W przypadku braku dekapsulacji bezpośrednio poddaj efipia bodźcom wyklucia (światło w fotoperiodzie dnia długiego (16:8 światło:ciemność) oraz wysoka temperatura (20 ± 1 °C)).
4. Tworzenie linii izoklonalnych Daphnia magna
- Utworzenie linii izoklonalnych z pojedynczych wylęgów poprzez przenoszenie poszczególnych D. magna od kroku 3.3 do oddzielnych słoików wypełnionych 200 ml pożywki, używając jednorazowej pipety Pasteura. Każda osobnik jest genetycznie odrębny, będąc wynikiem rekombinacji płciowej.
- Utrzymywać linie izoklonalne w nieskończoność w warunkach przechowywania składających się z 10 ± 1 °C, reżim oświetleniowy 16:8 jasność:ciemność, karmione raz w tygodniu w stężeniu 0,2 mg C/L Chlorella vulgaris lub inne zielone glony (np., Scenedesmus obliquus). Wymieniać pożywkę co trzy tygodnie. Warunki hodowlane mogą ulec zmianie w zależności od temperatury, reżimu karmienia i gatunku.
5. Kluczowe badania
UWAGA: Przedstawiono opis dwóch kluczowych badań, w których wykorzystano zregenerowane (sub)populacje D.magna z archiwum osadowego jeziora Ring (Dania), aby ocenić odpowiedź ewolucyjną na ocieplenie. Trzy (sub)populacje zregenerowano z następujących okresów: 1960-1970, 1970-1985 oraz >1999. Skuteczność wylęgu D. magna z archiwum osadowego wynosiła od 11 do 58% (Rysunek 4). Z osobników wylęgłych uzyskanych z każdego okresu czasowego wybrano losową podgrupę do dwóch kluczowych badań opisanych w niniejszym dokumencie. Badania te zostały zaprojektowane w celu oceny, czy (sub)populacje zregenerowane z różnych okresów czasowych wzdłuż gradientu temperatury wykazywały różnice w cechach historii życia powiązanych z dostosowaniem (5.1) oraz czy posiadały one różne zdolności konkurencyjne (5.2) po ekspozycji na ocieplenie.

Rysunek 4: Sukces wyklucia w archiwum sedymentacyjnym pobranym z jeziora Ring. Proporcja udanych wykluć wzdłuż archiwum sedymentacyjnego jeziora Ring wykorzystanego w kluczowych badaniach. Prosimy kliknąć tutaj, aby zobaczyć powiększoną wersję tego rysunku.
- Eksperymenty w warunkach wspólnego ogrodu (common garden)
- Przenieś dziesięć osobników z wyklutych noworodków na (sub)populację z kultur stokowych do warunków wspólnego ogrodu: 16 °C; długi fotoperiod (reżim światło:ciemność 16:8); karm codziennie 0,8 mg C/L Chlorella vulgaris i wymieniaj medium co drugi dzień. Utrzymuj noworodki w warunkach wspólnego ogrodu przez co najmniej dwa pokolenia (ok. 45 dni). Warunki wspólnego ogrodu redukują wpływ efektu macierzyńskiego i synchronizują reprodukcję noworodków.
- Po uwolnieniu drugiego miotu do komory lęgowej przenieś dorosłe samice z drugiego pokolenia do słoików o pojemności 500 mL wypełnionych medium, aż do momentu uwolnienia przez nie drugiego miotu osobników młodzieńczych.
- Losowo przenieś poszczególne osobniki młodzieńcze w wieku 24–48 h, pochodzące z drugiego miotu drugiego pokolenia, do słoików o pojemności 100 mL wypełnionych medium i poddaj je następującym warunkom eksperymentalnym: 18 °C (obecna temperatura w jeziorze) oraz 24 °C (ocieplenie, temperatura prognozowana przez IPCC 26 na najbliższe 100 lat), reżim światło:ciemność 16:8 oraz codzienne karmienie 0,8 mg C/L Chlorella vulgaris.
- U każdego zwierzęcia doświadczalnego zmierz wielkość w momencie osiągnięcia dojrzałości za pomocą stereomikroskopu jako odległość między głową a podstawą kolca ogonowego (Rysunek 5). Sfotografuj każde zwierzę, a następnie przeanalizuj jego wielkość przy użyciu odpowiedniego oprogramowania do analizy obrazu.
- Zmierz wiek w momencie osiągnięcia dojrzałości: dzień, w którym po raz pierwszy zaobserwowano jaja w komorze lęgowej.
- Zmierz śmiertelność: liczbę osobników, które wyginęły w trakcie eksperymentu.
- Zmierz płodność: całkowitą liczbę potomstwa uwolnionego podczas pierwszej i drugiej reprodukcji klonalnej.
- Zmierz tempo wzrostu populacji, szacując je za pomocą równania Eulera (1):
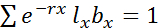 (1)
Gdzie lx to proporcja przeżywalności w wieku x, bx to liczba noworodków wytworzonych przez przeżywającego osobnika w wieku x, a r to wewnętrzne tempo przyrostu naturalnego. - Przeprowadź analizę statystyczną przy użyciu dostępnego komercyjnie oprogramowania. W tym celu użyj środowiska R31 do wykreślenia norm reakcji (ekspresja fenotypowa pojedynczego genotypu w różnych środowiskach) dla każdej cechy historii życia, korzystając z pakietu ggplot2. Oblicz wskaźniki śmiertelności dla każdej populacji za pomocą analizy przeżycia (pakiet R rms; https://cran.r-project.org/web/packages/rms/rms.pdf). Na koniec przeprowadź analizę wariancji (ANOVA, Tabela 2) w R31, aby ocenić, czy wpływ temperatury na cechy można wyjaśnić ewolucją (różnice między populacjami), plastycznością (odpowiedź na zabieg) lub ewolucją plastyczności (interakcja populacja x zabieg).
- Eksperyment konkurencji
- Przenieś dziesięć noworodków na populację z kultur stokowych do warunków wspólnego ogrodu: 20 °C, długi fotoperiod (reżim światło:ciemność 16:8), codzienne karmienie 0,8 mg C/L Chlorella vulgaris i wymiana medium co drugi dzień. Utrzymuj warunki wspólnego ogrodu przez co najmniej dwa pokolenia (ok. 45 dni), aby zredukować wpływ efektów macierzyńskich.
- Losowo przydziel pięć osobników młodzieńczych w wieku od 24 do 48 h z drugiego miotu drugiego pokolenia każdego noworodka do eksperymentalnych mezokosmosów (plastikowe akwaria 20 L wypełnione medium), w trzech powtórzeniach, przy gęstości 10 zwierząt/L.
- Poddaj mezokosmosy temperaturze 24 °C, reżimowi L:D 16:8 i karm codziennie 0,8 mg C/L Chlorella vulgaris w komorze temperaturowej lub inkubatorze przez minimum cztery tygodnie (>3 pokoleń klonalnych).
- Dokonuj cotygodniowej redukcji liczebności w każdym mezokosmosie, odświeżając 10% medium, aby zasymulować dynamikę populacyjną, z jaką Daphnia może spotkać się w środowisku naturalnym. Redukcję przeprowadź poprzez usunięcie określonej objętości medium wraz ze zwierzętami z każdego akwarium (w tym przypadku 1,2 L) i zastąpienie usuniętej objętości świeżym medium. Rozpocznij reżim redukcji po osiągnięciu dojrzałości przez zwierzęta doświadczalne (dzień 10).
- Na koniec czwartego tygodnia pobierz próbkę 32 zwierząt z każdego mezokosmosu, aby ocenić zmiany w składzie genotypowym w porównaniu z początkowym inokulum.
- Umieść poszczególne osobniki Daphnia w probówkach do mikrocentryfugi i usuń nadmiar cieczy za pomocą pipety Pasteura.
- Błyskawicznie zamroź poszczególne probówki w ciekłym azocie i przechowuj w temperaturze -80 °C.
- Wyekstrahuj genomowe DNA z pojedynczych osobników zgodnie z dostępnymi protokołami i instrukcjami producenta.
- Wzmocnij wyekstrahowane DNA przy użyciu liczby markerów genetycznych wystarczającej do zapewnienia unikalnego genotypu wielolocusowego dla każdego noworodka. W tym przypadku, zgodnie z ustalonymi protokołami32,33, zastosowano 8 mikrosatelit ułożonych w jednym multipleksie (M01, Tabela 1).
- Przeprowadź genotypowanie wzmocnionych fragmentów na analizatorze fragmentów.
- Wykonać analizę fragmentów za pomocą komercyjnego lub darmowego oprogramowania, stosując odpowiedni standard wielkości.
- Oceń skład genotypowy na koniec eksperymentu poprzez genotypowanie 32 osobników za pomocą zestawu locusów mikrosatelitowych zgodnie z opisem33 i obliczenie częstości każdego genotypu na koniec eksperymentu w porównaniu z początkowym inokulum.

Rycina 5: Dorosła samica Daphnia magna. Dorosła samica Daphnia magna z jajami partenogenetycznymi w komorze inkubacyjnej. Odległość między głową a podstawą kolca ogonowego jest wykorzystywana do pomiaru rozmiaru zwierzęcia. Czerwone linie wskazują pomiary rozmiaru. Pasek skali = 500 µm.
Wyniki
Długoterminowe dane empiryczne mają kluczowe znaczenie dla zrozumienia dynamiki ewolucyjnej i trwałości populacji naturalnych. Pozyskanie takich danych jest zazwyczaj trudne ze względu na problemy logistyczne związane z dostępem do próbek z różnych okresów czasowych oraz konieczność długofalowego zaangażowania w gromadzenie danych. W dwóch kluczowych badaniach przedstawionych w niniejszej pracy dostarczono empirycznych dowodów na reakcję kluczowego organizmu zooplanktonowego w ekosystemach słodkowodnych na temperaturę w skalach czasowych ewolucyjnych. Stało się to możliwe dzięki wykorzystaniu warstwowych banków jaj w stanie uśpienia, które dają możliwość zbadania odpowiedzi populacji historycznych i ich współczesnych potomków na stres środowiskowy w jednolitych warunkach doświadczalnych.
Eksperyment w wspólnym ogrodzie
Eksperyment w wspólnym ogrodzie wykazał, że wszystkie cechy historii życia reagowały na temperaturę (Rysunek 6 oraz Rysunek 7). Analiza ANOVA ujawniła, że wszystkie (sub)populacje reagują na temperaturę poprzez plastyczność (Tabela 2), z wyjątkiem śmiertelności, która nie wykazuje reakcji. Dowody na zmiany ewolucyjne (różnice między (sub)populacjami) zaobserwowano jedynie w tempie wzrostu populacji (Tabela 2), które istotnie zwiększyło się w dwóch z trzech (sub)populacji w temperaturze 24 °C (Rysunek 6).

Rycina 6: Eksperyment wspólnego ogrodu. Normy reakcji dla cech historii życia (płodność, wielkość i wiek w momencie osiągnięcia dojrzałości) oraz tempo wzrostu populacji (r) przedstawiono dla każdej (sub)populacji w warunkach ocieplenia temperatury (24 °C) w porównaniu do wspólnego ogrodu i obecnego reżimu temperatury (18 °C). Tempo wzrostu populacji „r” obliczono za pomocą równania Eulera (1). Przedstawiono przedziały ufności. (Sub)populacje są oznaczone kolorami: (i) niebieski: 1960-1970; (ii) zielony: 1970–1985; (iii) czerwony: >1999. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 7: Śmiertelność. Wskaźniki śmiertelności na (sub)populację (1960-1970; 1970-1985; >1999) przedstawiono w warunkach ocieplenia (24 °C) w porównaniu do współczesnych reżimów temperaturowych (18 °C). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Eksperyment w mezokosmosie
Po czterech tygodniach selekcji, polegającej na ogrzewaniu do 24 °C, częstość występowania trzech (sub)populacji nie zmieniła się znacząco (χ2 = 0.55, P = 0.76) w porównaniu z początkowym inokulum (Rycina 8). spośród 30 genotypów wprowadzonych do eksperymentu w mezokosmosie, większość została zidentyfikowana po czterech tygodniach selekcji (Rycina 9). W szczególności odzyskano 70% wprowadzonych genotypów, co jest zgodne z oczekiwaniem Poissona dotyczącym odzyskania co najmniej jednego przedstawiciela każdego genotypu w próbie 32 osobników.

Rycina 8: Eksperyment konkurencji – częstość występowania populacji. Przedstawiono średnią medianę oraz kwartyle (25ty i 75ty) uśrednione dla populacji dla trzech (sub)populacji D. magna po czterech tygodniach selekcji w eksperymentach konkurencji w mezokosmosach (24 °C), w porównaniu do początkowej równej częstości (na starcie). (Sub)populacje są oznaczone kolorami, zgodnie z Rycina 6. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rysunek 9: Eksperyment konkurencyjny – częstotliwość genotypów. Częstotliwości genotypów — uśredniona mediana i kwartyle (25.th i 75.th) — przedstawiono po czterech tygodniach ekspozycji na ocieplenie (24 °C) w porównaniu do początkowej równej częstotliwości genotypów (linia przerywana). Nazwy na osi x to identyfikatory inokulowanych genotypów, pogrupowane według (sub)populacji (niebieski, 1960-1970; zielony, 1970-1985; czerwony, >1999). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Locus | AN | Zakres wielkości (bp) | Primery (5’-3’) | Znakowanie barwnikiem | Motyw powtórzeń | Tm | |
| B008 | HQ234154 | 150–170 | F: TGGGATCACAACGTTACACAA | VIC | (TC)9 | 56 | |
| R: GCTGCTCGAGTCCTGAAATC | |||||||
| B030 | HQ234160 | 154–172 | F: CCAGCACACAAAGACGAA | PET | (GA)11 | 56 | |
| R: ACCATTTCTCTCCCCCAACT | |||||||
| B045 | HQ234168 | 118–126 | F: GCTCATCATCCCTCTGCTTC | NED | (TG)8 | 56 | |
| R: ATAGTTTCAGCAACGCGTCA | |||||||
| B050 | HQ234170 | 234–248 | F: TTTCAAAAATCGCTCCCATC | 6FAM | (GAA)6 | 56 | |
| R: TATGGCGTGGAATGTTTCAG | |||||||
| B064 | HQ234172 | 135–151 | F: CTCCTTAGCAACCGAATCCA | 6FAM | (TC)8 | 56 | |
| R: CAAACGCGTTCGATTAAAGA | |||||||
| B074 | HQ234174 | 196–204 | F: TCTTTCAGCGCACAATGAAT | NED | (GT)9 | 56 | |
| R: TGTGTTCCTTGTCAACTGTCG | |||||||
| B096 | HQ234181 | 234–240 | F: GGATCTGGCAGGAAGTGGTA | VIC | (AC)15 | 56 | |
| R: TTGAACCACGTCGAGGATTT | |||||||
| B107 | HQ234184 | 250–274 | F: GGGGTGAAGCATCAAAGAAA | PET | (CT)8 | 56 | |
| R: TGTGACCAGGATAAGAGAAGAGG | |||||||
Tabela 1: Multiplex mikrosatelitowy. Przedstawiono numery dostępowe NCBI (AN), informacje o multiplexie, sekwencje starterów PCR, zakres wielkości produktów PCR, motyw powtórzeń, barwnik użyty do znakowania startera forward oraz temperaturę przyłączania (Tm).
| Tempo wzrostu populacji (Proszę podać tekst źródłowy do przetłumaczenia.) | Df | F | P | |
| Ewolucja (populacyjna) | 2 | 30.309 | <0.001 | |
| Plastyczność (Temp) | 1 | 531.546 | <0.001 | |
| Plastyczność ewolucyjna (Populacja x Temperatura) | 2 | 65.137 | <0.001 | |
| Śmiertelność | Df | F | P | |
| Ewolucja (Populacja) | 2 | 2.234 | 0.1162 | |
| Plastyczność (temp.) | 1 | 2.679 | 0.1071 | |
| Plastyczność ewolucyjna (populacja x temperatura) | 2 | 1.8657 | 0.164 | |
| Potencjał rozrodczy | Df | F | P | |
| Ewolucja (Pop) | 2 | 1.8852 | 0.1633 | |
| Plastyczność (temp.) | 1 | 6.8934 | 0.0117 | |
| Plastyczność ewolucyjna (populacja x temperatura) | 2 | 1.6511 | 0.203 | |
| Rozmiar w wieku dojrzałym | Df | F | P | |
| Ewolucja (Pop) | 2 | 0.211 | 0.8106 | |
| Plastyczność (Temp) | 1 | 11.1361 | 0.0017 | |
| Plastyczność ewolucyjna (populacja x temperatura) | 2 | 0.6586 | 0.5225 | |
| Wiek osiągnięcia dojrzałości | Df | F | P | |
| Ewolucja (Pop) | 2 | 0.7811 | 0.4637 | |
| Plastyczność (Temp) | 1 | 8.0764 | 0.0066 | |
| Plastyczność ewolucyjna (populacja x temperatura) | 2 | 0.088 | 0.9159 | |
Tabela 2: Analiza wariancji(ANOVA). Analiza wariancji sprawdzająca, czy zmiany w cechach historii życia i tempie wzrostu populacji wskrzeszonych (sub)populacji poddanych ociepleniu są wyjaśnione przez adaptację ewolucyjną (populacje), plastyczność (zabieg temperaturą) oraz ich człon interakcji (ewolucja plastyczności). Istotne wartości p (p<0,05) zaznaczono pogrubioną czcionką.
Wideo uzupełniające 1: Pobieranie rdzeni osadów. Przedstawiono zastosowanie pobieracza Big Ben. Big Ben to rura rdzeniowa o długości około 1,5 m i wewnętrznej średnicy 14 cm. Składa się on z tłoka na linie oraz głowicy pobieracza, do której przymocowane są pręty służące do wbijania rury w osad. Do podtrzymania rury rdzeniowej, opuszczanej z małej jednostki pływającej, używa się łapacza rdzenia. Tłok jest wpychany w osad pod wpływem ciśnienia grawitacyjnego. Do stabilizacji rury rdzeniowej podczas procesu ekstruzji, przeprowadzanego za pomocą zmodyfikowanego podnośnika hydraulicznego wypychającego tłok do góry, wykorzystuje się stelaż. Każda warstwa osadu jest zbierana na płaską metalową powierzchnię, a następnie przenoszona do przezroczystych worków próbkowych w celu długoterminowego przechowywania [w ciemności i niskiej temperaturze (4 °C)]. Kliknij tutaj, aby pobrać ten plik.
Wideo uzupełniające 2: Przesiewanie osadów.Wyposażenie niezbędne do przesiewania osadów to waga precyzyjna, białe tace do pobierania próbek oraz sita geologiczne. Z każdej warstwy osadu pobiera się co najmniej 5 g do datowania radiometrycznego. Pozostała część osadu jest wykorzystywana do izolacji efipiów. Osad przesiewa się przez dwa sita geologiczne, jedno o rozmiarze oczek 1 mm i drugie o rozmiarze 125 µm, ułożone jedno na drugim. Materiał wlewa się na sito o oczkach 1 mm, aby oddzielić glinę, duże bezkręgowce i materię cząsteczkową. Materiał przelany na drugie sito o oczkach 125 µm oddziela efipia D. magna i drobne cząstki materii. Alikwoty osadu są następnie przenoszone do białej tacy do pobierania próbek. Efipia D. magna są lokalizowane wzrokowo na białym tle tacy. Efipia z każdej warstwy są zbierane do oddzielnych szalek Petriego. Kliknij tutaj, aby pobrać ten plik.
Film uzupełniający 3: Dekapsulacja. Pod stereomikroskopem ephippia D. magna są otwierane pęsetą mikrodisekcyjną poprzez wywieranie nacisku na kolec chitynowej osłonki. Wewnętrzna błona jajowa jest delikatnie usuwana, a jaja spoczynkowe są ostrożnie przenoszone pipetą Pasteura do szalki Petriego zawierającej 10 mL pożywki. Kliknij tutaj, aby pobrać ten plik.
Wideo uzupełniające 4: Wykluwanie. Po ekspozycji na długi fotoperiod i temperaturę 20 °C rozwój zarodka wznawia się między 48 h a kilkoma tygodniami. Po zakończeniu rozwoju zarodki przebijają się przez skorupkę jaja i swobodnie pływają w medium. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Ze względu na wysoką przewodność cieplną wody ekosystemy słodkowodne są bardziej narażone na utratę różnorodności biologicznej niż ekosystemy lądowe w obliczu globalnego ocieplenia34 . Dlatego tak ważne jest zrozumienie reakcji gatunków kluczowych w tych ekosystemach i zidentyfikowanie mechanizmów radzenia sobie ze stresem termicznym. Zrozumienie tych mechanizmów na poziomie gatunków i społeczności może pomóc w przewidywaniu, w jaki sposób globalne ocieplenie wpływa na gatunki i jak wpływ na poszczególne gatunki przenosi się na inne poziomy troficzne. Ostatecznie zrozumienie mechanizmów reakcji na globalne ocieplenie umożliwia identyfikację strategii remediacyjnych w celu złagodzenia wymierania.
Przedstawione tu studia przypadków pokazują, że reakcja D. magna na wzrost temperatury jest wszechobecna przez plastyczność cech historii życia i że sama reakcja na wzrost temperatury nie nakłada wyraźnych kosztów przystosowania, przynajmniej w badanej populacji. Wysoka plastyczność cech historii życia jest wspierana przez nieistotne różnice w zdolnościach do konkurowania (sub)populacji w obecności ocieplenia. Jednak długoterminowe eksperymenty konkurencyjne na wielu populacjach mogą być konieczne, aby uogólnić te wyniki.
Wskrzeszenie uśpionych stadiów stanowi bezprecedensowe źródło do badania mechanizmów adaptacji i trajektorii ewolucji gatunku w czasie10. Gatunki zooplanktonu czerpią korzyści z szybkiego czasu generacji (około 2 tygodni) i żywotności stadiów uśpienia, co pozwala przodkowi rywalizować w z własnymi potomkami lub "odtwarzać" ewolucję, która zaczyna się od różnych stanów przeszłości. Ekologia zmartwychwstania zasadniczo umożliwia zbadanie, czy dany wynik ewolucji jest zależny od jakiegoś wcześniejszego wydarzenia. Identyfikacja genetycznych elementów ewolucji jest obecnie możliwa w eksperymentach laboratoryjnych z wykorzystaniem mikroorganizmów, których "linie przodków" są zamrażane i reanimowane w celu analizy porównawczej z ich wyewoluowanym potomkiem6. Jednak jednym z głównych ograniczeń pracy z organizmami laboratoryjnymi jest to, że "stan przodków" jest już przesuniętą linią bazową. Badanie etapów uśpienia pozwala na pobieranie próbek z czasów poprzedzających jakiekolwiek zdarzenie stresowe (np. dziewicze warunki środowiskowe) oraz na pomiar trajektorii ewolucyjnych od niezakłóconych warunków środowiskowych do różnych stanów przeszłych aż do czasów współczesnych. W ostatnich latach badania polimorfizmu DNA w zmartwychwstałych lub wciąż uśpionych stadiach zooplanktonu dostarczyły ważnych informacji na temat przeszłych procesów demograficznych i adaptacyjnych, które przyczyniły się do składu genetycznego współczesnych populacji 14,16,25,33,35,36. Dzięki większej dostępności technologii sekwencjonowania o wysokiej przepustowości można sekwencjonować genom i transkryptom wskrzeszonych lub wciąż uśpionych etapów, a także mierzyć rodzaj i liczbę zmian genetycznych nagromadzonych w ewoluujących populacjach w czasie.
Przedstawiony tu SOP zmartwychwstania ma ważne zastosowania w dziedzinie multi-omiki na dwóch poziomach. Technologie multiomiczne mogą być stosowane do wskrzeszonych okazów, umożliwiając wyczerpującą analizę elementów molekularnych zaangażowanych w reakcje adaptacyjne na presję selekcyjną środowiska. Ponadto technologie omiczne mogą być stosowane w stadiach pozbawionych kapsuły, ale wciąż uśpionych. Do tej pory zastosowanie technologii sekwencjonowania o wysokiej przepustowości w fazach spoczynku było ograniczone ze względu na zapotrzebowanie na dużą ilość materiału wejściowego. Ograniczenia te są znoszone37. Wraz z obniżeniem wymagań dotyczących materiału wejściowego i postępem w nanofluidyce, sekwencjonowanie całego genomu (WGS) jest teraz możliwe już od 1 ng lub kilku pg materiału wyjściowego38. Zastosowanie technik amplifikacji całego genomu (WGA) i amplifikacji całego transkryptomu (WTA), umożliwiających wzbogacenie DNA i RNA z bardzo małych ilości tkanki, zrewolucjonizowało zarówno metagenomikę39,40, jak i badania medyczne41. Technologie te stosowane do dekapsulowanych jaj w stanie uśpienia umożliwiają przekroczenie ograniczeń związanych z żywotnością stadiów uśpionych i badaniem wydłużonych okresów czasu (np. stuleci).
Wskrzeszenie zbiorowisk bezkręgowców wytwarzających stadia spoczynkowe umożliwia dostosowanie historii społeczności do znanych zmian w krajobrazie naturalnym lub do zmian środowiskowych wywnioskowanych z analiz osadów lub gleb2. Analiza zmian społeczności w odpowiedzi na zmiany środowiskowe daje nam możliwość ilościowego określenia ekoewolucyjnych sprzężeń zwrotnych42 , które mają istotne konsekwencje dla trwałości populacji43, interakcji troficznych44, zgromadzeń społeczności45 oraz zmian w funkcjach i usługach ekosystemowych46. Wreszcie, dokładne przewidywania dotyczące reakcji biologicznych na zmiany środowiskowe mają zasadnicze znaczenie dla ukierunkowania ochrony różnorodności biologicznej47 . Obecne modele predykcyjne są pod tym względem niedokładne, ponieważ nie uwzględniają ważnych mechanizmów biologicznych, takich jak demografia, dyspersja, ewolucja i interakcje między gatunkami. Zrozumienie, w jaki sposób procesy te zmieniają się w czasie, i wykorzystanie tych informacji jako wstępu w modelowaniu prognostycznym, poprawi naszą zdolność do przewidywania trwałości gatunków i społeczności w obliczu zmian środowiskowych2.
Zastosowanie przedstawionej tu SOP nie jest pozbawione wyzwań. Podstawowym ograniczeniem wskrzeszania stadiów uśpionych jest potrzeba specjalistycznego sprzętu do pobierania próbek. Ponadto cały proces, od przesiewania osadu do zakładania kultur klonalnych, wymaga znacznego czasu pracy.
Niektóre z przedstawionych tutaj kroków SOP można łatwo przenieść na inne gatunki rozwielitek. Są to: pobieranie próbek, ustalanie linii klonalnych i projektowanie eksperymentalne. Jednak inne etapy SOP mogą wymagać dalszej optymalizacji dostosowanej do badanych gatunków. Dekapsulacja jest często stosowana do okazów D. magna w celu poprawy sukcesu wylęgu. Jednak takie podejście może nie być odpowiednie dla mniejszych okazów. Bodźce wylęgowe mogą się również różnić między gatunkami48 i osobnikami współgatunkowymi49. W związku z tym przed zastosowaniem SOP może być wymagana doraźna optymalizacja etapów wylęgu SOP. Podczas gdy sukces lęgowy populacji D. magna wskrzeszonej z Lake Ring (30,5% w całym archiwum osadowym) jest zgodny z poprzednimi wynikami49, sukces lęgowy różni się w zależności od stanu zachowania osadu, gatunku50,51 i pochodzenia geograficznego osadu48. Potrzebne są dalsze badania nad mechanizmami regulującymi wejście i postęp w fazach diapauzy, aby zidentyfikować optymalne bodźce wylęgowe dostosowane do różnych gatunków.
Wreszcie, wskazana jest podstawowa wiedza na temat systemu badań, w szczególności obecność gatunków będących przedmiotem zainteresowania w czasie. Można to osiągnąć za pomocą zapisów historycznych. Jeżeli dane historyczne nie są dostępne, zaleca się pobieranie próbek i badanie przesiewowe warstw powierzchniowych osadów jeziornych przed pobraniem próbek rdzeniowych, chociaż może to dostarczyć informacji tylko na temat najnowszej historii.
Oświadczenia
Autorzy nie mają nic do ujawnienia
Podziękowania
Ta praca została wsparta przez grant NERC highlights (NE/N016777/1). Ensis Ltd, Environmental Scientific Services, Environmental Change Research Centre, University College London pobrały próbki i datowały rdzeń osadu.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Worki do pobierania próbek | Fisher Scientific 11542783 | Torba do pobierania próbek obraca się z okrągłymi drutami, systemem zamykania i zakładkami bezpieczeństwa, sterylny polietylen z obszarem do pisania, przezroczysty 89 i mikro; m grubość 140mm x 229mm, 720mL Fisherbrand | |
| rdzeniowy ENSIS ltd | na | Długa, ciężka rura zanurzona w dnie morza, jeziora, stawu w celu wydobycia próbek osadów błotnych. Rdzenie tłokowe mają średnicę wioczną i są zwykle wykonane z | |
| precyzyjnej skali | Veritas-M124A | TLP-50 | |
| Sito geologiczne | UKGE limited | SV7521 | Sito geologiczne o średnicy 200 mm - sito geologiczne o oczkach 1 mm |
| UKGE ograniczone | SV7525 | Sito geologiczne o średnicy 200 mm - siatka 0,125 mm | |
| biała taca do pobierania próbek | NHBS | http://www.nhbs.com/title/view/159614?ad_id=1509 | Standardowe wielofunkcyjne tace laboratoryjne |
| pipeta Pasteura | Globe Scientific inc. | 138020B | Pipet transferowy, 1.7mL, Ogólnego przeznaczenia, 87mm, Bulb Draw - Mikroskop stereoskopowy 0.9mL |
| Mikroskop Nikon | SMZ800 | z zakresem powiększenia 1x -8x połączony z jednostką sterującą kamery | |
| Petriego | EduLab | 153-533 | Sterylne plastikowe słoiki szklane do szalek Petriego o średnicy 90 mm |
| compak | Okrągłe słoiki dżemowe 4 uncje | 100 ml słoiki | |
| szklane | słoiki compak | Słoiki Atum / Bonta Jar 10 uncji | 200 ml słoiki |
| szklane słoiki | butelkacompanysouth | 500 ml słoik z dżemem spożywczym z pokrywką Twist Off | Słoiki 500 ml |
| oprogramowanie statystyczne R | https://cran.r-project.org/ | na | Darmowy internetowy język i środowisko GNU do obliczeń statystycznych i grafiki |
| kleszcze do mikrodysekcji | Fisher Scientific | 41122405 | Szczypce ze stali nierdzewnej do |
| Oprogramowanie do mikroanaliz | obrazu https://imagej.nih.gov/ij/index.html | na | Zestaw narzędzi do przetwarzania obrazów ImageJ o otwartym kodzie źródłowym napisany w |
| mezokosmosie | amazon na | Nobby Fauna-Box III, 41 x 23 x 29 cm, 20.0 Litr | |
| probówki do mikrowirówek mirocentrifuge | Sigma_Aldrick - Merck | Z606340 | premium probówki do mikrowirówek 1,5 ml |
| AGENCOURT DNAdvance | Beckman Coulter | A48705 | Zestaw do ekstrakcji DNA |
| standardowy rozmiar | Thermo Fisher Scientific | 4322682 | LIZ500 - Standardowy rozmiar kompatybilny z sekwencerami ABI |
| ABI3032 sekwenserem | ABI | na | Sekwencer używany do wykonywania analizy fragmentów lub sekwencjonowania Sangera |
Bibliografia
- Lindenmayer, D. B., et al. Value of long-term ecological studies. Austral Ecol. 37 (7), 745-757 (2012).
- Orsini, L., et al. The evolutionary time machine: using dormant propagules to forecast how populations can adapt to changing environments. TREE. 28, 274-282 (2013).
- Grant, P. R., Grant, B. R. Unpredictable evolution in a 30- year study of Darwin's finches. Science. 296, 707-711 (2002).
- Lohbeck, K. T., Riebesell, U., Reusch, T. B. H. Adaptive evolution of a key phytoplankton species to ocean acidification. Nature Biosci. 5, 346-351 (2012).
- Barrick, J. E., et al. Genome evolution and adaptation in a long-term experiment with Escherichia coli. Nature. 461 (7268), 1243-1247 (2009).
- Barrick, J. E., Lenki, R. Genome dynamics during experimental evolution. Nat Rev Genet. 14, 827-839 (2013).
- Blount, Z. D., Barrick, J. E., Davidson, C. J., Lenski, R. E. Genomic analysis of a key innovation in an experimental Escherichia coli population. Nature. 489 (7417), 513-518 (2012).
- Kawecki, T. J., et al. Experimental evolution. TREE. 27, 547-560 (2012).
- Fukami, T., Wardle, D. A. Long-term ecological dynamics: reciprocal insights from natural and anthropogenic gradients. P Roy Soc B-Biol Sci. 272, 2105-2115 (2005).
- Merila, J., Hendry, A. P. Climate change, adaptation, and phenotypic plasticity: the problem and the evidence. Evol Appl. 7 (1), 1-14 (2014).
- Evans, M. E., Dennehy, J. J. Germ banking: bet-hedging and variable release from egg and seed dormancy. Q Rev Biol. 80 (4), 431-451 (2005).
- Appleby, P. G. Chronostratigraphic techniques in recent sediments. 1, Kluwer Academic Publisher. (2001).
- Appleby, P. G., et al. PB-210 dating by low background gamma-counting. Hydrobiologia. 143, 21-27 (1986).
- Bidle, K. D., Lee, S. H., Marchant, D. R., Falkowski, P. G. Fossil genes and microbes in the oldest ice on Earth. PNAS. 104, 13455-13460 (2007).
- Geerts, A. N., et al. Rapid evolution of thermal tolerance in the water flea Daphnia. Nat Clim Change. 5, 665-668 (2015).
- Jansen, M., et al. Thermal tolerance in the keystone species Daphnia magna-a candidate gene and an outlier analysis approach. Mol Ecol. 26 (8), 2291-2305 (2017).
- Hairston, N. G. Jr, De Stasio, B. T. Jr Rate of evolution slowed by a dormant propagule pool. Nature. 336, 239-242 (1988).
- Hairston, N. G. Jr, et al. Lake ecosystems: Rapid evolution revealed by dormant eggs. Nature. 401, 446(1999).
- Weider, L. J., Lampert, W., Wessel, M., Colbourne, J. K., Limburg, P. Long-term genetic shifts in a microcrustacean egg bank associated with anthropogenic changes in the Lake Constance ecosystem. Proc. R. Soc. Lond. B. 264, 1613-1618 (1997).
- Kerfoot, W. C., Robbins, J. A., Weider, L. J. A new approach to historical reconstruction: Combining descriptive and experimental paleolimnology. Limnol Oceanogr. 44 (5), 1232-1247 (1999).
- Cousyn, C., et al. Rapid, local adaptation of zooplankton behavior to changes in predation pressure in the absence of neutral genetic changes. PNAS. 98, 6256-6260 (2001).
- Decaestecker, E., et al. Host-parasite Red Queen dynamics archived in pond sediment. Nature. 450, 870-874 (2007).
- Miner, B. E., De Meester, L., Pfrender, M. E., Lampert, W., Hairston, N. G. Linking genes to communities and ecosystems: Daphnia as an ecogenomic model. P Roy Soc B-Biol Sci. 279 (1735), 1873-1882 (2012).
- Ebert, D. Ecology, epidemiology, and evolution of parasitism in Daphnia. , National Library of Medicine (US), National Center for Biotechnology. (2005).
- Orsini, L., et al. Temporal genetic stability in natural populations of the waterflea Daphnia magna in response to strong selection pressure. Mol Ecol. 25, 6024-6038 (2016).
- IPCC. Summary for policymakers. , Cambridge, United Kingdom and New York, NY, USA. 1-32 (2014).
- Patmore, I. R., et al. Big Ben: a new wide-bore piston corer for multi-proxy palaeolimnology. J Paleolimnol. 51 (1), 79-86 (2014).
- Wright, H. E. Jr A square-rod piston sampler for lake sediments. J Sedimentary Petrology. 37, 975-976 (1967).
- Kilham, S. S., Kreeger, D. A., Lynn, S. G., Goulden, C. E., Herrera, L. COMBO: a defined freshwater culture medium for algae and zooplankton. Hydrobiologia. 377, 147-159 (1998).
- Klüttgen, B., Kuntz, N. orbert, Ratte, H. T. Combined effects of 3,4-dichloroaniune and food concentration on life-table data of two related cladocerans, Daphnia magna and Ceriodaphnia quadrangula. Chemosphere. 32, 2015-2028 (1996).
- R: A language and environment for statistical computing. , Vienna, Austria. (2017).
- Jansen, B., Geldof, S., De Meester, L., Orsini, L. Isolation and characterization of microsatellite markers in the waterflea Daphnia magna. Mol Ecol Res. 11, 418-421 (2011).
- Orsini, L., Spanier, K. I., De Meester, L. Genomic signature of natural and anthropogenic stress in wild populations of the waterflea Daphnia magna: validation in space, time and experimental evolution. Mol Ecol. 21, 2160-2175 (2012).
- Verberk, W. C. E. P., et al. Does oxygen limit thermal tolerance in arthropods? A critical review of current evidence. Comp Biochem Physiol A Mol Integr Physiol. 192, 64-78 (2016).
- Frisch, D., et al. A millennial-scale chronicle of evolutionary responses to cultural eutrophication in Daphnia. Ecol Lett. 17 (3), 360-368 (2014).
- Yashina, S., et al. Regeneration of whole fertile plants from 30,000-y-old fruit tissue buried in Siberian permafrost. PNAS. 109, 4008-4013 (2012).
- Southam, A. D., Weber, R. J. M., Engel, J., Jones, M. R., Viant, M. R. A complete workflow for high-resolution spectral-stitching nanoelectrospray direct-infusion mass-spectrometry-based metabolomics and lipidomics. Nat Protoc. 12 (2), 310-328 (2017).
- Rhodes, J., Beale, M. A., Fisher, M. C. Illuminating Choices for Library Prep: A Comparison of Library Preparation Methods for Whole Genome Sequencing of Cryptococcus neoformans Using Illumina HiSeq. Plos One. 9 (11), (2014).
- Baym, M., et al. Inexpensive Multiplexed Library Preparation for Megabase-Sized Genomes. Plos One. 10 (5), 6(2015).
- Bourcy, C. F. A., et al. A Quantitative Comparison of Single-Cell Whole Genome Amplification Methods. Plos One. 9 (8), (2014).
- Hasmats, J., et al. Assessment of whole genome amplification for sequence capture and massively parallel sequencing. PLoS One. 9 (1), e84785(2014).
- Becks, L., Ellner, S. P., Jones, L. E., Hairston, N. G. Jr The functional genomics of an eco-evolutionary feedback loop: linking gene expression, trait evolution, and community dynamics. Ecol Lett. 15 (5), 492-501 (2012).
- Ellner, S. P., Geber, M. A., Hairston, N. G. Does rapid evolution matter? Measuring the rate of contemporary evolution and its impacts on ecological dynamics. Ecol Lett. 14 (6), 603-614 (2011).
- Yoshida, T., Jones, L. E., Ellner, S. P., Fussmann, G. F., Hairston, N. G. Jr Rapid evolution drives ecological dynamics in a predator-prey system. Nature. 424 (6946), 303-306 (2003).
- Urban, M., et al. The evolutionary ecology of metacommunities. TREE. 23, 311-317 (2008).
- Dokulil, M. T. Eutrophication: Causes, Consequences and Control. , Springer. Netherlands. 81-88 (2014).
- Urban, M. C., et al. Improving the forecast for biodiversity under climate change. Science. 353 (6304), (2016).
- Schwartz, S. S., Hebert, P. D. N. Methods for the activation of the resting eggs of Daphnia. Freshwater Biol. 17, 373-379 (1987).
- Vanderkerhove, J., et al. Hatching of cladoceran resting eggs: temperature and photoperiod. Freshwater Biol. 50, 96-104 (2005).
- Caceres, C. E. Temporal variation, dormancy, and coexistence: a field test of the storage effect. PNAS. 94 (17), 9171-9175 (1997).
- Caceres, C. E. Interspecific variation in the abundance, production, and emergence of Daphnia diapausing eggs. Ecology. 79 (5), 1699-1710 (1998).
Przedruki i uprawnienia
