Ten manuskrypt opisuje protokół oczyszczania powinowactwa do uzupełnienia bimolekularnego (BiCAP). Ta nowatorska metoda ułatwia specyficzną izolację i dalszą charakterystykę proteomiczną dowolnych dwóch oddziałujących białek, wykluczając jednocześnie nieskompleksowane pojedyncze białka, a także kompleksy utworzone z konkurującymi partnerami wiążącymi.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Analizowanie wielobiałkowych kompleksów sygnalizacyjnych za pomocą oczyszczania powinowactwa z komplementacją bimolekularną (BiCAP)
W tym artykule
Podsumowanie
Streszczenie
Składanie kompleksów białkowych jest centralnym mechanizmem leżącym u podstaw regulacji wielu komórkowych szlaków sygnałowych. Głównym celem badań biomedycznych jest rozszyfrowanie, w jaki sposób te dynamiczne kompleksy białkowe działają w celu integracji sygnałów z wielu źródeł w celu kierowania określoną reakcją biologiczną i w jaki sposób ulega ona rozregulowaniu w wielu warunkach chorobowych. Pomimo znaczenia tego kluczowego mechanizmu biochemicznego, brakuje technik eksperymentalnych, które mogłyby ułatwić specyficzną i czułą dekonwolucję tych wielocząsteczkowych kompleksów sygnałowych.
Tutaj to niedociągnięcie jest rozwiązywane poprzez połączenie testu komplementacji białek z nanociałem specyficznym dla konformacji, które nazwaliśmy Oczyszczaniem Powinowactwa Komplementacji Dwumolekularnej (BiCAP). Ta nowatorska technika ułatwia specyficzną izolację i dalszą charakterystykę proteomiczną dowolnej pary oddziałujących białek, z wyłączeniem nieskompleksowanych pojedynczych białek i kompleksów utworzonych z konkurującymi partnerami wiążącymi.
Technika BiCAP jest przystosowana do szerokiego wachlarza dalszych testów eksperymentalnych, a wysoki stopień specyficzności zapewniany przez tę technikę pozwala na bardziej zniuansowane badania nad mechaniką składania kompleksów białkowych, niż jest to obecnie możliwe przy użyciu standardowych technik oczyszczania powinowactwa.
Wprowadzenie
Montaż kompleksów białkowych jest kluczowym procesem w utrzymaniu specyficzności czasowo-przestrzennej wielu szlaków sygnalizacyjnych1,2. Choć krytyczne znaczenie tej roli regulacyjnej jest powszechnie uznawane, brakuje dostępnych technik eksperymentalnych pozwalających na szczegółowe badanie tych kompleksów. Większość badań interaktomiki koncentruje się na oddziaływaniach z pojedynczymi białkami lub sekwencyjnym wzbogacaniu poszczególnych komponentów kompleksu. Przedstawiamy tutaj technikę izolacji specyficznego dimeru białkowego z jednoczesnym wykluczeniem pojedynczych cząsteczek białek składowych, jak i kompleksów tworzonych z konkurencyjnych partnerów wiążących3. Technikę tę nazwaliśmy bimolekularną komplementacją z oczyszczaniem powinowactwa (BiCAP), ponieważ stanowi ona połączenie istniejącego wcześniej testu komplementacji fragmentów białek, bimolekularnej komplementacji fluorescencyjnej (BiFC), z nowatorskim zastosowaniem konformacyjnie specyficznego rekombinowanego nanoprzeciwciała przeciwko GFP i jego pochodnym (patrz Tabela materiałów).
Typowy test komplementacji fragmentów białek opiera się na ekspresji białek „przynęty” (bait) i „ofiary” (prey) połączonych z rozdzielonymi fragmentami białek reporterowych, takich jak lucyferaza4, β-galaktozydaza5 lub zielone białko fluorescencyjne (GFP)6 (Rysunek 1A). Poprzez oddziaływanie białek przynęty i ofiary rozdzielone domeny reporterowe są skłaniane do ponownego sfałdowania w funkcjonalną strukturę, co pozwala na wizualizację lub ilościowe określenie interakcji między białkami przynętą a ofiarą. Metoda BiCAP została zaadaptowana z wersji tej techniki, która wykorzystywała fragmenty wariantu GFP o nazwie Venus. Testy komplementacji białek fluorescencyjnych są popularną metodą wizualizacji oddziaływań białko-białko w żywych komórkach, jednak do tej pory były one ograniczone do tej jednej funkcji7. BiCAP stanowi w tym zakresie znaczący postęp, ponieważ technika ta pozwala nie tylko na wizualizację, ale także na izolację i analizę powstałego oddziaływania białko-białko.
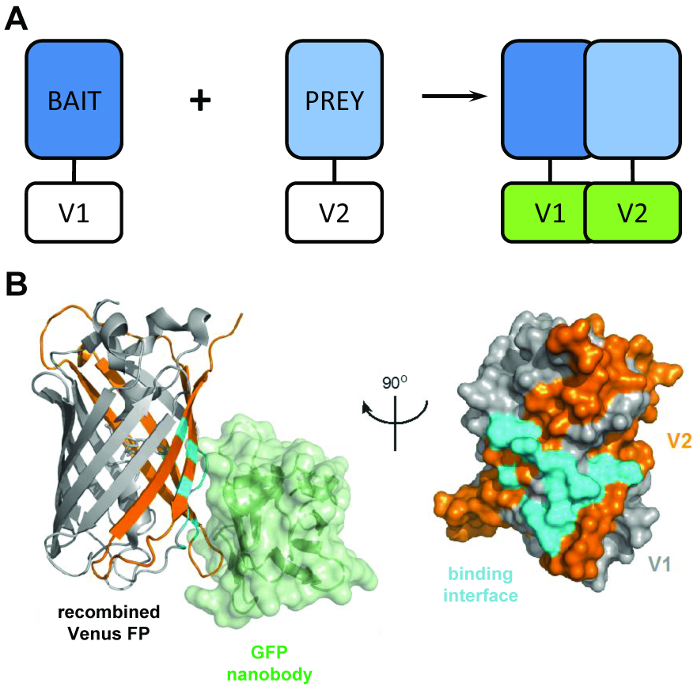
Rycina 1: Zasada strukturalna techniki BiCAP. (A) Schemat przedstawiający zasadę dwucząsteczkowej komplementacji fluorescencji, ukazujący białka „przynęty” (bait) i „ofiary” (prey) oznakowane odpowiednio N-końcowym fragmentem V1 lub C-końcowym fragmentem V2 pełnej białka Venus. (B) Analiza strukturalna interfejsu oddziaływania (cyjan) pomiędzy nanoprzeciwciałem GFP (zielony) a rekombinowaną białkiem Venus, przedstawiająca położenie fragmentów V1 (szary) i V2 (pomarańczowy) (numer akcesyjny PDB 3OGO). Figura przedrukowana z publikacji Croucher et al.3 Powielono za zgodą AAAS. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej figury.
Technika BiCAP wykorzystuje dwa niefluorescencyjne fragmenty białka Venus (nazwane V1 i V2), które wiążą się z niskim powinowactwem, chyba że między ich partnerami fuzji dojdzie do interakcji. W takim przypadku dwie rozdzielone domeny przebudowują się w funkcjonalną strukturę beczki β fluoroforu (Rysunek 1B)6. Kluczową innowacją BiCAP jest wprowadzenie rekombinowanego nanoprzeciwciała GFP, które rozpoznaje trójwymiarowy epitop na beczce β GFP (i wariantach takich jak Venus), obecny wyłącznie na prawidłowo zrecombinowanym i sfałdowanym fluoroforze (Rysunek 1B)8. Co istotne, nanoprzeciwciało GFP nie wiąże się z żadnym z pojedynczych fragmentów białka Venus. Ułatwia to izolację dimerów białkowych dopiero po tym, jak dwa białka utworzą kompleks samoistnie, co prowadzi do uzyskania bardziej reprezentatywnych wyników niż w przypadku metod wykorzystujących wymuszone interakcje indukowane chemicznie9.
BiCAP to potężna technika skupiająca się specjalnie na kompleksach wielobiałkowych, którą można potencjalnie połączyć z szeregiem zastosowań w dalszych etapach analizy, aby zwiększyć szczegółowość naszego rozumienia roli, jaką kompleksy te odgrywają w transdukcji sygnału. Obejmuje ona również istotną cechę umożliwiającą wizualizację oddziaływań białkowych in situ. Do tej pory wykazano, że BiCAP jest skuteczną metodą analizy interaktomu dimerów receptorowych kinaz tyrozynowych (RTK)3, jednak adaptacyjność tej metody sprawia, że może ona zostać zastosowana w niemal każdym kontekście oddziaływań białkowych.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Klonowanie plazmidu
UWAGA: W celu generowania wektorów plazmidowych z tagami V1 lub V2 połączonymi z końcem N lub C badanego genu, wektory docelowe BiFC zostały zdeponowane w Addgene [tag N-końcowy: pDEST-V1-ORF (#73635), pDEST-V2-ORF (#73636). Tag C-końcowy: pDEST-ORF-V1 (#73637), pDEST-ORF-V2 (#73638)]. Aby przystąpić do klonowania, badany gen/geny muszą znajdować się w specyficznych wektorach wejściowych kompatybilnych z klonowaniem rekombinacyjnym (t.j. pDONR23 lub pENTR21), bez kodonów stop. Wiele kompatybilnych klonów jest już dostępnych w różnych kolekcjach plazmidów, w tym w Mammalian Genome Collection (https://genecollections.nci.nih.gov/MGC/).
- Przeprowadź reakcję rekombinacji, aby wstawić gen zainteresowania pomiędzy miejsca attR odpowiedniego wektora docelowego BiFC:
- Do probówki 0,2 mL dodaj 150 ng wektora wejściowego, 150 ng wektora docelowego BiFC oraz 8 µL buforu TE (pH 8,0).
- Dodaj 2 µL mieszanki enzymu rekombinazy (patrz Tabela materiałów). Dobrze wymieszaj i krótko odwiruj w wirówce.
- Inkubuj reakcję przez 1 h w temperaturze pokojowej lub przez noc w temperaturze 16 °C.
- Zatrzymaj reakcję, dodając 1 µL roztworu Proteinazy-K i inkubując w temperaturze 37 °C przez 10 min.
- Przeprowadź transformację komórek kompetentnych metodą szoku termicznego (patrz Tabela materiałów) produktem reakcji LR:
UWAGA: Na tym etapie można zastosować dowolny podstawowy szczep, pod warunkiem, że nie zawiera on antytoksyny Ccdb, która uniemożliwiłaby specyficzną selekcję plazmidów zawierających wstawkę.- Rozmroź komórki kompetentne na lodzie i przenieś 50 µL komórek do okrągłodنnej probówki polipropylenowej o pojemności 14 mL.
- Do komórek dodaj 1 µL produktu reakcji i delikatnie wymieszaj. Inkubuj przez 20 min na lodzie.
- Poddaj komórki szokowi termicznemu w kąpieli wodnej o temperaturze 42 °C przez 45 s. Natychmiast przenieś z powrotem na lód na 2 min.
- Dodaj 1 mL pożywki LB i inkubuj z wytrząsaniem w temperaturze 37 °C przez 1 h.
- Wysiej transformaty na 10 cm płytkę agarową zawierającą ampicylinę (10 µg/mL) i inkubuj przez noc w temperaturze 37 °C.
- Oczyszczanie plazmidu BiFC.
- Aby oczyścić plazmid z pojedynczej kolonii, dodaj 10 mL pożywki LB do dużej kolby stożkowej i dodaj ampicylinę (10 µg/mL). Aby przesiać wiele kolonii, dodaj 5 mL pożywki LB do okrągłodنnych probówek polipropylenowych o pojemności 14 mL i dodaj ampicylinę (10 µg/mL).
- Używając sterylnej pętli do szczepienia, pobierz pojedynczą kolonię z płytki agarowej. Włóż pętlę do pożywki LB i krótko wymieszaj.
- Przykryj górną część kolby stożkowej folią aluminiową i inkubuj przez noc w temperaturze 37 °C z wytrząsaniem.
- Przygotuj plazmidowe DNA klasy transfekcyjnej, używając standardowego zestawu do oczyszczania plazmidowego DNA w wersji maxiprep lub midiprep (patrz Tabela materiałów)10. Oceń jakość DNA za pomocą widm absorbancji.
UWAGA: DNA powinno mieć stosunek A260/A280 >1,8 oraz stosunek A260/A230 >2,0. Na tym etapie zaleca się przesianie wielu pojedynczych kolonii w celu sprawdzenia efektywnej ekspresji wstawki i znacznika.
2. Hodowla komórkowa i transfekcja
UWAGA: W przypadku transfekcji wektorów BiFC ważne jest osiągnięcie wysokiej wydajności oraz stosunkowo jednorodnej transfekcji. Wektory prawdopodobnie będą kompatybilne z każdym standardowym odczynnikiem do transfekcji, a warunki transfekcji powinny zostać odpowiednio zoptymalizowane. Do przeprowadzenia spektrometrii mas zazwyczaj hodujemy komórki w szalkach 10 cm, choć można to proporcjonalnie przeskalować do mniejszych szalek lub płytek w przypadku eksperymentów wymagających mniejszej ilości materiału.
- Zasiać 1,0 × 10⁶ Komórki HEK293T w naczyniu 10 cm z 10 ml pożywki DMEM, uzupełnionej o 10% FBS oraz penicylinę/streptomycynę (1:100).
- Rozcieńczyć 2.5 µg każdego wektora BiFC do 500 µL buforu do transfekcji (patrz Tabela materiałów) w probówce do mikrowirówki o pojemności 1,5 ml.
- Dodaj 10 µL odczynnika do transfekcji (patrz Tabela materiałów).
- Mieszaninę wymieszać na wstrząsarzu wortex przez 10 s, a następnie krótko odwirować. Inkubować przez 10 min w temperaturze pokojowej.
- Dodaj mieszaninę do transfekcji DNA na płytkę, kropla po kropli. Inkubuj komórki przez czas wystarczający do interakcji białek fuzyjnych BiFC oraz do sfałdowania białka Venus i dojrzewania fluoroforu, zazwyczaj od ok. 8 do 24 h.
UWAGA: Maksimum pobudzenia dla Venus wynosi 515 nm, a maksimum emisji 528 nm, choć jest ono łatwo widoczne przy użyciu standardowego mikroskopu fluorescencyjnego skonfigurowanego do wizualizacji fluorescencji GFP.
3. Przygotowanie próbek
- Pozyskiwanie lizatów
- Przed pobraniem lizatu przygotować bufor do lizy komórek [50 mM Tris-HCl (pH 7,4), 150 mM NaCl, 1 mM EDTA, 1% (v/v) detergentu niejonowego (patrz Tabela materiałów)]. Przechowywać w temperaturze 4 °C.
- Bezpośrednio przed pobraniem uzupełnić 10 mL buforu do lizy komórek inhibitorem proteaz i inhibitorem fosfataz (patrz Tabela materiałów). Uzupełniony bufor do lizy komórek należy trzymać na lodzie.
- Przemyć komórki dwukrotnie w schłodzonym do temperatury lodowej PBS. Odessać PBS i dodać 1 mL schłodzonego do temperatury lodowej, uzupełnionego buforu do lizy komórek. Umieścić naczynie na lodzie, upewniając się, że bufor pokrywa całą powierzchnię.
- Inkubować na lodzie przez około 5 min, a następnie za pomocą skrobaka do komórek (patrz Tabela materiałów) zebrać komórki i przenieść je do schłodzonej wcześniej probówki do mikrocentryfugi o pojemności 1,5 mL.
- Usunąć resztki komórkowe poprzez wirowanie zebranego lizatu przy 18 0 × g przez 5 min w temperaturze 4 °C, a następnie przenieść oczyszczony nadsącz do nowych probówek do mikrocentryfugi.
UWAGA: Na tym etapie lizat można wykorzystać natychmiast lub przechowywać w temperaturze -80 °C. Zaleca się również zachowanie aliquotyzowanej porcji surowego lizatu w celu walidacji wydajności transfekcji i oczyszczania powinowactwa.
- Oczyszczanie powinowactwa
UWAGA: Etap izolacji BiCAP jest przeprowadzany z użyciem nanoprzeciwciała GFP sprzężonego z kuleczkami agarozowymi (patrz Tabela materiałów).- Przygotować kuleczki agarozowe, przemywając odpowiednią objętość (20 µL na próbkę + 10 µL nadmiaru) w 1 mL PBS. Wirować kuleczki przy 30 x g i usunąć nadsącz.
- Dodać 20 µL do każdej próbki lizatu.
- Inkubować próbki przez 2 h w temperaturze 4 °C przy rotacji end-to-end.
UWAGA: Na tym etapie próbki mogą zostać przygotowane do analizy za pomocą SDS-PAGE i western blottingu lub do analizy spektrometrią mas.
- Przygotowanie eluatu BiCAP do western blottingu.
- Wirować kuleczki przy 300 x g i przemyć trzykrotnie buforem do lizy komórek.
- Resuspendować przemyte kuleczki w 50 µL odpowiednio rozcieńczonego buforu do próbek (patrz Tabela materiałów) i ogrzewać próbki w temperaturze 95 °C przez 2-3 min.
UWAGA: Próbki przygotowane w ten sposób można przechowywać w temperaturze -20 °C przez kilka miesięcy. - Przeprowadzić SDS-PAGE i western blotting1 zarówno dla tagów V1, jak i V2 (patrz Tabela materiałów), jak i dla innych białek zainteresowania.
- Przygotowanie eluatu BiCAP do spektrometrii mas.
UWAGA: Do analizy za pomocą bezetykietowej ilościowej spektrometrii mas (LFQ) zaleca się przygotowanie próbek w przynajmniej czterech powtórzeniach, aby zapewnić odpowiednią moc statystyczną.- Wirować kuleczki przy 30 x g i przemyć sześciokrotnie buforem do lizy komórek bez detergentu. Jest to konieczne w celu usunięcia zarówno nadmiaru białka, jak i detergentu, który zakłócałby analizę spektrometrią mas. Przejść do następnego kroku natychmiast lub przechowywać kuleczki w temperaturze -80 °C.
- Poddać kuleczki trawieniu trypsyną w 60 µL buforu 1 [2 M mocznika, 50 mM Tris-HCl (pH 7,5), 5 µg/mL trypsyny]. Pozostawić kuleczki do trawienia przez 30 min w temperaturze 27 °C w termomikserze przy wytrząsaniu z prędkością 80 RPM.
- Krótko wirować kuleczki, a następnie zebrać nadsącz i przenieść go do probówek do mikrocentryfugi (patrz Tabela materiałów).
- Przemyć kuleczki w 25 µL buforu 2 [2 M mocznika, 50 mM Tris-HCl (pH 7,5), 1 mM ditiotreolu], aby zredukować związane białka.
- Połączyć kuleczki i nadsącz w jednej probówce do mikrocentryfugi. Pozostawić do trawienia przez noc w temperaturze pokojowej.
- Zalkilować próbki, dodając 20 µL jodoacetamidu (5 mg/mL w wodzie ultrapurej) do każdej próbki i inkubować w ciemności przez 30 min.
- Zahamować trawienie, traktując każdą próbkę 1 µL kwasem trifluorooctowym (TFA). Ten krok zakwaszy również próbki w celu przygotowania do oczyszczania metodą stage tipping.
- Przygotować stage tips C18, układając 6 warstw 1 mm dysków membrany do ekstrakcji do fazy stałej C18 (oktadecyl) (patrz Tabela materiałów) w końcówce mikropipety o pojemności 20 µL. Przygotować jedną końcówkę dla każdej próbki.
- Zwilżyć stage tips metanolem i zrównoważyć 50 µL 0,1% (v/v) kwasu trifluorooctowego (TFA) i 80% (v/v) acetonitrylu.
- Przemyć końcówki 50 µL 0,1% (v/v) TFA.
- Nanieść zakwaszone peptydy na stage tips, a następnie eluować za pomocą 0,1% (v/v) TFA i 80% (v/v) acetonitrylu w dwóch etapach.
- Odparować próbki za pomocą koncentratora próżniowego.
- W razie potrzeby przechowywać wysuszone peptydy w temperaturze -80 °C.
4. Spektrometria mas.
- Resuspenduj próbki w 15 µL 5% kwasu mrówkowego i 2% acetonitrylu (w wodzie ultrapurej).
- Ostrożnie naładuj 6 µL na płytkę LC i wprowadź do systemu nanoLC HPLC (patrz Tabela materiałów).
- Wypełnij kolumnę o długości 20 cm i średnicy wewnętrznej 75 µM cząsteczkami stacjonarnej fazy C18 o rozmiarze 1,9 µm (patrz Tabela materiałów). Naładuj 5 µL peptydów na każdą kolumnę.
- Eluuj peptydy, stosując liniowy gradient acetonitrylu przy przepływie 250 nL/min przez 140 min, i wprowadź metodą nanoelektrosprayu do hybrydowego spektrometru mas Linear Trap Quadropole (LTQ) sprzężonego z systemem nanoLC HPLC.
- Zbierz dane tandemowe MS dla 10 najliczniejszych jonów na skan w czasie gradientu wynoszącego 140 minut. Zrandomizuj kolejność zbierania danych i przeplataj analizy próbek przebiegami z BSA, aby zminimalizować błąd czasowy.
5. Analiza
- Przetwarzanie surowych danych MS przy użyciu domyślnych ustawień w oprogramowaniu MaxQuant w wersji 1.2.7.4 oraz analiza wyników z MaxQuant przy użyciu zmodyfikowanej wersji schematu analizy statystycznej Perseus w środowisku programistycznym R3.
UWAGA: Schemat analizy statystycznej od tego momentu został przedstawiony w formie skróconej na Rysunku 2. W skrócie, intensywności LFQ białek zidentyfikowanych za pomocą MaxQuant są poddawane transformacji i filtrowaniu, a następnie normalizacji i imputacji. Białka wchodzące w interakcje w parach dimerów są identyfikowane poprzez porównanie z kontrolą Venus w celu wykluczenia niespecyficznych wiązań tła, z zastosowaniem testu t Studenta i korekty Benjamini-Hochberga dla wielokrotnych porównań. Jakość danych jest potwierdzana poprzez porównanie poszczególnych histogramów, regresję wielokrotną oraz grupowanie hierarchiczne.
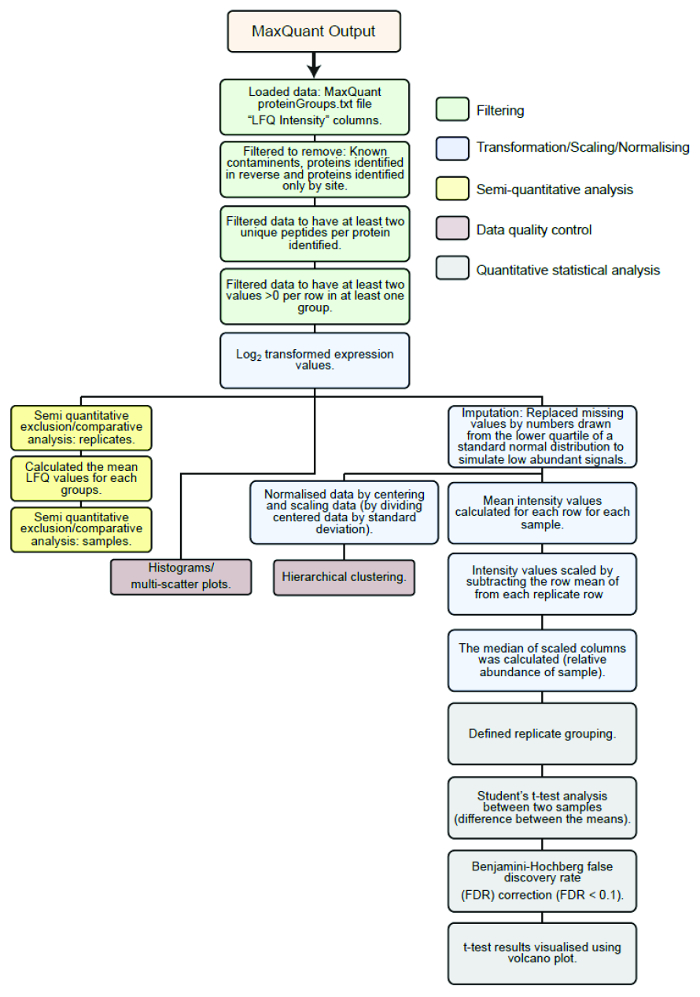
Rysunek 2: Schemat przebiegu analizy statystycznej. Schemat blokowy potoku analizy statystycznej wykorzystanego do analizy intensywności LFQ białek zidentyfikowanych na podstawie surowych danych ze spektrometrii mas przetworzonych za pomocą programu MaxQuant. Zielone pola: filtrowanie, niebieskie pola: transformacja/normalizacja/skalowanie, brązowe pola: kontrola jakości danych, żółte pola: wykluczenie półilościowe/analiza porównawcza, szare pola: analiza statystyczna. Rysunek powtórzony z Croucher et al.3 Opublikowano ponownie za zgodą AAAS. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Po zastosowaniu klonowania rekombinacyjnego w celu wytworzenia genów docelowych z tagami V1 i V2 w plazmidach pDEST dla BiFC, kotransfekcja dwóch plazmidów zawierających wchodzącą w interakcję parę białek spowoduje powstanie sygnału fluorescencyjnego Venus po około 8–24 godzinach. W przypadku braku pozytywnego sygnału możliwe jest, że interakcja białek nie zachodzi z powodu wyboru linii komórkowej, niskiej wydajności transfekcji lub nieoptymalnej orientacji tagów BiFC. Rozwiązywanie probl...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
BiCAP to skuteczna metoda izolowania określonych dimerów białkowych przy jednoczesnym wykluczeniu poszczególnych składników i ich konkurujących ze sobą partnerów wiążących3. BiCAP opiera się na adaptacji testu komplementacji białek fluorescencyjnych o nazwie BiFC6. Istniejące metody, w tym testy ligacji zbliżeniowej BiFC i zbliżeniowej, były szeroko stosowane do wizualizacji i ilościowego określania interakcji białek w żywych komórkach7, ale nie zape...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia
Podziękowania
D.R.C jest członkiem Cancer Institute NSW, a D.N.S był wcześniej członkiem Cancer Institute NSW. Wyniki badań przedstawione w tym manuskrypcie zostały sfinansowane przez Cancer Institute NSW (13/FRL/1-02 i 09/CDF/2-39), NHMRC (Project Grant GNT1052963), Science Foundation Ireland (11/SIRG/B2157), NSW Office of Science and Medical Research, Guest Family Fellowship i Mostyn Family Foundation. J.F.H. i R.S. zostali laureatami Australijskiej Nagrody Podyplomowej.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Enzym LR Clonase II Plus | Thermo Fisher Scientific | 12538120 | Enzym rekombinazy wymagany do klonowania Gateway (Krok 1) do wektorów docelowych pDEST BiFC |
| Proteinaza K, rekombinowana, klasa PCR | Thermo Fisher Scientific | EO0491 | |
| 14 ml okrągłodenna probówka polipropylenowa | Corning | 352059 | |
| Ampicillin | Roche Diagnostics Australia | 10835242001 | Roztwór podstawowy przygotowany w stężeniu 100 μ g/ml w wodzie destylowanej. |
| Zestaw Miniprep | Promega Corporation | A1330 | |
| Zestaw Maxiprep | Life Technologies Australia | K2100-07 | |
| DMEM | Gibco | 11995-073 | |
| FBS | Life Technologies Australia | 10099-141 | |
| Penicylina/Streptomycyna | Life Technologies Australia | 15070-063 | |
| bufor transfekcyjny jetPRIME | Polyplus | 114-15 | |
| jetPRIME odczynnik do transfekcji | Polyplus | 114-15 | |
| PhosSTOP (inhibitor fosfatazy) | Sigma-Aldrich | 4906837001 | |
| cOmplete, Mini, wolny od EDTA koktajl inhibitorów proteazy | Roche | 11873580001 | |
| Skrobak komórkowy | Sarstedt | 83.1832 | |
| GFP-Trap_A | Chromotek Gmbh | gta-100 | GFP nanonik sprzężony z kulkami agarozy |
| N-końcowe przeciwciało monoklonalne GFP | Covance | MMS-118P | Wykryje znacznik V1 w wektorach BiFC |
| C-końcowe przeciwciało monoklonalne GFP | Roche | 11814460001 | Wykryje znacznik V2 w wektorach BiFC |
| Bufor próbki | Invitrogen | NP0008 | Uzupełniony 1 ml β-merkaptoetanolem. |
| Zmodyfikowana trypsyna do sekwencjonowania | Promega Corporation | V5117h | |
| Probówki wirówkowe LoBind Diagnostyka | w miejscu opieki nad pacjentem | 0030 108 116 | |
| Jodoacetamid | Sigma-Aldrich | I1149-5G | Przygotowany w dawce 5 mg/ml w wodzie ultraczystej |
| Kwas trifluorooctowy - Sequanal Grade | Thermo Fisher | 10628494 | |
| Dyski 3M Empore do ekstrakcji do fazy stałej C18 (oktadecyl) - 4,7 cm | Thermo Fisher | 14-386-2 | Aby przygotować końcówki stolika, należy przyciąć krążki o średnicy 1 mm za pomocą dziurkacza o odpowiedniej wielkości. Alternatywnie można również zakupić wstępnie przygotowane wskazówki dotyczące etapów, patrz poniżej. |
| C18 Stage Tips, 10 i mikro; Łóżko L | Thermo Fisher | 87782 | |
| Kwas mrówkowy OPTIMA do klasy LC/MS 50mL | Thermo Fisher | FSBA117-50 | |
| 1,9 μ m C18 Cząstki ReproSil | Dr. Maisch GmbH | r119.aq. | Cząstki fazy stacjonarnej |
| Acetonitryl Optima LC/MS gatunek | Thermo Fisher | FSBA955-4 | |
| Easy-nLC HPLC | Thermo Fisher | ||
| LTQ Orbitrap Velos Pro | Thermo Fisher | ||
| Triton X-100 | Sigma-Aldrich | T8787 | Detergent niejonowy (100%) |
| Ogniwa DH5 i alfa | Thermo Fisher | Kompetentne w przypadku szoku cieplnego |
Bibliografia
- Kolch, W., Pitt, A. Functional proteomics to dissect tyrosine kinase signalling pathways in cancer. Nat Rev Cancer. 10 (9), 618-629 (2010).
- Pawson, T., Kofler, M. Kinome signaling through regulated protein-protein interactions in normal and cancer cells. Curr Opin Cell Biol. 21 (2), 147-153 (2009).
- Croucher, D. R., et al. Bimolecular complementation affinity purification (BiCAP) reveals dimer-specific protein interactions for ERBB2 dimers. Sci Signal. 9 (436), ra69(2016).
- Cassonnet, P., et al. Benchmarking a luciferase complementation assay for detecting protein complexes. Nat Methods. 8 (12), 990-992 (2011).
- Rossi, F., Charlton, C. A., Blau, H. M. Monitoring protein-protein interactions in intact eukaryotic cells by beta-galactosidase complementation. Proc Natl Acad Sci U S A. 94 (16), 8405-8410 (1997).
- Magliery, T. J., et al. Detecting protein-protein interactions with a green fluorescent protein fragment reassembly trap: scope and mechanism. J Am Chem Soc. 127 (1), 146-157 (2005).
- Hu, C. D., Kerppola, T. K. Simultaneous visualization of multiple protein interactions in living cells using multicolor fluorescence complementation analysis. Nat Biotechnol. 21 (5), 539-545 (2003).
- Kubala, M. H., Kovtun, O., Alexandrov, K., Collins, B. M. Structural and thermodynamic analysis of the GFP:GFP-nanobody complex. Protein Sci. 19 (12), 2389-2401 (2010).
- Fegan, A., White, B., Carlson, J. C., Wagner, C. R. Chemically controlled protein assembly: techniques and applications. Chem Rev. 110 (6), 3315-3336 (2010).
- JoVE Science Education Database. Basic methods in cellular and molecular biology. plasmid purification. J Vis Exp. , (2017).
- Eslami, A., Lujan, J. Western blotting: sample preparation to detection. J Vis Exp. (44), (2010).
- Shearer, R. F., et al. The E3 ubiquitin ligase UBR5 regulates centriolar satellite stability and primary cilia formation via ubiquitylation of CSPP-L. Mol Biol Cell. , (2018).
- Shannon, P., et al. Cytoscape: A software environment for integrated models of biomolecular interaction networks. Genome Res. 13 (11), 2498-2504 (2003).
- Schopp, I. M., et al. Split-BioID a conditional proteomics approach to monitor the composition of spatiotemporally defined protein complexes. Nat Commun. 8, 15690(2017).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
