Ta metoda pozwala na generowanie tetraploidalnych i triploidalnych nicieni Caenorhabditis z dowolnego szczepu diploidalnego. Szczepy poliploidalne wygenerowane tą metodą zostały wykorzystane do badania interakcji chromosomów w profazie mejotycznej, a metoda ta jest przydatna do badania ważnych podstawowych pytań w biologii komórki, rozwoju, ewolucji i raka.
Artykuł metodologiczny
Manipulacja ploidalnością u Caenorhabditis elegans
W tym artykule
Podsumowanie
Streszczenie
Mechanizmy obejmujące poliploidalność całego genomu odgrywają ważną rolę w rozwoju i ewolucji; ponadto, nieprawidłowe generowanie komórek tetraploidalnych wiąże się zarówno z progresją raka, jak i rozwojem oporności na leki. Do tej pory nie było możliwe łatwe manipulowanie ploidalnością zwierzęcia wielokomórkowego bez generowania głównie bezpłodnego potomstwa. Przedstawiono tutaj prosty i szybki protokół generowania tetraploidalnych zwierząt Caenorhabditis elegans z dowolnego szczepu diploidalnego. Ta metoda pozwala użytkownikowi stworzyć błąd w segregacji chromosomów podczas mejozy, ostatecznie zwiększając ploidalność u C. elegans. Strategia ta opiera się na przejściowym zmniejszeniu ekspresji genu rec-8 w celu wytworzenia diploidalnych gamet. Mutant rec-8 wytwarza diploidalne gamety, które po zapłodnieniu mogą potencjalnie wytwarzać tetraploidy. Ten łatwy do wykonania schemat został wykorzystany do wygenerowania szczepów tetraploidalnych przenoszących mutacje i rearanżacje chromosomów, aby uzyskać wgląd w dynamikę chromosomów i interakcje podczas parowania i synapsy w mejozy. Metoda ta jest skuteczna w generowaniu stabilnych szczepów tetraploidalnych bez markerów genetycznych, może być stosowana do dowolnego szczepu diploidalnego i może być stosowana do wyprowadzania triploidalnych C. elegans. Ta prosta metoda jest przydatna do badania innych podstawowych zagadnień biologicznych związanych z niestabilnością genomu, dawkowaniem genów, skalowaniem biologicznym, sygnalizacją zewnątrzkomórkową, adaptacją do stresu, rozwojem oporności na leki i mechanizmami specjacji.
Wprowadzenie
Poliploidalność całego genomu istnieje w całej przyrodzie i często jest niezbędnym krokiem w adaptacji, specjacji, organogenezie, gojeniu się ran i skalowaniu biologicznym; jest również znana z tego, że sprzyja zarówno rakowi, jak i oporności na leki1,2,3,4,5,6,7,8,9,10,11,12. Rolnictwo i rybołówstwo wytwarzają rośliny poliploidalne, ryby i skorupiaki poprzez obróbkę chemiczną (np. kolchicyna i orzalin), aby uzyskać szybsze tempo wzrostu oraz większe plony i zwierzęta gospodarskie13,14,15. Istnieje eksperymentalna i nieefektywna produkcja tetraploidów dla systemów modelowych myszy i danio pręgowanego16,17. Jednak większość lub wszystkie poliploidalne zwierzęta wielokomórkowe są embrionalnie śmiertelne lub bezpłodne, a zatem nie są idealne do badań laboratoryjnych nad skutkami poliploidalności w organizmie wielokomórkowym. W związku z tym wszelkie zrozumienie poliplooidyzacji całego genomu w organizmach wielokomórkowych zostało ograniczone do blisko spokrewnionych gatunków z ewolucyjnych niedawnych zdarzeń poliploidyzacji18,19,20. Drogą do zaawansowanych dociekań dotyczących biologicznej roli lub konsekwencji poliploidyzacji jest zastosowanie systemu modelowego C. elegans. Co ważne, C. elegans jest elastycznym systemem genetycznym, który normalnie występuje jako diploid, zawiera tylko pięć autosomów (A) i jeden chromosom płciowy (X) na genom, jest przezroczysty co pozwala na obserwację procesów biologicznych in vivo i ma krótki cykl życiowy wynoszący 3 - 4 dni (od jaja do dojrzałego płciowo osobnika dorosłego). Wykazano, że C. elegans jest zdolny do rozmnażania się jako tetraploid, który jest najczęstszym typem poliploidii całego genomu w przyrodzie. Zwierzęta triploidalne mogą być generowane przez krzyżowanie tetraploidów z diploidami, ale ich ploidalność nie jest stabilna, a szczepy stają się diploidalne w ciągu kilku pokoleń.
W ciągu ostatnich kilku dekad tylko garstka żywotnych i płodnych szczepów tetraploidów C. elegans została wyizolowana w laboratorium, przy użyciu strategii, która jest pracochłonna i generuje tylko ograniczone typy szczepów21,22,23. Strategia ta generuje tetraploidy C. elegans poprzez leczenie szokiem cieplnym, co prawdopodobnie wpływa na segregację chromosomów w gametach, a następnie badanie przesiewowe pod kątem przypuszczalnych zwierząt poliploidalnych przy użyciu markerów genetycznych. Te tetraploidy były niezwykle przydatne w badaniu, w jaki sposób ten nicień decyduje o tym, czy stać się samcem, czy hermafrodytą. W późniejszych badaniach wykorzystano dostępne szczepy do zbadania wzrostu, dawki genu i regulacji synapsy podczas mejozy w tym gatunku nicieni21,24,25,26. Niestety, badania te były ograniczone ze względu na trudności w generowaniu nowych szczepów tetraploidalnych i markerów genetycznych zawartych w tych szczepach. Pokazany tutaj jest prosty i szybki protokół do generowania stabilnych tetraploidów, który został wykorzystany do generowania szczepów do badania regulacji synapsy podczas mejozy27.
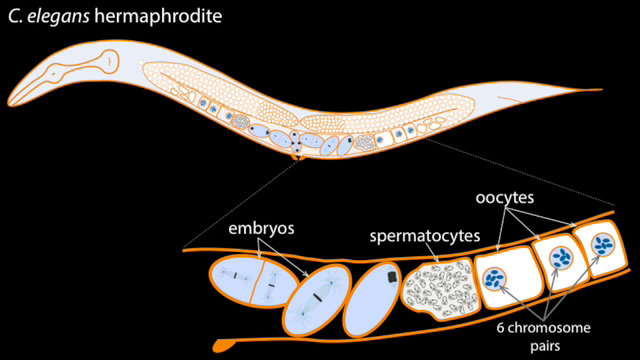
Podobnie jak w naturze, poliploidyzacja może powstać w wyniku tworzenia diploidalnych zamiast haploidalnych gamet. Nasze odkrycie, że specyficzny dla mejozy mutant składnika kohezyny rec-8 generuje diploidalne plemniki i oocyty, wskazało, że strącenie genu rec-8 spowodowałoby produkcję tetraploidalnego potomstwa (Rysunek 1)27,28,29. Generowanie szczepów tetraploidalnych polega po prostu na strącaniu rec-8 przez interferencję RNA (RNAi) przez dwa pokolenia w celu fenokopii zmutowanych diploidalnych gamet rec-8. Domniemane poliploidy można łatwo zidentyfikować po ich dłuższym niż normalnie rozmiarze ciała. Poliploidy są potwierdzane jako pełne lub częściowe tetraploidy poprzez zliczenie liczby chromosomów w jądrze po ustaleniu stabilnych linii.
Opisana tutaj strategia umożliwia generowanie stabilnych tetraploidalnych szczepów nicieni Caenorhabditis z dowolnego początkowego diploidalnego tła genetycznego lub kariotypu bez użycia markerów genetycznych. Ponieważ protokół ten jest bardziej wydajny, wszechstronny i prosty niż poprzednio stosowany schemat, rozszerzy narzędzia potrzebne do badania ról poliploidyzacji w podstawowych procesach rozwoju, stabilności genomu i ewolucji w organizmach wielokomórkowych. Jedynym przewidywalnym ograniczeniem w stosowaniu tego protokołu jest tło genetyczne odporne na RNAi.
Protokół
1. Konfiguracja rec-8 RNAi (Dzień 1 - 3 w Rysunek 2)
Ten protokół jest zmodyfikowany z Kamath i Ahringer30.
- W celu indukcji ekspresji rec-8 dsRNA w Escherichia coli należy przygotować płytki agarowe z pożywką do wzrostu nicieni (NGM)31 uzupełnione końcowym stężeniem 1 mM izopropylo-β-D-2-tiogalaktopiranozydu (IPTG) i 100 μg/ml ampicyliny. Przechowywać w ciemności w temperaturze 4 °C do czasu użycia, do 4 tygodni.
- Smuga bakterii HT115 przenoszących klon rec-8 (W02A2.6) z biblioteki laboratoryjnej Ahringer 30 klon rec-8 na płytki Luria Broth (LB) uzupełnione 100 μg/ml ampicyliny i 50 μg/ml tetracykliny. Rosnąć przez noc w shakerze w temperaturze 37 °C.
- W dniu 1 zaszczepić pojedyncze kolonie ze świeżo prążkowanych pojedynczych kolonii bakterii HT115 E. coli przenoszących klon rec-8 RNAi do 4 ml LB zawierającego 100 μg/ml ampicyliny i 50 μg/ml tetracykliny. Hodować kulturę bakterii przez noc w wytrząsarce lub bębnie rolkowym w temperaturze 37 °C.
- Następnego ranka (Dzień 2) indukować produkcję dwuniciowego (ds) RNA dla rec-8 W02A2.6 w kulturze bakteryjnej HT115, dodając końcowe stężenie 1 mM IPTG i wytrząsając przez 40 minut w temperaturze 37 °C.
- Po indukcji wysiewaj płytki NGM/IPTG ze 100 - 200 μl bakterii HT115 rec-8 i przechowuj płytki w temperaturze pokojowej w ciemności przez noc (dzień 3).
- Następnego ranka (dzień 4) dodaj żądany szczep nicieni do indukowanych płytek bakterii HT115 rec-8, jak opisano w kroku 2.1 poniżej.
2. Generowanie i izolowanie tetraploidów (Dzień 4 - 16 w Rysunek 2)
- W dniu 4 umieść 3 - 4 młode L4 (czwarta larwa) hermafrodyty pożądanego szczepu diploidalnego na płytkach NMG / IPTG wysianych bakteriami HT115 rec-8, które zostały indukowane dzień wcześniej (krok 1.5, powyżej). Hodować nicienie w temperaturze 15 °C w ciemności.
- Powtórz kroki 1.3 i 1.4, zaczynając 3 dni po kroku 2.1, czyli trzy dni przed tym, jak pierwsze potomstwo (F1) z tego kroku stanie się L4. Czas wykonania tego etapu będzie zależał od tego, jak szybko szczep nicieni rośnie w temperaturze 15 °C. Niektóre diploidalne zmutowane odmiany rosną powoli, a ten czas będzie wymagał precyzyjnego dostrojenia, aby wyizolować tetraploidy.
- W dniu 8 (po 4 dniach karmienia RNAi rec-8) przenieś 20 (2 hermafrodyty/szalka Petriego) hermafrodytów F1 (pierwsze pokolenie potomne) L4 wyhodowanych w bakteriach HT115 rec-8 na świeżo indukowane HT115 rec-8 RNAi i pozwól im na samozapłodnienie.
- Alternatywnie, przenieś 20 hermafrodytów F1 L4 wyhodowanych w bakteriach HT115 rec-8 na świeżo indukowane bakterie HT115 rec-8 RNAi razem z nieleczonymi samcami tego samego szczepu (2 hermafrodyty z 4 - 6 samcami / płytką).
- W dniu 13 rozpocznij badania przesiewowe w kierunku potomstwa F2 (drugie pokolenie potomne), które wydaje się długie (Lon) lub ogólnie większe niż typ dziki; następnie przenieś poszczególne zwierzęta Lon na regularne szczepy OP50 lub HB101 bakterii E. coli. Kontynuować badania przesiewowe potomstwa F3 (trzeciego potomka); jednak potomstwo F3 z tej samej płytki nie może być uważane za niezależne szczepy, jeśli się zadomowi, ponieważ może być rodzeństwem tej samej już ustalonej matki F2.
UWAGA: Przypuszczalne tetraploidy są łatwe do zidentyfikowania, ponieważ są wyraźnie dłuższe niż diploidy. Hermafrodyty typu dzikiego są o dwie trzecie krótsze niż tetraploidy. Ponieważ jest dłuższy, ciało tetraploidalne wykonuje dodatkowy obrót, gdy porusza się do przodu, generując sinusoidalne fale zginające ciało od głowy do ogona (Rysunek 3A). - Pozwól robakom Lon na samozapłodnienie i rozmnażanie się poprzez zbieranie potomstwa Lon, aż tylko potomstwo Lon zostanie spłodzone przy braku leczenia rec-8 RNAi. Może to zająć od dwóch do trzech dodatkowych pokoleń. Robaki Lon często są bezpłodne i nie dają potomstwa.
3. Weryfikacja szczepów tetraploidalnych (Film 1 i Rysunek 3A, B)
UWAGA: Szczepy tetraploidalne mogą być weryfikowane poprzez liczenie liczby chromosomów w ich niezapłodnionych oocytach. Mikroskopia fluorescencyjna może być stosowana do badań przesiewowych liczby par chromosomów w niezapłodnionych diploidalnych oocytach (przed podziałami mejotycznymi), jeśli szczep ma marker fluorescencyjny dla chromosomów. W przypadku braku fluorescencyjnych markerów chromosomowych nicienie tetraploidalne można badać przesiewowo, wiążąc nicienie i barwiąc barwnikiem DNA; patrz poniżej protokół utrwalania etanolu i barwienia całych zwierząt dichlorowodorkiem 4′,6-diamidyno-2′-fenyloindolu (DAPI).
- Barwienie DAPI całego zwierzęcia
UWAGA: Szczepy tetraploidalne przenoszące 12 połączonych par chromosomów można zwalidować za pomocą barwienia tych zwierząt przez DAPI i zliczania liczby ciał DAPI w ich niezapłodnionych oocytach.- Umieść 5 do 10 μl M9 buffer31 na szkiełku mikroskopowym, a następnie przenieś 6 - 10 nicieni do kropli.
- Pod mikroskopem preparacyjnym pobierz większość M9 z kropli bez usuwania nicieni za pomocą niestrzępiącej się chusteczki czyszczącej. Następnie natychmiast dodaj 10 μl kropli 90% etanolu na robaki. Pozwól robakom całkowicie wyschnąć, ale nie dłużej niż kilka sekund.
- Jak tylko etanol wyparuje (można to zobaczyć, jak to się dzieje pod mikroskopem preparacyjnym), dodaj dodatkowe 10 μl 90% etanolu na robaki.
- Powtórz krok 3.1.3 jeszcze trzy razy.
- Po odparowaniu ostatniej kropli etanolu dodać 6 μl barwnika DAPI lub Hoechst o zalecanym stężeniu końcowym w wybranym podłożu montażowym (na przykład rozcieńczenie 1:1 000 podstawowego stężenia DAPI 2 ng/μl w M9). Do długotrwałego przechowywania szkiełek można użyć 0,5% p-fenylenodiaminy rozpuszczonej w 20 mM Tris-HCl o pH 8,8, w 90% glicerolu jako roztwór zapobiegający blaknięciu, zamiast samego M9.
- Przykryj robaki na szkiełku szkiełkiem nakrywkowym i uszczelnij krawędzie szkiełka nakrywkowego lakierem do paznokci. Ocenić wynik w mikroskopie fluorescencyjnym (krok 3.1.7) co najmniej 10 minut po dodaniu szkiełka nakrywkowego. Preparaty bez antifade mogą być przechowywane przez kilka dni w temperaturze 4 °C przed nacięciem, ale jakość fluorescencji zaczyna spadać po kilku dniach.
- Za pomocą mikroskopu fluorescencyjnego przy 100-krotnym powiększeniu oceń liczbę pojedynczych ciał DAPI (przypuszczalnie pojedynczych par chromosomów) w najbardziej dojrzałym niezapłodnionym oocycie, który bezpośrednio przylega do spermateki i nie dostał się jeszcze do spermateki ani macicy.
- Aby ocenić poszczególne ciała DAPI w jądrze oocytu, użyj precyzyjnej ostrości mikroskopu, aby powoli przesuwać się od góry jądra oocytu do dołu podczas liczenia. Następnie przelicz to samo jądro, przesuwając ognisko w przeciwnym kierunku (tj. od dołu do góry jądra), aby potwierdzić zliczoną liczbę ciał DAPI.
- Zdobądź najbardziej dojrzały niezapłodniony oocyt w każdej z dwóch gonad w co najmniej dziesięciu hermafrodytach na stabilny szczep Lon. Oocyty typu dzikiego mają średnio 6 ciał DAPI, 5 par autosomów i parę chromosomów płciowych. Obecność 12 ciał DAPI w oocycie stabilnych szczepów Lon wskazuje, że zwierzęta w tym szczepie są albo częściowymi (4 zestawy autosomów, 3 chromosomy X), albo pełnymi (4 zestawy autosomów, 4 chromosomy X) tetraploidami.
- Oblicz średnią liczbę ciał DAPI obserwowanych z wielu (co najmniej 10) oocytów na szczep. Niektóre pary chromosomów będą się stykać lub tuż nad sobą, więc liczba ciał DAPI w oocycie jest często mniejsza niż rzeczywista liczba par chromosomów.
- (Opcjonalnie) Dalsza walidacja stabilnych szczepów Lon, w których średnia liczba ciał DAPI wynosi 12, w celu sprawdzenia, czy są one pełnymi (4A, 4X) lub częściowymi (4A, 3X) tetraploidami poprzez barwienie immunofluorescencyjne na białkach osi chromosomów, takich jak HTP-332. To barwienie pozwoli rozróżnić pary chromosomów, pokazując wzór krzyżowy z pojedynczych niepołączonych chromosomów obecnych w częściowym tetraploidzie.
Wyniki
Upośledzenie funkcji rec-8, komponentu kohezyny meiotycznej, prowadzi do powstania gamet diploidalnych:
Obrazowanie podziałów meiotycznych plemników i oocytów mutanta rec-8, będącego mutantem komponentu kohezyny, ujawniło możliwe mechanizmy powstawania zwierząt tetraploidalnych (Rysunek 1)27,29,33. Pod względem mechanistycznym defekty podziałów meiotycznych w plemnikach i oocytach mutanta rec-8 są odmienne; niemniej jednak mutant rec-8 produkuje diploidalne gamety zarówno męskie, jak i żeńskie.
W mejozie typu dzikiego chromosomy homologiczne zostają tymczasowo połączone ze sobą poprzez rekombinację krzyżową i wchodzą w pierwszy podział meiotyczny jako jednostka, czyli bivalent (Ryc. 1A)34. Podczas pierwszego podziału chromosomy homologiczne (homologi) rozdzielają się od siebie, natomiast chromatydy siostrzane w każdym homologu pozostają razem aż do drugiego podziału. Chociaż wzorzec segregacji chromosomów jest taki sam w gametach żeńskich i męskich, podziały oocytów są asymetryczne, podczas gdy podziały spermatocytów są symetryczne i przebiegają z wyspecjalizowaną cytokinezą. W każdym podziale oocyt odrzuca połowę produktu podziału do małego ciała polarnego. W ten sposób każdy prekursor oocytu daje początek pojedynczemu haploidalnemu oocytowi i dwóm ciałom polarnym (Ryc. 1B, C)35. Odwrotnie, pojedynczy prekursor spermatocytu daje początek czterem funkcjonalnym spermatydom poprzez dwa symetryczne podziały. Drugi podział kończy się odsznurowaniem czterech spermatyd z ciała resztkowego. Cytokineza ta jest szczególna, ponieważ wzorzec i liczba spermatyd są determinowane przez centrosomy36.
W prekursorach gamet mutanta rec-8 nie dochodzi do rekombinacji krzyżowej między chromosomami homologznymi, a homologi nie są połączone w bivalent na początku pierwszej dywizji mejozy29,34. Chromatydy siostrzane każdego homologu rozdzielają się od siebie w pierwszej dywizji, zamiast pozostawać razem do drugiej dywizji, jak ma to miejsce w gametach typu dzikiego. Co ciekawe, fenotyp mutanta rec-8 podczas drugiej dywizji różni się w gametach męskich i żeńskich; oocyty nie przechodzą cytokinezy, podczas gdy spermatocyty przechodzą stosunkowo prawidłową cytokinezę (Rycina 1B-F)27,28,29. Oocyty diploidalne powstają, ponieważ w drugiej dywizji nie dochodzi w nich ani do segregacji chromosomów, ani do cytokinezy, w związku z czym nie wydalają one drugiego ciałka polarnego (Rycina 1B, C). Spermatocyty w liniach zarodkowych rec-8 przechodzą pączkowanie spermatyd lub cytokinezę, ale często segregują oba zestawy chromosomów do jednej ze spermatyd, co prowadzi do powstania spermatydy diploidalnej oraz spermatydy pozbawionej chromatyny (Rycina 1D-F)27. Ilościowe określenie proporcji plemników rec-8 pozbawionych chromatyny przedstawiono na Rycynie 1F.
Powstawanie żeńskich i męskich diploidalnych gamet u mutantów rec-8 sugerowało, że ten fenotyp mutantów mógłby zostać potencjalnie wykorzystany do generowania szczepów tetraploidalnych o pełnym genomie.
Generowanie tetraploidalnych szczepów C. elegans:
Obecności mutacji w genie rec-8 we wszystkich wygenerowanych szczepach tetraploidalnych można uniknąć poprzez przejściowe wyciszenie rec-8 za pomocą RNAi29,37. Zakłada się tutaj, że redukcja funkcji rec-8 przez RNAi doprowadzi do powstania diploidalnych gamet, które potencjalnie mogą dać początek tetraploidalnym osobnikom z pełnym genomem, podobnie jak ma to miejsce w przypadku mutantów rec-829,37. Kluczowe dla niniejszego protokołu jest to, że mutanty rec-8 zarówno wytwarzają diploidalne gamety, jak i potomstwo w stosunkowo dużej liczbie, w przeciwieństwie do innych mutantów meiotycznych, które wytwarzają gamety aneuploidalne i są w większości bezpłodne lub wykazują letalność w stadium embrionalnym bądź larwalnym.
Wiele szczepów tetraploidalnych wygenerowano poprzez karmienie C. elegans bakteriami ekspresyjnymi dsRNA rec-8, stosując jedną z dwóch strategii (patrz Protokół, Rycina 2 oraz Tabela 1)27. Tetraploidy można uzyskać poprzez samowyzapłodnienie hermafrodytów przez dwa do trzech pokoleń w szalkach Petri z bakteriami ekspresyjnymi dsRNA rec-8. W ramach tej strategii hermafrodyta jest umieszczany na świeżo przygotowanych płytkach RNAi rec-8, a jego potomstwo jest przenoszone kilka dni później na nowe płytki z bakteriami świeżo indukowanymi do ekspresji RNAi rec-8 (patrz Protokół). Dodatkowo tetraploidy można generować poprzez krzyżowanie pierwszego pokolenia hermafrodytów karmionych bakteriami ekspresyjnymi dsRNA rec-8 z niepoddanymi działaniu RNAi samcami o tym samym genotypie w szalkach Petri z bakteriami ekspresyjnymi dsRNA rec-8 (Rycina 2). W tym przypadku samce biorące udział w krzyżowaniu są eksponowane na bakterie RNAi rec-8 od stadium L4 włącznie, podczas kojenia. Oba schematy prowadzą do powstania zwierząt tetraploidalnych27. Tabela 1 przedstawia szczepy tetraploidalne uzyskane przy użyciu opisanego tutaj schematu. Triploidalne i tetraploidalne C. elegans są większe niż diploidy, jednak szczepy triploidalne są niestabilne i mają tendencję do powrotu do diploidalności w ciągu jednego lub dwóch pokoleń, podczas gdy szczepy tetraploidalne są stosunkowo stabilne22,23. Domniemane szczepy tetraploidalne zidentyfikowano jako hermafrodyty większe od hermafrodytów szczepu wyjściowego (Lon), które dawały wyłącznie potomstwo Lon (Rycina 3A). Zwierzęta Lon są łatwo rozpoznawalne – diploidalne zwierzęta typu dzikiego mają dwie trzecie długości tetraploidów, a ich ciała nie tworzą dodatkowego zagięcia, co można zauważyć podczas sinusoidalnego ruchu do przodu (Rycina 3A).
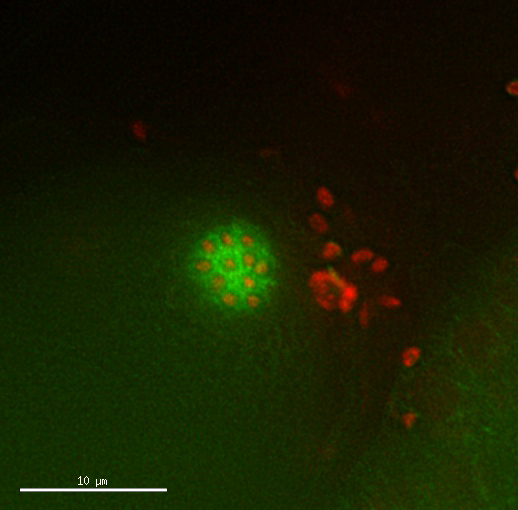
Szczepy tetraploidalne potwierdzono poprzez przesiewowe badanie obecności 12 par chromosomów w oocytach tetraploidalnych obojnaków w porównaniu do sześciu par chromosomów w oocytach obojnaków diploidalnych (Ryc. 3B, C oraz Film 1).
Klasy tetraploidalne:
Zidentyfikowano dwa typy tetraploidalnych obojnaków: jeden z nichy generował samce z częstotliwością podobną do diploidalnych obojnaków, a drugi generował samce z znacznie wyższą częstotliwością (Tabela 1). Wykazano, że te dwa rodzaje tetraploidalnych obojnaków różnią się tym, że klasa wykazująca częstotliwości zbliżone do samców diploidalnych jest tetraploidalna w odniesieniu do wszystkich chromosomów (4A, 4X), natomiast klasa wykazująca wysoką częstotliwość występowania samców to obojnaki, które są tetraploidalne dla autosomów, ale triploidalne dla chromosomu płci (4, 3X). Ta druga klasa tetraploidów jest stabilna i produkuje obojnaki 4A, 3X oraz samce 4A, 2X.
Szczepy tetraploidalne rosną wolniej i wykazują mniejszą liczebność lęgów w porównaniu do diploidów, z których zostały wyprowadzone, co zaobserwowano w przypadku szczepów generowanych poprzednią metodą22,23. Madl i Herman22 zasugerowali, że zwiększona proporcja martwych embrionów w szczepach tetraploidalnych może wynikać z aneuploidii w oocytach, jednak powierzchowna analiza szczepów tetraploidalnych nie wykazała wystarczająco wysokiej liczby oocytów aneuploidalnych ani nieprawidłowych podziałów oocytów lub spermatocytów, które mogłyby wyjaśnić zaobserwowany spadek liczebności lęgu (Movie 2 oraz Rysunek 3C, D).
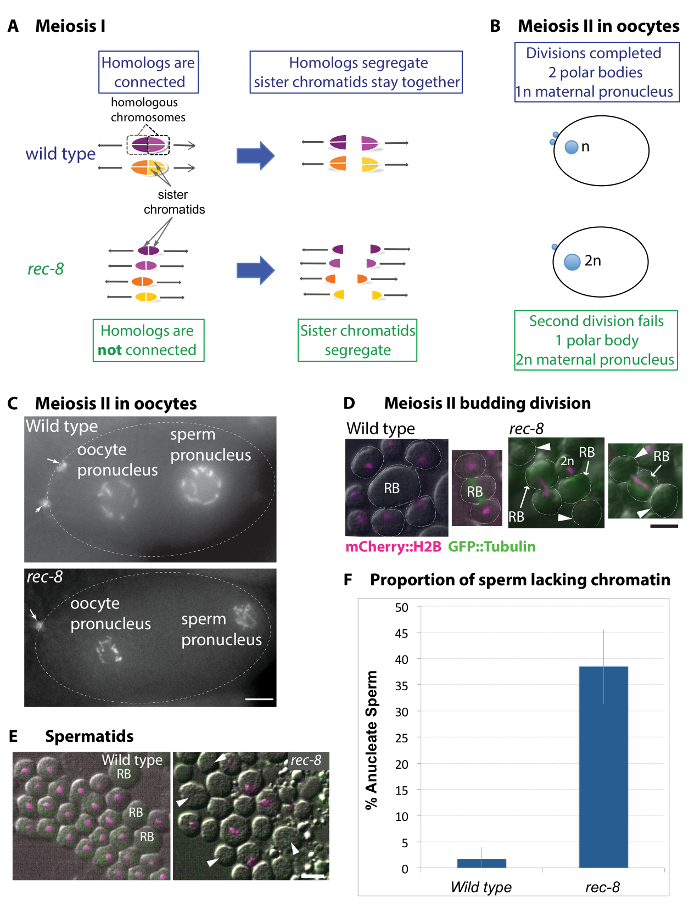
Rycina 1: Gametogeneza u rec-8 mutant sugeruje możliwe mechanizmy generowania stabilnych szczepów poliploidalnych. (A) Schemat organizacji chromosomów i wzorca segregacji u typu dzikiego oraz rec-8 mutantne podziały mejotyczne. W mejozie typu dzikiego chromosomy homologiczne rozdzielają się w pierwszym podziale mejotycznym. Chromatydy siostrzane każdego homologu orientują się w stronę tego samego bieguna wrzeciona i pozostają razem aż do drugiego podziału. W rec-8 mutanty, homologi nie tworzą crossoverów, a zatem nie są połączone. W przeciwieństwie do typu dzikiego, rec-8 siostrzane chromatydy orientują się w przeciwnych kierunkach i rozdzielają w pierwszej dywizji mejozy.B) Schemat oocytów typu dzikiego i mutantów przedstawiający żeńskie jądro komórkowe oraz wydalone ciała polarne (jądro komórkowe samca nie zostało przedstawione). W oocytach typu dzikiego dwa asymetryczne podziały mejotyczne prowadzą do wydalenia dwóch ciał polarnych. W rec-8 u mutantów natomiast dochodzi do niepowodzenia ekstruzji drugiego ciałka polarnego, co skutkuje powstaniem diploidalnego oocytu. (C) Obrazy typu dzikiego i rec-8 mutantne oocyty wykazujące ekspresję mCherry::histonu H2B. Strzałki wskazują dwa ciałka polarne w oocycie typu dzikiego oraz jedno w rec-8 mutant. Pasek skali wynosi 5 µm. (D i E) Obrazy na żywo spermatyd typu dzikiego i rec-8 zwierzęta mutanty wykazujące ekspresję mCherry::histony H2B (magenta). Groty strzałek wskazują bezządrzaste spermatydy. Pasek skali wynosi 2 µm. (D) spermatocyty przechodzące drugi podział (pączkowanie) u typu dzikiego oraz rec-8 mutant. Spermatocyty typu dzikiego przechodzą symetryczne podziały, w wyniku których powstają cztery pączkujące spermatydy, z których każda posiada haploidalny zestaw chromosomów. W rec-8 W przypadku mutantowych spermatocytów segregacja chromosomów w drugim podziale jest zaburzona. Najczęściej pojedyncza masa chromatyny pozostaje w ciałku resztkowym (RB) lub w jednej z dwóch siostrzanych spermatyd w drugim podziale mejozy. Prowadzi to do powstania anukleatowych rec-8 mutantne plemniki (oznaczone grotami strzałek) lub plemniki diploidalne. (E) Obrazy na żywo spermatyd po pączkowaniu u typu dzikiego i rec-8 mutanty zwizualizowane za pomocą kontrastowego mikroskopu różnicowego (DIC) oraz mikroskopii fluorescencyjnej. Spermatydy typu dzikiego mają wszystkie podobną masę chromatyd. rec-8 zmutowane spermatydy tworzą bezjądrowe plemniki.F) Ilościowe oznaczenie typu dzikiego i rec-8 mutantowe plemniki bezjądrowe. rec-8 u mutantów odnotowano 38,5% plemników bezzątkowych w porównaniu do mniej niż 1,6% u typu dzikiego. Test dokładny Fishera wskazuje, że rec-8 mutant wykazuje znacznie wyższą częstość występowania plemników bezządrowych (p ≤0,0001) w porównaniu z typem dzikim. Słupki błędu przedstawiają odchylenia standardowe. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
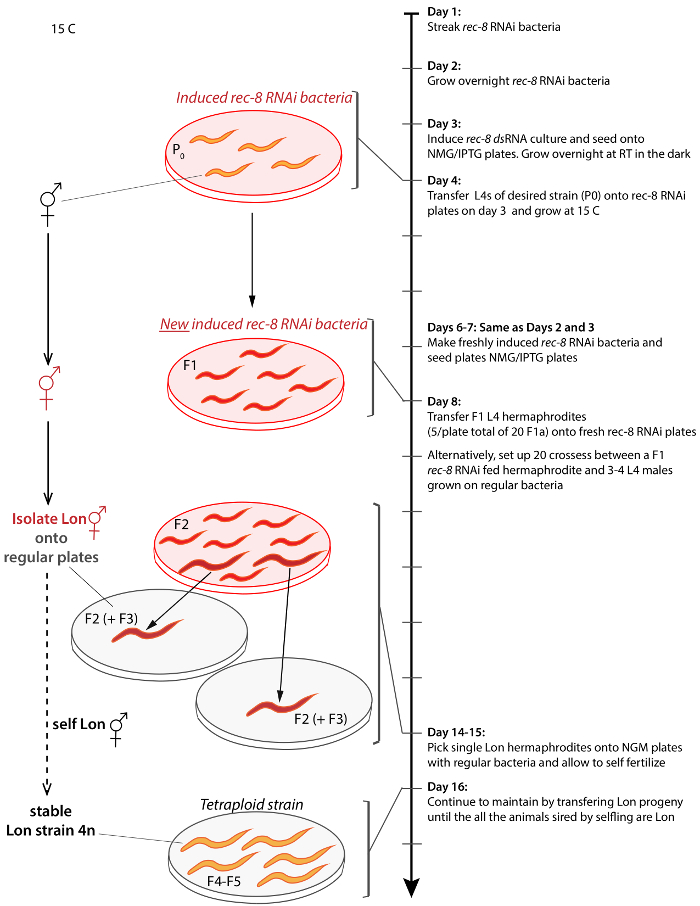
Rycina 2: Schemat generowania i izolowania tetraploidalnych C. elegans z dowolnego szczepu. Strzałka po prawej stronie przedstawia oś czasu protokołu, zaczynając od dnia 1. i kończąc w dniu 17. Podobne wyniki można uzyskać poprzez krzyżowanie hermafrodytów z nieleczonymi samcami w dniu 9. Nawiasy łączą opis kroku z osią czasu. Zwierzęta nieleczone są koloru pomarańczowego, zwierzęta poddane działaniu preparatu są czerwone, zwierzęta Lon są większe, bakterie wykazujące ekspresję dsRNA rec-8 przedstawiono jako przezroczyste płytki z przezroczystym czerwonym tłem, a zwykłe bakterie OP50 przedstawiono na płytkach z przezroczystym szarym tłem. Procedurę przeprowadza się w temperaturze 15 °C, chyba że wskazano inaczej. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.

Rycina 3: Przykłady tetraploidalne. (A) Obraz w polu jasnym zwierzęcia tetraploidalnego (MSC2) oraz szczepu diploidalnego, z którego zostało wyprowadzone (AV740). Tetraploidalne C. elegans są ogólnie większe i dłuższe (Lon) niż diploidalne. Ta różnica w wielkości ciała skutkuje dodatkową krzywą sinusoidalną ciała poruszającego się osobnika tetraploidalnego i może być wykorzystana jako kryterium przesiewowe w poszukiwaniu pochodnych tetraploidalnych. Pasek skali wynosi 0,1 mm. (B, C) Obrazy fluorescencyjne jąder najbardziej dojrzałych niezapłodnionych oocytów diploidalnych (AV740) i tetraploidalnych (MSC1) przed podziałami meiotycznymi. Wstępne przesiewanie wtórne jest przeprowadzane poprzez obserwację liczby par chromosomów w niezapłodnionych oocytach ustalonych szczepów Lon, co pokazano w Filmie 1 dla szczepu MSC1 wykazującego ekspresję Mcherry::H2B i GFP::β-Tubulin w linii zarodkowej. Pasek skali wynosi 5 µm. (D) Obrazy z filmu poklatkowego (Film 2) przedstawiające podziały meiotyczne tetraploidalnego oocytu, obrazujące ogólnie prawidłową mejozę. Groty strzałek wskazują ciała polarne, a linia przerywana oznacza korę oocytu wewnątrz spermateki otoczonego przez plemniki; t = czas upływający w minutach. Pasek skali wynosi 10 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
| Genotyp | Pochodna tetraploidalna (zestawy autosomów : liczba chromosomów X)* | Szczep rodzicielski (diploid) |
| meIs16 [pie-1p::mCherry::his-58 + unc-119(+)]; | MSC1 (4A:4X) | MSC0 |
| ruIs57 [pie-1p::GFP::b-tubulin + unc-119(+)] | MSC2 (4A:3X) | |
| MSC3 (4A:4X) | ||
| MSC5 (4A:3X) | ||
| MSC6 (4A:4X) | ||
| MSC8 (4A:4X) | ||
| unc-119(ed3) III; ddIs6; ddIs6[tbg-1::GFP + unc-119(+)]; ltIs37; ltIs37 [pAA64; pie-1p::mCherry::HIS-58 + unc-119(+)] IV | MSC14 (4A:3X) | TMR17 |
| MSC15 (4A:3X) | ||
| MSC16 (4A:4X) | ||
| spo-11(me44)/nT1 IV; +/nT1[ qIs51[myo-2::gfp Ppes-10::gfp, PF22B7.9::gfp]] V | AV800& | AV776 |
| meIs8 [pie-1p::gfp::cosa-1 + unc-119(+)] II; | AV809& | AV727 |
| ltIs37 [pie-1p::mCherry::his-58 + unc-119(+)] IV; | ||
| ltIs38 [pie-1p::gfp::ph(PLC1delta1) + unc-119(+)] | ||
| meIs8 [pie-1p::gfp::cosa-1 + unc-119(+)] II; mnT12 (X; IV) | AV826& | AV695 |
| mIn1[ dpy-10(e128) mIs14[myo-2::gfp pes-10::gfp]] / | AV810& | DR2078 |
| bli-2(e768) unc-4(e120) II | ||
| ruIs32 [pie-1::GFP::H2B + unc-119(+)] III | AV822& | AZ212 |
| AV823& | ||
| C. briggsae - mfIs42[Cel-sid-2 + Cel-myo-2::DsRed] | AV824& | JU1018 |
Tabela 1: Wygenerowane szczepy tetraploidalne. *Wnioskowano na podstawie oceny liczby bivalentów (połączonych par homologicznych) i univalentów (pojedynczych homologów) w oocytach przed podziałami mejotycznymi oraz proporcji potomstwa męskiego.
Film 1: Przesiewanie w celu potwierdzenia, czy stabilne szczepy Lon są tetraploidami pełnymi czy częściowymi. Film rozpoczyna się od schematu hermafrodyty typu dzikiego z zaznaczonym obszarem obrazowania (niezapłodnione oocyty), co pozwala na identyfikację tetraploid poprzez zliczanie par chromosomów. Po schemacie następuje seria filmów ze stosów Z (Z-stack) oraz projekcji przedstawiających gonady zwierząt diploidalnych i tetraploidalnych utrwalonych i barwionych DAPI lub obrazy żywych szczepów wykazujących ekspresję histony Mcherry::H2B. Przesiewanie odbywa się poprzez zliczanie liczby połączonych par chromosomów homologicznych w niezapłodnionych oocytach. Zliczanie ciał barwionych MCherry lub DAPI przeprowadzono w niezapłodnionym oocycie znajdującym się najbliżej magazynującej plemniki spermateki (tzw. „oocyt -1”). Chromosomy w tym oocycie są najbardziej skondensowane i od siebie oddzielone, co pozwala na dokładniejsze zliczanie par homologów. W celu zapewnienia dokładności zliczania chromosomów w oocycie -1 przesiewaniu poddano ponad 10 zwierząt na szczep. Grubość stosu wynosi 0,2 µm. Kliknij tutaj, aby obejrzeć ten film. (Kliknij prawym przyciskiem myszy, aby pobrać.)
Film 2: Podziały tetraploidalnych oocytów wyglądają prawidłowo. Time-lapse dzielącego się oocytu szczepu tetraploidalnego wykazującego ekspresję histony Mcherry::H2B oraz GFP::β-Tubulin. Czas trwania i przebieg podziałów wydają się prawidłowe. Obrazy rejestrowane co 2,5 min. Kliknij tutaj, aby obejrzeć ten film. (Kliknij prawym przyciskiem myszy, aby pobrać).
Dyskusja
Produkcja haploidalnych (n) gamet jest kluczem do wytworzenia diploidalnej (2n) zygoty podczas zapłodnienia. Ta redukcja genomu odbywa się podczas mejozy z dwoma kolejnymi podziałami komórek po pojedynczej duplikacji genomu. Aby wytworzyć haploidalne gamety, C. elegans, podobnie jak większość innych metazoan, segreguje homologi pochodzące od matki i ojca w pierwszym podziale, podczas gdy chromatydy siostrzane z każdego homologu segregują się w drugim podziale. Jednym ze sposobów, w jaki poliploidalność całego genomu powstaje w przyrodzie, jest generowanie gamet, które nie osiągają połowy rozmiaru genomu podczas mejozy.
Od ponad 50 lat wiadomo, że tetraploidalne nicienie C. elegans są żywotne i płodne. Nigon23, a później Madl i Herman22, wygenerowali i zidentyfikowali garstkę tetraploidów C. elegans, zakłócając mejotyczną segregację chromosomów za pomocą odpowiednio terapii szoku cieplnego i markerów genetycznych. Pojedynczy dodatkowy tetraploidalny szczep C. briggsae został uzyskany przy użyciu tego protokołu ponad 30 latpóźniej24. Te tetraploidy wykorzystano do zbadania, w jaki sposób C. elegans określa, czy stać się samcem, czy hermafrodytą, jak ploidalność reguluje wzrost i rozmiar oraz do analizy parowania i synapsy w mejozie 25,26,38,39,40. Jednak te i inne badania wymagające użycia specyficznych szczepów tetraploidalnych lub triploidalnych były ograniczone przez trudności w generowaniu szczepów tetraploidalnych tą metodą.
Opisany tutaj protokół umożliwia generowanie stabilnych pełnych 4A, 4X i częściowych 4A, 3X tetraploidalnych szczepów nicieni Caenorhabditis z dowolnego początkowego diploidalnego tła genetycznego lub kariotypu bez użycia markerów genetycznych.
Tetraploidia może powstać przez więcej niż jeden mechanizm u C. elegans:
Madl i Herman zasugerowali, że tetraploidalne szczepy, które wygenerowali, prawdopodobnie pochodziły ze stanu triploidalnego. Ich szczepy uzyskano poprzez selekcję przez wiele pokoleń lub przez skrzyżowanie przypuszczalnego triploidalnego produktu pośredniego z diploidalnymi samcami22. Defekty w partycjonowaniu chromosomów w mutantach rec-8 , które powodują powstawanie diploidalnych oocytów i plemników, sugerują inny możliwy mechanizm, w wyniku którego zwierzęta tetraploidalne mogą powstać ze schematem rec-8 RNAi27.
Hermafrodyty traktowane rec-8 RNAi mogą wytwarzać diploidalne oocyty i spermatocyty, które po zapłodnieniu dałyby początek zwierzętom tetraploidalnym. Zgodny z tą możliwością jest fakt, że niektóre ze sklonowanych hermafrodytów F2 dały początek stabilnym szczepom Lon w następnym pokoleniu, co sugeruje, że sklonowane hermafrodyty Lon F2 były już tetraploidalne. W schemacie krzyżowania pierwsze pokolenie hermafrodytów traktowanych rec-8 RNAi krzyżuje się z nieleczonymi samcami. Diploidalne spermatocyty mogą nadal powstawać u samców, ponieważ krzyżowanie odbywa się w obecności bakterii eksprymujących rec-8 dsRNA, a zatem samce są narażone na rec-8 RNAi podczas krycia przez co najmniej 3 dni. W związku z tym poliploidy Lon w schemacie zapłodnienia krzyżowego mogły również powstać w wyniku zapłodnienia diploidalnych oocytów przez diploidalne plemniki. Stabilne szczepy tetraploidalne mogą powstać albo w wyniku zapłodnienia między diploidalnymi gametami, albo ze skrzyżowania triploidalnych zwierząt zawierających oocyty o zmiennej ploidalności ze zwierzętami diploidalnymi wytwarzającymi haploidalne plemniki.
Ważne kwestie:
Schematy samozapłodnienia i zapłodnienia krzyżowego:
Schemat samozapładniania hermafrodytów F1 traktowanych rec-8 RNAi oraz schemat polegający na krzyżowaniu traktowanych hermafrodytów z nieleczonymi samcami doprowadziły do powstania szczepów tetraploidalnych 4A, 4X i 4A, 3X. Chociaż początkowo wyizolowano więcej poliploidów ze schematu samozapłodnienia, więcej tych poliploidalnych zwierząt było bezpłodnych, a zatem oba schematy są podobnie wydajne w wytwarzaniu stabilnych szczepów tetraploidalnych. Przyczyna zwiększonego sukcesu i sterylności w schemacie samozapłodnienia pozostaje nieznana. Chociaż oba schematy są podobnie skuteczne, schemat samozapłodnienia jest łatwiejszy, ponieważ nie wymaga izolacji samców do krycia. Ponadto, gdy interesujący nas szczep jest nieefektywny lub wadliwy podczas krycia, preferowany byłby schemat samozapłodnienia. Schemat zapłodnienia krzyżowego może być stosowany do generowania złożonych tetraploidów zawierających więcej niż dwie wersje pojedynczego chromosomu.
Modyfikacje i ograniczenia:
Obecnie protokół ten obejmuje leczenie rec-8 RNAi poprzez karmienie bakterii eksprymujących dsRNA dla genu rec-8. Tak więc protokół ten nie działa u gatunków Caenorhabditis niereagujących na RNAi poprzez żerowanie, ani u mutantów z wadami w środowiskowym lub ogólnoustrojowym rozprzestrzenianiu się RNAi między tkankami 41,42,43. Problem ten można potencjalnie rozwiązać, wprowadzając leczenie RNAi poprzez bezpośrednie wstrzyknięcie interesującego nas dsRNA bezpośrednio do linii zarodkowej.
Zwierzęta triploidalne muszą być generowane przez krzyżowanie tetraploidalnego ze zwierzęciem diploidalnym, od którego został poprowadzony, ponieważ schemat ten nie generuje stabilnych szczepów triploidalnych44,45. Wykluwa się tylko 15% jaj spłodzonych przez triploidy, a ich potomstwo to w większości bezpłodne potomstwo z powodu aneuploidii. Ponadto nieliczne płodne potomstwo, które przeżyło, ma tendencję do bycia kompletnymi lub prawie diploidalnymi w ciągu kilku pokoleń. Jest to prawdopodobne, przynajmniej częściowo, ponieważ oocyty częściowo korygują trisomię poprzez segregację trzeciego chromosomu do ciała polarnego w pierwszym podziale mejotycznym.
Nieprzezwyciężalnym ograniczeniem tego protokołu jest to, że nie działa on w przypadku wytwarzania tetraploidów mutantów, które wpływają na składniki maszynerii RNAi, ponieważ są one oporne na leczenie RNAi46.
Rozwiązywanie problemów:
rec-8 RNAi:
Kilka kwestii jest kluczowych, aby ten protokół był skuteczny. Pierwszym z nich jest użycie świeżych płytek IPTG i świeżo wytworzonych płytek IPTG NMG do indukcji produkcji dsRNA rec-8 u bakterii HT115 przenoszących klon rec-8 (W02A2.6). IPTG jest światłoczuły i ważne jest, aby zmniejszyć ekspozycję na światło na płytki. Płytki IPTG można przechowywać do jednego miesiąca w temperaturze 4 °C w ciemności. Po drugie, szczepy bakterii HT115 RNAi rec-8 (W02A2.6) z biblioteki Ahringer (Kamath i Ahringer 2003) dały silniejszy fenotyp rec-8 niż inne dostępne klony rec-8 HT115.
Konserwacja szczepu tetraploidalnego:
Szczepy tetraploidalne rosną bardzo wolno i produkują co najwyżej 50 potomstwa na pokolenie47. Wszystkie zidentyfikowane szczepy tetraploidalne są stosunkowo stabilne, ale mogą się rozpadać i stawać się diploidalne pod wpływem stresu (Jonathan Hodgkin, osobista komunikacja i nasze niepublikowane obserwacje). Dlatego ważne jest, aby pamiętać, że gdy szczepy tetraploidalne są uprawiane w temperaturze 25 °C, poddawane szokowi cieplnemu, głodzone lub zamrożone i rozmrożone, mogą szybko powrócić do diploidalności, dlatego ważne jest, aby nadal wybierać zwierzęta Lon podczas rozmrażania tych szczepów lub podczas wystawiania tych szczepów na stresujące warunki, które mogą spowodować ich powrót.
Możliwe zastosowania:
Badanie wpływu lub roli poliploidyzacji całego genomu w ewolucji, cyklu komórkowym, ekspresji genów i rozwoju w organizmach wielokomórkowych opierało się na porównaniach między: komórkami w organizmie, które zawierają różną ploidalność, tymi samymi typami komórek u blisko spokrewnionych gatunków o różnej ploidalności lub gatunkami, które przeszły ewolucyjnie niedawne zdarzenia poliploidyzacji i fizycznejizolacji3, 5,6,7,8,11,18,19,20,48,49,50. Chociaż tetraploidy mogą pochodzić z systemów modelowych danio pręgowanego i myszy, ich potomstwo jest bezpłodne lub zarodkowo śmiertelne16,17. Ponadto te systemy modelowe mają długie cykle życia w porównaniu z C. elegans, a dostępne metody generowania zwierząt poliploidalnych są złożone i nieefektywne. W związku z tym szczepy C. elegans uzyskane tą metodą będą miały zasadnicze znaczenie dla dalszych badań nad efektami i rolami poliploidalności całego genomu w organizmach wielokomórkowych.
Ponieważ triploid może być uzyskany z tetraploida poprzez skrzyżowanie tetraploidu z oryginalnym diploidem, porównanie diploidów, triploidów i tetraploidów, które różnią się tylko liczbą kopii genomu, zapewnia wyjątkową i bezprecedensową okazję do oceny równoważnych zwierząt/narządów/komórek o różnej wielkości genomu (lub dawce genu). Elastyczność i łatwość opisanego tutaj schematu pozwoliła nam wygenerować dziesiątki tetraploidalnych szczepów z różnych genetycznych środowisk diploidalnych lub kariotypów. Niektóre z tych szczepów były już wykorzystywane do badania mechanizmów parowania chromosomów homologicznych i synapsy podczas mejozy27.
Dzikie i zmutowane szczepy tetraploidalne przenoszące markery fluorescencyjne zapewnią nowe możliwości badań w celu zrozumienia związków między wielkością genomu a stosunkiem jądra do cytozolu w skalowaniu wewnątrzkomórkowym/komórkowym/narządowym i całego zwierzęcia, poliploidyzacji całego genomu w adaptacji, specjacji, dawce i ekspresji genów oraz rozwoju tkanek i narządów. Oprócz badań nad skalowaniem biologicznym, generowanie szczepów tetraploidalnych znacznie przyczyni się do pogłębienia badań nad podstawowymi pytaniami biologicznymi związanymi z sygnalizacją zewnątrzkomórkową, niestabilnością genomu, endoreduplikacją, duplikacją całego genomu, dawkowaniem genów, adaptacją do stresu, rozwojem oporności na leki i specjacją mechanizmów.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Dziękujemy Centrum Genetyki Caenorhabditis (finansowane przez National Institute of Health (NIH) Office of Research Infrastructure Programs P40 OD010440) za szczepy. Autorzy chcieliby podziękować Baptiste'owi Roelensowi i Eliemu Lessmanowi za dostarczenie nam konstruktywnych informacji zwrotnych oraz Mano Lab w CCNY, CUNY za korzystanie z ich laboratorium podczas części filmowania i za ich pomoc. Praca ta została wsparta nagrodą PSC-CUNY TRADB-46-113 i grantem NIH 1SC2GM118275-01. M.S. był częściowo wspierany przez stypendium podoktorskie Kanadyjskiego Instytutu Zdrowia (CIHR), a E.K. był wspierany przez grant NIH/NIGMS RISE GM062981.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Mikroskop preparacyjny | Mikroskopia Motic | SMZ171 | |
| Nazwa | Firma | Numer katalogowy | Uwagi |
| NGM płytki agarowe | |||
| 60 mm x 15 mm Szalki Petriego, sterylne | Tritech Research | T3305 | |
| 35 mm x 15 mm szalki Petriego, sterylny | Tritech Research | T3500 | |
| , 5 kg | VWR | 89140-850 | |
| Chlorek sodu, klasa biotechnologiczna | VWR | 97061-278 | |
| Pepton, BD Bacto | VWR | 90000-368 | |
| Trójwodzian ampicyliny | VWR | 97062-300 | |
| IPTG, bez dioksanu | Thermo Scientific | R0391 | |
| Nazwa | Firma | Numer katalogowy | Komentarze |
| Kultura wzrostu | |||
| LB Lennox Broth | IBI Scientific | 89126-176 | |
| Nazwa | Firma | Numer katalogowy | Komentarze |
| LB Talerze agarowe | |||
| LB Agar Lennox | IBI Scientific | 89126-182 | |
| Nazwa | Firma | Numer katalogowy | Uwagi |
| Antybiotyki | |||
| Ampicillin Trihydrate | VWR | 97062-300 | |
| Chlorowodorek tetracykliny | Fisher Scientific | BP912-100 | |
| Nazwa | Firma | Numer katalogowy | Komentarze |
| Barwienie | |||
| Hoechst 33258, Pentahydrate | Biotium | 40045 | |
| DAPI | Biotium | 40011 | |
| Nazwa | Firma | Numer katalogowy | Komentarze |
| Utrwalanie etanolu | |||
| Etanol, czysty, 190 Proof (95%), USP | Koptec, VWR | 89125-166 | |
| Nazwa | Firma | Numer katalogowy | Komentarze |
| M9 Bufor | |||
| Chlorek sodu, klasa biotechnologiczna | VWR | 97061-278 | |
| Fosforan potasu, jednozasadowy bezwodny gatunek | VWR | 97062-346 | |
| Fosforan sodu, jednozasadowy dwuwodny | Fisher Scientific | AC271750025 | |
| Nazwa | Firma | Numer katalogowy< | strong>Komentarze |
| RNAi Klony | |||
| HT115 eksprymujące rec-8 dsRNA | Źródło: Bioscience | W02A2.6 | |
| Bakterie HT115 eksprymujące rec-8 dsRNA | Dharmacon | RCE1182-202299820 |
Bibliografia
- Ricke, R. M., van Ree, J. H., van Deursen, J. M. Whole chromosome instability and cancer: a complex relationship. Trends Genet. 24, 457-466 (2008).
- Frawley, L. E., Orr-Weaver, T. L. Polyploidy. Curr Biol. 25, R353-R358 (2015).
- Orr-Weaver, T. L. When bigger is better: the role of polyploidy in organogenesis. Trends Genet. 31, 307-315 (2015).
- Otto, S. P. The evolutionary consequences of polyploidy. Cell. 131, 452-462 (2007).
- Davoli, T., de Lange, T. The Causes and Consequences of Polyploidy in Normal Development and Cancer. Annu Rev Cell Dev Biol. 27, 585-610 (2011).
- Adams, K., Wendel, J. Novel patterns of gene expression in polyploid plants. Trends Genet. 21, 539-543 (2005).
- Adams, K. L., Wendel, J. F. Polyploidy and genome evolution in plants. Curr Opin Plant Biol. 8, 135-141 (2005).
- Berman, J. Ploidy plasticity: a rapid and reversible strategy for adaptation to stress. FEMS Yeast Res. 16, (2016).
- Levy, D. L., Heald, R. Mechanisms of Intracellular Scaling. Annu Rev Cell Dev Biol. 28, 113-135 (2012).
- Breneman, A., Cande, J., Dunn, J., Burbank, K., O'toole, E. Genome-wide genetic analysis of polyploidy in yeast. Nature. 443, 541-547 (2006).
- Kuznetsova, A. Y., et al. Chromosomal instability, tolerance of mitotic errors and multidrug resistance are promoted by tetraploidization in human cells. Cell Cycle. 14, 2810-2820 (2015).
- Taylor, J. S., Van de Peer, Y., Meyer, A. Genome duplication, divergent resolution and speciation. Trends Genet. 17, 299-301 (2001).
- Younis, A., Hwang, Y. -J., Lim, K. -B. Exploitation of induced 2n-gametes for plant breeding. Plant Cell Rep. 33, 215-223 (2014).
- Ihssen, P. E., McKay, L. R., McMillan, I., Phillips, R. B. Ploidy Manipulation and Gynogenesis in Fishes: Cytogenetic and Fisheries Applications. Trans Am Fish Soc. 119, 698-717 (2011).
- Stanley, J. G., Allen, S. K., Hidu, H. Polyploidy induced in the American oyster, Crassostrea virginica, with cytochalasin B. Aquaculture. 23, 1-10 (1981).
- Eakin, G. S., Behringer, R. R. Tetraploid development in the mouse. Dev Dyn. 228, 751-766 (2003).
- Heier, J., Takle, K. A., Hasley, A. O., Pelegri, F. Ploidy manipulation and induction of alternate cleavage patterns through inhibition of centrosome duplication in the early zebrafish embryo. Dev Dyn. 244, 1300-1312 (2015).
- Arnold, B., Kim, S. -T., Bomblies, K. Single Geographic Origin of a Widespread Autotetraploid Arabidopsis arenosa Lineage Followed by Interploidy Admixture. Mol Biol Evol. 32, 1382-1395 (2015).
- Session, A. M., et al. Genome evolution in the allotetraploid frog Xenopus laevis. Nature. 538, 336-343 (2016).
- Gallardo, M. H., Bickham, J. W., Honeycutt, R. L., Ojeda, R. A., Köhler, N. Discovery of tetraploidy in a mammal. Nature. 401, 341(1999).
- Hodgkin, J. Primary sex determination in the nematode C. elegans. Development. 101, Suppl . 5-16 (1987).
- Madl, J. E., Herman, R. K. Polyploids and sex determination in Caenorhabditis elegans. Genetics. 93, 393-402 (1979).
- Nigon, V. Polyploidie experimentale chez un nematode libre, Rhabditis elegans maupas. Bull Biol Fr Belg. 95, 187-225 (1951).
- Woodruff, G. C., Eke, O., Baird, S. E., Félix, M. -A., Haag, E. S. Insights Into Species Divergence and the Evolution of Hermaphroditism From Fertile Interspecies Hybrids of Caenorhabditis Nematodes. Genetics. 186, 997-1012 (2010).
- Mlynarczyk-Evans, S., Roelens, B., Villeneuve, A. M. Evidence That Masking of Synapsis Imperfections Counterbalances Quality Control to Promote Efficient Meiosis. PLoS Genet. 9, e1003963(2013).
- Lozano, E., Sáez, A. G., Flemming, A. J., Cunha, A., Leroi, A. M. Regulation of Growth by Ploidy in Caenorhabditis elegans. Curr Biol. 16, 493-498 (2006).
- Roelens, B., Schvarzstein, M., Villeneuve, A. M. Manipulation of Karyotype in Caenorhabditis elegans Reveals Multiple Inputs Driving Pairwise Chromosome Synapsis During Meiosis. Genetics. 201, 1363-1379 (2015).
- Martinez-Perez, E., et al. Crossovers trigger a remodeling of meiotic chromosome axis composition that is linked to two-step loss of sister chromatid cohesion. Genes Dev. 22, 2886-2901 (2008).
- Severson, A. F., Ling, L., van Zuylen, V., Meyer, B. J. The axial element protein HTP-3 promotes cohesin loading and meiotic axis assembly in C. elegans to implement the meiotic program of chromosome segregation. Genes Dev. 23, 1763-1778 (2009).
- Kamath, R. S., Ahringer, J. Genome-wide RNAi screening in Caenorhabditis elegans. Methods. 30, 313-321 (2003).
- Wood, W. B. The Nematode Caenorhabditis Elegans. , Cold Spring Harbor Laboratory Press. New York. (1988).
- MacQueen, A. J., et al. Chromosome Sites Play Dual Roles to Establish Homologous Synapsis during Meiosis in C. elegans. Cell. 123, 1037-1050 (2005).
- Martinez-Perez, E., et al. Crossovers trigger a remodeling of meiotic chromosome axis composition that is linked to two-step loss of sister chromatid cohesion. Genes Dev. 22, 2886-2901 (2008).
- Schvarzstein, M., Wignall, S. M., Villeneuve, A. M. Coordinating cohesion, co-orientation, and congression during meiosis: lessons from holocentric chromosomes. Genes Dev. 24, 219-228 (2010).
- Kim, S., Spike, C., Greenstein, D. Germ Cell Development in C. elegans. , Springer. New York, NY. 277-320 (2013).
- Peters, N., et al. Control of mitotic and meiotic centriole duplication by the Plk4-related kinase ZYG-1. J Cell Sci. 123, 795-805 (2010).
- Pasierbek, P. A Caenorhabditis elegans cohesion protein with functions in meiotic chromosome pairing and disjunction. Genes Dev. 15, 1349-1360 (2001).
- Hodgkin, J. Primary sex determination in the nematode C. elegans. Development. 101, 5-16 (1987).
- Flemming, A. J., Shen, Z. -Z., Cunha, A., Emmons, S. W., Leroi, A. M. Somatic polyploidization and cellular proliferation drive body size evolution in nematodes. Proc Natl Acad Sci U S A. 97, 5285-5290 (2000).
- Meneely, P. M. Sex determination in polyploids of Caenorhabditis elegans. Genetics. 137, 467-481 (1994).
- Whangbo, J. S., Hunter, C. P. Environmental RNA interference. Trends Genet. 24, 297-305 (2008).
- Imae, R., Dejima, K., Kage-Nakadai, E., Arai, H., Mitani, S. Endomembrane-associated RSD-3 is important for RNAi induced by extracellular silencing RNA in both somatic and germ cells of Caenorhabditis elegans. Sci Rep. 6, 28198(2016).
- Tijsterman, M., May, R. C., Simmer, F., Okihara, K. L., Plasterk, R. H. A. Genes required for systemic RNA interference in Caenorhabditis elegans. Curr Biol. 14, 111-116 (2004).
- Cortes, D. B., McNally, K. L., Mains, P. E., McNally, F. J. The asymmetry of female meiosis reduces the frequency of inheritance of unpaired chromosomes. Elife. 4, e06056(2015).
- Vargas, E., et al. Autosomal Trisomy and Triploidy Are Corrected During Female Meiosis in Caenorhabditis elegans. Genetics. 207, 911-922 (2017).
- Tabara, H., et al. The rde-1 gene, RNA interference, and transposon silencing in C. elegans. Cell. 99, 123-132 (1999).
- Hodgkin, J. Karyotype, ploidy, and gene dosage. , University of Oxford. (2005).
- Schoenfelder, K. P., Fox, D. T. The expanding implications of polyploidy. J Cell Biol. 209, 485-491 (2015).
- Levy, D. L., Heald, R. Biological Scaling Problems and Solutions in Amphibians. Cold Spring Harb Perspect Biol. 8, a019166(2015).
- Taylor, J. S., Van de Peer, Y., Braasch, I., Meyer, A. Comparative genomics provides evidence for an ancient genome duplication event in fish. Philos Trans Royal Soc B. 356, 1661-1679 (2001).
Przedruki i uprawnienia
