Tutaj prezentujemy protokoły dla początkujących badaczy, które rozpoczynają fenotypowanie dla farmakologicznie ważnego rodzaju bakterii Streptomyces.
Artykuł metodologiczny
Wizualna i mikroskopowa ocena mutantów rozwojowych Streptomyces
W tym artykule
Podsumowanie
Streszczenie
Streptomycetes to nitkowate bakterie glebowe należące do typu Actinobacteria, które występują na całym świecie i produkują szeroki wachlarz antybiotyków i innych wtórnych metabolitów. Streptomyces coelicolor jest dobrze scharakteryzowanym, niepatogennym gatunkiem, który poddaje się różnorodnym analizom w laboratorium. Opisane tutaj metody fenotypowania wykorzystują S. coelicolor jako modelowy streptomycete; Jednak metody te mają zastosowanie do wszystkich członków tego dużego rodzaju, a także do niektórych blisko spokrewnionych promieniowców. Fenotypowanie jest niezbędne do scharakteryzowania nowych gatunków Streptomyces zidentyfikowanych w środowisku, a także jest niezbędnym pierwszym krokiem w charakterystyce nowo wyizolowanych zmutowanych szczepów Streptomyces. Biegłość w fenotypowaniu jest ważna dla wielu nowych badaczy, którzy wkraczają w dziedzinę badań nad Streptomyces, która obejmuje badanie rozwoju bakterii, podziału komórek, segregacji chromosomów i sygnalizacji drugiego przekaźnika. Niedawny crowdsourcing odkryć antybiotyków poprzez izolację nowych mikroorganizmów glebowych spowodował zwiększone zapotrzebowanie na szkolenia w zakresie fenotypowania dla instruktorów nowych w dziedzinie badań nad Streptomyces oraz ich studentów lub uczniów szkół średnich. Niniejszy manuskrypt opisuje metody rozmnażania, przechowywania i charakterystyki szczepów bakteryjnych poprzez badanie wizualne i mikroskopowe. Po przeczytaniu tego artykułu nowi badacze (laboratoria edukacji mikrobiologicznej i naukowcy-obywatele) powinni być w stanie manipulować szczepami Streptomyces i rozpocząć eksperymenty z charakterystyką wizualną.
Wprowadzenie
Streptomycetes to Gram-dodatnie, nitkowate bakterie glebowe znane ze swojej zdolności do wytwarzania różnych metabolitów wtórnych, w tym ponad dwóch trzecich dostępnych na rynku antybiotyków, a także leków przeciwnowotworowych, anty-HIV i przeciwpasożytniczych1. S. coelicolor jest najbardziej scharakteryzowanym genetycznie członkiem rodzaju2,3 i jest gatunkiem wykorzystywanym w opisanych tutaj metodach. S. coelicolor ma złożony cykl życiowy, który rozpoczyna się od wykiełkowania pojedynczego zarodnika, przechodząc do rozległej, rozgałęzionej grzybni wegetatywnej, która wyrasta na podłoże agarowe. W miarę postępu cyklu życiowego powstają włókna powietrzne, które łamią napięcie powierzchniowe grzybni substratowej i ostatecznie dzielą się na długie łańcuchy komórek, które ostatecznie przekształcają się w dojrzałe, szaro zabarwione zarodniki. Dyspersja tych nowo powstałych zarodników stanowi początek następnego cyklu życiowego4.
Ze względu na swój złożony wzór różnicowania, S. coelicolor służy jako doskonały model do badania rozwoju bakterii. Historycznie rzecz biorąc, mutacje skutkują blokami dla dwóch głównych etapów rozwoju i wytwarzają odrębne fenotypy wizualne. Mutanty bld (łyse) są blokowane do tworzenia grzybni powietrznej i skutkują brakiem rozmytej grzybni powietrznej, nadającej wygląd "łysej" kolonii. Mutanty zahamowane w tworzeniu i dojrzewaniu zarodników są określane jako mutanty whi (białe), ponieważ zazwyczaj nie wytwarzają dzikich poziomów szarego pigmentu zarodników, a grzybnia powietrzna pozostaje biała. Inne interesujące mutanty są hamowane w produkcji antybiotyków, podziale komórek, segregacji chromosomów lub innych ważnych procesach4,5.
Pomimo odkrycia wielu genów rozwojowych u gatunków Streptomyces, istnieje wiele innych praw, które istnieją na podstawie braku nasycenia zmutowanych ekranów. Nasze laboratoria kontynuują identyfikację nowych genów rozwojowych za pomocą skonstruowanego przez nas systemu mini-transpozonów. Nowe zmutowane szczepy wyizolowane w losowych eksperymentach mutagenezy z naszym transpozonem są poddawane fenotypowym badaniom przesiewowym w celu zidentyfikowania możliwej roli każdego odkrytego nowego genu6,7. Opisane tutaj metody fenotypowania bakterii są odpowiednie dla mutantów Streptomyces wyizolowanych metodą mutagenezy transpozonowej8,9,10,11,12,13 i innymi metodami losowymi, takimi jak mutageneza chemiczna i ultrafioletowa (UV)14, a także ukierunkowaną konstrukcję mutacji, takich jak delecje genów, za pomocą rekombinacji15,16 lub CRISPR-Cas9 (Clustered Regularly Interspaced Short Palindromic Repeats) technologia edycji genomu17,18,19 i mutacje punktowe20.
W miarę jak oporność na antybiotyki wśród patogenów staje się coraz bardziej powszechna, potrzeba nowych antybiotyków staje się coraz bardziej pilna21,22. "Small World Initiative" (lub SWI) to skuteczna nauka nauk ścisłych, technologii, inżynierii i matematyki (STEM) 23 i strategia badawcza24 w celu zwalczania oporności na antybiotyki poprzez crowdsourcing studentów, a ostatnio także uczniów szkół średnich. Wspierane kursy obejmują identyfikację nowych mikroorganizmów glebowych, które wytwarzają nowe antybiotyki (http://www.smallworldinitiative.org). Uważa się, że głównym źródłem nieodkrytych antybiotyków nadal będą gatunki Streptomyces występujące w szerokim zakresie siedlisk glebowych i wodnych25,26,27,28,29,31. Niedawno nasze laboratorium i praca innych odkryły i scharakteryzowały geny sygnałowe u gatunków Streptomyces, które regulują morfologię i rozwój, w tym produkcję antybiotyków7,32,33. Zmiany w ekspresji tych genów powodują zmianę ilości i czasu wytwarzania antybiotyków. Umiejętne fenotypowanie nowych gatunków i nowych mutantów wytwarzających antybiotyki będzie nadal ważne. Ponieważ nowi instruktorzy i ich studenci stają się głównymi twórcami w dziedzinie odkrywania leków, szkolenie w zakresie fenotypowania bakteryjnego jest niezbędne dla sukcesu tych początkujących osób. Co więcej, eksperymenty te są wykonalne dla licealnych laboratoriów STEM lub uniwersyteckich laboratoriów edukacji mikrobiologicznej. Stanowią one demonstrację podstawowych zasad genetyki drobnoustrojów w warunkach laboratoryjnych.
Protokół
1. Przygotowanie instrumentów, pożywek hodowlanych, roztworów i szalek Petriego
- Wykałaczki w autoklawie w zlewce o pojemności 50 ml pokrytej folią aluminiową, aby zachować sterylność.
- Wysterylizuj wszystkie suche produkty, które będą używane (końcówki, patyczki, szkło itp.) w autoklawie.
UWAGA: Uwaga! Postępuj zgodnie ze wszystkimi wskazówkami bezpieczeństwa dla używanego modelu autoklawu. Autoklawy stwarzają ryzyko wybuchu i oparzeń parą wodną oraz kontaktem z gorącymi powierzchniami, materiałami i mediami. Aby zapewnić bezpieczeństwo autoklawu, zobacz "Prawidłowe korzystanie z autoklawów"34. - Przygotuj agar MS (Mannitol Soya Flour (SFM))14 do uprawy kultur.
- Dodać 5 g mąki sojowej i 5 g agaru do kolby o pojemności 1 l.
- Rozpuścić 5 g mannitolu w 250 ml wody z kranu i rozlać do kolby zawierającej mąkę sojową i agar.
- Dodać korek piankowy i folię do otworu kolby i autoklawu w temperaturze 121 °C, 15 psi przez co najmniej 30 min.
UWAGA: To podłoże łatwo kipi. Użyj kolby, która może pomieścić co najmniej czterokrotność rzeczywistej objętości agaru MS poddawanego autoklawizowi. Standardowy szybkowar może być używany zamiast autoklawu z podobnymi względami bezpieczeństwa. Alternatywnie, kuchenka mikrofalowa może być używana do sterylizacji mediów i materiałów, jeśli dostęp do autoklawu nie jest możliwy35,36. Nauczyciele szkół średnich mogą również chcieć współpracować z lokalnymi szkołami wyższymi lub uniwersytetami, aby uzyskać dostęp do materiałów sterylizowanych w autoklawie. - Schłodź nośnik, aż będzie wystarczająco wygodny, aby można go było obsługiwać. Należy uważać, aby nie schładzać go zbyt długo, ponieważ agar krzepnie w temperaturach poniżej 50 °C.
- Wlać agar MS z kolby do sterylnych szalek Petriego, aż dno każdej szalki Petriego będzie wypełnione w przybliżeniu do połowy (około 25 ml pożywki na szalkę Petriego). Pozostawić do zestalenia się przed użyciem płytek agarowych. Przechowuj płytki agarowe w plastikowej torbie w temperaturze pokojowej, aż będą potrzebne.
UWAGA: Płytki agarowe mogą być również przechowywane w lodówce, zwłaszcza jeśli w pożywce potrzebne są antybiotyki.
2. Smugi Streptomyces na płytkach do rozmnażania
- Smugi Streptomyces szczepy na płytkach agarowych MS do pojedynczych kolonii przy użyciu standardowej metody, takiej jak metoda smug kwadrantowych, jak pokazano w Sanders, 201237.
UWAGA: Można użyć pętli do zaszczepiania lub sterylnych wykałaczek. Opcjonalnie: Inne podłoża są powszechnie używane dla gatunków Streptomyces, takie jak R2YE i minimal media14. - Inkubować płytki w temperaturze 30 °C.
- Zmieniaj płytki, zbierając pojedynczą kolonię co 4–6 dni. Wraz z wiekiem kolonie stają się podatne na losowe mutacje.
3. Tworzenie zapasów grzybni glicerolu do przechowywania bakterii
UWAGA: Zapasy grzybni mogą być tworzone dla wszystkich szczepów Streptomyces, w tym szczepów whi i bld oraz innych mutantów rozwojowych, które nie są w stanie zakończyć zarodnikowania.
- Macerować 15–20 kolonii w 200–500 μl 20% glicerolu za pomocą sterylnego drewnianego aplikatora kołkowego.
- Przenieś gnojowicę z macerowanych kolonii do probówki hodowlanej do zamrażarki o pojemności 1,5 ml za pomocą mikropipety lub sterylnej pipety do przenoszenia.
UWAGA: Podstawy korzystania z mikropipet są omówione w innym miejscu38. - Dodaj tyle 20% glicerolu, aby uzyskać ostateczną objętość 1 ml i delikatnie wymieszaj. Próbki należy przechowywać w temperaturze -80 °C.
UWAGA: Uwaga! Używaj kriogenicznych rękawic ochronnych i fartucha laboratoryjnego, aby chronić skórę przed kontaktem z ekstremalnym zimnem. Alternatywnie można zastosować zamrażarkę o temperaturze -20 °C, która może skrócić czas długotrwałego przechowywania. Unikaj nadmiernego zamrażania i rozmrażania, aby przedłużyć żywotność.
4. Tworzenie zapasów zarodników glicerolu dla szczepów zdolnych do zarodnikowania
UWAGA: Zapasy zarodników są preferowane dla długoterminowej żywotności, ale są możliwe tylko dla szczepów, które są zdolne do zakończenia zarodnikowania.
- Rozprowadź 100 μl zmacerowanego materiału (z kroku 3.1) na płytce agarowej, aby uzyskać zlewający się trawnik wzrostu37.
UWAGA: Poszycie rozsiewane jest pokazane w Sanders37 (Modyfikacja: Gramofon nie jest wymagany.). Płytkę można obracać jedną ręką, a drugą ręką przesuwać rozsiewacz delikatnym ruchem w przód iw tył po podłożu agarowym.- Odmierzyć pipetą 100 μl macerowanej grzybni na środek płytki agarowej MS.
- Wysterylizuj szklane lub metalowe narzędzie do rozprowadzania, częściowo zanurzając je w 70% etanolu i powoli przepuszczając rozsiewacz przez płomień palnika Bunsena, aby przyspieszyć parowanie etanolu.
UWAGA: Etanol jest wysoce łatwopalny. Nie umieszczaj płonącego rozsiewacza w etanolu ani nie pozwól, aby płonąca kropla etanolu wpadła do naczynia z etanolem. Alternatywnie użyj jednorazowego sterylnego wacika, aby rozprowadzić bakterie na talerzu, który nie wymaga etanolu ani płomienia. - Obrócić płytkę agarową MS jedną ręką, wykonując ruchy w przód iw tył, aby zaszczepić płytkę sterylnym rozsiewaczem.
- Inkubować przez 5–7 dni w temperaturze 30 °C, aż szczep będzie dobrze zarodnikowany.
UWAGA: Czas inkubacji będzie się różnić w zależności od gatunku i szczepu.
- Dodaj 2 ml sterylnej soli fizjologicznej (0,8% NaCl) do środka zlewającego się trawnika komórek Streptomyces, który został poddany zarodnikowaniu.
- Zbierz zarodniki, delikatnie pocierając powierzchnię grzybni sterylną pętlą zaszczepiającą (lub wacikiem), powoli przesuwając się w kierunku krawędzi trawnika.
- Odpipetować sól fizjologiczną zawierającą zarodniki do stożkowej probówki o pojemności 15 ml. Energicznie wiruj, aby rozbić łańcuchy zarodników na pojedyncze komórki.
- Wirować w temperaturze pokojowej przez 5 minut przy około 2 500 x g.
- Odpipetować supernatant i wyrzucić. Rozproszyć osad zarodników przez energiczne mieszanie wirowe w niewielkiej ilości pozostałej cieczy.
- Ponownie zawiesić zarodniki w 1 ml 20% glicerolu, wciągając roztwór w górę iw dół za pomocą pipety.
- Przenieś wywar z zarodników glicerolu do probówki zamrażarki o pojemności 1,5 ml. Przechowywać w temperaturze -80 °C.
UWAGA: Używaj kriogenicznych rękawic ochronnych i fartucha laboratoryjnego, aby chronić skórę przed kontaktem z ekstremalnym zimnem. Alternatywnie można zastosować zamrażarkę o temperaturze -20 °C, która może zmniejszyć żywotność przy długotrwałym przechowywaniu. Unikaj nadmiernego zamrażania i rozmrażania, aby przedłużyć żywotność.
5. Wykonaj mutagenezę
- Przeprowadź mutagenezę w oparciu o pożądane wyniki, o których mowa we Wprowadzeniu i niedawno zrecenzowane przez Baltz, 201639.
UWAGA: Niektóre eksperymenty fenotypowania nie wymagają mutagenezy, np. zamiar identyfikacji nowych gatunków ze środowiska. Metody mutagenezy losowej obejmują użycie transpozonu8,9,10,11,12,13, promieniowanie UV lub chemikalia14. Mutageneza kierowana na stronę15,16,17,18,19,20 techniki mogą być używane do tworzenia określonych mutacji punktowych, delecji lub innych typów mutacji.
6. Porównaj i zapisz wygląd wizualny
- Zwróć uwagę na morfologię kolonii dla każdego mutanta w porównaniu ze szczepem rodzicielskim typu dzikiego po przerzuceniu wszystkich szczepów, jak w kroku 2. Porównaj nowy izolat z dobrze zbadanym gatunkiem, takim jak S. coelicolor lub S. venezuelae, podczas charakteryzowania nowych gatunków Streptomyces. Zwróć uwagę na cechy charakterystyczne (Rysunek 1), takie jak podstawowy kształt, powierzchnia kolonii (rozmyta, łysa, pomarszczona, itp.), krycie, wysokość i pigmentacja (rozróżnij grzybnię wegetatywną, grzybnię powietrzną i/lub otaczające podłoże).
- Oznacz płytkę agarową MS i rozłóż szczepy typu dzikiego i zmutowanego we wzory klinowe (Rysunek 1). Uważaj, aby żaden szczep nie dotykał innego szczepu, aby uniknąć zanieczyszczenia krzyżowego. Zanotuj datę i godzinę, kiedy szczepy są rozmazywane na talerzu. Inkubować płytki w temperaturze 30 °C.
- Umieść wyrośnięte szalki Petriego na kolorowym lub białym papierze, aby ujednolicić tło. Napisz na papierze nazwę szczepu, datę, temperaturę inkubacji i czas od pierwszego smugowania płytki. Zrób cyfrowe zdjęcie (zdjęcia) tabliczki z tymi ostatnimi informacjami zapisanymi na tle papieru, aby zminimalizować zamieszanie.
UWAGA: Napis może zostać wycięty ze zdjęcia w późniejszym czasie, jeśli ma być użyty do przygotowania figury.
7. Wykonaj mikroskopię z kontrastem fazowym
- Wysterylizuj pęsetę, myjąc ją w 70% etanolu, a następnie przechodząc przez płomień palnika Bunsena w celu odparowania etanolu. Pozostawić do ostygnięcia.
- Sterylizuj szkiełka nakrywkowe, myjąc je w 70% etanolu, a następnie pozwalając im wyschnąć na sterylnej szalce Petriego.
- Przygotować szkiełko nakrywkowe z narośli bakterii, które mają być zbadane.
- Za pomocą sterylnej pęsety podnieś sterylne szkiełko nakrywkowe i umieść je na płytce agarowej ze stwardnienia rozsianego, gdzie bakterie rozwijają się gęsto. Delikatnie dociśnij tył szkiełka nakrywkowego pęsetą, aby zapewnić wystarczający transfer zarodników bakterii i grzybni powietrznej.
- Podnieś szkiełko nakrywkowe z płytki i umieść je tak, aby strona z materiałem komórkowym była skierowana w stronę powierzchni szkiełka mikroskopowego, z 15 μl kropli 50% glicerolu przygotowanej w wodzie do montażu. Zmniejsz ilość pęcherzyków powietrza, umieszczając szkiełko nakrywkowe pod kątem 45° do szkiełka i pozwól mu opaść na 50% glicerolu.
- (Opcjonalnie) Uszczelnij przezroczystym lakierem do paznokci w celu konserwacji szkiełka.
- Mikroskopię z kontrastem fazowym należy wykonać zgodnie z opisem w Frohlich40 w różnych odstępach czasu podczas cykli życia.
UWAGA: Wielokrotne obrazowanie pozwala na pełniejszą analizę i możliwość wykrycia opóźnień w rozwoju. Niezależne powtórzenie obserwacji w celu zapewnienia dokładności i odtwarzalności.- Umieść przygotowane szkiełko na stoliku mikroskopu i dodaj kroplę olejku immersyjnego na środek szkiełka nakrywkowego. Obróć obiektyw fazowy 100X na miejsce i ustaw wieżyczkę skraplacza na odpowiednie ustawienie fazy "pasującej". Ustaw ostrość obrazu za pomocą tylko pokrętła precyzyjnej regulacji, gdy soczewka obiektywu styka się z olejem.
- Zbadaj kilka pól widzenia, aby dostrzec zauważalne i spójne różnice między zmutowanymi szczepami a typem dzikim, takie jak zdolność do tworzenia zarodników, rozmiar i kształt zarodników oraz ogólna liczba zarodników (patrz Rysunek 2).
UWAGA: Alternatywą dla mikroskopii z kontrastem fazowym jest mikroskopia z kontrastem różnicowym interferencyjnym (DIC) 40 oraz proste techniki barwienia do stosowania w mikroskopach jasnego pola41, takie jak barwienie fioletem krystalicznym.
8. Wykonaj mikroskopię fluorescencyjną
- Wysterylizuj pęsetę, myjąc ją w 70% etanolu, a następnie przepuszczając przez płomień palnika Bunsena.
- Podnieś sterylne szkiełko nakrywkowe sterylną pęsetą i umieść na płytce z agarem ze stwardnienia rozsianego w miejscu, w którym widoczny jest rozwój bakterii. Delikatnie dotknij tylnej części szkiełka nakrywkowego pęsetą, aby zapewnić wystarczający transfer zarodników bakterii i włókien powietrznych.
- Podnieś szkiełko nakrywkowe z płytki i umieść je tak, aby strona z materiałem komórkowym była skierowana do góry, na kartonie, aby ułatwić manipulowanie szkiełkiem nakrywkowym.
- Zalej szkiełko nakrywkowe lodowatym metanolem (~300 μl dla szkiełka nakrywkowego 20 x 20mm2) i pozostaw do całkowitego wyschnięcia na powietrzu.
UWAGA: Metanol jest mutagenem. Unikać bezpośredniego kontaktu ze skórą. - Umyj szkiełko nakrywkowe trzykrotnie w roztworze soli fizjologicznej buforowanej fosforanami (PBS)42, delikatnie dozując i usuwając roztwór.
- Dodać 15 μl ze 100 μg/ml jodku propidyny i/lub 10 μg/ml aglutyniny z kiełków pszenicy sprzężonej z izotiocyjanianem fluoresceiny (WGA-FITC) wytworzonej w 50% glicerolu do znakowanego szkiełka mikroskopowego.
UWAGA: Jodek propidyny barwi DNA na czerwono, aby wykryć lokalizację chromosomalnego DNA, podczas gdy WGA-FITC barwi ścianę komórkową na zielono. - Odwróć szkiełko nakrywkowe stroną zadrukowaną do dołu na kroplę fluorescencyjnej plamy na szkiełku. (Opcjonalnie) uszczelnić przezroczystym lakierem do paznokci w celu zachowania szkiełka. Ponieważ barwniki są wrażliwe na światło, inkubuj przez 15 minut w zaciemnionym lub słabo oświetlonym pomieszczeniu.
- Obserwuj preparaty pod soczewką obiektywu 100X za pomocą mikroskopu z kontrastem fazowym lub mikroskopu DIC wyposażonego w kostki wzbudzenia epifluorescencji dla jodku propidyny (zestaw filtrów "Texas Red" lub maksima wzbudzenia/emisji 535/617 nm) i FITC (zestaw filtrów FITC lub maksima wzbudzenia/emisji 490/525 nm).
- Umieść slajd na stoliku i ustaw ostrość za pomocą pokręteł regulacji zgrubnej i precyzyjnej.
- Obserwuj fluorescencję, jak pokazano w innym miejscu43.
- Skorzystaj z bezpłatnego pakietu oprogramowania do analizy obrazu, które może pomóc w identyfikacji zarodników o niższej intensywności fluorescencji44.
Wyniki
Początkowe eksperymenty fenotypowania są niezbędne do charakteryzacji nowych gatunków i szczepów oraz mogą stanowić uzupełnienie badań filogenetycznych i eksperymentów hybrydyzacji DNA-DNA stosowanych przy opisywaniu nowych gatunków. Mutanty Streptomyces uzyskane metodami mutagenezy losowej, takimi jak mutageneza chemiczna, UV lub transpozonowa, identyfikuje się zazwyczaj bezpośrednio, poprzez wizualne badania na szalakach z podłożem agarowym. Kolonie Streptomyces analizuje się pod kątem zmian fenotypu w porównaniu do szczepu typu dzikiego, rodzicielskiego. Na przykład jaśniejsza barwa micelium powietrznego może wskazywać na obniżony poziom szarego pigmentu spowodowany defektem w sporulacji, a brak puszystego wygląd jest charakterystyczny dla blokady tworzenia micelium powietrznego (Rysunek 1). Wiele aktynobakterii produkuje zabarwione antybiotyki w micelium wegetatywnym lub w otaczającym agaru. S. coelicolor wytwarza dwa antybiotyki barwne oraz dwa niebarwne. Actinorhodyna to niebiesko zabarwiony antybiotyk, a undecylprodigiozyna – czerwono zabarwiony antybiotyk45. Szczepy, które przeszły wstępną wizualną analizę kolonii, są następnie rozmnażane przez posiewy liniowe w celu uzyskania pojedynczych kolonii.
Po wizualnej identyfikacji potencjalnie interesujących mutantów szczepy poddaje się badaniu mikroskopowemu. Mikroskopia kontrastowo-fazowa szczególnie nadaje się do analizowania mutantów Streptomyces pod kątem defektów rozwojowych, przy użyciu szczepu typu dzikiego jako kontroli (Rycina 2). Kolonie typu dzikiego S. coelicolor zazwyczaj wytwarzają micelium powietrzne po około dwóch dniach wzrostu w 30 °C na agarze MS, a po trzech dniach wzrostu – długie łańcuchy zarodników. Cykl życiowy może rozwijać się nieco wolniej lub szybciej na innych rodzajach pożywek. Istotne jest, aby analizować mutanta w tych samych warunkach wzrostu co typ dziki, gdy formułuje się wnioski dotyczące defektów i opóźnień rozwojowych. Mutanty łysiejące mogą wytwarzać zarodniki po dłuższym czasie wzrostu na pożywkach agarowych. Grupę mutantów nazywanych białymi mutantami charakteryzuje opóźnienie w tworzeniu się zarodników, zmniejszona liczba wytwarzanych zarodników, występowanie defektów kształtu i/lub wielkości zarodników lub po prostu obniżony poziom dojrzałego szarego barwnika zarodników46. Inne dotychczas zbadane mutacje mogą powodować opóźnienie lub przyspieszenie przebiegu cyklu życiowego, na przykład mutacje wpływające na akumulację cząsteczek sygnałowych (np., cyklicznego-di-GMP47).
Prostym uzupełnieniem opisanej powyżej techniki mikroskopii świetlnej jest mikroskopia fluorescencyjna z zastosowaniem jodku propidyny do barwienia nukleoidów DNA chromosomowego oraz znakowanego fluorescencyjnie aglutyniny z kiełków pszenicy do barwienia ściany komórkowej sept sporulacyjnych. Spory pozbawione chromosomu nie będą wykazywały czerwonego barwienia jodkiem propidyny, natomiast spory zawierające mniej DNA niż zwykle można będzie zidentyfikować po słabszym intensywności barwienia (Rycina 3). Aglutyninę z kiełków pszenicy można wykorzystać do barwienia ściany komórkowej, a różnice w wzorcach barwienia ściany komórkowej (tj. wady podziału komórkowego) mogą zostać zaobserwowane. Na Rycinie 4 pokazano dzikiego typu szczep S. venezuelae, gatunek, który ostatnio zaczyna być wykorzystywany jako kolejny modelowy promieniowiec ze względu na szybszy cykl życiowy i zdolność do sporulacji w środowisku ciekłym45, wybarwiony WGA-FITC w celu ujawnienia drabinkowatego układu sept podziałowych, typowego dla wczesnych stadiów sporulacji.
Początkowe strategie fenotypowania opisane tutaj powinny prowadzić do następujących rezultatów: 1) Zidentyfikowania mutantów interesujących do dalszych badań; 2) Uzyskania wiedzy na temat nowo zidentyfikowanego mutantu oraz potencjalnej roli genu, w którym wystąpiła mutacja; 3) Sformułowania kolejnej serii dalszych kroków eksperymentalnych, które mogą posłużyć do dokładniejszego wyjaśnienia roli badanego genu. W przypadku nowo zidentyfikowanego aktynomyceta pochodzącego ze środowiska, badacz uzyska wiedzę na temat potencjalnego nowego gatunku w porównaniu do już scharakteryzowanych gatunków Streptomyces.

Rycina 1: Zdjęcie reprezentatywnej płytki z podłożem agarowym pokazującej makroskopowe fenotypy kolonii S. coelicolor. Płyta agarowa ilustruje puszysty, szary wygląd micelium powietrznego u dzikiego typu S. coelicolor szczepu MT1110 (WT) w porównaniu do różnych losowych mutantów z insercją transpozonu wykazujących fenotypy rozwojowe. Mutanty albo nie posiadają micelium powietrznego [łysy (bld)] albo mają micelium powietrzne o zmniejszonej pigmentacji zarodników [białe (whi)]. Mutanty transpozonowe uzyskano za pomocą mini-Tn5 w mutagenezie insercyjnej6,7. Szczepy hodowano na podłożu MS w temperaturze 30 °C przez 5 dni. Średnica płytki Petriego wynosi 100 mm.
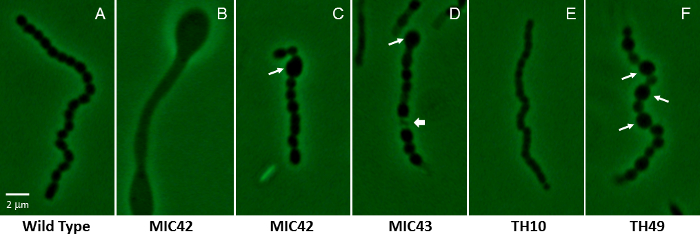
Rycina 2: Mikrografie w kontraście fazowym przedstawiające reprezentatywny filament powietrzny u białych mutantów S. coelicolor zawierających losowe insercje mutagenu transpozony. (A) Pokazano reprezentatywny filament powietrzny typu dzikiego, w którym zachodzą synchroniczne, regularnie rozmieszczone podziały komórkowe, prowadzące do powstania zarodników o jednakowym kształcie i rozmiarze (MT1110). (B-F) Pozostałe obrazy przedstawiają wyraźnie różne fenotypy mikroskopowe różnych białych mutantów wyizolowanych metodą losowej mutagenezy transpozonowej. Panel B przedstawia filament powietrzny, w którym nie doszło do sporulacji, a zamiast tego pojawiły się wybrzuszenia w obrębie nitki. Długie strzałki na panelach C, D i F wskazują nieprawidłowo duże zarodniki charakterystyczne dla mutantów MIC42, MIC43 i TH49. Krótka strzałka na panelu D wskazuje przykład lizowanego kompartmentu zarodnika. Panel E pokazuje częściowo zwężone, mniejsze kompartmenty typowe dla łańcuchów zarodników produkowanych przez mutant TH10. Szczepy hodowano na agarze MS przez 5 dni w 30 °C. Mutanty nie są spokrewnione z tymi pokazanymi na Rycinie 1. Zarodnik typu dzikiego ma około 1,1 µm wzdłuż osi dłuższej. Skala = 2 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego obrazu.
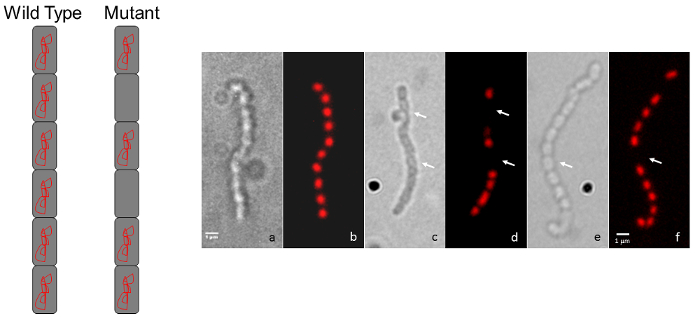
Rysunek 3: Przykładowe mikrografie pokazujące fenotypy segregacji chromosomu u mutantów S. coelicolor. (A) Schematyczne przedstawienie typowego wzoru barwienia u typu dzikiego, charakteryzującego się regularnie rozmieszczonymi odcinkami DNA w łańcuchu zarodników (każdy zarodnik zawiera DNA chromosomowe), w porównaniu do nieregularnego wzoru barwienia u mutantów wykazujących defekt segregacji chromosomu. (B) Każda para obrazów przedstawia ten sam łańcuch zarodników: po lewej stronie obraz w kontrastowym mikroskopie interferencyjnym (DIC), po prawej – fluorescencyjny obraz po barwieniu jodkiem propidyny. Fenotyp typu dzikiego (a, b) porównano z dwoma losowymi mutantami z insercją transpozonu (c, d oraz e, f). Strzałki wskazują zarodniki pozbawione DNA. Szczepy hodowano na agarze MS przez 5 dni w 30 °C. Przedstawione mutacje są niezwiązane z mutantami pokazanymi na Rysunku 1 i Rysunku 2. Szerokość podziałki = 1 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
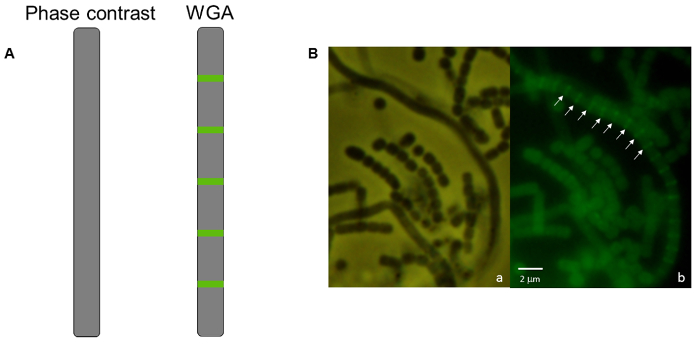
Rysunek 4: Mikrofotografia fluorescencyjna dzikiego typu S. venezuelae barwionego WGA-FITC. (A) Diagram nici powietrznych wykazuje gładką strukturę bez zagłębień i bez widocznych cech sporulacji w mikroskopii kontrastowej, w porównaniu do drabinkowatej struktury barwienia ściany komórkowej, wskazującej na wczesny etap rozpoczętej sporulacji tej samej nici w mikroskopii fluorescencyjnej z zastosowaniem WGA-FITC. (B) Mikrofotografie dzikiego typu S. venezuelae. (a) Obserwuje się gładkie nici powietrzne wśród łańcuchów zarodników. (b) W strukturze micelium pokazanej na panelu a jedna nić powietrzna na wczesnym etapie rozwoju wykazuje drabinkowatą organizację odkładania się ściany komórkowej. Strzałki wskazują regularnie rozmieszczone przegrody barwione przez WGA-FITC, które rozwijają się synchronicznie w obrębie pojedynczej nici powietrznej podczas rozwojowo-uwarunkowanej sporulacji. Odmianę hodowano na podłożu MYM (Maltoza, Wywar drożdżowy, Maltowy wywar) w formie agaru MYM przez 38 h w 30 °C. Szerokość skali = 2 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dyskusja
W tym miejscu przedstawiamy protokoły dla początkujących badaczy Streptomyces w celu rozpoczęcia badań poprzez uwzględnienie kroków potrzebnych do rozmnażania szczepów i przygotowania zapasów do długoterminowego przechowywania. Następnie opisujemy protokoły wizualnej i mikroskopowej charakterystyki szczepów Streptomyces . Niektóre typowe początkowe etapy fenotypowania mutantów rozwojowych to: 1) wizualne badanie kolonii zmutowanych w porównaniu z koloniami typu dzikiego na pożywce agarowej; 2) mikroskopia z kontrastem fazowym; oraz 3) mikroskopia fluorescencyjna sporogennych strzępek powietrznych. W oparciu o fenotyp wyświetlany w tych trzech krokach, można zastosować różne techniki w celu dalszego rozpoznania fenotypu konkretnego szczepu.
Wstępne eksperymenty fenotypowe są powszechnie stosowane do charakteryzowania nowych gatunków, identyfikacji interesujących mutantów, częściowego charakteryzowania mutantów i rozpoczęcia rozpoznawania typowej roli konkretnego genu na podstawie fenotypu zidentyfikowanego mutanta. Opisane tu metody były już stosowane w uniwersyteckich laboratoriach dydaktycznych do identyfikacji i charakterystyki szerokiej gamy mutantów Streptomyces, w tym tych z defektami podziału komórek 48,49,50,51,52,53,54, zarodnikowaniem 55,56, tworzeniem grzybni powietrznej 57,58, produkcja antybiotyków59, sygnalizacja drugiego przekaźnika47 i segregacja chromosomów60. Techniki te są niezbędnymi pierwszymi krokami do określenia fenotypu mutantów w ogóle i ujawniają dużą ilość ważnych informacji na temat ról genów będących przedmiotem zainteresowania. Metody te można łatwo rozszerzyć na inne gatunki Streptomyces i były już używane do opisywania szczepów S. griseus, S. venezuelae, S. scabies i wielu innych paciorkowców. Oczekuje się, że opisane tutaj protokoły wideo posłużą jako ważne źródło informacji dla nowych badaczy wkraczających w obszary badań nad Streptomyces, takie jak odkrywanie leków. Obejmuje to nowych instruktorów, którzy pracują nad zwalczaniem kryzysu oporności na antybiotyki i kształcą niezliczoną liczbę nowych badaczy na studiach licencjackich, którzy dołączają do działań crowdsourcingowych w ramach Inicjatywy Mały Świat.
Opisane tutaj techniki można łatwo dostosować do użytku w klasach uniwersyteckich i licealnych, a także w laboratoriach badawczych, korzystając z modyfikacji opisanych w filmie i tekście. Studenci pierwszego roku modułu mikroskopowego w małym college'u sztuk wyzwolonych byli w stanie rozwarstwić szczepy, zrobić cyfrowe zdjęcia szczepów wyhodowanych na podłożach agarowych oraz wykonać mikroskopię z kontrastem fazowym i fluorescencyjną, co zakończyło się złożeniem portfolio wielopanelowych figur pod koniec 3-tygodniowego modułu, reprezentującego 15 godzin pracy w laboratorium. Około 160 studentów pierwszego roku było odpowiedzialnych za wstępne fenotypowanie 320 nowych mutantów transpozonów. Studenci studiów licencjackich z trzech instytucji uczestniczyli we wstępnym fenotypowaniu dodatkowych mutantów i późniejszej charakterystyce wielu szczepów. Kompleksowe dane uzyskane w stosunkowo krótkim czasie, ilustrują wartość opisywanych tu protokołów. Setki dodatkowych mutantów zostały zmagazynowane jako zapasy grzybni glicerolu do przyszłej charakterystyki.
Po wstępnych eksperymentach opisanych tutaj, można zastosować różne metody w celu rozszerzenia jakości informacji dotyczących szczepów będących przedmiotem zainteresowania. Jeżeli mutacja jest nieznana, należy zastosować metodę genotypowania w celu określenia typu i/lub lokalizacji mutacji. Na przykład losowa mutageneza transpozonów chromosomu 6,7,8,9,10,11,12,13 powoduje powstanie kolonii, które powinny zostać poddane wstępnym badaniom fenotypowym, takim jak te opisane powyżej. Następnie należy określić lokalizację transpozonu za pomocą techniki, takiej jak odwrócona reakcja łańcuchowa polimerazy (iPCR)61. Określenie genotypu nowo odkrytych mutantów jest ważnym krokiem po wstępnej charakterystyce.
Niektóre powszechnie stosowane zaawansowane metody późniejszej analizy fenotypowania, o których można wspomnieć w klasie lub zbadać w ramach dalszych badań, obejmują znakowanie zielonym białkiem fluorescencyjnym (GFP) w celu określenia wzorców lokalizacji białka będącego przedmiotem zainteresowania, analizy ekspresji genów, takie jak ilościowy PCR w czasie rzeczywistym (qPCR) i globalne wzorce ekspresji genów typu dzikiego w porównaniu z mutantem za pomocą sekwencjonowania RNA (sekwencjonowanie RNA). Umiejętności fenotypowania są również wymagane do analizy komplementacji genetycznej. W eksperymencie komplementacji kopia genu typu dzikiego jest wprowadzana do zmutowanego szczepu w celu określenia, czy nowo dodany allel może zrekompensować utratę funkcji zmutowanego allelu. Konieczne jest porównanie fenotypu uzupełnionego szczepu zarówno z fenotypem oryginalnego mutanta, jak i rodzicielskiego szczepu typu dzikiego.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Autorzy chcieliby podziękować Uniwersytetowi Otterbein za stypendia dla studentów studiów licencjackich oraz nagrody Studenckiego Funduszu Badawczego dla GVK i SGK; oraz Otterbein Professor Gilbert E. Mills Memorial Endowed Sabbatical Program Award oraz The Department of Biology and Earth Science Faculty Research and Scholarship Endowed Award dla JAB. and Jane Horn Endowed Student Research Fund in the Sciences został przyznany GVK i SGK. Autorzy chcieliby również wyrazić wdzięczność za stypendia w ramach programu badań licencjackich ufundowane przez Uniwersytet Duquesne dla GVK i SGK. Byli studenci studiów licencjackich Juniata College, Ryan Johnson i Lindsey Draper, przyczynili się do powstania obrazów mikroskopowych odpowiednio na rysunkach 2 i 3.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 50% glicerol | Sigma-Aldrich | G5516 | |
| Olejek immersyjny (typ DF) | Cragille | 16482 | |
| Papier do soczewek | Fisherbrand | 11-995 | |
| Sterylna woda | GeneMate | G-3250-1L | |
| 100% etanol | Sigma-Aldrich | E7023 | |
| Jodek propidium | Invitrogen | P1304MP | |
| Wykałaczki (płaskie) | Target | 081-22-1957 | |
| Końcówki do pipet (10 ml) | GeneMate | P-1240-10 | |
| Końcówki do pipet (200 ml) | GeneMate | P-1240-200Y | |
| Końcówki do pipet (1,250 ml) | GeneMate | P-1240-1250 | |
| Aplikatory drewniane 6'' | Solon Care | 070809 | |
| waciki bawełniane | Fisherbrand | 23-400-124 | |
| Mąka sojowa | Czerwony młyn Boba | 1516C164 | |
| D-Mannitol | Sigma-Aldrich | M4125-1KG | |
| Agar | Sigma-Aldrich | A1296-1KG | |
| Glicerol 100% | VWR amresco nauki przyrodnicze | 0854-1L | |
| 0,8% NaCl (sól fizjologiczna) | Sigma-Aldrich | SLBB9000V | |
| 1,2 ml rurka zamrażająca | NEST | 606101 | |
| Bardzo niska (-80 ° C) zamrażarka | SO-LOW | U85-18 | |
| Rękawice ochronne kriogeniczne | Bel-Art | H13201 | |
| szalki Petriego | Sigma-Aldrich | P5856-500EA | |
| Szkiełka nakrywkowe #1.5 | Thomas Scientific | 64-0721 | |
| Slajdy | Carolina | 63-2010 | |
| Autoklaw | Tuttnauer | 2540E | |
| Mikroskop z kontrastem fazowym | Olympus | BX40 | |
| Kleszcze | Carolina Biologiczny | 624504 | |
| Bunsen Palnik | Carolina Biological | 706706 | |
| Metanol | Sigma-Aldrich | 34860-1L-R | |
| PBS (sól fizjologiczna w postaci buforu fosforanowego) | Sigma-Aldrich | P4417-50TAB | |
| WGA-FITC | Biotium | 29022-1 | |
| Bezbarwny lakier do paznokci | OPI | 22001009000 | |
| ImageJ | NIH | Darmowe oprogramowanie | |
| Zlewka 100 ml | Pyrex USA | 1000-T | |
| Zlewka 1 l | Carolina Biological | 721253 | |
| Kolba 1 l | Fisherbrand | S63274 | |
| Kolba 250 ml | Pyrex USA | 4980 | |
| 100 ml cylinder z podziałką | Cylinder | ||
| 500 ml | Carolina Biological | 721792 | |
| Stir Bar | Fisher Scientific | 22-271825 | |
| Wirówka | Eppendorf | 5810R | |
| Kamera do mikroskopu | Olympus | DP72 | |
| Rękawice nitrylowe do badań (Med) | Bio Excell | 71011002 | |
| Vortex Mixer | Carolina Biological | 701077 |
Bibliografia
- Barka, E. A., et al. Taxonomy, physiology, and natural products of Actinobacteria. Microbiol. Mol. Biol. Rev. 80 (1), 1-43 (2015).
- Bentley, S. D., et al. Complete genome sequence of the model actinomycete Streptomyces coelicolor A3(2). Nature. 417 (2), 141-147 (2002).
- Redenbach, M., et al. A set of ordered cosmids and a detailed genetic and physical map for the 8 Mb Streptomyces coelicolor A3(2) chromosome. Mol. Microbiol. 21 (1), 77-96 (1996).
- McCormick, J. R., Flardh, K. Signals and regulators that govern Streptomyces development. FEMS Microbiol. Rev. 36 (1), 206-231 (2012).
- Flardh, K., Buttner, M. J. Streptomyces morphogenetics: dissecting differentiation in a filamentous bacterium. Nat. Rev. Microbiol. 7 (1), 36-49 (2009).
- Bennett, J. A. Molecular Genetic analysis of division and development in Streptomyces coelicolor. , Ph.D. Dissertation (2007).
- Hull, T. D., et al. Cyclic Di-GMP phosphodiesterases RmdA and RmdB are involved in regulating colony morphology and development in Streptomyces coelicolor. J. Bacteriol. 194 (17), 4642-4651 (2012).
- Petzke, L., Luzhetskyy, A. In vivo Tn5-based transposon mutagenesis of streptomycetes. Appl. Microbiol. Biotechnol. 83 (5), 979-986 (2009).
- Xu, Z., et al. Large-Scale Transposition Mutagenesis of Streptomyces coelicolor Identifies Hundreds of Genes Influencing Antibiotic Biosynthesis. Appl. Environ. Microbiol. 83 (6), (2017).
- Fernandez-Martinez, L. T., et al. A transposon insertion single-gene knockout library and new ordered cosmid library for the model organism Streptomyces coelicolor A3(2). Antonie Van Leeuwenhoek. 99 (3), 515-522 (2011).
- Gehring, A. M., Nodwell, J. R., Beverley, S. M., Losick, R. Genomewide insertional mutagenesis in Streptomyces coelicolor reveals additional genes involved in morphological differentiation. Proc. Natl. Acad. Sci. U.S.A. 97 (17), 9642-9647 (2000).
- Bishop, A., Fielding, S., Dyson, P., Herron, P. Systematic insertional mutagenesis of a streptomycete genome: a link between osmoadaptation and antibiotic production. Genome Res. 14 (5), 893-900 (2004).
- Bilyk, B., Weber, S., Myronovskyi, M., Bilyk, O., Petzke, L., Luzhetskyy, A. In vivo random mutagenesis of streptomycetes using mariner-based transposon Himar1. Appl. Microbiol. Biotechnol. 97 (1), 351-359 (2013).
- Kieser, T., Bibb, M. J., Buttner, M. J., Chater, K. F., Hopwood, D. A. Practical Streptomyces Genetics. , The John Innes Foundation. (2000).
- Gust, B., Kieser, T., Chater, K. F. REDIRECT technology: PCR-targeting system in Streptomyces coelicolor. , John Innes Centre, Norwich Research Park, Colney, Norwich NR4 7UH, United Kingdom. (2002).
- Gust, B., Chandra, G., Jakimowicz, D., Yuqing, T., Bruton, C. J., Chater, K. F. Lambda red-mediated genetic manipulation of antibiotic-producing Streptomyces. Adv. Appl. Microbiol. 54, 107-128 (2004).
- Tong, Y., Charusanti, P., Zhang, L., Weber, T., Lee, S. Y. CRISPR-Cas9 based engineering of Actinomycetal genomes. ACS Synth. Biol. 4 (9), 1020-1029 (2015).
- Huang, H., Zheng, G., Jiang, W., Hu, H., Lu, Y. One-step high-efficiency CRISPR/Cas9-mediated genome editing in Streptomyces. Acta BiochimBiophys. Sin.(Shanghai). 47 (4), 231-243 (2015).
- Cobb, R. E., Wang, Y., Zhao, H. High-efficiency multiplex genome editing of Streptomyces species using an engineered CRISPR/Cas system. ACS Synth. Biol. 4 (6), 723-728 (2015).
- Carey, M. F., Peterson, C. L., Smale, S. T. PCR-mediated site-directed mutagenesis. Cold Spring Harb Protoc. 2013 (8), 738-742 (2013).
- Brown, E. D., Wright, G. D. Antibacterial drug discovery in the resistance era. Nature. 529 (7586), 336-343 (2016).
- Dodds, D. R. Antibiotic resistance: A current epilogue. Biochem. Pharmacol. 134, 139-146 (2017).
- Caruso, J. P., Israel, N., Rowland, K., Lovelace, M. J., Saunders, M. J. Citizen Science: The Small World Initiative improved lecture grades and California critical thinking skills test scores of nonscience major students at Florida Atlantic University. J. Microbiol. Biol. Educ. 17 (1), 156-162 (2016).
- Davis, E., et al. Antibiotic discovery throughout the Small World Initiative: A molecular strategy to identify biosynthetic gene clusters involved in antagonistic activity. Microbiology Open. 6 (3), (2017).
- van Keulen, G., Dyson, P. J. Production of specialized metabolites by Streptomyces coelicolor A3(2). Adv. Appl. Microbiol. 89, 217-266 (2014).
- Aigle, B., et al. Genome mining of Streptomyces ambofaciens. J. Ind. Microbiol. Biotechnol. 41 (2), 251-263 (2014).
- Antoraz, S., Santamaria, R. I., Diaz, M., Sanz, D., Rodriguez, H. Toward a new focus in antibiotic and drug discovery from the Streptomyces arsenal. Front. Microbiol. 6, 461(2015).
- Onaka, H. Novel antibiotic screening methods to awaken silent or cryptic secondary metabolic pathways in actinomycetes. J. Antibiot.(Tokyo). 70 (8), 865-870 (2017).
- Chen, J., Wu, Q., Hawas, U. W., Wang, H. Genetic regulation and manipulation for natural product discovery. Appl. Microbiol. Biotechnol. 100 (7), 2953-2965 (2016).
- Katz, L., Baltz, R. H. Natural product discovery: past, present, and future. J. Ind. Microbiol. Biotechnol. 43 (2-3), 155-176 (2016).
- Liu, G., Chater, K. F., Chandra, G., Niu, G., Tan, H. Molecular regulation of antibiotic biosynthesis in Streptomyces. Microbiol. Mol. Biol. Rev. 77 (1), 112-143 (2013).
- den Hengst, C. D., Tran, N. T., Bibb, M. J., Chandra, G., Leskiw, B. K., Buttner, M. J. Genes essential for morphological development and antibiotic production in Streptomyces coelicolor are targets of BldD during vegetative growth. Mol. Microbiol. 78 (2), 361-379 (2010).
- Tran, N. T., Den Hengst, C. D., Gomez-Escribano, J. P., Buttner, M. J. Identification and characterization of CdgB, a diguanylate cyclase involved in developmental processes in Streptomyces coelicolor. J. Bacteriol. 193 (12), 3100-3108 (2011).
- Anonymous. Lab Safety. Proper Use of Autoclaves. JoVE Science Education Database. , Cambridge, MA. (2017).
- Border, B. G., Rice-Spearman, L. Microwaves in the laboratory: effective decontamination. Clin. Lab. Sci. 12 (3), 156-160 (1999).
- Bhattacharjee, M. K., Delsol, J. K. Does microwave sterilization of growth media involve any non-thermal effect? J. Microbiol. Methods. 96, 70-72 (2014).
- Sanders, E. R. Aseptic laboratory techniques: plating methods. J. Vis. Exp. (63), e3064(2012).
- Anonymous, General Laboratory Techniques. An Introduction to the Micropipettor. JoVE Science Education Database. , Cambridge, MA. (2017).
- Baltz, R. H. Genetic manipulation of secondary metabolite biosynthesis for improved production in Streptomyces and other actinomycetes. J. Ind. Microbiol. Biotechnol. 43 (2-3), 343-370 (2016).
- Frohlich, V. C. Phase Contrast and Differential Interference Contrast (DIC) Microscopy. J. Vis. Exp. (18), e844(2008).
- Anonymous, General Laboratory Techniques. Introduction to Light Microscopy. JoVE Science Education Database. , Cambridge, MA. (2017).
- Sambrook, J., Fritsch, E. F., Maniatis, T. Molecular Cloning: A Laboratory. 3, 2nd ed, Cold Spring Harbor Laboratory Press. Cold Spring Harbor, New York. (1989).
- Anonymous, General Laboratory Techniques. Introduction to Fluorescence Microscopy. JoVE Science Education Database. , Cambridge, MA. (2017).
- Jensen, E. C. Quantitative analysis of histological staining and fluorescence using ImageJ. Anat. Rec.(Hoboken). 296 (3), 378-381 (2013).
- Chater, K. F. Recent advances in understanding Streptomyces. F1000Res. 5, (2016).
- Chater, K. F. Regulation of sporulation in Streptomyces coelicolor A3(2): a checkpoint multiplex? Curr. Opin. Microbiol. 4 (6), 667-673 (2016).
- Tschowri, N. Cyclic dinucleotide-controlled regulatory pathways in Streptomyces species. J. Bacteriol. 198 (1), 47-54 (2016).
- Bennett, J. A., et al. Medium-dependent phenotypes of Streptomyces coelicolor with mutations in ftsI or ftsW. J. Bacteriol. 191 (2), 661-664 (2009).
- Mistry, B. V., Del Sol, R., Wright, C., Findlay, K., Dyson, P. FtsW is a dispensable cell division protein required for Z-ring stabilization during sporulation septation in Streptomyces coelicolor. J. Bacteriol. 190 (16), 5555-5566 (2008).
- Bennett, J. A., Aimino, R. M., McCormick, J. R. Streptomyces coelicolor genes ftsL and divIC play a role in cell division but are dispensable for colony formation. J. Bacteriol. 189 (24), 8982-8992 (2007).
- Bennett, J. A., McCormick, J. R. Two new loci affecting cell division identified as suppressors of an ftsQ-null mutation in Streptomyces coelicolor A3(2). FEMS Microbiol. Lett. 202 (2), 251-256 (2001).
- Dharmatilake, A. J., Kendrick, K. E. Expression of the division-controlling gene ftsZ during growth and sporulation of the filamentous bacterium Streptomyces griseus. Gene. 147 (1), 21-28 (1994).
- McCormick, J. R., Losick, R. Cell division gene ftsQ is required for efficient sporulation but not growth and viability in Streptomyces coelicolor A3(2). J. Bacteriol. 178 (17), 5295-5301 (1996).
- McCormick, J. R., Su, E. P., Driks, A., Losick, R. Growth and viability of Streptomyces coelicolor mutant for the cell division gene ftsZ. Mol. Microbiol. 14 (2), 243-254 (1994).
- Flärdh, K., Findlay, K. C., Chater, K. F. Association of early sporulation genes with suggested developmental decision points in Streptomyces coelicolor A3(2). Microbiology. 145 (9), 2229-2243 (1999).
- van Wezel, G. P., van der Meulen, J., Kawamoto, S., Luiten, R. G., Koerten, H. K., Kraal, B. ssgA is essential for sporulation of Streptomyces coelicolor A3(2) and affects hyphal development by stimulating septum formation. J. Bacteriol. 182 (20), 5653-5662 (2000).
- Capstick, D. S., Willey, J. M., Buttner, M. J., Elliot, M. A. SapB and the chaplins: connections between morphogenetic proteins in Streptomyces coelicolor. Mol. Microbiol. 64 (3), 602-613 (2007).
- Ma, H., Kendall, K. Cloning and analysis of a gene cluster from Streptomyces coelicolor that causes accelerated aerial mycelium formation in Streptomyces lividans. J. Bacteriol. 176 (12), 3800-3811 (1994).
- Xu, Z., et al. Large-scale transposition mutagenesis of Streptomyces coelicolor identifies hundreds of genes influencing antibiotic biosynthesis. Appl. Environ. Microbiol. 83 (6), (2017).
- Dedrick, R. M., Wildschutte, H., McCormick, J. R. Genetic interactions of smc, ftsK, and parB genes in Streptomyces coelicolor and their developmental genome segregation phenotypes. J. Bacteriol. 191 (1), 320-332 (2009).
- Pavlopoulos, A. Identification of DNA sequences that flank a known region by inverse PCR. Methods Mol. Biol. 772, 267-275 (2011).
Przedruki i uprawnienia
