Ten protokół opisuje metody doustnego wystawiania i zarażania muszki owocowej Drosophila melanogaster patogenami bakteryjnymi, a także mierzenia liczby zakaźnych bakterii wydalanych po infekcji jelitowej. Dalej opisujemy wpływ mutantów immunologicznych na przeżywalność much po zakażeniu bakteryjnym jamy ustnej.
Artykuł metodologiczny
Zakażenie bakteryjne jamy ustnej i wydalanie u Drosophila melanogaster
W tym artykule
Podsumowanie
Streszczenie
Muszka owocowa Drosophila melanogaster jest jednym z najlepiej rozwiniętych modelowych systemów infekcji i odporności wrodzonej. Podczas gdy większość prac koncentrowała się na infekcjach ogólnoustrojowych, ostatnio nastąpił wzrost zainteresowania mechanizmami immunokompetencji jelit wobec patogenów, które wymagają metod doustnego zakażania much. W tym miejscu przedstawiamy protokół doustnego wystawiania poszczególnych muszek na działanie oportunistycznego patogenu bakteryjnego (Pseudomonas aeruginosa) oraz naturalnego patogenu bakteryjnego D. melanogaster (Pseudomonas entomophila). Celem tego protokołu jest zapewnienie solidnej metody wystawiania samców i samic much na działanie tych patogenów. Przedstawiamy reprezentatywne wyniki pokazujące fenotypy przeżycia, obciążenia drobnoustrojami i wydalanie bakterii, co jest istotne dla badania niejednorodności w przenoszeniu patogenów. Wreszcie potwierdzamy, że mutanty Dcy (brak ochronnej macierzy perytroficznej w nabłonku jelitowym) i mutanty Relish (brak szlaku funkcjonalnego niedoboru odporności (IMD)) wykazują zwiększoną podatność na bakteryjne infekcje jamy ustnej. Protokół ten opisuje zatem solidną metodę infekowania much drogą pokarmową, która może być rozszerzona o badanie różnych genetycznych i środowiskowych źródeł zmienności wyników infekcji jelitowych i przenoszenia bakterii.
Wprowadzenie
Muszka owocowa (znana również jako mucha octowa), D. melanogaster, była szeroko stosowana jako organizm modelowy do infekcji i odporności na różne patogeny1,2. Prace te dostarczyły fundamentalnych informacji na temat fizjologicznych konsekwencji infekcji, a także były pionierskie w odkrywaniu szlaków molekularnych leżących u podstaw odpowiedzi immunologicznej gospodarza na infekcje parazytoidowe, bakteryjne, grzybicze i wirusowe. Wiedza ta jest przydatna nie tylko do zrozumienia wrodzonej odpowiedzi immunologicznej owadów i innych bezkręgowców, ale ponieważ wiele mechanizmów immunologicznych jest ewolucyjnie zachowanych między owadami i ssakami, Drosophila pobudziła również odkrycie głównych mechanizmów odpornościowych u ssaków, w tym ludzi3.
Większość prac nad infekcją i odpornością Drosophila skupia się na infekcjach ogólnoustrojowych, stosując metody inokulacji, które dostarczają patogeny bezpośrednio do organizmu owada poprzez nakłuwanie lub wstrzyknięcie4,5,6. Zaleta tych metod, polegająca na umożliwieniu dostarczania kontrolowanej dawki zakaźnej, jest oczywista i poparta obszernym dorobkiem naukowym dotyczącym zakażeń ogólnoustrojowych. Jednak wiele naturalnie występujących patogenów bakteryjnych D. melanogaster jest nabywanych poprzez żywienie się rozkładającą się materią organiczną, gdzie immunokompetencja jelitowa odgrywa znaczącą rolę w obronie gospodarza7,8,9,10,11,12,13,14,15. Eksperymenty, które wykorzystują infekcje ogólnoustrojowe, omijają te mechanizmy obronne, a zatem dają zupełnie inny obraz tego, w jaki sposób owady bronią się przed naturalnymi patogenami. Jest to szczególnie istotne, jeśli celem pracy jest przetestowanie przewidywań dotyczących ekologii i ewolucji infekcji, gdzie ważne jest wykorzystanie naturalnych patogenów i dróg infekcji16,17. Ostatnie prace wykazały, jak droga obrana przez patogeny znacząco wpływa na wynik choroby18,19, wywołuje różne szlaki immunologiczne20,21, może określić efekt ochronny dziedzicznych endosymbiontów16, a nawet może odgrywać ważną rolę w ewolucji obrony gospodarza17.
Innym powodem, dla którego warto stosować doustne drogi infekcji, jest to, że pozwala to na badanie zmienności w przenoszeniu patogenów poprzez pomiar wydalania bakterii podczas wydalania kału po infekcji jamy ustnej22,23,24. Zrozumienie źródeł niejednorodności gospodarza w przenoszeniu chorób jest trudne w naturalnych populacjach25,26, ale pomiar składników transmisji, takich jak wydalanie patogenów, w kontrolowanych warunkach laboratoryjnych oferuje użyteczne alternatywne podejście27. Karmiąc muchy bakteriami i mierząc wydalanie bakterii w różnych kontekstach genetycznych i środowiskowych w kontrolowanych warunkach eksperymentalnych, możliwe jest zidentyfikowanie źródeł zmienności w przenoszeniu między gospodarzami.
Tutaj opisujemy protokół doustnego infekowania D. melanogaster patogenami bakteryjnymi, a także do ilościowego określania wzrostu i wydalania bakterii, który następuje (Rysunek 1). Opisujemy ten protokół na dwóch bakteriach Pseudomonas: zjadliwym szczepie oportunistycznego patogenu P. aeruginosa (PA14) i mniej zjadliwym szczepie naturalnego patogenu much P. entomophila. Pseudomonady są powszechnymi bakteriami Gram-ujemnymi o szerokim zakresie żywicieli, infekującymi owady, nicienie, rośliny i kręgowce, i występują w większości środowisk4,6. Zakażenie jelitowe Drosophila przez P. aeruginosa i P. entomophila powoduje patologię nabłonka jelitowego12,13,14,15,28. Chociaż skupiamy się na tych dwóch patogenach bakteryjnych, opisane tutaj metody można w zasadzie zastosować do dowolnego patogenu bakteryjnego z niewielkimi modyfikacjami. Po ekspozycji doustnej mierzymy przeżycie po infekcji i mierzymy obciążenie drobnoustrojami u poszczególnych much oraz żywotnych drobnoustrojów wydalanych do środowiska, wyrażone w jednostkach tworzących kolonie (CFU). Wreszcie, ponieważ immunokompetencja jelitowa wynika z połączenia bariery nabłonkowej i odpowiedzi humoralnej, mierzymy również przeżywalność linii muchowych, w których te mechanizmy obronne są zakłócone. W szczególności wcześniej wykazano, że mutanty drosokrystaliny (Dcy) są bardziej podatne na infekcje bakteryjne jamy ustnej ze względu na zubożoną macierz perytroficzną w jelitach29. Mierzymy również przeżywalność w mutancie Relish (Rel), który ma utrudnione wytwarzanie peptydów przeciwdrobnoustrojowych przeciwko bakteriom Gram-ujemnym za pośrednictwem szlaku IMD30.
Protokół
1. Utrzymuj muchy
- Trzymaj muchy w plastikowych fiolkach o pojemności 23 ml zawierających 7 ml świeżo przygotowanej pożywki Lewisa (zmodyfikowanej z reference31; 1 l potrójnie destylowanegoH2O, 6,1 g agaru, 93,6 g brązowego cukru, 68 g kukurydzy, 18,7 g drożdży instant, 15 ml środka przeciwgrzybiczego Tegosept) w inkubatorach w temperaturze 25 ± 1 °C, w świetle trwającym 12 godzin: 12 godzin: Ciemny cykl z ~60% wilgotnością. Wypełnić fiolki niechłonną watą bawełnianą.
- Po każdych 14 dniach przenieś 20-30 dorosłych osobników do nowej fiolki z karmą, z natychmiastowymi, suchymi drożdżami dodanymi do powierzchni, na 2-3 dni, aby umożliwić składanie jaj. Po tym czasie upewnij się, że jaja są widoczne na powierzchni żywności. Usuń dorosłe muchy.
UWAGA: To sprawia, że muchy w fiolkach są pojedynczym pokoleniem, w populacjach dopasowanych do wieku. - Pozostaw jaja do rozwoju.
UWAGA: W temperaturze 25 °C dorosłe muchy zaczynają zamykać się z poczwarek w 11 dniu i kontynuują w dniach 12–14.
2. Przygotuj eksperymentalne muchy
- Zebrać jaja pokolenia rodzicielskiego w klatce do pobierania zarodków na 75 ml płytki z agarem jabłkowym o pojemności 75 ml (1 l potrójnie destylowanegoH2O, 30 g agaru, 33 g sacharozy, 330 ml soku jabłkowego, 7 ml środka przeciwgrzybiczego Tegosept) z pastą drożdżową do pasty drożdżowej (zmieszać suche drożdże z wodą do konsystencji przypominającej masło orzechowe). Dodaj do klatki nasączoną wodą watę, aby zapewnić wilgoć.
UWAGA: Aby uniknąć zakłóceń spowodowanych różnicami w zagęszczeniu lęgów larw, ważne jest, aby muchy doświadczalne w różnych fiolkach były hodowane w podobnym zagęszczeniu. Powyższy krok jest wykonywany, aby uniknąć efektów mylących. - Inkubować przez 24 godziny w temperaturze 25 °C w cyklu 12 h:12 h światło:ciemność, aż do złożenia jaj. Jeśli po 24 godzinach jaj jest za mało, należy zapewnić dłuższy okres przyzwyczajenia. Wymień talerze z jabłkami i pozwól na składanie jaj przez kolejne 24 godziny.
- Weź z klatki populacyjnej talerze z jabłkami i jabłkami z jajami. Usuń pozostałą pastę drożdżową i wszelkie martwe muchy z powierzchni agaru.
- Zanurz agar w 20 ml 1x soli fizjologicznej buforowanej fosforanem (PBS) i delikatnie usuń jaja z agaru jabłkowego za pomocą cienkiego pędzla. Jaja zawieszone w PBS przenieść do probówki wirówkowej o pojemności 50 ml i pozostawić na 5 minut, aby jaja opadły na dno.
UWAGA: Większość jaj znajduje się na zewnętrznej krawędzi agaru. - Wyjąć, przecinając dolne 4 mm końcówki pipety z filtrem p1000 i użyć końcówki pipety, aby pobrać 1 ml roztworu pobranego z dna probówki wirówkowej o pojemności 50 ml. Przenieś to do probówki mikrowirówkowej o pojemności 1,5 ml i pozwól mu się osadzić.
UWAGA: Podczas pipetowania jaj zatrzaskowe zwalnianie tłoka jest bardziej efektywne niż delikatne uwalnianie. - Wyjąć, przecinając dolne 4 mm końcówki pipety z filtrem p20. Ustaw pipetę na żądaną objętość i odciągnij od dna probówki do mikrowirówki.
UWAGA: Przy wprawie objętość 5 μL zawiera około 100 jaj. - Dozuj zebrane jaja na pokarm i pozostaw je do rozwoju przez wymagany czas.
3. Kultura bakteryjna
- Aby wyhodować kultury P. entomophila i P. aeruginosa, należy zaszczepić 10 ml bulionu Luria-Bertani (LB) 100 μl zamrożonego bulionu bakteryjnego w temperaturze odpowiednio 30 °C (P. entomophila) i 37 °C (P. aeruginosa). Wstrząsnąć z prędkością 150 obr./min przez noc. Upewnij się, że kultura bakteryjna osiągnie fazę nasycenia.
- Aby upewnić się, że bakterie używane do zaszczepiania muszek są w fazie wykładniczej i szybko się replikują, następnego ranka zaszczepij nocną kulturę do nowej subkultury o pożądanej objętości. Upewnij się, że preinokulum stanowi 10% całkowitej objętości kultury subkultury.
UWAGA: Infekcja jamy ustnej wymaga wysokiego . W związku z tym konieczne jest wyhodowanie znacznej ilości kultur bakteryjnych, tak aby można było wyprodukować wystarczającą ilość kultur inokulacyjnych dla pożądanej dawki i wielkości doświadczalnej. Oblicz, ile subkultury jest potrzebne do wytworzenia wymaganych dawek zakaźnych, korzystając z równania MsVs = MiVi, gdzie M oznacza gęstość optyczną kultury mierzoną przy wartości 600 nm (OD600), a V oznacza jej objętość. Litery w indeksie dolnym odnoszą się do tego, czy kultura jest używana jako subkultura (s), czy jako dawka zakaźna (i). - Hoduj tę subkulturę w stożkowej kolbie o pojemności 2 litrów w objętości tak, aby powierzchnia subkultury opadała (co najwyżej) tuż nad początkiem nachylenia kolby. Nie wypełniaj powyżej tego znaku, ponieważ zahamuje to rozwój bakterii.
- Upewnij się, że bakterie w tej subkulturze są w fazie wzrostu wykładniczego, mierząc OD co 30 minut.
UWAGA: Dzieje się to po 3–5 godzinach, gdy subkultura osiąga OD600 między 0,6 a 0,8. - Przelać równe objętości tej subkultury przez probówki wirówkowe o pojemności 50 ml i wirować subkulturę w temperaturze 2 500 x g przez 15 minut w temperaturze 4 °C, aby bakterie uległy osadzeniu. Po granulowaniu wyjąć, a następnie ponownie odwirować supernatant w powyższych warunkach, aby potwierdzić usunięcie zdecydowanej większości bakterii.
UWAGA: Potwierdza to śrut o znikomych rozmiarach (poniżej 1 mm wysokości). - Połącz osady bakteryjne z oddzielnych probówek, zawieszając je ponownie w 5 ml supernatantu subkultury i ponownie łącząc te roztwory w jednej probówce o pojemności 50 ml. Wirować tę skoncentrowaną kulturę w temperaturze 2 500 x g przez 15 minut w temperaturze 4 °C, aby osadzać bakterie.
- Usunąć supernatant i ponownie zawiesić końcowe osady bakteryjne w 5% roztworze sacharozy. Sprawdź OD i dostosuj do żądanej dawki zakaźnej (OD600 = 100 dla P. entomophila8 i OD600 = 25 dla P. aeruginosa16,28), ponownie zawieszając granulki w 5% roztworze sacharozy do wymaganej objętości.
UWAGA: Ilość 5% roztworu wodnego sacharozy, którą należy dodać, można obliczyć za pomocą równania w kroku 3.2.1 (MsVs = MiVi).
4. Muchy zarażające ustnie
- Aby zapewnić infekcję jamy ustnej, głodź muchy przez 2-4 godziny przed ekspozycją na bakterie, przenosząc muchy do standardowych fiolek z agarem (1 l potrójnie destylowanegoH2O, 20 g agaru, 84 g brązowego cukru, 7 ml środka przeciwgrzybiczego Tegosept).
- Przygotuj fiolki z infekcją, gdy muchy są głodzone. Przygotować fiolkę z infekcją Pseudomonas, pipetując 500 μl standardowego agaru z cukrem do pokrywki probówki z próbką o pojemności 7 ml i pozostawić do wyschnięcia. Umieścić krążek z bibułą filtracyjną w pokrywie i odpipetować 100 μl kultury bakteryjnej bezpośrednio na krążek filtra. W przypadku zakażeń kontrolnych zastąp kulturę bakteryjną taką samą objętością 5% roztworu sacharozy na bibule filtracyjnej.
- Dodać pojedyncze muchy do probówki z próbką i pozostawić na 18–24 godziny.
- Aby potwierdzić infekcję jamy ustnej, należy najpierw wysterylizować muszki powierzchniowo natychmiast po ekspozycji na bakterie, umieszczając je w 100 μl 70% etanolu na 20–30 s. Usuń etanol i dodaj 100 μl potrójnie destylowanej wody przez 20–30 s przed usunięciem wody. Dodaj 100 μL 1x PBS i homogenizuj muchę.
- Przenieść homogenat do górnego rzędu płytki 96-dołkowej i dodać 90 μl 1x PBS do każdego dołka poniżej.
- Seryjnie rozcieńczyć tę próbkę, aby rozróżnić zakres wartości CFU. Weź 10 μl homogenatu w górnej studzience i dodaj go do studzienki poniżej. Powtórz ten krok z drugim dołkiem, przenosząc 10 μl do trzeciego dołka i tak dalej, dla tylu seryjnych rozcieńczeń, ile jest wymagane.
UWAGA: Ważne jest, aby do każdego zestawu rozcieńczeń używać nowych końcówek do pipet. - Umieść seryjne rozcieńczenia na płytce agarowej LB z pożywką w kropelkach o pojemności 5 μl, aby upewnić się, że wszystkie kropelki pozostają dyskretne.
- Inkubować płytki agarowe LB przez noc w temperaturze 30 °C i 37 °C odpowiednio dla P. entomophila i P. aeruginosa i policzyć widoczne CFUs.
UWAGA: Podczas gdy mikroorganizmy jelitowe Drosophila wymagają odrębnych warunków wzrostu beztlenowego, można użyć pożywki selektywnej, na przykład pożywki izolacyjnej Pseudomonas (PIM), aby upewnić się, że liczone są tylko CFU Pseudomonas. - Obliczyć liczbę CFU na muchę, licząc liczbę kolonii obecnych w seryjnym rozcieńczeniu, gdzie wyraźnie widoczne jest 10–60 CFU. Następnie pomnóż przez obecny współczynnik rozcieńczenia, aby obliczyć liczbę bakterii na muchę.
- Przeprowadzanie analiz statystycznych. W razie potrzeby przekształć jtkwe na muchę w rozkład normalny. Zrób to przez transformację logu. Po przekształceniu użyj uogólnionych modeli liniowych (GLM)30,31,32, aby sprawdzić, jak grupy leczone różnią się pod względem CFU na muchę (korzystając z powszechnie dostępnych pakietów oprogramowania statystycznego, takich jak R33).
UWAGA: Pozostały homogenat muchy można wykorzystać do pomiaru ekspresji genów poprzez ilościową analizę PCR z odwrotną transkrypcją (RT-qPCR). Utrwal homogenat w 50 μl odczynnika do izolacji RNA, wyekstrahuj RNA i określ ilościowo miana specyficznych genów immunologicznych za pomocą RT-qPCR (patrz np. Gupta i Vale16 dla szczegółowego protokołu). Ekspresja specyficznych transkryptów genów immunologicznych powinna być znormalizowana do poziomów transkryptu genu porządkowego (tj. rp49) i wyrażona jako zmiana krotności w stosunku do muszek kontrolnych przy użyciu metody 2−ΔΔCt31,32,33,34.
5. Rejestrowanie przeżycia po infekcji
- Muchy należy zarazić doustnie, jak opisano w kroku 4.2.
- Przenieść zakażone lub kontrolne muchy z odpowiednich fiolek infekcyjnych do standardowych fiolek Lewisa i przechowywać w inkubatorze w temperaturze 25 °C w cyklu 12 godzin: 12 godzin światła i ciemności (lub w pożądanych warunkach). Trzymaj muchy, dopóki nie umrą.
- Policz liczbę żywych lub martwych much w każdej fiolce każdego dnia lub tak często, jak jest to wymagane.
- Przenoś muchy do nowych fiolek co 5 dni, aby uniknąć utknięcia much w jedzeniu.
- Przedstaw te dane w postaci krzywych przeżycia Kaplana-Meiera (KM) lub wykresów przeżycia proporcjonalnego ± średniej SE. Aby przeanalizować wpływ kilku czynników i/lub ich wzajemne interakcje, należy użyć pakietu statystycznego (na przykład pakietu "przeżycie" w R33) w celu przeprowadzenia analizy przeżycia, takiej jak model proporcjonalnego hazardu Coxa35.
6. Pomiar obciążenia bakteryjnego
- W żądanym momencie przenieś pojedynczą zakażoną muchę do sterylnej probówki mikrowirówkowej o pojemności 1,5 ml.
- Sterylizuj powierzchniowo muchy zgodnie z opisem w kroku 4.4.
- Homogenizować muchę i określić ilościowo obciążenie bakteryjne za pomocą protokołu opisanego w krokach 4.5–4.10.
7. Zmierz wydalanie bakterii
- Zmierz zrzucanie wraz z obciążeniem wewnętrznym.
- Po zakażeniu przenieść pojedyncze muchy do 1,5 ml probówek wirówkowych zawierających ~50 μl pożywki Lewisa na 24 godziny.
- Usuń muchy do pomiaru obciążenia wewnętrznego (patrz krok 6) i umyj probówki 100 μl 1x PBS, mocno wirując przez 3 sekundy.
- Zmierz jtk w tym płukaniu, posiewając na agarze odżywczym LB przy użyciu tego samego protokołu, jak opisano w krokach 4.6–4.8.
- Po zakażeniu przenieść pojedyncze muchy do 1,5 ml probówek wirówkowych zawierających ~50 μl pożywki Lewisa na 24 godziny.
- Przenieś muchy do nowych probówek do mikrowirówek zawierających ~50 μL pożywki Lewisa przez kolejne 24 godziny. Przemyj zanieczyszczone probówki 100 μL 1x PBS, mocno wirując przez 3 s.
- Zmierz jtk w tym praniu, posiewając na agarze odżywczym LB przy użyciu tego samego protokołu, który opisano w krokach 4.6–4.8.
- Powtórz kroki 7.2 i 7.3 i rejestruj śmiertelność much przy każdym transferze.
Wyniki
W niniejszym przedstawiamy przykładowe wyniki eksperymentów, w których D. melanogaster zostały zainfekowane doustnie P. aeruginosa lub P. entomophila. Rysunek 2 obrazuje pomyślną infekcję doustną much po 12 h lub 24 h ekspozycji na kultury bakterii o OD600 = 25 i 100 dla P. aeruginosa (Rysunek 2A) oraz P. entomophila (Rysunek 2B, C), odpowiednio. Rysunek 2B ilustruje znaczenie zastosowania bardziej skoncentrowanej kultury P. entomophila, co wykazano poprzez wzrost obciążenia bakteryjnego w przypadku ekspozycji much na kultury bakterii o większej gęstości optycznej. Samce i samice much Oregon R (OreR) eliminują infekcję P. aeruginosa w tym samym tempie (Rysunek 3) i wydalają taką samą liczbę CFU P. aeruginosa (Rysunek 4A). Jednak w przypadku infekcji P. entomophila samce i samice OreR różnią się liczbą wydalanych bakterii w sposób, który zmienia się w czasie (Rysunek 4B). Samce i samice giną w wyniku zakażenia P. aeruginosa (Rysunek 5A) oraz P. entomophila (Rysunek 5B) w różnym tempie. Obserwujemy również, że mutanty Dcy (pozbawione ochronnej macierzy peritroficznej w nabłonku jelita) oraz mutanty Relish (pozbawione funkcjonalnej ścieżki immunologicznej IMD) wykazują obniżoną przeżywalność po doustnej infekcji P. entomophila i P. aeruginosa (Rysunek 5C).

Rycina 1: Schematyczny przegląd protokołów pomiaru przeżywalności, wydalania oraz wewnętrznej ładunku bakteryjnego po zakażeniu doustnym u Drosophila melanogaster. Ilustracja trzech potencjalnych eksperymentów po zakażeniu doustnym D. melanogaster. Pomiar „przeżywalności” poprzez przeniesienie pojedynczych much do fiolek i rejestrację czasu ich życia po zakażeniu. Pomiar „wydalania” poprzez przeniesienie pojedynczych much do probówek mikrocentryfużowych o pojemności 1,5 mL z 50 µL pożywki Lewisa w zakrętce. Po 24 h w probówce muchę usunięto, a probówkę wymieszano w wirówce vortex z 100 µL 1x PBS. Roztwór ten pobrano i wysiano na agar nutrient LB w celu obliczenia poziomu wydalania bakterii. Pomiar wydalania u tej samej muchy w sposób podłużny, poprzez przenoszenie much do świeżych probówek z pożywką Lewisa w zakrętce co 24 h, a następnie przemywanie i wysiewanie zawartości zanieczyszczonej probówki. „Ładunek wewnętrzny” muchy można zmierzyć, pobierając zakażoną muchę, sterylizując ją powierzchniowo i homogenizując, a następnie wysiewając homogenizat na agar nutrient LB. Można to wykonać po pomiarze wydalania, aby obliczyć korelację między „ładunkiem wewnętrznym” a wydalaniem. Ilustracja muchy użyta na tej rycinie została pierwotnie narysowana przez B. Nuhanena36. Autorzy zmodyfikowali ją, aby dołączyć przykładową krzywą Kaplana-Meiera zaczerpniętą z Wikimedia Commons37. Wszystkie pozostałe ilustracje są oryginalne. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
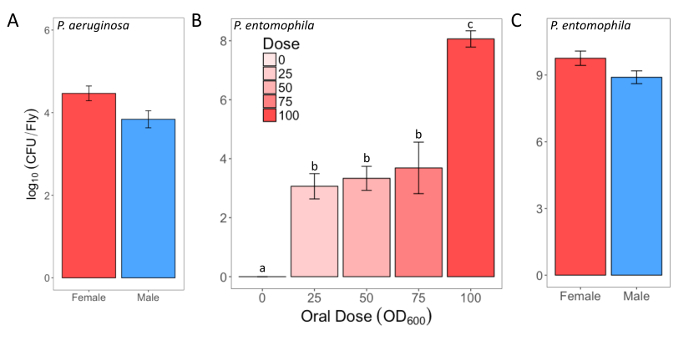
Rycina 2: Dawka zakaźna bakterii po infekcji doustnej. (A) Dawka zakaźna samców i samic much Oregon-R po 12-godzinnej ekspozycji na kulturę P. aeruginosa (OD600 = 25). Średnią i SE obliczono dla 3 samców i 3 samic. (B) Dawka zakaźna krzyżowanych samic typu dzikiego po 24-godzinnej ekspozycji na jedną z czterech kultur P. entomophila (OD600 = 100, 75, 50 i 25) lub kontrolny 5% roztwór sacharozy. Różnica statystyczna (F3,76 = 18.567, p <0.001) w dawce zakaźnej pomiędzy grupami ekspozycji jest oznaczona różnymi literami nad słupkami. Średnie obliczono dla 5 much w przypadku dawki OD600 = 0 oraz dla 18-20 much dla wszystkich pozostałych dawek. (C) Dawka zakaźna samców i samic much Oregon-R po 24-godzinnej ekspozycji na kulturę P. entomophila (OD600 = 100). Średnią i SE obliczono dla 20 samców i 20 samic. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
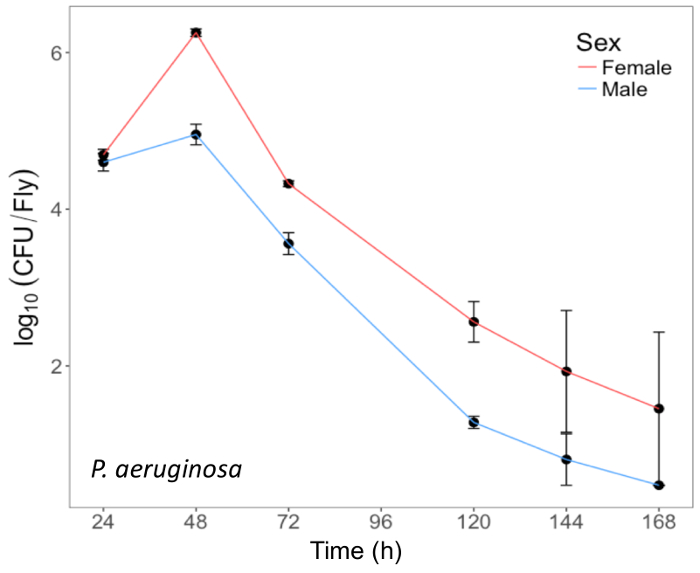
Rycina 3: Wewnętrzny ładunek P. aeruginosa u much po infekcji doustnej. Średnia ± SE ładunku bakteryjnego u samców i samic much Oregon-R po infekcji doustnej P. aeruginosa (OD600 = 25) do 168 h po infekcji. Średnia i SE dla każdego punktu czasowego zostały obliczone z 3 osobników. Wewnętrzny ładunek bakteryjny muchy ulega istotnej zmianie w czasie (p <0.001). Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
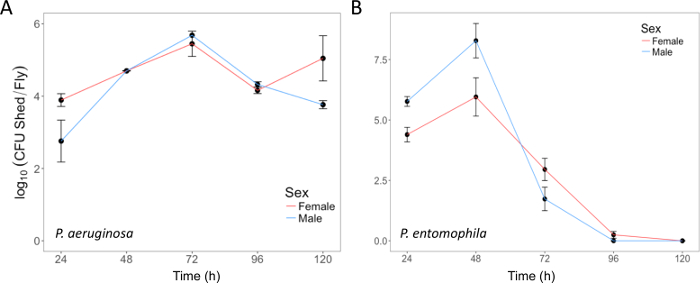
Rysunek 4: Wydalanie bakterii po infekcji drogą oralną. (A) Wydalanie P. aeruginosa przez te same muchy, które zastosowano na Rysunku 3, do 120 h po infekcji. Średnią i błąd standardowy (SE) obliczono dla 3 samców i 3 samic. (B) Wydalanie P. entomophila przez samce i samice much Oregon-R po infekcji drogą oralną P. entomophila (OD600 = 100) do 120 h po infekcji. Średnią i SE obliczono dla 34 samców i 38 samic. W przypadku obu gatunków, P. aeruginosa oraz P. entomophila, liczba wydalanych CFU przez jedną muchę zmienia się istotnie w czasie (p <0,001). Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
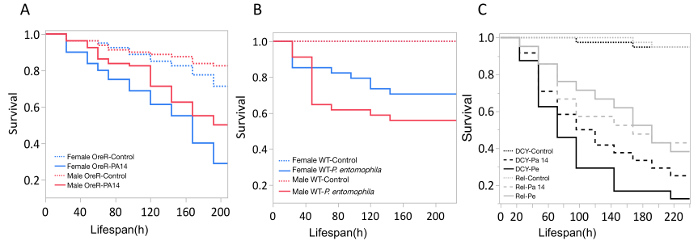
Rycina 5: Przeżywalność muszek po bakteryjnej infekcji doustnej. Krzywe przeżywalności Kaplana-Meiera (KM) dla (A) samców i samic muszek Oregon-R po infekcji doustnej P. aeruginosa (OD600 = 25) lub kontrolnym 5% roztworem sacharozy. Krzywą przeżywalności KM obliczono na podstawie 4 fiolek po 20 muszek na grupę zabiegową. (B) Samce i samice muszek OreR po infekcji doustnej P. entomophila (OD600 = 100). Krzywą przeżywalności KM obliczono na podstawie 4 pojedynczych muszek kontrolnych i 34 muszek zainfekowanych dla obu płci. (C) Mutanty immunologiczne: Dcy (mutant drosokrystaliny-macierzy peritroficznej) oraz Rel (mutant Relish-IMD), wystawione na działanie P. entomophila (Pe), P. aeruginosa (Pa14) lub kontrolnego 5% roztworu sacharozy. Wszystkie grupy zainfekowane giną znacząco szybciej niż muszki kontrolne (p <0,001). Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
Dyskusja
Przedstawiamy protokół niezawodnego doustnego zakażenia D. melanogaster patogenami bakteryjnymi. Skupiamy się na P. aeruginosa i P. entomophila, ale protokół ten można łatwo dostosować, aby umożliwić infekcję innymi gatunkami bakterii, np. Serratia marcescens7. Kluczowe aspekty tego protokołu będą się różnić w zależności od gatunku bakterii. W związku z tym należy rozważyć najbardziej efektywną dawkę zakaźną, odpowiednią zjadliwość i podatność genotypu gospodarza i najlepiej przetestować je w badaniach pilotażowych. Wystawianie muszek na działanie kultur bakteryjnych o różnej gęstości optycznej oraz pomiar ich dawki zakaźnej i przeżywalności jest odpowiednim punktem wyjścia do pracy z nowymi gatunkami bakterii lub liniami muchowymi.
Kroki protokołu, takie jak głodzenie much przed karmieniem i ponowne zawieszenie granulek bakteryjnych w 5% roztworze sacharozy, są powszechne w infekcjach jamy ustnej i zwiększają wiarygodność infekcji bakteryjnej podczas ekspozycji 7,8,9,10. Należy jednak pamiętać, że podczas ekspozycji muchy zasadniczo żyją na powierzchni kultury bakteryjnej. W trakcie chodzenia po tej kulturze bakterie zagnieżdżą się na powierzchni muchy, zwłaszcza na naskórku lub wokół włosia24. Te bakterie naskórkowe nie odzwierciedlają udanej infekcji jelitowej, ale nadal zostałyby wykryte przez homogenizację i posiew much. Aby zmniejszyć ryzyko wyników fałszywie dodatnich, konieczne jest sterylizowanie much powierzchniowo poprzez zanurzenie w 70% etanolu na okres do 1 minuty.
Biorąc pod uwagę tempo wydalania bakterii, niezbędne jest zakażenie jamy ustnej. Liczba patogenów uwalnianych przez gospodarza do środowiska jest często trudna do zmierzenia, a obciążenie wewnętrzne jest często traktowane jako wskaźnik zastępczy dla ciężkości infekcji, a tymsamym transmisji. Pomiar obciążenia bakteryjnego wraz z wydalaniem bakterii pozwala na zbadanie związku między tymi dwoma ważnymi składnikami ciężkości choroby i rozprzestrzeniania się38. Jednym z ograniczeń przedstawionej metody jest to, że oznaczanie wewnętrznego obciążenia bakteryjnego much wymaga destrukcyjnego pobierania próbek. Utrudnia to badanie podłużnych trendów wzrostu i usuwania patogenów u tego samego osobnika. Możliwe jest jednak przezwyciężenie tego ograniczenia poprzez destrukcyjne pobieranie próbek kohort osób na różnych etapach infekcji, przy założeniu, że średnie obciążenie drobnoustrojami w każdej kohorcie odzwierciedla podłużną dynamikę patogenu w obrębie danej osoby. Wydalanie bakteryjne nie ma tych samych ograniczeń, a my oferujemy przykłady, w jaki sposób wydalanie można określić ilościowo w próbce przekrojowej lub podłużnie, aby zbadać, jak wydalanie zmienia się w organizmie danej osoby w czasie.
Wiele cech gospodarza i patogenu wspólnie decyduje o skłonności danej osoby do przenoszenia choroby 25,26,39. Chociaż znaczenie tych cech prawdopodobnie różni się w zależności od systemu gospodarz-patogen, wydalanie jest prawdopodobnie głównym wyznacznikiem transmisji fekalno-oralnej. Możliwość pomiaru wydalania bakterii otwiera możliwość przetestowania tego założenia. Po scharakteryzowaniu dynamiki gospodarz-patogen w pożądanym panelu linii much, eksperymentatorzy mogli doustnie zarażać osoby i umieszczać je obok niezainfekowanych, podatnych gospodarzy podczas ich okresów zakaźnych. Te muchy "biorcy" mogą być następnie badane pod kątem wewnętrznego obciążenia bakteryjnego w różnych punktach czasowych jako sposób bezpośredniego pomiaru transmisji.
Podziękowania
Ta praca została wsparta strategiczną nagrodą od Wellcome Trust dla Centrum Odporności, Infekcji i Ewolucji (http://ciie.bio.ed.ac.uk; numer referencyjny grantu 095831). PFV było wspierane przez stypendium Branco Weissa (https://brancoweissfellowship.org/) oraz stypendium kanclerza (Szkoła Nauk Biologicznych, Uniwersytet w Edynburgu); JASJ był wspierany przez stypendium doktoranckie NERC E3 DTP.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Fiolki | Sarstedt Sp. z o.o. | 58.490 | Polistyren płaska rurka 75mm x 23.5mm, 23ml |
| Agar | Sigma-Aldrich | A7002 | Agar, popiół 2,0-4,5% |
| Cukier brązowy | Bidvest | 66032 | Cukier miękki jasnobrązowy |
| Kukurydza | Dove's Farm | Organiczna mąka kukurydziana | |
| Drożdże Fermipan | Bidvest | 96360 | Suche, błyskawiczne drożdże |
| Metylo-4-hydroksybenzoesan | Sigma-Aldrich | H5501 | >=99,0%, krystaliczna |
| sacharoza | Sigma-Aldrich | 84097 | Sacharoza BioUltra, do biologii molekularnej, >=99,5% (HPLC) |
| Szalki Petriego | Fisher Scientific UK Ltd. | 15788517 | X600 szalka Petriego 90 x 16,2 mm Sterylne |
| probówki Triple Vent Falcon (50 ml) | Greiner Bio-one Inc | 210261 | Probówka wirówkowa, 50 ml, z osłoną, w worku, sterylna |
| probówka Eppendorfa (0,5 ml) | Sarstedt Ltd. | 72.699 | Sarstedt Micro Tube Stożkowa podstawa Push Cap 0,5 ml Standardowa neutralna |
| tuba Eppendorf (1,5 ml) | Sarstedt Ltd. | 72.690.001 | Sarstedt Micro Tube Stożkowa podstawa Push Cap 1,5 ml Standardowy neutralny |
| etanol | VWR International Ltd. | 20821.33 | ETANOL ABSOLUTE ANALAR NP ACS/R.PE - Kolba |
| stożkowa | VWR International Ltd. | 214-0038 | Wąska szyjka, 2 L kolba Erlenmeyera |
| Sterylna bibuła filtracyjna | Fisher Scientific UK Ltd. | 1001-020 | Gładkie koło i arkusze; Zatrzymywanie cząstek: większe niż 11um; Prędkość filtracji: 150 herzberg; Przepływ powietrza: 10,5 s / 100 ml / cal2; Średnia porowatość; Gładka powierzchnia; Stopień 1; Typ: okrąg; Średnica: |
| Pojemnik na próbki Bijou | Fisher Scientific UK Ltd. | 129A | 7ml polistyrenowy pojemnik na próbki |
| Pseudomonas izolacyjny agar | Sigma-Aldrich | 17208 | Zawiera agar 13,6 g / L, chlorek magnezu 1,4 g / L, trawienie trawienne tkanek zwierzęcych 20 g / L, siarczan potasu 10 g / L, triklosan 0,025 g / L |
| bulion LB, Miller | Fisher Scientific UK Ltd. | BP1426 | Zawiera 10 g tryptonu, 5 g ekstraktu drożdżowego, 10 g chlorku sodu na litr |
| Duże klatki do pobierania zarodków | Scientific Laboratory Supplies Ltd. | 59-101 | Flystuff - pasuje do płytki Petriego 100 mm |
| Roztwór odczynnika TRI | Life Technologies | AM9738 | |
| 96-dołkowa mikropłytka | Scientific Laboratory Supplies Ltd. | 353072 | Falcon 96 Well Clear Flat Bottom Mikropłytka do hodowli komórek polistyrenowych z powłoką TC z pokrywką Sterylny |
| tłuczek | Fisher Scientific UK Ltd | 12649595 | Tłuczek, wstępnie sterylizowany; Aksylen; Młynek do tkanek; Niebieski; Konstrukcja z obojętnego polipropylenu; Pasuje do probówek wirówkowych o pojemności 1,5 i 2,0 ml; Pakowane pojedynczo; 100/pk |
| Zaopatrzenie laboratoriów naukowych | glicerolu | CHE2068 | Glycerol A.R. 99,5% 2,5 L |
| Wata nienasiąkliwa | Cowens Ltd | ABL | Niechłonna ilość Duża ilość 20 worków x 500 |
| Wata | chłonna Cowens Ltd | ABS | BP mała ilość 20 worków x 500 |
| Vortex | Fisherbrand | Whirlimixer 75W 50-6-Hz 220-240V | |
| Inkubator orbitalny | Gallenkamp | INR-200-010V | 220 V, 50 Hz, 5 A. Temperatura nominalna: 70ºC. Częstotliwość wytrząsania: 0...400 obr./min. |
| Czytnik mikropłytek absorbancyjnych | Biotek Instruments Ltd | ELx808&handel; Czytnik mikropłytek absorbancji | |
| Gen 5 Czytnik mikropłytek i oprogramowanie do obrazowania | Biotek Instruments Ltd | do wirówki do czytnika mikropłytek absorbancji | |
| Wirówka stołowa Beckman Coulter | 392304 | Allegra X-12R, lodówka 50Hz 230V | |
| Step One Plus System qPCR w czasie rzeczywistym | Thermofisher Scientific | 4376600 | Applied biosystems System qPCR |
| w czasie rzeczywistym Step One PlusOprogramowanie Step One 2.3 | Thermofisher Scientific | dla systemów qPCR w czasie rzeczywistym Stepone i SteponePlus | |
| R Oprogramowanie statystyczne | https://cran.r-project.org/ | ||
| 10 i mikro; L końcówki do pipet | Greiner Bio-one Inc | 741015 | Easlyload gilson. Z podziałką, bezbarwne, wkładowe, 960 szt. |
| 200 i mikro; L końcówki do pipet | Greiner Bio-one Inc | 741065 | Easlyload gilson. Z podziałką, bezbarwny, wkład, 960 szt. |
| 1000 & mikro; L końcówki do pipet | Greiner Bio-one Inc | 741045 | Easlyload gilson. Z podziałką, bezbarwne, wkładowe, 960 szt. |
| 20 i mikro; L końcówki do pipet z filtrem | Greiner Bio-one Inc | 774288 | Końcówka filtra w stylu gilsona. Przezroczysty, stojak niebieski, pakowany pojedynczo, bez R/Dnase, 10 stojaków po 96 sztuk |
| 200 i mikro; L końcówki do pipet z filtrem | Greiner Bio-one Inc | 739288 | Końcówka filtra w stylu gilsona. Przezroczysty, stojak niebieski, pakowany pojedynczo, bez R/Dnase, 10 stojaków po 96 sztuk |
| 1000 i mikro; L Końcówki do pipet z filtrem | Greiner Bio-one Inc | 740288 | Końcówka filtra w stylu gilsona. Przezroczysty, stojak niebieski, pakowany pojedynczo, bez R/Dnase, 10 stojaków po 60szt |
Bibliografia
- Hoffmann, J. A. The immune response of Drosophila. Nature. 426 (6962), 33-38 (2003).
- Buchon, N., Silverman, N., Cherry, S. Immunity in Drosophila melanogaster - from microbial recognition to whole-organism physiology. Nat Rev Immunol. 14 (12), 796-810 (2014).
- Bergman, P., Seyedoleslami Esfahani, S., Engström, Y. Drosophila as a Model for Human Diseases-Focus on Innate Immunity in Barrier Epithelia. Curr Top Dev Biol. 121, 29-81 (2017).
- Apidianakis, Y., Rahme, L. G. Drosophila melanogaster as a model host for studying Pseudomonas aeruginosa infection. Nat Protoc. 4 (9), 1285-1294 (2009).
- Khalil, S., Jacobson, E., Chambers, M. C., Lazzaro, B. P. Systemic Bacterial Infection and Immune Defense Phenotypes in Drosophila Melanogaster. JoVE J Vis Exp. (99), e52613-e52613 (2015).
- Neyen, C., Bretscher, A. J., Binggeli, O., Lemaitre, B. Methods to study Drosophila immunity. Methods San Diego Calif. 68 (1), 116-128 (2014).
- Nehme, N. T., et al. A Model of Bacterial Intestinal Infections in Drosophila melanogaster. PLOS Pathog. 3 (11), e173(2007).
- Bou Sleiman, M. S., Osman, D., Massouras, A., Hoffmann, A. A., Lemaitre, B., Deplancke, B. Genetic, molecular and physiological basis of variation in Drosophila gut immunocompetence. Nat Commun. 6, 7829(2015).
- Buchon, N., Broderick, N. A., Lemaitre, B. Gut homeostasis in a microbial world: insights from Drosophila melanogaster. Nat Rev Microbiol. 11 (9), 615-626 (2013).
- Kuraishi, T., Hori, A., Kurata, S. Host-microbe interactions in the gut of Drosophila melanogaster. Front Physiol. 4, (2013).
- Ha, E. -M., Oh, C. -T., Bae, Y. S., Lee, W. -J. A Direct Role for Dual Oxidase in Drosophila Gut Immunity. Science. 310 (5749), 847-850 (2005).
- Limmer, S., et al. Pseudomonas aeruginosa RhlR is required to neutralize the cellular immune response in a Drosophila melanogaster oral infection model. Proc Natl Acad Sci U S A. 108 (42), 17378-17383 (2011).
- Apidianakis, Y., Pitsouli, C., Perrimon, N., Rahme, L. Synergy between bacterial infection and genetic predisposition in intestinal dysplasia. Proc Natl Acad Sci U S A. 106 (49), 20883-20888 (2009).
- Vodovar, N., et al. Drosophila host defense after oral infection by an entomopathogenic Pseudomonas species. Proc Natl Acad Sci U S A. 102 (32), 11414-11419 (2005).
- Chugani, S. A., Whiteley, M., Lee, K. M., D'Argenio, D., Manoil, C., Greenberg, E. P. QscR, a modulator of quorum-sensing signal synthesis and virulence in Pseudomonas aeruginosa. Proc Natl Acad Sci. 98 (5), 2752-2757 (2001).
- Gupta, V., Vasanthakrishnan, R. B., Siva-Jothy, J., Monteith, K. M., Brown, S. P., Vale, P. F. The route of infection determines Wolbachia antibacterial protection in Drosophila. Proc R Soc B. 284 (1856), 20170809(2017).
- Martins, N. E., Faria, V. G., Teixeira, L., Magalhães, S., Sucena, É Host Adaptation Is Contingent upon the Infection Route Taken by Pathogens. PLoS Pathog. 9 (9), (2013).
- Chambers, M. C., Jacobson, E., Khalil, S., Lazzaro, B. P. Thorax Injury Lowers Resistance to Infection in Drosophila melanogaster. Infect Immun. 82 (10), 4380-4389 (2014).
- Gupta, V., Stewart, C., Rund, S. S., Monteith, K., Vale, P. F. Costs and benefits of sublethal Drosophila C virus infection. J Evol Biol. , (2017).
- Ferreira, ÁG., Naylor, H., Esteves, S. S., Pais, I. S., Martins, N. E., Teixeira, L. The Toll-Dorsal Pathway Is Required for Resistance to Viral Oral Infection in Drosophila. PLoS Pathog. 10 (12), (2014).
- Buchon, N., Broderick, N. A., Poidevin, M., Pradervand, S., Lemaitre, B. Drosophila Intestinal Response to Bacterial Infection: Activation of Host Defense and Stem Cell Proliferation. Cell Host Microbe. 5 (2), 200-211 (2009).
- Wayland, M. T., et al. Spotting the differences: Probing host/microbiota interactions with a dedicated software tool for the analysis of faecal outputs in Drosophila. J Insect Physiol. 69, 126-135 (2014).
- Hori, A., Kurata, S., Kuraishi, T. Unexpected role of the IMD pathway in Drosophila gut defense against Staphylococcus aureus. Biochem Biophys Res Commun. 495 (1), 395-400 (2018).
- Ren, C., Webster, P., Finkel, S. E., Tower, J. Increased Internal and External Bacterial Load during Drosophila Aging without Life-Span Trade-Off. Cell Metab. 6 (2), 144-152 (2007).
- Ezenwa, V. O., et al. Host behaviour-parasite feedback: an essential link between animal behaviour and disease ecology. Proc R Soc B. 283 (1828), 20153078(2016).
- McCallum, H., et al. Breaking beta: deconstructing the parasite transmission function. Phil Trans R Soc B. 372 (1719), 20160084(2017).
- Vale, P. F., Choisy, M., Little, T. J. Host nutrition alters the variance in parasite transmission potential. Biol Lett. 9 (2), 20121145(2013).
- Mulcahy, H., Sibley, C. D., Surette, M. G., Lewenza, S. Drosophila melanogaster as an Animal Model for the Study of Pseudomonas aeruginosa Biofilm Infections In Vivo. PLoS Pathog. 7 (10), e1002299(2011).
- Kuraishi, T., Binggeli, O., Opota, O., Buchon, N., Lemaitre, B. Genetic evidence for a protective role of the peritrophic matrix against intestinal bacterial infection in Drosophila melanogaster. Proc Natl Acad Sci. 108 (38), 15966-15971 (2011).
- Myllymäki, H., Valanne, S., Rämet, M. The Drosophila Imd Signaling Pathway. J Immunol. 192 (8), 3455-3462 (2014).
- Lewis, E. A new standard food medium. Cold Spring Harb Protoc. 2014 (9), pdb.rec081414(2014).
- Bolker, B. M., et al. Generalized linear mixed models: a practical guide for ecology and evolution. Trends Ecol Evol. 24 (3), 127-135 (2009).
- R Core Team. R: A Language and Environment for Statistical Computing. , R Foundation for Statistical Computing. Vienna, Austria. (2015).
- Schmittgen, T. D., Livak, K. J. Analyzing real-time PCR data by the comparative CT method. Nat Protoc. 3 (6), 1101-1108 (2008).
- Kalbfleisch, J. D., Prentice, R. L. The Statistical Analysis of Failure Time Data. , 2nd Edition, Wiley-Blackwell. Hoboken, N.J. (2002).
- Nuhanen, B. Drosophila melanogaster, drawing.SVG. , Available from: https://commons.wikimedia.org/wiki/File:Drosophila-drawing.svg (2007).
- Accountalive. Example of a survival curve estimated by Kaplan-Meier method including 95% confidence limits. , Available from: https://commons.wikimedia.org/wiki/File:Kaplan-Meier-sample-plot.svg (2011).
- Susi, H., Vale, P. F., Laine, A. -L. Host Genotype and Coinfection Modify the Relationship of within and between Host Transmission. Am Nat. 186 (2), 252-263 (2015).
- Fellous, S., Duncan, A. B., Quillery, E., Vale, P. F., Kaltz, O. Genetic influence on disease spread following arrival of infected carriers. Ecol Lett. 15 (3), 186-192 (2012).
Przedruki i uprawnienia
