Interakcje białko-białko i białko-metabolit są kluczowe dla wszystkich funkcji komórkowych. W niniejszym artykule opisujemy protokół, który umożliwia równoległą analizę tych interakcji z wybranym białkiem. Nasz protokół został zoptymalizowany pod kątem hodowli komórek roślinnych i łączy oczyszczanie powinowactwa z wykrywaniem białek i metabolitów opartym na spektrometrii mas.
Artykuł metodologiczny
2 w 1: Jednoetapowe oczyszczanie powinowactwa do równoległej analizy kompleksów białko-białko i białko-metabolit
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Procesy komórkowe są regulowane przez interakcje między cząsteczkami biologicznymi, takimi jak białka, metabolity i kwasy nukleinowe. Podczas gdy badanie interakcji białko-białko (PPI) nie jest nowością, podejścia eksperymentalne mające na celu scharakteryzowanie endogennych interakcji białko-metabolit (PMI) stanowią raczej nowe osiągnięcie. W niniejszym artykule przedstawiamy protokół, który pozwala na jednoczesną charakterystykę PPI i PMI wybranego białka, określanego jako przynęta. Nasz protokół został zoptymalizowany pod kątem hodowli komórek Arabidopsis i łączy oczyszczanie powinowactwa (AP) z wykrywaniem białek i metabolitów opartym na spektrometrii mas (MS). Krótko mówiąc, transgeniczne linie Arabidopsis, wyrażające białko przynęty połączone ze znacznikiem powinowactwa, są najpierw poddawane lizie w celu uzyskania natywnego ekstraktu komórkowego. Przeciwciała anty-znacznikowe są używane do ściągania białek i metabolitów będących partnerami białka przynęty. Oczyszczone kompleksy o powinowactwie ekstrahuje się jednoetapową metodą eteru metylowo-tert-butylowego (MTBE)/metanolu/wody. Podczas gdy metabolity rozdzielają się na fazę polarną lub hydrofobową, białka można znaleźć w osadzie. Zarówno metabolity, jak i białka są następnie analizowane za pomocą ultra-sprawnej chromatografii cieczowej ze spektrometrią mas (UPLC-MS lub UPLC-MS/MS). Linie kontrolne z pustym wektorem (EV) służą do wykluczania wyników fałszywie dodatnich. Główną zaletą naszego protokołu jest to, że umożliwia on identyfikację białkowych i metabolitowych partnerów białka docelowego równolegle w warunkach zbliżonych do fizjologicznych (lizat komórkowy). Przedstawiona metoda jest prosta, szybka i może być łatwo zaadaptowana do systemów biologicznych innych niż hodowle komórek roślinnych.
Wprowadzenie
Opisana tutaj metoda ma na celu identyfikację metabolitów i partnerów białkowych wybranego białka w warunkach lizatu komórkowego bliskiego in vivo. Spekuluje się, że znacznie więcej metabolitów niż obecnie scharakteryzowanych pełni ważną funkcję regulacyjną1. Metabolity mogą działać jak przełączniki biologiczne, zmieniając aktywność, funkcjonalność i/lub lokalizację białek receptorowych2,3,4. W ostatniej dekadzie opracowano kilka przełomowych metod, umożliwiających identyfikację PMI in vivo lub w warunkach bliskich in vivo5. Dostępne podejścia można podzielić na dwie grupy. Pierwsza grupa obejmuje techniki, które rozpoczynają się od przynęty zawierającej znane metabolity w celu schwytania nowych partnerów białkowych. Metody obejmują chromatografię powinowactwa6, test powinowactwa do leku reagujący na stabilność celu7, chemo-proteomics8 oraz termiczne profilowanie proteomu9. Druga grupa składa się z pojedynczej metody, która zaczyna się od znanego białka w celu identyfikacji ligandów małocząsteczkowych10,11.
AP w połączeniu z lipidomiką opartą na MS został użyty do analizy kompleksów białkowo-lipidowych u Saccharomyces cerevisiae12. Jako punkt wyjścia autorzy wykorzystali szczepy drożdży wykazujące ekspresję 21 enzymów biorących udział w biosyntezie ergosteroli i 103 kinazy połączone ze znacznikiem oczyszczania tandemowego powinowactwa (TAP). Stwierdzono, że 70% enzymów i 20% kinaz wiąże różne hydrofobowe ligandy, rzucając światło na skomplikowaną sieć interakcji białkowo-lipidowych.
Poprzednio mogliśmy wykazać, że podobnie jak w przypadku lipidów, związki polarne i półpolarne również pozostają związane z kompleksami białkowymi wyizolowanymi z lizatów komórkowych13. Na podstawie tych ustaleń zdecydowaliśmy się zoptymalizować metodę AP opublikowaną wcześniej10,11 dla komórek roślinnych i związków hydrofilowych14. W tym celu wykorzystaliśmy wektory TAP opisane przez Van Leene et al. 2010, z powodzeniem stosowane w badaniach PPI roślin15. Aby skrócić czas potrzebny na uzyskanie linii transgenicznych, zdecydowaliśmy się na hodowle komórkowe Arabidopsis. Zastosowaliśmy jednoetapową metodę ekstrakcji eterem metylowo-tert-butylowym (MTBE)/metanolem/wodą, co pozwoliło na scharakteryzowanie białek (granulki), lipidów (faza organiczna) i metabolitów hydrofilowych (faza wodna)16 w pojedynczym eksperymencie oczyszczania powinowactwa. Linie kontrolne EV zostały wprowadzone, aby wykluczyć wyniki fałszywie dodatnie, np. białka wiążące się z samym znacznikiem. Jako dowód słuszności koncepcji oznaczyliśmy trzy (z pięciu) kinazy difosforanowych nukleozydów obecnych w genomie Arabidopsis (NDPK1-NDPK3). Między innymi udało nam się wykazać, że NDPK1 oddziałuje z S-transferazą glutationu i glutationem. W związku z tym możemy udowodnić, że NDPK1 jest poddawany glutationylacji14.
Podsumowując, prezentowany protokół jest ważnym narzędziem do charakteryzowania sieci interakcji białko-białko i białko-małocząsteczka i stanowi duży postęp w stosunku do istniejących metod.
Protokół
Przygotowanie transgenicznych linii hodowli komórek Arabidopsis, w tym klonowanie, transformacja, selekcja i warunki wzrostu, można znaleźć w17. Należy pamiętać, że linie kontrolne EV są zalecane w celu skorygowania wyników fałszywie dodatnich. Przed eksperymentem należy potwierdzić nadekspresję białka przynęty za pomocą analizy western blot, np. przy użyciu przeciwciał IgG przeciwko części białka G znacznika powinowactwa tandemowego. Ważne jest, aby oddzielić pożywkę wzrostową od materiału do hodowli komórek roślinnych.
1. Przygotowanie materiału komórek roślinnych przed eksperymentem
- Wyhoduj linię hodowli komórek PSB-L A. THALIANA z nadekspresją interesującego nas białka18.
- Przygotować pożywkę MSMO, która zawiera 4,43 g/l MSMO zmieszane z 30 g/l sacharozy. Doprowadzić pH buforu do 5,7 za pomocą 1 M KOH i umieścić roztwór w autoklawie. Przed eksperymentem należy uzupełnić pożywkę 0,5 mg/l kwasem α-naftalenooctowym, 0,05 mg/l kinetyną i 50 μg/ml kanamycyną.
- Hodować przekształcone kultury komórek roślinnych w 50 ml pożywki MSMO w kolbie o pojemności 100 ml na wytrząsarce orbitalnej z delikatnym mieszaniem (130 obr./min). Hodować komórki w pomieszczeniu hodowlanym w temperaturze 20 °C i natężeniu światła równym 80 μmol m-2 s-1.
- Subhodowlę komórek na świeże podłoże co 7 dni, rozcieńczając je w stosunku 1:10.
- Zebrać komórki w logarytmicznej fazie wzrostu za pomocą szklanego lejka połączonego z pompą próżniową, używając nylonowej siatki jako filtra. Owiń naciek folią aluminiową i zamroź w ciekłym azocie.
Uwaga: Pamiętaj, że ciekły azot jest bardzo zimny. Niewłaściwa obsługa może spowodować oparzenia. Nosić odpowiednie środki ochrony osobistej, w tym rękawice izolowane termicznie, okulary ochronne i fartuch laboratoryjny.
2. Protokół TAP
Uwaga: Poniższy krok jest zaadaptowany z Maeda et al. 201411 i Van Leene et al. 201117.
- Homogenizować zebrany i zamrożony materiał do hodowli komórek roślinnych za pomocą młynka mieszającego (2 min przy 20 Hz) lub moździerza i tłuczka w celu uzyskania drobnego proszku. Podwielokrotność 3 g rozdrobnionego materiału (co odpowiada około 90 mg białka ogółem) na próbkę. Na tym etapie należy unikać rozmrażania próbki, stosując urządzenia wstępnie schłodzone ciekłym azotem.
Uwaga: Zmielony materiał roślinny należy przechowywać w probówce o pojemności 50 ml w temperaturze –80 °C do początku procedury AP. - Próbkę należy rozcierać w ciekłym moździerzu schłodzonym azotem z 3 ml lodowatego buforu do lizy (0,025 M Tris–HCl pH 7,5; 0,5 M NaCl; 1,5 mM MgCl2; 0,5 mM DTT; 1 mM NaF; 1 mM Na3VO4; 100x rozcieńczony komercyjny koktajl inhibitorów proteazy; 1 mM PMSF) aż do rozmrożenia materiału. Gdy próbka się rozmrozi, natychmiast przejdź do następnego kroku.
Uwaga: Przygotuj bufor do lizy na świeżo. Na tym etapie należy wprowadzić ślepe próbki. Detergenty nie są zalecane, ponieważ mogą powodować problemy w wykrywaniu stwardnienia rozsianego. - W celu usunięcia resztek komórkowych należy podzielić materiał na probówki do mikrowirówek o pojemności 2 ml i wirować przy 20,817 x g przez 10 minut w temperaturze 4 °C. Zebrać 3 ml klarownego lizatu w stożkowej probówce wirówkowej o pojemności 15 ml.
- Na etapie wirowania zrównoważyć kulki IgG-sefalozy. Podać 100 μl kulek na próbkę i przepłukać je 1 ml buforu do lizy. Vortex do ponownego zawieszenia koralików i flash-spinu. Wyrzuć bufor do lizy i powtórz ten krok dwukrotnie. Zawiesić kulki w 400 μl buforu do lizy.
- Dodać kulki do zebranego lizatu roślinnego i inkubować mieszaninę na obracającym się kole przez 1 godzinę w temperaturze 4 °C.
- Przenieść mieszaninę do strzykawki połączonej za pomocą nasadki Luer-lock z kolumną wirującą o wielkości porów filtra 35 μm. Zastosować ciśnienie, aby przepuścić lizat. Koraliki z dołączonymi kompleksami pozostaną na filtrze, podczas gdy lizat przejdzie przez.
Uwaga: Opcjonalnie należy zastosować system kolektora próżniowego. Upewnij się, że wywierasz delikatny nacisk, aby nie uszkodzić koralików. - Przemyj kulki najpierw 10 ml buforu płuczącego (0,025 M Tris–HCl pH 7,5; 0,5 M NaCl), a następnie 1 ml buforu elucyjnego (10 mM Tris–HCl pH 7,5; 150 mM NaCl; 0,5 mM EDTA; 1000x rozcieńczony E64 i 1 mM PMSF). Wykonaj mycie za pomocą strzykawki podłączonej do kolumny lub systemu kolektora próżniowego.
Uwaga: Podczas korzystania z systemu kolektora próżniowego należy delikatnie naciskać, aby nie uszkodzić koralików. - Inkubować kulki z 400 μl buforu elucyjnego zawierającego 50 j. ulepszonej wersji proteazy wirusa wytrawiania tytoniu (AcTEV). Używać wytrząsarki stołowej przy 1 000 obr./min przez 30 min w temperaturze 16 °C.
Uwaga: Pamiętaj, aby użyć zatyczki do zamknięcia kolumny na dole, dodając bufor elucyjny. - Dodać dodatkową porcję (50 j.) enzymu do kolumny i inkubować mieszaninę przez następne 30 minut w tych samych, opisanych powyżej warunkach.
- Zebrać eluat w probówce do mikrowirówki o pojemności 2 ml przez odwirowanie (1 min, 20,817 x g) lub przez kolektor próżniowy. Aby usunąć pozostałe kompleksy, wprowadzić dodatkowy etap elucji przy użyciu 200 μl buforu elucyjnego.
Uwaga: Przechowywać próbkę w temperaturze –20 °C lub –80 °C lub natychmiast przystąpić do etapu ekstrakcji białek i metabolitów. Zamrożone próbki rozmrozić na lodzie.
3. Analiza Western Blot
- Aby potwierdzić obecność białka przynęty w pobranym eluacie, należy użyć 10 μl eluatu zawierającego białko-metabolit do przeprowadzenia analizy SDS-PAGE i western blot. Aby zidentyfikować białko będące przedmiotem zainteresowania, należy użyć mysich pierwszorzędowych przeciwciał przeciwko białku wiążącemu streptawidynę (1:200), części znacznika TAP pozostałej po rozszczepieniu proteazy TEV, jak opisano w Van Leene et al. 201117. Następnie użyj wtórnych przeciwciał przeciwko mysim kozom w połączeniu z HRP.
4. Ekstrakcja metabolitów i białek
Uwaga: Ten protokół jest adaptacją Giavalisco et al. 201116.
Uwaga: Począwszy od tego kroku, korzystaj z rozwiązań klasy UPLC–MS.
- Dodać 1 ml eteru metylowo-tert-butylowego (MTBE)/metanolu/rozpuszczalnika wodnego (3:1:1) do zebranego eluatu i wymieszać próbkę przez inwersję. Upewnij się, że rozpuszczalnik jest schłodzony do temperatury –20 °C przed etapem ekstrakcji.
UWAGA: MTBE i metanol są substancjami szkodliwymi. Etap odciągu należy wykonać pod wyciągiem i założyć odpowiednie środki ochrony osobistej, np. rękawice. - Do każdej próbki dodać 0,4 ml roztworu metanol:woda w stosunku 1:3 i wymieszać zawartość próbki przez inwersję.
Uwaga: Uzupełnienie mieszaniny roztworem metanol:woda powoduje rozdzielenie faz. Górna faza zawiera lipidy, dolna faza zawiera metabolity polarne i półpolarne, a białka można znaleźć w osadzie. - Aby rozdzielić fazy, należy odwirować próbkę o masie 20,817 x g przez 2 minuty w temperaturze pokojowej, a następnie pobrać górną fazę do pomiarów lipidów (nie jest to wykonywane w niniejszym protokole) za pomocą ręcznej pipety do obsługi cieczy o pojemności 1 ml.
- Dodać 0,2 ml metanolu i wymieszać przez odwrócenie.
- Odwirować próbkę o stężeniu 20,817 x g przez 2 minuty w temperaturze pokojowej, a następnie pobrać fazę polarną do pomiarów metabolitów (związki polarne i półpolarne). Aby uniknąć naruszenia osadu białka, na dnie probówki należy pozostawić około 50 μl fazy ciekłej.
- Suche próbki pobrane do pomiarów metabolitów przez noc w parowniku odśrodkowym. Unikaj nadmiernego wysuszania granulek białka, usuwając próbki z parownika po 30–60 min.
Uwaga: Próbki należy przechowywać w temperaturze –20 °C lub –80 °C lub natychmiast przystąpić do przygotowania białek do analizy LC–MS/MS.
5. Przygotowanie próbek do analizy proteomicznej
Uwaga: Ten krok jest adaptacją Olsen et al. 200419 oraz instrukcję techniczną mieszanki Trypsin/Lys-C (patrz Tabela Materiałów).
- Przeprowadzić trawienie enzymatyczne próbki.
Uwaga: Rozpuszczalniki stosowane podczas trawienia enzymatycznego i odsalania próbki są szkodliwe. Pracować pod wyciągiem i nosić odpowiednie środki ochrony osobistej, np. rękawice.- Rozpuścić osad białkowy w 30 μl świeżo przygotowanego buforu denaturacyjnego (40 mM wodorowęglanu amonu zawierającego 2 M tiomocznik/6 M mocznik, pH 8). Aby osiągnąć lepszą rozpuszczalność białek, należy wykonać 15-minutowy krok sonikacji. Powtarzaj ten krok, aż granulka się rozpuści.
- Odwirować próbkę o masie 20,817 x g przez 10 minut w temperaturze 4 °C, a następnie przenieść supernatant do nowej probówki do mikrowirówki.
- Określ stężenie białka za pomocą testu białka Bradforda.
- Do dalszej analizy należy podać podwielokrotność objętości odpowiadającą 100 μg białka i wypełnić próbkę do 46 μl buforem denaturacyjnym.
- Dodać do próbki 2 μl świeżo przygotowanego buforu redukcyjnego (50 mM DTT rozpuszczonego wH2O) i inkubować przez 30 minut w temperaturze pokojowej.
- Badać próbkę 2 μl świeżo przygotowanego buforu alkilacyjnego (150 mM jodoacetamidu rozpuszczonego w 40 mM buforze wodorowęglanu amonu) i inkubować mieszaninę w ciemności przez 20 minut w temperaturze pokojowej.
- Rozcieńczyć próbkę 30 μl 40 mM buforu wodorowęglanu amonu i dodać 20 μl mieszaniny LysC/Trypsyna.
- Po 4 godzinach inkubacji w temperaturze 37 °C rozcieńczyć próbkę 300 μl 40 mM buforu wodorowęglanowego amonu.
- Kontynuować inkubację przez noc w temperaturze 37 °C.
- Zakwasić próbkę około 20 μl 10% kwasu trifluorooctowego (TFA) w celu uzyskania pH < 2. Sprawdzić pH próbki za pomocą paska pH.
Uwaga: Przechowywać próbkę w temperaturze –20 °C lub przejść do następnego etapu.
- Odsolić strawione białka.
Uwaga: Najlepiej użyć systemu kolektora próżniowego. Unikaj nadmiernego wysuszenia kolumny.- Przepłukać kolumnę C18 SPE (patrz tabela materiałów) 1 ml 100% MeOH, a następnie 1 ml 80% acetonitrylu (ACN) zawierającego 0,1% TFA rozcieńczonego w wodzie. Zastosuj, tutaj i w dalszych etapach odsalania białek, system kolektora próżniowego, aby przyspieszyć proces. Unikaj nadmiernego wysuszenia kolumny.
- Wyrównać kolumnę, przemywając ją dwukrotnie 1 ml 0,1% TFA rozcieńczonego w wodzie.
- Załaduj próbkę do kolumny. Przepłukać probówkę dodatkowymi 200 μl 0,1% TFA i przenieść roztwór na kolumnę. Uruchom rozwiązania za pośrednictwem kolumny.
- Przemyć kolumnę dwukrotnie 1 ml 0,1% TFA.
- Elute odsolone peptydy z kolumny za pomocą 800 μL 60% roztworu ACN, 0,1% TFA. Pobraną frakcję wysuszyć w parowniku odśrodkowym, unikając nadmiernego wysuszenia frakcji białkowej, usuwając próbki z parownika po 30–60 min.
Uwaga: Próbki należy przechowywać w temperaturze –20 °C lub –80 °C lub natychmiast przejść do następnego etapu. W kolejnych krokach należy przechowywać próbki na lodzie.
6. Pomiar przygotowanych próbek białek za pomocą UPLC–MS/MS.
Uwaga: Przed pomiarami proteomicznymi i metabolomicznymi, przefiltruj (0,2 μm wielkości porów) i odgazuj wszystkie za pomocą pompy próżniowej przez 1 godzinę.
- Wysuszone osady peptydowe przechowywane w probówce mikrowirówkowej o pojemności 2 ml zawiesić w 50 μl buforu C (3% v/v ACN, 0,1% v/v kwasu mrówkowego) za pomocą ręcznej pipety do obsługi cieczy o pojemności 200 μl. Sonikować próbki przez 15 minut w łaźni ultradźwiękowej o częstotliwości ultradźwiękowej 35 kHz.
Uwaga: ACN i kwas mrówkowy są substancjami szkodliwymi. Pracować pod wyciągiem i nosić odpowiednie środki ochrony osobistej, np. rękawice. - Odwirować próbkę o stężeniu 20,817 x g przez 10 minut w temperaturze 4 °C, a następnie przenieść 20 μl supernatantu do szklanej fiolki.
- Oddzielić strawione peptydy za pomocą kolumny C18 z odwróconymi fazami podłączonej do chromatografii cieczowej i uzyskać widma masowe za pomocą spektrometru masowego.
- Rozdzielić w kolumnie 3 μl próbki przy natężeniu przepływu 300 nl/min. W fazie ruchomej należy użyć C i D (63% v/v ACN, 0,1% v/v kwasu mrówkowego), tworząc gradient narastający od 3% ACN do 15% ACN w ciągu 20 minut, a następnie do 30% ACN w ciągu następnych 10 minut.
Uwaga: Pozostałą część próbki należy przechowywać w temperaturze –20 °C lub –80 °C przez okres do kilku miesięcy. Przed pomiarem proteomicznym ponownie zamrozić próbkę na lodzie. - Wymywać zanieczyszczenia przez 10 minut przy użyciu 60% ACN i zrównoważyć kolumnę z 5 μl buforu C przed pomiarem następnej próbki.
- Zyskaj widma masy za pomocą metody MS/MS zależnej od danych z rozdzielczością ustawioną na 70 000, celem AGC 3e6 jonów, maksymalnym czasem wtrysku 100 ms i m/z w zakresie od 300 do 1600. Wykonaj maksymalnie 15 skanów MS/MS w rozdzielczości 17 500, cel AGC 1e5, maksymalny czas wstrzyknięcia 100 ms, współczynnik niedopełnienia 20%, z oknem izolacji 1,6 m/z i m/z w zakresie od 200 do 2000. Włącz wyzwalacz wierzchołkowy (6–20 s), ustaw wykluczenie dynamiczne na 15 s i wyklucz ładunki od 1 do > 5.
- Rozdzielić w kolumnie 3 μl próbki przy natężeniu przepływu 300 nl/min. W fazie ruchomej należy użyć C i D (63% v/v ACN, 0,1% v/v kwasu mrówkowego), tworząc gradient narastający od 3% ACN do 15% ACN w ciągu 20 minut, a następnie do 30% ACN w ciągu następnych 10 minut.
7. Przetwarzanie danych proteomicznych
- Pobierz najnowszą bazę danych proteomu Arabidopsis thaliana z http://www.uniprot.org/ i dołącz bazę danych zanieczyszczeń. Analizuj surowe dane uzyskane z serii LC–MS przy użyciu MaxQuant ze zintegrowaną wyszukiwarką peptydów Andromeda przy użyciu ustawień domyślnych z włączoną normalizacją LFQ20,21,22. Szczegółowe informacje na temat parametrów użytych w tabeli S1.
- Otwórz plik wyjściowy "białko groups.txt". W celu dalszej analizy przefiltruj grupy białek zidentyfikowane za pomocą co najmniej dwóch unikalnych peptydów. Usuń grupy białek zdefiniowane przez MaxQuant jako potencjalne zanieczyszczenia i przefiltruj białka A. thaliana (ARATH w kolumnie nagłówków Fasta) obecne w bazie danych.
- Aby przetestować znaczenie wzbogacenia białek między próbkami, należy użyć znormalizowanych intensywności LFQ i wykonać niesparowany, dwustronny test t Studenta, po którym następuje wielokrotna korekta porównawcza (np. poprawka wskaźnika fałszywych odkryć Benjaminiego i Hochberga (FDR) lub poprawka Bonferroniego).
- Oblicz wartość p, porównując intensywności LFQ uzyskane dla sterowania EV i NDPK1. Odfiltruj wszystkie nieokreślone wartości. Sortuj wartości p w kolejności rosnącej i użyj skryptu R lub kalkulatora online (np. https://www.sdmproject.com/utilities/?show=FDR), aby obliczyć poprawkę FDR. Filtruj wartości FDR poniżej 0,1,
Uwaga: Zastanów się, jaka forma analizy danych jest odpowiednia dla badania. W przypadku badań ilościowych (analiza wzbogacenia białek między próbkami) należy użyć wartości "Intensywność LFQ", natomiast w przypadku badań jakościowych (obecność lub brak danego białka) należy wybrać wartość "Intensywność". - Filtruj grupy białek, które są bardziej obfite w NDPK1 w porównaniu z kontrolą EV. Określ lokalizację potencjalnych partnerów białkowych, korzystając z bazy danych SUBA23 i popraw białko kolokalizowane z NDPK1.
- Oblicz wartość p, porównując intensywności LFQ uzyskane dla sterowania EV i NDPK1. Odfiltruj wszystkie nieokreślone wartości. Sortuj wartości p w kolejności rosnącej i użyj skryptu R lub kalkulatora online (np. https://www.sdmproject.com/utilities/?show=FDR), aby obliczyć poprawkę FDR. Filtruj wartości FDR poniżej 0,1,
8. Pomiar próbek zawierających fazę polarną za pomocą UPLC–MS.
- Zawiesić wysuszoną fazę polarną z etapu 4,5 w 200 μl wody i poddać próbkę sonikacji przez 5 minut.
- Odwirować próbkę o sile 20,817 x g przez 10 minut w temperaturze 4 °C, a następnie przenieść supernatant do szklanej fiolki.
Uwaga: Pozostałą część próbki należy przechowywać w temperaturze –20 °C lub –80 °C przez okres do kilku miesięcy. Przed pomiarem metabolomicznym należy ponownie zamrozić próbkę na lodzie. - Wykonaj etap separacji za pomocą UPLC sprzężonego z kolumną odwróconych faz C18 i uzyskaj widma masowe za pomocą MS.
- Załadować do kolumny 2 μl próbki na wstrzyknięcie dla każdej fazy jonizacji (dodatniej i ujemnej) i oddzielić frakcję przy natężeniu przepływu 400 μl/min. Aby uzyskać wymagany gradient do pomiaru metabolitów, należy przygotować roztwór fazy ruchomej w następujący sposób: bufor A (0,1% kwas mrówkowy wH2O) i bufor B (0,1% kwas mrówkowy w ACN).
- Rozdzielić metabolity przy 400 μl/min i następującym gradiencie: 1 min 99% buforu A, 11-minutowy gradient liniowy od 99% buforu A do 60% buforu A, 13-minutowy gradient liniowy od 60% buforu A do 30% buforu A, 15-minutowy gradient liniowy od 30% buforu A do 1% buforu A, Utrzymuj stężenie 1% do 16 min. Zaczynając od 17 minut, należy stosować gradient liniowy od 1% buforu A do 99% buforu A. Ponownie równoważyć kolumnę przez 3 minuty z 99% stężeniem buforu A przed pomiarem następnej próbki.
- Uzyskaj widma masowe obejmujące zakres mas od 100 do 1500 m/z rozdzielczością ustawioną na 25 000 i czasem ładowania ograniczonym do 100 ms. Ustaw cel AGC na 1e6, napięcie kapilarne na 3 kV przy przepływie gazu w osłonie i wartości gazu pomocniczego odpowiednio 60 i 20. Ustaw temperaturę kapilary na 250 °C i napięcie skimmera na 25V.
9. Przetwarzanie danych metabolomicznych
- Przetwarzaj zebrane chromatogramy uzyskane z obu trybów jonizacji. Użyj oprogramowania do wyodrębnienia stosunku masy do ładunku (m/z), czasu retencji (RT) i intensywności powiązanych pików, np. komercyjnego oprogramowania (patrz Tabela materiałów) lub alternative24.
- Rozpocznij przetwarzanie oprogramowania, klikając dwukrotnie plik .exe
- Utwórz nowy przepływ pracy, wyszukaj działanie "Załaduj z pliku" i przenieś to działanie metodą "przeciągnij i upuść" do pustego obszaru przepływu pracy. Naciśnij aktywność prawym przyciskiem myszy i otwórz ustawienia aktywności.
- W zakładce zawierającej ustawienia "Ogólne" w polu "Nazwa" należy ustawić nazwę eksperymentu, a następnie kliknąć "Wybierz pliki i foldery" i zaznaczyć chromatogramy surowe.
- W zakładce zawierającej "Zaawansowane" ustawienia ustaw "Profile Data Cutoff" na intensywność 0. Kliknij "Zastosuj" i "OK".
- Wyszukaj i dodaj działanie "Data Sweep". Naciśnij aktywność prawym przyciskiem myszy i otwórz ustawienia aktywności.
- W zakładce zawierającej ustawienia "Ogólne" zaznacz "Dane centroidu" i "Dane MS/MS". Usuń wszystkie dane MS/MS, wybierając "Wszystko" w panelu wyboru.
- Wyszukaj i dodaj ćwiczenie "Odejmowanie szumu chemicznego chromatogramu". Naciśnij aktywność prawym przyciskiem myszy i otwórz ustawienia aktywności.
- W zakładce zawierającej ustawienia "Ogólne" zaznacz "Wygładzanie chromatogramu" i ustaw liczbę skanów na "3" oraz "Estymator" na "Średnia ruchoma". Ustaw "Okno RT" na 51 skanów, "Kwantyl" na 50%, Odejmowanie "Metoda" i "Próg" intensywności 750.
- W zakładce zawierającej "Ustawienia zaawansowane" zaznacz "Usuwanie struktury RT" i ustaw "Minimalna długość RT" na 5 skanów.
- W zakładce zawierającej "Ustawienia zaawansowane" zaznacz "m/z Structure Removal" i ustaw "Minimalna długość m/z" na 3 punkty.
- Wyszukaj i dodaj ćwiczenie "Chromatogram RT Alignment". Naciśnij aktywność prawym przyciskiem myszy i otwórz ustawienia aktywności.
- W zakładce zawierającej ustawienia "Ogólne" ustaw "Schemat wyrównania" na "Drzewo podstawy wyrównania parami" i "Interwał wyszukiwania RT" na 0,5 min.
- W zakładce zawierającej "Zaawansowane" ustawienia użyj parametrów domyślnych.
- Wyszukaj i dodaj ćwiczenie "Wykrywanie pików" w grupie działań "Chromatogram". Naciśnij aktywność prawym przyciskiem myszy i otwórz ustawienia aktywności.
- W zakładce zawierającej ustawienia "Ogólne" ustaw "Okno sumowania" na 0,09 min, "Minimalny rozmiar piku" na 0,03 min, "Maksymalna odległość łączenia" na 5 punktów i "Strategia scalania" na "Środki". W polu "Peak RT Splitting" ustaw "Stosunek szczeliny/szczytu" na 50%.
- W zakładce zawierającej "Zaawansowane" ustawienia ustaw "Okno wygładzania" na 5 punktów, "Próg zagęszczenia" na 80% i "Próg spójności" na 1. Ustaw "Center Computation" jako "Intensity-weighted" z "Intensity Threshold" ustawionym na 70%.
- Wyszukaj i dodaj ćwiczenie "Grupowanie izotopów" w grupie działań "Chromatogram". Naciśnij aktywność prawym przyciskiem myszy i otwórz ustawienia aktywności.
- W zakładce zawierającej ustawienia "Ogólne" ustaw "Tolerancję RT" na 0,015 min oraz "Tolerancję m/z" na 5 ppm.
- W zakładce zawierającej ustawienia "Dopasowanie obwiedni" ustaw "Metoda" jako "Brak ograniczenia kształtu" oraz "Jonizacja" jako "Protonacja (dla trybu dodatniego) i "Deprotonacja" (dla trybu ujemnego). Ustaw "Minimalne i maksymalne ładowanie" odpowiednio na 1 i 4.
- W zakładce zawierającej "Zaawansowane" ustawienia użyj parametrów domyślnych.
- Wyszukaj i dodaj aktywność "Singleton Filter".
- W celu wyeksportowania wyników przetwarzania danych należy wyszukać i dodać działanie "Analityk" w grupie działań "Eksport".
- W zakładce zawierającej ustawienia "Ogólne" ustaw "Typ" jako "Klastry" oraz "Obserwowalny" jako "Zsumowana intensywność". Wybierz "Niestandardowe miejsce docelowe" i określ katalog pliku eksportu.
- W zakładce zawierającej "Zaawansowane" ustawienia użyj parametrów domyślnych.
- Dodawanie adnotacji do elementów bryłowych przy użyciu wewnętrznej bazy danych złożonych odniesień.
- Analizuj jeden lub wiele związków referencyjnych klasy MS za pomocą UPLC-MS. Tę samą metodę LC-MS należy stosować do analizy związków odniesienia i metabolitów oczyszczonych jednocześnie z białkiem będącym przedmiotem zainteresowania.
Uwaga: W tym badaniu przeanalizowano zestaw prawie 300 dipeptydów i wykorzystano go jako bibliotekę związków referencyjnych. - Użyj oprogramowania do analizy (patrz tabela materiałów), aby otworzyć plik surowego chromatogramu i wyszukać określone m/z i RT związane z mierzonym związkiem odniesienia (patrz Podręcznik użytkownika).
Uwaga: Metabolity wtórne różnią się rodzajami jonizacji. Sprawdź obecność wspólnych adduktów, wyszukując masę jonów równą M-1.007276, M+1.007276, M+18.033823 i M+22.989218 odpowiednio dla [M-H], [M+H], [M+NH4] i [M+Na]. - Użyj arkusza kalkulacyjnego, aby otworzyć wyeksportowany plik "Analityk" uzyskany po przetworzeniu chromatogramów i wyszukać określoną masę jonów. Porównaj RT cechy masy zmierzonej w doświadczeniu i RT związku odniesienia. Dopuszcza się odchylenie 0,005 Da dla m/z i 0,1 minuty dla RT.
- Analizuj jeden lub wiele związków referencyjnych klasy MS za pomocą UPLC-MS. Tę samą metodę LC-MS należy stosować do analizy związków odniesienia i metabolitów oczyszczonych jednocześnie z białkiem będącym przedmiotem zainteresowania.
- Aby przetestować znaczenie wzbogacenia metabolitów współoczyszczonego określonym białkiem między próbkami (linia z nadekspresją białka będącego przedmiotem zainteresowania w porównaniu z kontrolą EV), porównaj wartości pików za pomocą dwustronnego, niesparowanego testu t-Studenta, a następnie wielokrotnej korekcji porównawczej (np. Korekcja wskaźnika fałszywych odkryć Benjaminiego i Hochberga lub poprawka Bonferroniego).
Wyniki
W oryginalnym badaniu trzy A. thaliana Geny NDPK wykazano w nadmiernej ekspresji w kulturach zawiesinowych komórek PSB-L pod kontrolą konstytutywnego promotora 35S14 (Rysunek 1). Tandemowy znacznik powinowactwa połączono z końcem karboksylowym lub aminowym białka przynęty. Kompleksy oczyszczone metodą powinowactwa poddano ekstrakcji w układzie MTBE/metanol/woda16Białka i małe cząsteczki wyizolowane metodą affinity-pulling zidentyfikowano za pomocą MS (Tabele S2 i S3).
Aby skorygować wyniki pod kątem fałszywie dodatnich, wykorzystano próbki ślepe w celu wyeliminowania zanieczyszczeń małymi cząsteczkami pochodzącymi z odczynników chemicznych i materiałów laboratoryjnych. Ponadto, metabolity i białka wiążące się z samym tagiem powinowactwa lub żywicą zostały uwzględnione poprzez zastosowanie linii kontrolnych EV. W celu wyłonienia wyników prawdziwie dodatnich zastosowano dwustronny nieparzysty test t Studenta oraz korektę współczynnika odkryć fałszywych Benjamini & Hochberg, aby zidentyfikować metabolity (Tabela S4) i białka (Tabela S5) znacząco wzbogacone w eksperymentach AP z NDPKs (NDPKs z tagami N- i C-końcowymi) w porównaniu z liniami kontrolnymi EV (FDR < 0,1). Należy zauważyć, że w poprzedniej pracy zastosowano kryteria obecności/braku w celu wyznaczenia interaktorów białkowych i małocząsteczkowych.
Przedstawiono reprezentatywne wyniki dla NDPK1, natomiast dane metaboliczne koncentrują się na dipeptydach, stanowiących nową klasę regulatorów małocząsteczkowych badanych w naszej grupie. Analiza proteomiczna ujawniła 26 domniemanych partnerów białkowych NDPK1. Po dodatkowym przefiltrowaniu białek współlokalizujących się w tym samym przedziale podkomórkowym co NDPK1 (cytozol), lista została zawężona do 13 domniemanych interaktorów białkowych. Wśród zidentyfikowanych białek znalazły się transferaza S-glutationowa, dwa czynniki inicjacji elongacji, tubulina oraz hydrataza akonianowa. Analiza metabolomiczna wykazała cztery dipeptydy: Val-Leu, Ile-Glu, Leu-Ile i Ile-Phe, które specyficznie eluowały wspólnie z NDPK1 (Rysunek 2). Należy zauważyć, że wszystkie cztery dipeptydy posiadają hydrofobowy resztę w swoim N-końcu, co sugeruje wspólną specyficzność wiązania.
W celu poszukiwania znanych kompleksów białko-białko oraz białko-metabolit przeszukaliśmy bazę danych Stitch pod kątem 13 zidentyfikowanych białek i czterech dipeptydów.25 (Rysunek 3). Można było sformułować kilka obserwacji: (i) Żaden z interaktorów nie był wcześniej raportowany dla NDPK1. (ii) Zgłoszono, że ortolog APX1 oddziałuje z członkiem rodziny dehydrogenaz aldehydowych ALDH7B4, natomiast czynnik inicjacji translacji FBR12 z innym czynnikiem inicjacji translacji kodowanym przez gen AT2G40290. (iii) Zidentyfikowane dipeptydy nie mają raportowanych partnerów białkowych. Współeluowane dipeptydy nie były wcześniej raportowane jako powiązane z żadnym z odnalezionych białek roślinnych. Pełnią one jednak istotne role w innych organizmach: Leu-Ile, np.wykazuje efekt aktywujący neurotrofin w ludzkiej linii komórkowej26Należy zauważyć, że eksperyment ten nie pozwala na zidentyfikowanie dokładnej topologii układu. Na przykład dipeptyd może oddziaływać bezpośrednio z NDPK1, ale może być również powiązany z dowolnym z białek współoczyszczonych.
Podsumowując, nasze wyniki wskazują, że ustalona procedura, wykorzystująca AP wraz ze spektrometrią mas, ułatwia identyfikację interaktorów białko-białko oraz białko-mała cząsteczka i pomaga w generowaniu obszernych informacji na temat interaktomu białka docelowego.
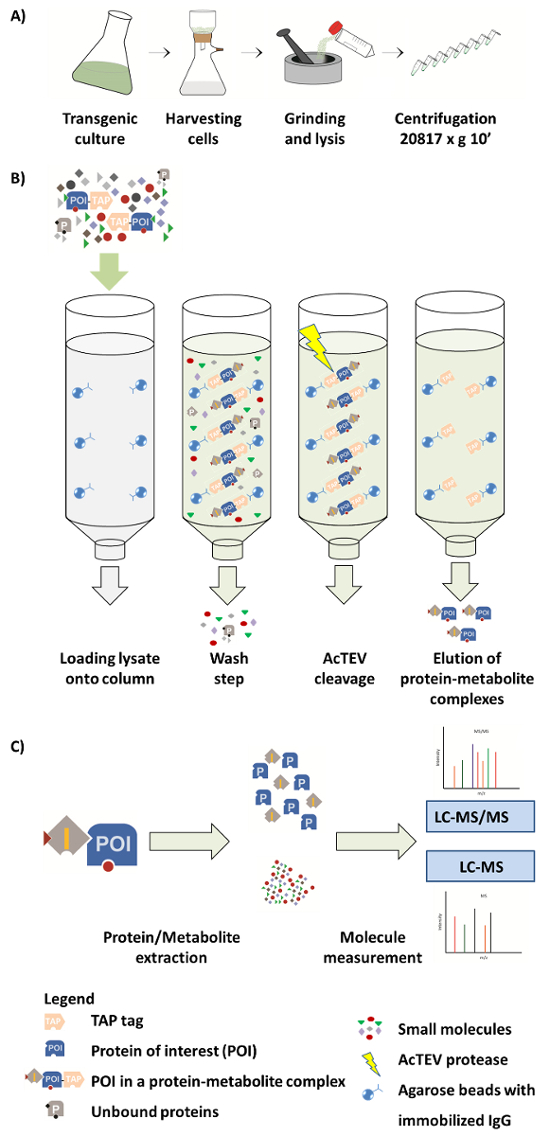
Rysunek 1. Schemat przebiegu analizy AP-MS. (A) Przygotowanie natywnej frakcji rozpuszczalnej z kultury komórek roślinnych. (B) Kolejne etapy procedury AP. Po nałożeniu próbki na kolumnę białko docelowe (POI) połączone z tagiem TAP wiąże się z przeciwciałem IgG unieruchomionym na kuleczkach agarozy. Przemywanie kolumny umożliwia usunięcie nie związanych białek i metabolitów. Po przeprowadzeniu cięcia za pomocą proteazy AcTEV eluowane są kompleksy białka POI z metabolitami. (C) Rozdział kompleksów na frakcję białkową i frakcję metabolitów, a następnie półilościowa analiza MS. Część tego rysunku została powielona z pracy Luzarowski i inni 201714. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej figury.
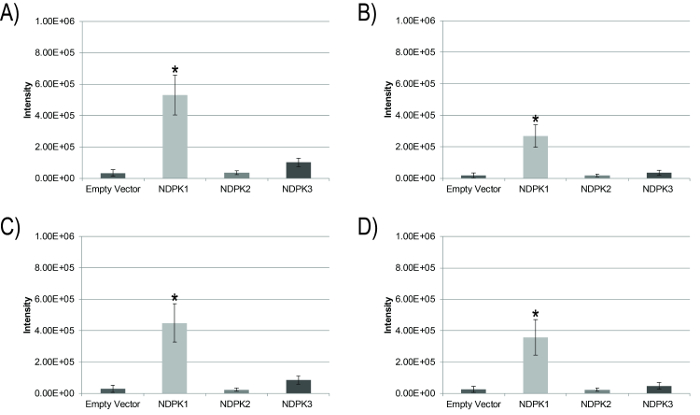
Rysunek 2. Dipeptydy współeluujące specyficznie z NDPK1. Średnie intensywności czterech dipeptydów Val-Leu (A), Ile-Glu (B), Leu-Ile (C), oraz Ile-Phe (D) wykreślono wyniki pomiarów z eksperymentu AP. Wszystkie cztery dipeptydy wykazują istotne wzbogacenie w próbkach NDPK1 w porównaniu z kontrolą EV (gwiazdki oznaczają FDR < 0,1). Słupki błędów reprezentują błąd standardowy dla 6 pomiarów (3 powtórzeń białek z tagiem N-końcowym i 3 z tagiem C-końcowym). Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej figury.
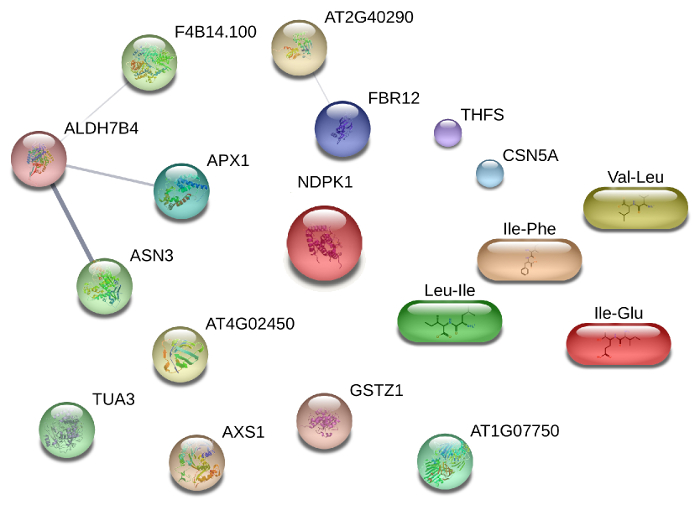
Rycina 3. Sieć interakcji wszystkich cząsteczek współeluujących z NDPK1, wyszukiwana w bazie danych STITCH z uwzględnieniem wyłącznie wcześniejszych dowodów eksperymentalnych i bazodanowych (poziom ufności > 0.2). Wyższa wiarygodność wskazuje na większe prawdopodobieństwo wystąpienia oddziaływania i jest obliczana na podstawie zgromadzonych danych. Aby wyświetlić powiększoną wersję tej ryciny, kliknij tutaj.
Tabela S1. Tabela wynikowa MaxQuant „parameters.txt”. Tabela zawiera wartości progowe dla identyfikacji i kwantyfikacji, a także informacje o wykorzystanych bazach danych. Proszę kliknąć tutaj, aby pobrać ten plik.
Tabela S2. Informacje z tabeli wynikowej MaxQuant „proteinGroups.txt”Tabela zawiera listę wszystkich zidentyfikowanych grup białek, intensywności oraz dodatkowe informacje, takie jak liczba unikalnych peptydów i wynik. Proszę kliknąć tutaj, aby pobrać ten plik.
Tabela S3. Plik wynikowy zawierający analizę metabolitów polarnych. Tabela zawiera listę wszystkich zidentyfikowanych cech masowych, charakteryzujących się określonymi wartościami m/z, RT i intensywnością. Proszę kliknąć tutaj, aby pobrać ten plik.
Tabela S4. Dipeptydy znalezione w próbkach AP, w których jako przynęta zastosowano NDPK1, NDPK2 lub NDPK3. Z listy wykluczono dipeptydy obecne w próbkach ślepych. Dla każdego NDPK przeprowadzono analizę trzech niezależnych linii (oznaczonych w terminalu N- lub C-) w trzech powtórzeniach. Test t Studenta t-testowanie i dalsza korekta pwartość p przy użyciu metody Benjamini-Hochberga & Metoda Hochberga została wykorzystana do określenia istotnie wzbogaconych partnerów interakcyjnych NDPK (FDR < 0.1). Podano ΔRT obliczone w stosunku do związków odniesienia oraz Δppm w stosunku do masy monoizotopowej podanej w bazie Metlin27. Prosimy kliknąć tutaj, aby pobrać ten plik.
Tabela S5. Białka współoczyszczone z NDPK1. Dwie niezależne linie (oznaczone w obrębie N- lub C-końca) dla każdej NDPK analizowano w trzech powtórzeniach. Test t Studenta t-testowanie i dalsza korekta pwartość p przy użyciu metody Benjamini-Hochberga & Do wyznaczenia istotnie wzbogaconych partnerów interakcyjnych NDPK wykorzystano metodę Hochberga (FDR < 0.1). Proszę kliknąć tutaj, aby pobrać ten plik.
Dyskusja
Przedstawiony protokół pozwala na równoległą identyfikację kompleksów PP i PM docelowego białka. Od klonowania do ostatecznych wyników, eksperyment można zakończyć w ciągu zaledwie 8-12 tygodni. Pełne AP zajmuje około 4-6 godzin dla zestawu od 12 do 24 próbek, dzięki czemu nasz protokół nadaje się do analizy średnioprzepustowej.
Protokół, mimo że jest ogólnie prosty, składa się z kilku krytycznych kroków. (i) Wystarczająca ilość białka wejściowego i kulek powinowactwa ma kluczowe znaczenie dla osiągnięcia dynamicznego zakresu wykrywania metabolitów. Skuteczna liza komórek jest zatem kluczowym krokiem w procedurze. Słaba wydajność białka może być konsekwencją niedostatecznego sproszkowania materiału lub nieoptymalnego stosunku lizy buforu do materiału. (ii) Należy zadbać o to, aby stosowane odczynniki były przyjazne dla stwardnienia rozsianego. Należy unikać silnych detergentów, glicerolu lub nadmiernych ilości soli, ponieważ zakłócają one wykrywanie stwardnienia rozsianego. (iii) Kulki agarozy nie powinny być nadmiernie suszone podczas etapów mycia, a podczas korzystania z kolektora próżniowego ważne jest, aby stosować powolne natężenie przepływu, aby nie zniszczyć kulek ani nie wpłynąć na złożoną stabilność.
Istnieje kilka ważnych możliwych modyfikacji przedstawionego protokołu: (i) Używamy konstytutywnego promotora CaMV35S, aby zmaksymalizować ilość białka przynęty. Nadekspresja, choć bardzo przydatna, może mieć poważny wpływ na homeostazę komórkową28 i prowadzić do powstawania fizjologicznie nieistotnych interakcji. Ekspresja znakowanych białek przy użyciu natywnych promotorów i, jeśli to możliwe, w tle utraty funkcji, jest uważana za lepszą w odzyskiwaniu prawdziwych interakcji biologicznych. W przypadku białek, które normalnie nie ulegają ekspresji w kulturach komórek roślinnych, tło roślinne może okazać się niezbędne do zidentyfikowania odpowiednich interaktorów. (ii) Podczas pracy z białkami błonowymi bufor do lizy musi być uzupełniony detergentem kompatybilnym ze MS. (iii) Wprowadzenie drugiego etapu oczyszczania powinowactwa mogłoby poprawić stosunek wyników fałszywie dodatnich do prawdziwie dodatnich i wyeliminować potrzebę kontroli EV29. Nowatorski znacznik tandemowy z dwoma niezależnymi miejscami rozszczepienia proteazy stanowi atrakcyjną alternatywę dla etapu chromatografii wykluczającej rozmiar dodanego przez Maedę i wsp. 201411, który jest zarówno pracochłonny, jak i czasochłonny.
Najpoważniejszą wadą AP jest wysoki odsetek fałszywych alarmów. Powodów jest wiele. Wspomniano już o konstytutywnej nadekspresji. Innym źródłem fizjologicznie nieistotnych interakcji, chyba że pracuje się z izolowanymi organellami, jest otrzymywanie lizatów całokomórkowych zawierających mieszaniny białek i metabolitów z różnych przedziałów subkomórkowych. Lokalizacja subkomórkowa powinna być używana do filtrowania prawdziwych interaktorów. Niemniej jednak większość wyników fałszywie dodatnich wynika z niespecyficznego wiązania między białkami a żywicami agarozowymi. Wprowadzenie drugiego etapu oczyszczania, jak opisano powyżej, oferuje najlepsze rozwiązanie problemu, jednak wiąże się z kosztem czasu i przepustowości. Co więcej, słabsza interakcja może zostać utracona wraz z wydłużaniem się protokołu. Kolejnym zastrzeżeniem AP jest to, że pomimo wyczerpujących informacji, które dostarcza na temat interaktomii białka docelowego, rozróżnienie między bezpośrednimi i pośrednimi celami białka przynęty jest niemożliwe. Potrzebne są ukierunkowane podejścia bimolekularne, aby potwierdzić interakcje.
AP w połączeniu z metabolomiką opartą na stwardnieniu rozsianym wykorzystano do zbadania kompleksów białkowych w S. cerevisiae12. Praca ta, wraz z naszą wcześniejszą obserwacją13 , że podobnie jak lipidy, związki polarne i półpolarne pozostają związane z kompleksami białkowymi wyizolowanymi z lizatów komórkowych, dostarczyły koncepcyjnych podstaw dla przedstawionego protokołu. Nasz protokół charakteryzuje się trzema unikalnymi punktami: (i) W przeciwieństwie do drożdży12, pokazuje, że AP nadaje się do pobierania nie tylko hydrofobowych, ale także hydrofilowych ligandów białkowych. (ii) Wprowadzając protokół ekstrakcji "trzy w jednym", pojedynczy AP może być wykorzystany do badania interakcji białek i metabolitów białka przynęty. (iii) Dostosowaliśmy protokół do komórek roślinnych.
Przyszłe wysiłki będą koncentrować się na stworzeniu nowatorskiego znacznika tandemowego z dwoma niezależnymi miejscami rozszczepienia proteazy. Chcielibyśmy również zbadać przydatność protokołu do małych cząsteczek o niskiej liczebności, takich jak hormony roślinne.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Chcielibyśmy serdecznie podziękować Prof. Dr. Lotharowi Willmitzerowi za jego zaangażowanie w projekt, produktywne dyskusje i wspaniały nadzór. Jesteśmy wdzięczni dr Danielowi Vehelowi za pomoc w pomiarach proteomicznych SM. Jesteśmy wdzięczni Pani Änne Michaelis, która zapewniła nam nieocenioną pomoc techniczną przy pomiarach LC-MS. Ponadto dziękujemy dr Monice Kosmacz i dr Ewelinie Sokołowskiej za pomoc i zaangażowanie w prace nad oryginalnym rękopisem oraz Weronice Jasińskiej za wsparcie techniczne.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Sole bazalne Murashige i Skoog z minimalną ilością substancji organicznych | Sigma-Aldrich | M6899 | |
| Kwas 1-naftylooctowy | Sigma-Aldrich | N1641 | |
| Roztwór kinetyny | Sigma-Aldrich | K3253 | |
| Baza Tris | Sigma-Aldrich | 10708976001 | |
| NaCl | Sigma-Aldrich | S7653 | |
| MgCl2 | Carl Roth | 2189.1 | |
| EDTA | Sigma-Aldrich | 3609 | |
| NaF | Sigma-Aldrich | S6776 | |
| DTT | Sigma-Aldrich | D0632 | |
| PMSF | Sigma-Aldrich | P7626 | |
| E-64 inhibitor proteazy | Sigma-Aldrich | E3132 | |
| Inhibitor proteazy Koktajl | Sigma-Aldrich | P9599 | |
| Na3VO4 | Sigma-Aldrich | S6508 | |
| AcTEV Proteaza | Thermo Fischer Scientific | 12575015 | |
| Rotiphorese Żel 30 (37,5:1) | Carl Roth | 3029.2 | |
| TEMED | Carl Roth | 2367.3 | |
| PageRuler Prestained Protein Ladder | Thermo Fischer Scientific | 26616 | |
| SBP Tag Przeciwciało (SB19-C4) | Santa Cruz Biotechnology | sc-101595 | |
| Kozia anty-mysia IgG-HRP | Santa Cruz Biotechnology | sc-2005 | |
| Bradford Odczynnik | Sigma-Aldrich | B6916 | |
| Mieszanka trypsyny/Lys-C, klasa specyfikacji masowej | Promega | V5071 | |
| Mocznik | Sigma-Aldrich | U5128 | |
| Tiomocznik | Sigma-Aldrich | T8656 | |
| Wodorowęglan amonu | Sigma-Aldrich | 9830 | |
| Jodoacetamid | Sigma-Aldrich | I1149 | |
| MTBE | Biosolve | 138906 | |
| Metanol | Biosolve | 136806 | |
| Woda | Biosolve | 232106 | |
| Acetonitryl | Biosolve | 12006 | |
| Kwas trifluorooctowy | Biosolve | 202341 | |
| Kwas mrówkowy | Biosolve | 69141 | |
| Unimax 2010 Wytrząsarka platformowa | Heidolph | 5421002000 | |
| Siatka nylonowa (średnica drutu 34 &mikro; M, grubość 55 i mikro; M, otwarta przestrzeń 14%) | Prosepa | Na zamówienie | |
| Lejek szklany, 47 mm, 300 ml | Restek | KT953751-0000 | |
| Butelka filtrująca Top 500 ml 0,2 µ M Pes St | VWR International GmbH | 514-0340 | |
| Młyn miksujący MM 400 | Retsch GmbH | 207450001 | |
| IgG Sepharose 6 Fast Flow | GE Healthcare Life Sciences | 17-0969-02 | |
| Mobicol ""Classic"" z 2 różnymi nakrętkami bez filtrów | MoBiTec GmbH | M1002 | |
| Filtr (mały) 35 &mikro; Wielkość porów M, dla Mobicol M 1002, M1003, M1050 i M1053 | MoBiTec GmbH | M513515 | |
| Rotator rurowy o zmiennej prędkości SB 3 | Carl Roth | Y550.1 | |
| Talerze obrotowe do rotatorów SB 3 | Carl Roth | Y555.1 | |
| Resprep 24-portowe rozdzielacze SPE | Restek | 26080 | |
| Kolumny Finisterre C18/17% SPE 100mg / 1ml | próbek Teknokroma | TR-F034000 | |
| Fiolki | Klaus Trott Chromatographie-Zubehö r | 40 11 01 740 | |
| Uznanie PepMap 100 C18 LC | Kolumna Thermo Fischer Scientific | 164534 | |
| EASY-nLC 1000 Chromatograf cieczowy | Thermo Fischer Scientific | LC120 | |
| Q Exactive Plus Hybrydowy kwadrupolowo-orbitrapowy spektrometr | Thermo Fischer Scientific | IQLAAEGAAPFALGMBDK | |
| System UPLC Acquity | Wody | Na zamówienie | |
| ACQUITY UPLC HSS C18 Kolumna, 100A, 1.8 i mikro; M, 2.1 mM X 100 mM, 1/opk | Wody | ||
| Ultradźwiękowe kąpiele czyszczące o dużej mocy do wodnych roztworów czyszczących | Bandelin | RK 31 | |
| Genedata Expressionist | Genedata | NaN | |
| Xcalibur Software | Thermo Fischer Scientific | NaN | |
| MaxQuant | NaN | NaN |
Bibliografia
- Li, X., Snyder, M. Metabolites as global regulators: A new view of protein regulation. Bioessays. 33 (7), 485-489 (2011).
- Jacob, F., Monod, J. Genetic regulatory mechanisms in the synthesis of proteins. Journal of Molecular Biology. 3 (3), 318-356 (1961).
- Schlattner, U., et al. Dual Function of Mitochondrial Nm23-H4 Protein in Phosphotransfer and Intermembrane Transfer a cardiolipin-dependent switch. Journal of Biological Chemistry. 288 (1), 111-121 (2013).
- Ramírez, M. B., et al. GTP binding regulates cellular localization of Parkinson's disease-associated LRRK2. Human Molecular Genetics. , ddx161(2017).
- Jung, H. J., Kwon, H. J. Target deconvolution of bioactive small molecules: the heart of chemical biology and drug discovery. Archives of Pharmacal Research. 38 (9), 1627-1641 (2015).
- Harding, M. W., Galat, A., Uehling, D. E., Schreiber, S. L. A receptor for the immunosuppressant FK506 is a cis-trans peptidyl-prolyl isomerase. Nature. 341 (6244), 758-760 (1989).
- Lomenick, B., et al. Target identification using drug affinity responsive target stability (DARTS). Proceedings of the National Academy of Sciences of the United States of America. 106 (51), 21984-21989 (2009).
- Manabe, Y., Mukai, M., Ito, S., Kato, N., Ueda, M. FLAG tagging by CuAAC and nanogram-scale purification of the target protein for a bioactive metabolite involved in circadian rhythmic leaf movement in Leguminosae. Chemical Communications. 46 (3), 469-471 (2010).
- Pantoliano, M. W., et al. High-density miniaturized thermal shift assays as a general strategy for drug discovery. Journal of Biomolecular Screening. 6 (6), 429-440 (2001).
- Li, X., Snyder, M. Analyzing In vivo Metabolite-Protein Interactions by Large-Scale Systematic Analyses. Current Protocols in Chemical Biology. , 181-196 (2010).
- Maeda, K., Poletto, M., Chiapparino, A., Gavin, A. -C. A generic protocol for the purification and characterization of water-soluble complexes of affinity-tagged proteins and lipids. Nature Protocols. 9 (9), 2256-2266 (2014).
- Li, X., Gianoulis, T. A., Yip, K. Y., Gerstein, M., Snyder, M. Extensive in vivo metabolite-protein interactions revealed by large-scale systematic analyses. Cell. 143 (4), 639-650 (2010).
- Veyel, D., et al. System-wide detection of protein-small molecule complexes suggests extensive metabolite regulation in plants. Scientific Reports. 7, (2017).
- Luzarowski, M., et al. Affinity purification with metabolomic and proteomic analysis unravels diverse roles of nucleoside diphosphate kinases. Journal of Experimental Botany. , (2017).
- Van Leene, J., et al. Targeted interactomics reveals a complex core cell cycle machinery in Arabidopsis thaliana. Molecular systems biology. 6 (1), 397(2010).
- Giavalisco, P., et al. Elemental formula annotation of polar and lipophilic metabolites using 13C, 15N and 34S isotope labelling, in combination with high-resolution mass spectrometry. The Plant Journal. 68 (2), 364-376 (2011).
- Van Leene, J., et al. Isolation of transcription factor complexes from Arabidopsis cell suspension cultures by tandem affinity purification. Plant Transcription Factors: Methods and Protocols. , 195-218 (2011).
- Van Leene, J., et al. A tandem affinity purification-based technology platform to study the cell cycle interactome in Arabidopsis thaliana. Molecular & Cellular Proteomics. 6 (7), 1226-1238 (2007).
- Olsen, J. V., Ong, S. -E., Mann, M. Trypsin cleaves exclusively C-terminal to arginine and lysine residues. Molecular & Cellular Proteomics. 3 (6), 608-614 (2004).
- Cox, J., Mann, M. MaxQuant enables high peptide identification rates, individualized p.p.b.-range mass accuracies and proteome-wide protein quantification. Nature Biotechnology. 26 (12), 1367-1372 (2008).
- Cox, J., et al. Andromeda: A peptide search engine integrated into the MaxQuant environment. Journal of Proteome Research. 10 (4), 1794-1805 (2011).
- Tyanova, S., Temu, T., Cox, J. The MaxQuant computational platform for mass spectrometry-based shotgun proteomics. Nature Protocols. 11 (12), 2301(2016).
- Hooper, C. M., et al. SUBAcon: a consensus algorithm for unifying the subcellular localization data of the Arabidopsis proteome. Bioinformatics. 30 (23), 3356-3364 (2014).
- Katajamaa, M., Orešič, M. Data processing for mass spectrometry-based metabolomics. Journal of Chromatography A. 1158 (1-2), 318-328 (2007).
- Szklarczyk, D., et al. STITCH 5: augmenting protein-chemical interaction networks with tissue and affinity data. Nucleic Acids Research. 1277, (2015).
- Tanaka, K. -i, et al. Dipeptidyl compounds ameliorate the serum-deprivation-induced reduction in cell viability via the neurotrophin-activating effect in SH-SY5Y cells. Neurological Research. 34 (6), 619-622 (2012).
- Smith, C. A., et al. METLIN: A metabolite mass spectral database. Therapeutic Drug Monitoring. 27, 747-751 (2005).
- Bhattacharyya, S., et al. Transient protein-protein interactions perturb E. coli metabolome and cause gene dosage toxicity. Elife. 5, (2016).
- Rigaut, G., et al. A generic protein purification method for protein complex characterization and proteome exploration. Nature Biotechnology. 17 (10), 1030-1032 (1999).
Przedruki i uprawnienia
