Spraye fungicydowe na kwitnące rośliny mogą narażać samotne pszczoły na wysokie stężenia pozostałości fungicydów przenoszonych przez pyłki. Wykorzystując eksperymenty laboratoryjne z udziałem larw pszczół hodowanych in vitro, badanie to bada interaktywne efekty spożywania pyłku poddanego działaniu fungicydów pochodzącego z roślin żywicielskich i niebędących żywicielami.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
In vitro Hodowla pszczół samotnic: narzędzie do oceny czynników ryzyka larw
W tym artykule
Podsumowanie
Streszczenie
Chociaż pszczoły samotnice świadczą kluczowe usługi zapylania dla dzikich i zarządzanych upraw, ta bogata gatunkowo grupa została w dużej mierze pominięta w badaniach nad regulacją pestycydów. Ryzyko narażenia na pozostałości fungicydów może być szczególnie wysokie, jeśli oprysk występuje na roślinach żywicielskich lub w ich pobliżu, podczas gdy pszczoły zbierają pyłek, aby zaopatrzyć swoje gniazda. W przypadku gatunków Osmia, które spożywają pyłek z wybranej grupy roślin (oligolekty), niemożność wykorzystania pyłku z roślin niebędących żywicielami może zwiększyć ich czynnik ryzyka toksyczności związanej z fungicydami. Manuskrypt ten opisuje protokoły stosowane do pomyślnego chowu oligolektycznych pszczół murarek, Osmia ribifloris sensu lato, od stadium jaja do stadium przedsłupkowego na płytkach hodowli komórkowych w znormalizowanych warunkach laboratoryjnych. Pszczoły hodowane in vitro są następnie wykorzystywane do badania wpływu ekspozycji na fungicydy i źródła pyłku na kondycję pszczół. Opierając się na w pełni skrzyżowanym modelu czynnikowym 2 × 2, eksperyment bada główne i interaktywne skutki ekspozycji na fungicydy i źródło pyłku na sprawność larw, określaną ilościowo za pomocą biomasy przepoczwarkowej, czasu rozwoju larw i przeżywalności. Główną zaletą tej techniki jest to, że wykorzystanie pszczół hodowanych in vitro zmniejsza naturalną zmienność tła i umożliwia jednoczesną manipulację wieloma parametrami eksperymentalnymi. Opisany protokół stanowi wszechstronne narzędzie do badania hipotez obejmujących zestaw czynników wpływających na zdrowie pszczół. Aby działania na rzecz ochrony pszczół przyniosły znaczący, trwały sukces, kluczowe okażą się takie spostrzeżenia na temat złożonej interakcji czynników fizjologicznych i środowiskowych powodujących spadek liczebności pszczół.
Wprowadzenie
Biorąc pod uwagę ich rolę jako dominującej grupy owadów zapylających1, globalny spadek populacji pszczół stanowi zagrożenie dla bezpieczeństwa żywnościowego i stabilności ekosystemów2,3,4,5,6,7. Tendencje spadkowe w populacjach pszczół hodowlanych i dzikich przypisuje się kilku wspólnym czynnikom ryzyka, w tym fragmentacji siedlisk, pojawianiu się nowych pasożytów i patogenów, utracie różnorodności genetycznej oraz wprowadzeniu gatunków inwazyjnych3,4,7,8,9,10,11,12. W szczególności gwałtowny wzrost stosowania pestycydów (np. neonikotynoidów) został bezpośrednio powiązany ze szkodliwymi skutkami dla pszczół13,14,15. Liczne badania wykazały, że synergizm między neonikotynoidami a fungicydami hamującymi biosyntezę ergosterolu (EBI) może prowadzić do wysokiej śmiertelności wielu gatunków pszczół16,17,18,19,20,21,22. Niemniej jednak fungicydy, długo uznawane za „bezpieczne dla pszczół”, są nadal opryskiwane na kwitnące uprawy bez większej kontroli23. Udokumentowano, że pszczoły zbieraczki rutynowo przynoszą ładunki pyłku zanieczyszczone pozostałościami fungicydów24,25,26. Spożycie takiego pyłku obciążonego fungicydami może powodować wysoką śmiertelność larw pszczół27,28,29,30 oraz szereg efektów subletalnych u dorosłych osobników16,31,32,33,34. Niedawne badanie sugeruje, że fungicydy mogą powodować straty w populacjach pszczół poprzez zmianę składu społeczności drobnoustrojów w pyłku przechowywanym w ulu, zakłócając tym samym krytyczne symbiozy między pszczołami a mikrobami przenoszonymi przez pyłek35.
Choć pszczoły samotnice są kluczowe dla zapylania wielu roślin dziko rosnących i uprawnych36,37,38, ta zróżnicowana grupa zapylaczy otrzymywała znacznie mniejszą uwagę w badaniach dotyczących monitorowania pestycydów. Gniazdo dorosłej samotnej samicy zawiera od 5 do 10 zamkniętych komórek lęgowych, z których każda jest wyposażona w określoną masę zebranego przez matkę pyłku i nektaru oraz jedno jajo39. Po wykluciu się larwy polegają na przydzielonych zapasach pyłku oraz towarzyszącej im mikrobiocie przenoszonej przez pyłek, aby uzyskać odpowiednie odżywienie40,41. Ze względu na brak korzyści wynikających z trybu życia społecznego, pszczoły samotnice mogą być bardziej podatne na ekspozycję na pestycydy42. Na przykład, podczas gdy straty w pszczołach społecznych po oprysku mogą być w pewnym stopniu zrekompensowane przez robotnice i nowo wykluwający się lęg, śmierć pojedynczej dorosłej samotnej samicy kończy całą aktywność rozrodczą43. Takie różnice w podatności podkreślają potrzebę włączenia zróżnicowanych taksonów pszczół do badań ekotoksykologicznych, aby zapewnić odpowiednią ochronę zarówno pszczołom hodowlanym, jak i dzikim. Jednakże, poza nielicznymi badaniami, analizy wpływu ekspozycji na fungicydy koncentrowały się głównie na pszczołach społecznych18,23,32,44,45,46,47,48,49.
Pszczoły samotnice z rodzaju Osmia (Rysunek 1) są wykorzystywane na całym świecie jako wydajne zapylacze wielu ważnych upraw owoców i orzechów39,50,51,53,53. Podobnie jak inne zarządzane grupy zapylaczy24,54,55,56,57,58, dorosłe pszczoły z rodzaju Osmia są rutynowo narażone na fungicydy rozpylane na kwitnących uprawach44. Dorosłe samice żerujące na niedawno opryskanych uprawach mogą zbierać i gromadzić w komórkach lęgowych pyłek zanieczyszczony fungicydami, który później stanowi jedyny pokarm dla rozwijających się larw. Spożywanie skażonych zapasów pyłku może w konsekwencji narazić larwy na działanie pozostałości fungicydów42. Ryzyko ekspozycji może być wyższe u gatunków oligolektycznych, które żerują tylko na kilku blisko spokrewnionych roślinach żywicielskich59,60,61. Niektóre pszczoły z rodziny Megachilidae zdają się na przykład preferencyjnie żerować na niskiej jakości pyłku roślin z rodziny Asteraceae, aby ograniczyć pasożytnictwo62. Jednak stopień, w jakim fungicydy wpływają na kondycję larw u oligolektycznych pszczół samotnic, nie został empirycznie określony. Celem niniejszego badania jest opracowanie protokołu do testowania głównych i interakcyjnych efektów ekspozycji na fungicydy oraz źródła pyłku na kondycję pszczół samotnic hodowanych in vitro. W celu przeprowadzenia badań można komercyjnie pozyskać jaja O. ribifloris sensu lato (s.l.) (Tabela materiałów). Populacja ta jest idealna ze względu na jej znaczenie jako rodzimego zapylacza oraz silną predylekcję do bogatej w nektar rośliny Mahonia aquifolium (mahonia liściasta) występującej w regionie53,63,64 (Rysunek 2).
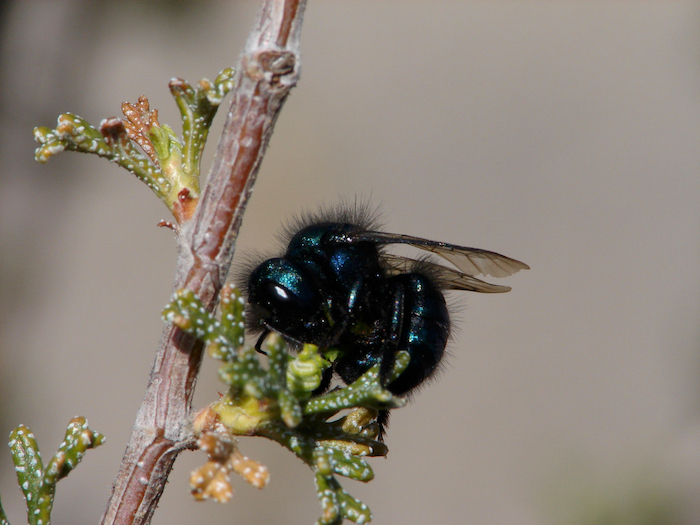
Rycina 1. Zdjęcie o wysokiej rozdzielczości dorosłego osobnika Osmia ribifloris. Kredyt fotograficzny: Dr Jim Cane, entomolog badawczy, USDA-ARS Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
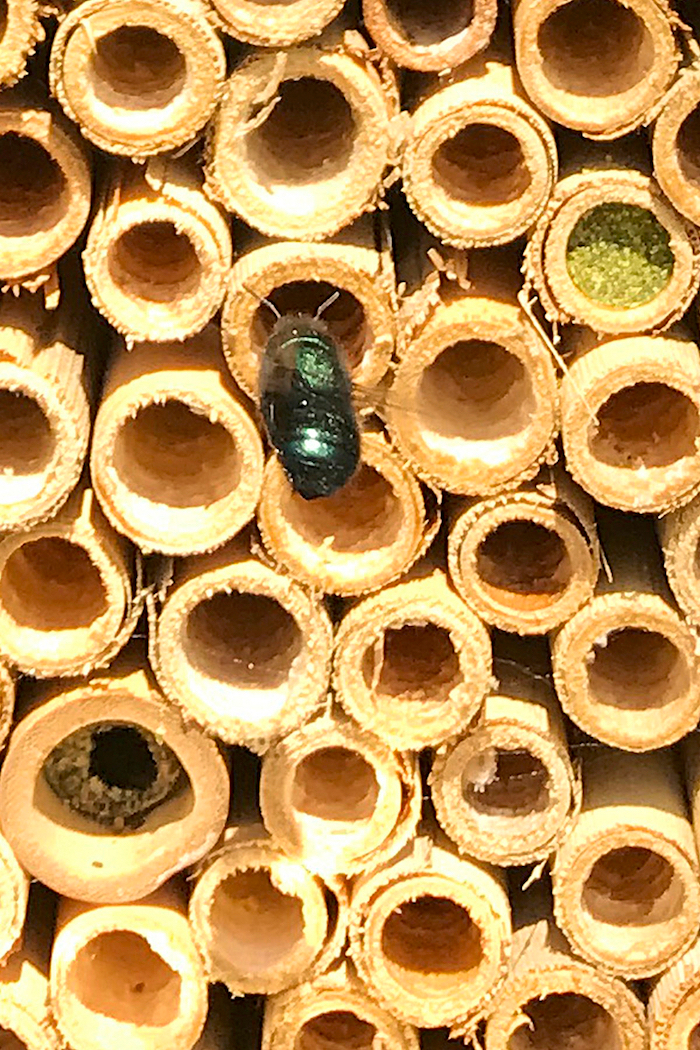
Rysunek 2. Trzciny gniazdowe Osmia ribifloris (s.l.) z gniazdującą samicą na pierwszym planie. Przegrody komór i korki końcowe trzcin są zbudowane z przeżutych liści. Zdjęcie: Mr. Kimball Clark, NativeBees.com Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Pierwszym celem niniejszego badania jest ocena wpływu spożywania pyłku traktowanego fungicydem na kondycję larw (mierzoną czasem rozwoju i biomasą przepoczwarki). Choć ekspozycja na powszechnie stosowany fungicyd propikonazol została powiązana ze zwiększoną śmiertelnością dorosłych pszczół u kilku gatunków 23,24,32,44,45,54,55,56,57,58,65,66,67, jego wpływ na larwy pszczół jest słabiej poznany. Drugim celem badania jest ocena skutków spożywania pyłku roślin niebędących żywicielami na kondycję larw. Poprzednie badania wskazują, że larwy pszczół oligoletycznych nie rozwijają się, gdy są zmuszone do spożywania pyłku roślin niebędących ich żywicielami68. Takie wyniki można przypisać różnicom w fizjologii pszczół69, biochemii pyłku70 oraz korzystnemu mikrobiomowi związanemu z naturalnymi zapasami pyłku71. Trzecim celem niniejszego badania jest ocena interakcyjnych efektów traktowania fungicydem i składu pyłku w diecie na kondycję larw.
Znane jest, że liczne cechy biologiczne, w tym wielkość ciała matki, tempo zaopatrywania, strategia żerowania oraz ilość pyłku72,73,74,75, wpływają na kondycję larw u pszczół samotnic. Czynniki te mogą wprowadzać znaczną zmienność między trzcinami, co stanowi wyzwanie przy opracowywaniu rzetelnych planów doświadczalnych podczas oceny stanu zdrowia larw. Ponadto, ze względu na to, że rozwój larwalny zachodzi wewnątrz zamkniętych trzcin gniazdowych, efekty takiej zmienności u potomstwa są trudne do wizualizacji i ilościowego określenia bez zastosowania technik nieletalnych (Rysunek 3). Aby przezwyciężyć to wyzwanie, wszystkie hipotezy w niniejszym badaniu są testowane przy użyciu larw hodowanych poza trzcinami gniazdowymi. Plan doświadczalny stanowi w pełni skrzyżowany układ factorialny 2 × 2, w którym każdy czynnik składa się z 2 poziomów; Czynnik 1: ekspozycja na fungicyd (Fungicyd; Brak fungicydu); Czynnik 2: źródło pyłku (Pyłek rośliny żywicielskiej, Pyłek rośliny nieżywicielskiej). Pszczoły są hodowane od stadium jaja do stadium przedpoczwalkowego w sterylnych wielodołkowych płytkach do hodowli komórkowych w kontrolowanych warunkach laboratoryjnych. Każdy dołek jest indywidualnie zaopatrzony w zestandaryzowaną ilość zapasu pyłku oraz jedno jajo. Po wykluciu larwa żywi się przydzielonym pyłkiem w dołku, kończy rozwój larwalny i rozpoczyna przepoczwalkowanie. Dotychczasowe badania wykazały, że niewyjaśniona śmiertelność jest niższa u pszczół hodowanych w tym sztucznym środowisku niż u osobników występujących w naturze49,76. Wykorzystanie pszczół hodowanych in vitro ma kilka zalet w porównaniu z badaniami terenowymi: 1) minimalizuje ono zakłócający wpływ naturalnej zmienności i niekontrolowanych czynników typowych dla badań terenowych; 2) pozwala na jednoczesne testowanie wielu poziomów manipulacji dla każdego z interesujących czynników w grupach traktowanych; 3) liczba powtórzeń może być określona z góry, a czynniki doświadczalne dla każdego powtórzenia mogą być manipulowane indywidualnie; 4) zmienne odpowiedzi larwalnych można łatwo wizualizować i rejestrować niezależnie, nie niepokojąc sąsiednich larw; 5) protokół może zostać zmodyfikowany w celu dostosowania do bardziej złożonych planów doświadczalnych obejmujących wiele czynników i zmiennych odpowiedzi.
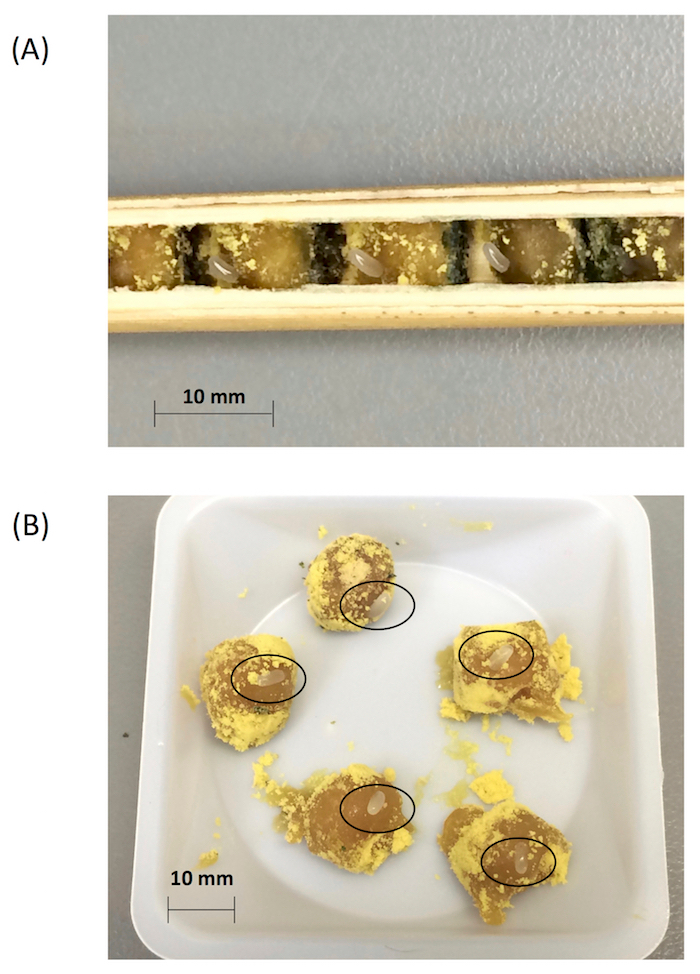
Rycina 3. Zawartość naturalnej trzciny gniazdowej Osmia ribifloris (s.l.). Zbliżenie na (A) rozciętą trzcinę ukazującą poszczególne komory, zapasy pyłku i przegrody oraz (B) świeżo zebrane zapasy pyłku i powiązane z nimi jaja (zaznaczone czarnym okręgiem). Prosimy kliknąć tutaj, aby wyświetlić większą wersję tej ryciny.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Przygotowanie roztworów propikonazolu do eksperymentów z ekspozycją na fungicyd
- Przygotuj 0,1x roztwór fungicydu, rozpuszczając odpowiednie objętości zakupionego komercyjnie propikonazolu 14,3% w sterylnej wodzie w dniu przeprowadzenia eksperymentu. Upewnij się, że do wszystkich zabiegów używany jest wyłącznie świeżo przygotowany roztwór fungicydu.
- Dodaj 23 µL 0,1x roztworu fungicydu na gram dostarczonego pyłku, aby uzyskać maksymalne stężenie propikonazolu wcześniej raportowane dla pyłku zbieranego przez pszczoły24 (0,361 PPM lub µg substancji czynnej g-1 pyłku).
2. Pobieranie jaj i zapasów pyłku gospodarza z trzcin Osmia
- Za pomocą wysterylizowanego skalpela przeprowadzić sekcję świeżo zamkniętych trzcin gniazdowych Osmia, rozdzielając trzcinę wzdłuż na dwie części w celu odsłonięcia poszczególnych komór.
UWAGA: Każde gniazdo może zawierać od 8 do 14 komór, a w każdej komorze znajduje się jedno jajo. - Dokonać wizualnej inspekcji trzcin w celu zidentyfikowania komór zawierających jaja samców, opierając się na wcześniej opublikowanych wytycznych77. Za pomocą wysterylizowanej zakrzywionej igły usunąć z trzciny gniazdowej każdą porcję zapasu pyłku wraz z przypisanym do niej jajem i umieścić je w czystej łódce wagowej.
- Delikatnie oddzielić jajo od zapasu za pomocą czystego, cienkiego pędzla malarskiego i zmierzyć masę świeżą zapasu pyłku oraz jaja przy użyciu standardowej wagi laboratoryjnej. Obliczyć średnią masę zapasów pyłku dla samców.
- Kolejne kroki należy wykonać z minimalną zwłoką, aby zmniejszyć ryzyko uszkodzenia jaja wskutek ekspozycji na nadmierną temperaturę i odwodnienia.
3. Przygotowanie zapasów pyłku rośliny żywicielskiej
- Wizualnie sprawdź zebrany przez matkę pyłek rośliny żywicielskiej wydobyty z komór lęgowych, aby upewnić się, że nie ma w nim pasożytów78. Aby zminimalizować ewentualne różnice wynikające z indywidualnego doboru matki, połącz zapasy pyłku w jedną masę w sterylnym szalce Petriego i dokładnie wymieszaj za pomocą wysterylizowanej igły.
- Podziel połączoną masę na nowe porcje zapasów pyłku, dbając o to, aby waga każdej zrekonstytuowanej porcji była w przybliżeniu równa średniej wadze naturalnie przydzielonego zapasu dla samca (Średnia ± SE, 0.35 ± 0.01 g, N = 42).
UWAGA: Ponieważ Osmia sp. przydziela mniejsze zapasy pyłku potomstwu męskiemu, skutkuje to niższą masą ciała larw samców w porównaniu do samic77. Aby uniknąć takich różnic wynikających z dymorfizmu płciowego, w eksperymentach należy wykorzystywać wyłącznie jaja samców.
4. Przygotowanie zapasu pyłku rośliny niebędącej żywicielem
- Zmiel komercyjnie zakupiony pyłek zebrany przez pszczoły miodowe na drobny proszek, używając standardowej laboratoryjnej młynarki kulowej.
- Biorąc pod uwagę zawartość wilgoci w zapasach pyłku gospodarza zbieranych przez matki (~20%), nawodnij proszek pyłkowy odpowiednią ilością 40% wysterylizowanego roztworu cukru79 i wymieszaj dokładnie, aby uzyskać konsystencję ciasta.
- Podziel masę na poszczególne porcje pyłku, z których każda powinna ważyć mniej więcej tyle, co średnia waga naturalnie przydzielonych zapasów dla samca.
UWAGA: Zawartość wilgoci w zapasach pyłku gospodarza zbieranych przez matki można wcześniej ustandaryzować, porównując masę świeżą i suchą zapasów pyłku z 30 losowo wybranych komór samców80. W celu uzyskania masy suchej zapasy pyłku należy poddać liofilizacji w liofilizatorze (1,5 Pa przez 72 h).
5. Przygotowanie wielodołkowych płytek do hodowli komórek
- Wyłożyć poszczególne dołki sterylnej 48-dołkowej płytki hodowlanej autoklawowanymi cynowymi kubeczkami (5 × 9 cm). Za pomocą sterylnej pęsety delikatnie rozszerzyć górną krawędź kapsułki, aby pomieściła ona porcję pyłku.
- Umieścić pojedynczą masę porcji pyłku gospodarza lub nie-gospodarza wewnątrz cynowego kubeczka, używając sterylnych narzędzi zgodnie z grupą badawczą.
UWAGA: Aby uniknąć kontaminacji krzyżowej, należy używać oddzielnych płytek dla grup badawczej i kontrolnej.
6. Dodawanie fungicydów
- Za pomocą sterylnego drewnianego patyczka wykonaj w centralnej części masy pyłkowej wgłębienie. Do każdej porcji pyłku używaj nowego patyczka.
- Do wgłębienia dodaj odpowiednią objętość roztworu fungicydu (dla grupy badawczej) lub sterylnej wody (dla grupy kontrolnej). Używając sterylnej pęsety, zaciśnij otwór wgłębienia, aby zminimalizować kontakt powierzchniowy fungicydu lub sterylnej wody z jajem.
- Upewnij się, że factorialny układ projektu eksperymentalnego jest zgodny z tym przedstawionym na schemacie (Rysunek 4).
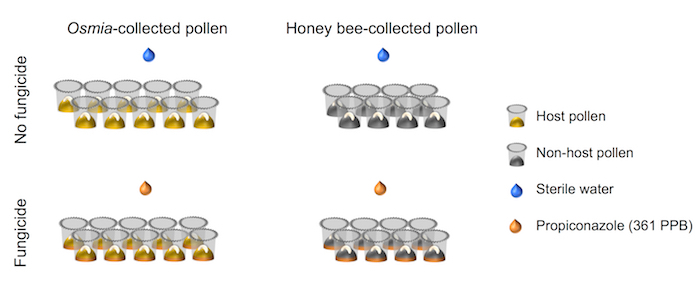
Rycina 4. Schematyczna reprezentacja układu eksperymentalnego. Eksperyment opiera się na pełnym przekrojowym układzie factorialnym 2 × 2. Czynnik 1 reprezentuje ekspozycję na fungicyd i składa się z 2 poziomów: (i) brak fungicydu (N = 10) oraz (ii) fungicyd (N = 10). Czynnik 2 reprezentuje źródło pyłku i składa się z 2 poziomów: (i) pyłek rośliny żywicielskiej (N = 8) oraz (ii) pyłek rośliny niebędącej żywicielem (N = 8). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
7. Hodowla i obserwacja larw
- Za pomocą czystego, cienkiego pędzla umieść losowo wybrane jajo samca na górnej powierzchni zapasu pyłku. Po rozmieszczeniu jaj we wszystkich zapasach zamknij pokrywę płytki hodowlanej, zabezpieczając jej rogi taśmą etykietującą.
- Umieść płytki wielodołkowe na czystej tacy i przykryj je ciemnym materiałem, aby zablokować dostęp bezpośredniego światła. Do tacy włóż płytkę 6-dołkową zawierającą 30 mL sterylnej wody, aby zapobiec wysychaniu. Pozostaw tace inkubacyjne w inkubatorze w temperaturze pokojowej, nie zakłócając procesu.
- Codziennie obserwuj płytki wielodołkowe pod mikroskopem stereotypowym, nie zdejmując pokryw. Sprawdź, czy larwy żyją, obserwując ich ruchy. Jeśli nie stwierdzono ruchu, usuń kubeczek z martwymi larwami i pozostałym zapasem pyłku. Pozwól wszystkim przeżyjącym larwom rozwijać się niezakłóconym w płytkach aż do osiągnięcia stadium przepoczwarnego.
- Wyjmij larwę z kubeczka, gdy osiągnie stadium przepoczwarcze41. Użyj pędzla, aby oczyścić kokon jedwabny z odchodów. Ostrożnie przetnij kokon jedwabny pod mikroskopem stereotypowym i wyjmij przepoczwarkę za pomocą pęsety gumowej.
- Postępuj z przepoczwarką delikatnie, aby narzędzia nie przebiły jej miękkiego ciała. Zapisz masę świeżą przepoczwarki (biomasa przepoczwarkowa) oraz czas rozwoju od jaja do stadium przepoczwarczego (czas rozwoju larwy).
UWAGA: Każda martwa larwa powinna zostać natychmiast usunięta, aby zapobiec niepożądanemu wzrostowi drobnoustrojów na zwłokach i pozostałym zapasach pyłku. Zmniejsza to ryzyko infekcji pozostałych zdrowych larw.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Kondycję larw określono za pomocą trzech wskaźników: (i) czasu rozwoju larw, (ii) biomasy przepoczwarkowej oraz (iii) procentu przeżywalności. Przeprowadzono dwuczynnikową analizę wariancji (ANOVA), przyjmując ekspozycję na fungicyd (dwa poziomy: brak fungicydu, fungicyd) oraz źródło pyłku (dwa poziomy: pyłek rośliny żywicielskiej, pyłek rośliny niebędącej żywicielem) jako zmienne niezależne, a czas rozwoju larw jako zmienną zależną. Główny efekt ekspozycji na fungicyd (F1,2...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Hodowla pszczół poza ich naturalnymi trzcinami lęgowymi, w warunkach laboratoryjnych, pozwala na przetestowanie wielu hipotez dotyczących przydatności larwalnej. W zakresie, w jakim niezidentyfikowane czynniki nadal powodują śmiertelność pszczół, badania oceny ryzyka z wykorzystaniem doświadczeń in vitro mogą pomóc w identyfikacji potencjalnych zagrożeń i informowaniu o praktykach zarządzania dla tej bogatej gatunkowo grupy dzikich zapylaczy 12,38,49,76,81,82....
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Autorzy dziękują Kimballowi Clarkowi i Timowi Kroghowi za dostarczenie trzciny gniazdującej Osmii, Meredith Nesbitt i Molly Bidwell za pomoc w laboratorium, doktorom Cameronowi Currie, Christelle Guédot, Terry'emu Griswoldowi, Michaelowi Branstetterowi i trzem anonimowym recenzentom za ich użyteczne komentarze, które poprawiły rękopis. Praca ta była wspierana przez fundusze przyznane przez USDA-Agricultural Research Service (Current Research Information System #3655-21220-001), Wisconsin Department of Agriculture, Trade, and Consumer Protection (#197199), National Science Foundation (w ramach grantu nr. DEB-1442148), Centrum Badań Bioenergetycznych Wielkich Jezior Departamentu Energii (DOE Biuro Nauki BER DE-FC02-07ER64494).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| jaja O. ribifloris sensu lato (s.l.) | Kaysville, Hrabstwo Davis, Utah, USA | ||
| Trzcina osmia | Nativebees.com | NA | Świeżo zatkane trzciny |
| Zestaw preparacyjny | VWR | 89259-964 | Sterylizuj przed użyciem |
| Szczypce długie | Husky | 1006 | |
| 6-dołkowe płytki hodowlane | VWR | 10062-892 | Sterylnie zamknięte |
| 48-dołkowe płytki hodowlane | VWR | 10062-898 | Sterylnie uszczelnione |
| szalki Petriego | VWR | 25373100 | Sterylnie uszczelnione |
| kwadratowe łodzie wagowe | VWR | 10770-448 | |
| Szczotka do włosów wielbłąda | Bioquip | 1153A Kapsułki | |
| cynowe | EA | D1021 | Sterylizuj przed użyciem |
| Sacharoza | VWR | 470302-808 | |
| Propikonazol 14.3 | Quali-Ppro | 60207-90-1 | Propikonazol 14,3% |
| Pyłek | pszczeli Pszczeli energetyzujący | 897098001244 | Nieprzetworzony, naturalny, surowy pyłek |
| Mikrowaga | VWR | 10204-990 | |
| Pulverisette | LAB SYNERGY INC. | ||
| Patyczki drewniane | VWR | 470146908 | Sterylizuj przed użyciem |
| Taśma uszczelniająca | VWR | 89097-912 | |
| Mikroskop | VWR | 89403-384 | |
| Taca do sadzenia | VWR | 470150-632 | |
| Etanol | VWR | BDH1158-4LP | |
| Probówka wirówkowa | VWR | 21008936 | |
| Mikrostrzykawka | Cole-Palmer | UX-07940-07 | |
| Pęseta gumowa | Amazon | B0135HWPN4 | |
| Igły do strzykawek | VWR | 89219-334 | |
| Liofilizator | Labcono | LFZ-1L | |
| Oprogramowanie statystyczne | SPSS | Wersja 21.0 |
Bibliografia
- Klein, A. -M., et al. Importance of pollinators in changing landscapes for world crops. P Roy Soc Lond B Bio. 274 (1608), 303-313 (2007).
- Biesmeijer, J. C. J., et al. Parallel declines in pollinators and insect-pollinated plants in Britain and the Netherlands. Science. 313 (5785), 351-354 (2006).
- Potts, S. G., Biesmeijer, J. C., Kremen, C., Neumann, P., Schweiger, O., Kunin, W. E. Global pollinator declines: Trends, impacts and drivers. Trends Ecol Evol. 25 (6), 345-353 (2010).
- Cameron, S. A., et al. Patterns of widespread decline in North American bumble bees. P Natl Acad Sci USA. 108 (2), 662-667 (2011).
- Gallai, N., Salles, J. M., Settele, J., Vaissière, B. E. Economic valuation of the vunerability of world agriculture confronted with pollinator decline. Ecol Econ. 68 (3), 810-821 (2009).
- Fontaine, C., Dajoz, I., Meriguet, J., Loreau, M. Functional diversity of plant-pollinator interaction webs enhances the persistence of plant communities. Plos Biol. 4 (1), 0129-0135 (2006).
- Kluser, S., Peduzzi, P. Global pollinator decline: a literature review. , UNEP/GRID Europe. (2007).
- Brown, M. J. F., Paxton, R. J. The conservation of bees: a global perspective. Apidologie. 40 (3), (2009).
- Lebuhn, G., et al. Detecting insect pollinator declines on regional and global scales. Conserv Biol. 27 (1), (2013).
- Vanengelsdorp, D., Meixner, M. D. A historical review of managed honey bee populations in Europe and the United States and the factors that may affect them. J Invertebr Pathol. , Suppl 103. S80-S95 (2010).
- Pettis, J. S., Delaplane, K. S. Coordinated responses to honey bee decline in the USA. Apidologie. 41 (3), 256-263 (2010).
- Sandrock, C., Tanadini, L. G., Pettis, J. S., Biesmeijer, J. C., Potts, S. G., Neumann, P. Sublethal neonicotinoid insecticide exposure reduces solitary bee reproductive success. Agr Forest Entomol. 16 (2), (2014).
- Van der Sluijs, J. P., Simon-Delso, N., Goulson, D., Maxim, L., Bonmatin, J. M., Belzunces, L. P. Neonicotinoids, bee disorders and the sustainability of pollinator services. Curr Opin Env Sust. 5 (3), (2013).
- Goulson, D., Nicholls, E., Botías, C., Rotheray, E. L. Bee declines driven by combined stress from parasites, pesticides, and lack of flowers. Science. 347 (6229), (2015).
- Johnson, R. M., Ellis, M. D., Mullin, C. A., Frazier, M. Pesticides and honey bee toxicity - USA. Apidologie. 41 (3), (2010).
- Iwasa, T., Motoyama, N., Ambrose, J. T., Roe, R. M. Mechanism for the differential toxicity of neonicotinoid insecticides in the honey bee, Apis mellifera. Crop Protection. 23 (5), 371-378 (2004).
- Glavan, G., Bozic, J. The synergy of xenobiotics in honey bee Apis mellifera: mechanisms and effects. Acta Biol. Slov. 56, 11-27 (2013).
- Biddinger, D. J., et al. Comparative toxicities and synergism of apple orchard pesticides to Apis mellifera (L.) and Osmia cornifrons (Radoszkowski). PLoS ONE. 8 (9), e72587(2013).
- Thompson, H. M., Fryday, S. L., Harkin, S., Milner, S. Potential impacts of synergism in honeybees (Apis mellifera) of exposure to neonicotinoids and sprayed fungicides in crops. Apidologie. 45 (5), 545-553 (2014).
- Jansen, J. -P., Lauvaux, S., Gruntowy, J., Denayer, J. Possible synergistic effects of fungicide-insecticide mixtures on beneficial arthropods. IOBC-WPRS Bulletin. 125, 28-35 (2017).
- Robinson, A., Hesketh, H., et al. Comparing bee species responses to chemical mixtures: Common response patterns? PLoS ONE. 12 (6), (2017).
- Sgolastra, F., Medrzycki, P., et al. Synergistic mortality between a neonicotinoid insecticide and an ergosterol-biosynthesis-inhibiting fungicide in three bee species. Pest Management Science. 73 (6), 1236-1243 (2017).
- Ladurner, E., Bosch, J., Kemp, W. P., Maini, S. Assessing delayed and acute toxicity of five formulated fungicides to Osmia lignaria and Apis mellifera. Apidologie. 36 (3), 449-460 (2005).
- Mullin, C. A., et al. High levels of miticides and agrochemicals in North American apiaries: implications for honey bee health. PloS one. 5 (3), e9754(2010).
- Pettis, J. S., Lichtenberg, E. M., Andree, M., Stitzinger, J., Rose, R., Vanengelsdorp, D. Crop pollination exposes honey bees to pesticides which alters their susceptibility to the gut pathogen Nosema ceranae. PloS one. 8 (7), e70182(2013).
- David, A., et al. Widespread contamination of wildflower and bee-collected pollen with complex mixtures of neonicotinoids and fungicides commonly applied to crops. Environ Int. 88, 169-178 (2016).
- Zhu, W., Schmehl, D. R., Mullin, C. A., Frazier, J. L. Four common pesticides, their mixtures and a formulation solvent in the hive environment have high oral toxicity to honey bee larvae. PloS one. 9 (1), e77547(2014).
- Simon-Delso, N., Martin, G. S., Bruneau, E., Minsart, L. A., Mouret, C., Hautier, L. Honeybee colony disorder in crop areas: The role of pesticides and viruses. PLoS ONE. 9 (7), (2014).
- Park, M. G., Blitzer, E. J., Gibbs, J., Losey, J. E., Danforth, B. N. Negative effects of pesticides on wild bee communities can be buffered by landscape context. P Roy Soc B-Biol Sci. 282 (1809), 20150299-20150299 (2015).
- Bernauer, O. M., Gaines-Day, H. R., Steffan, S. A. Colonies of bumble bees (Bombus impatiens) produce fewer workers, less bee biomass, and have smaller mother queens following fungicide exposure. Insects. 6 (2), 478-488 (2015).
- Williamson, S. M., Wright, G. A. Exposure to multiple cholinergic pesticides impairs olfactory learning and memory in honeybees. J Exp Biol. 216 (10), 1799-1807 (2013).
- Artz, D. R., Pitts-Singer, T. L. Effects of fungicide and adjuvant sprays on nesting behavior in two managed solitary bees, Osmia lignaria and Megachile rotundata. PLoS ONE. 10 (8), e0135688(2015).
- Pilling, E. D., Bromleychallenor, K. A. C., Walker, C. H., Jepson, P. C. Mechanism of synergism between the pyrethroid insecticide lambda-cyhalothrin and the imidazole fungicide prochloraz, in the honeybee (Apis mellifera L). Pestic Biochem Phys. 51 (1), 1-11 (1995).
- Johnson, R. M., Wen, Z., Schuler, M. A., Berenbaum, M. R. Mediation of pyrethroid insecticide toxicity to honey bees (Hymenoptera: Apidae) by cytochrome P450 monooxygenases. J. Econ. Entomol. 99 (4), 1046-1050 (2006).
- Steffan, S. A., Dharampal, P. S., Diaz-Garcia, L. A., Currie, C. R., Zalapa, J. E., Hittinger, C. T. Empirical, metagenomic, and computational techniques illuminate the mechanisms by which fungicides compromise bee health. JoVE. (128), e54631(2017).
- Batra, S. W. T. Solitary bees. Sci Am. 250 (2), 120-127 (1984).
- Linsley, E. G. The ecology of solitary bees. Hilgardia. 27 (19), 543-599 (1958).
- Garibaldi, L. A., et al. Wild Pollinators Enhance Fruit Set of Crops Regardless of Honey Bee Abundance. Science. 339 (6127), 1608-1611 (2013).
- Bosch, J., Kemp, W. P. How to manage the blue orchard bee. , Sustainable Agriculture Network. Washington, DC. (2001).
- Keller, A., Grimmer, G., Steffan-Dewenter, I. Diverse microbiota identified in whole intact nest chambers of the red mason bee Osmia bicornis (Linnaeus 1758). PLoS ONE. 8 (10), e78296(2013).
- Bosch, J., Kemp, W. P. Development and Emergence of the Orchard Pollinator Osmia lignaria (Hymenoptera: Megachilidae). Environmental Entomology. 29 (1), 8-13 (2000).
- Brittain, C., Potts, S. G. The potential impacts of insecticides on the life-history traits of bees and the consequences for pollination. Basic and Applied Ecology. 12 (4), 321-331 (2011).
- Arena, M., Sgolastra, F. A meta-analysis comparing the sensitivity of bees to pesticides. Ecotoxicology. 23 (3), 324-334 (2014).
- Ladurner, E., Bosch, J., Kemp, W. P., Maini, S. Foraging and nesting behavior of Osmia lignaria (Hymenoptera: Megachilidae) in the presence of fungicides: cage studies. J Econ Entomol. 101 (3), 647-653 (2008).
- Huntzinger, A. C. I., James, R. R., Bosch, J., Kemp, W. P. Fungicide tests on adult alfalfa leafcutting bees (Hymenoptera: Megachilidae). J Econ Entomol. 101 (4), 1088-1094 (2008).
- Tsvetkov, N., et al. Chronic exposure to neonicotinoids reduces honey bee health near corn crops. Science. 356 (6345), 1395-1397 (2017).
- Mao, W., Schuler, M. A., Berenbaum, M. R. Disruption of quercetin metabolism by fungicide affects energy production in honey bees (Apis mellifera). P Natl Acad Sci. 114 (10), 2538-2543 (2017).
- Blacquière, T., Smagghe, G., Van Gestel, C. A. M., Mommaerts, V. Neonicotinoids in bees: A review on concentrations, side-effects and risk assessment. Ecotoxicology. 21 (4), 973-992 (2012).
- Sgolastra, F., Tosi, S., Medrzycki, P., Porrini, C., Burgio, G. Toxicity of spirotetramat on solitary bee larvae, Osmia cornuta (Hymenoptera: Megachilidae), in laboratory conditions. Journal of Apicultural Science. 59 (2), 73-83 (2015).
- Mader, E., Spivak, M., Evans, E. Managing Alternative Pollinators. , Sustainable Agriculture Research and Education (SARE), US Dept. of Agriculture. (2010).
- Bosch, J., Kemp, W. P. Developing and establishing bee species as crop pollinators: the example of Osmia spp.(Hymenoptera: Megachilidae) and fruit trees. B Entomol Res. 92 (1), 3-16 (2002).
- Sampson, B. J., Rinehart, T. A., Kirker, G. T., Stringer, S. J., Werle, C. T. Phenotypic variation in fitness traits of a managed solitary bee, Osmia ribifloris (Hymenoptera: Megachilidae). J Econ Entomol. 108 (6), 2589-2598 (2015).
- Sampson, B. J., Cane, J. H., Kirker, G. T., Stringer, S. J., Spiers, J. M. Biology and management potential for three orchard bee species (Hymenoptera: Megachilidae): Osmia ribifloris Cockerell, O. lignaria (Say) and O.chalybea Smith with emphasis on the former. Acta Hort. 810, 549-555 (2009).
- Hladik, M. L., Vandever, M., Smalling, K. L. Exposure of native bees foraging in an agricultural landscape to current-use pesticides. Sci Total Environ. 542, 469-477 (2016).
- Long, E. Y., Krupke, C. H. Non-cultivated plants present a season-long route of pesticide exposure for honey bees. Nat Commun. 7, (2016).
- Krupke, C. H., Hunt, G. J., Eitzer, B. D., Andino, G., Given, K. Multiple routes of pesticide exposure for honey bees living near agricultural fields. PLoS ONE. 7 (1), e29268(2012).
- Stoner, K. A., Eitzer, B. D. Using a hazard quotient to evaluate pesticide residues detected in pollen trapped from honey bees (Apis mellifera) in Connecticut. PLoS ONE. 8 (10), e77550(2013).
- Sánchez-Bayo, F., Goulson, D., Pennacchio, F., Nazzi, F., Goka, K., Desneux, N. Are bee diseases linked to pesticides? - A brief review. Environ Int. 89, 7-11 (2016).
- Steffan-Dewenter, I., Klein, A. -M., Gaebele, V., Alfert, T., Tscharntke, T. Bee diversity and plant-pollinator interactions in fragmented landscapes. Specialization and generalization in plant-pollinator interactions. , 387-410 (2006).
- Kremen, C., Ricketts, T. Global perspectives on pollination disruptions. Conserv Biol. 14 (5), 1226-1228 (2000).
- Memmott, J., Waser, N. M., Price, M. V. Tolerance of pollination networks to species extinctions. P Roy Soc B-Biol Sci. 271 (1557), 2605-2611 (2004).
- Spear, D. M., Silverman, S., Forrest, J. R. K. Asteraceae pollen provisions protect Osmia mason bees (Hymenoptera: Megachilidae) from brood parasitism. The American Naturalist. 187 (6), 797-803 (2016).
- Rust, R. W. Biology of Osmia (Osmia) ribifloris Cockerell (Hymenoptera: Megachilidae). J Kansas Entomol Soc. 59, 89-94 (1986).
- Torchio, P. F. Osmia ribifloris, a native bee species developed as a commercially managed pollinator of highbush blueberry (Hymenoptera: Megachilidae). J Kansas Entomol Soc. 63 (633), 427-436 (1990).
- Sanchez-Bayo, F., Goka, K. Pesticide residues and bees - A risk assessment. PLoS ONE. 9 (4), e94482(2014).
- Kasiotis, K. M., Anagnostopoulos, C., Anastasiadou, P., Machera, K. Pesticide residues in honeybees, honey and bee pollen by LC-MS/MS screening: Reported death incidents in honeybees. Sci Total Environ. 485 (1), 633-642 (2014).
- Stanley, J., Sah, K., Jain, S. K., Bhatt, J. C., Sushil, S. N. Evaluation of pesticide toxicity at their field recommended doses to honeybees, Apis cerana and A. mellifera through laboratory, semi-field and field studies. Chemosphere. 119, 668-674 (2015).
- Praz, C. J., Müller, A., Dorn, S. Specialized bees fail to develop on non-host pollen: Do plants chemically protect their pollen? Ecology. 89 (3), 795-804 (2008).
- Sedivy, C., Müller, A., Dorn, S. Closely related pollen generalist bees differ in their ability to develop on the same pollen diet: Evidence for physiological adaptations to digest pollen. Funct Ecol. 25 (3), 718-725 (2011).
- Williams, N. M. Use of novel pollen species by specialist and generalist solitary bees (Hymenoptera: Megachilidae). Oecologia. 134, (2003).
- Graystock, P., Rehan, S. M., McFrederick, Q. S. Hunting for healthy microbiomes: determining the core microbiomes of Ceratina, Megalopta, and Apis bees and how they associate with microbes in bee collected pollen. Conserv Genet. 18 (3), 1-11 (2017).
- Bosch, J., Vicens, N. Relationship between body size, provisioning rate, longevity and reproductive success in females of the solitary bee Osmia cornuta. Behav Ecol Sociobiol. 60 (1), 26-33 (2006).
- Bosch, J., Vicens, N. Body size as an estimator of production costs in a solitary bee. Ecol Entomol. 27 (2), 129-137 (2002).
- Radmacher, S., Strohm, E. Factors affecting offspring body size in the solitary bee Osmia bicornis (Hymenoptera, Megachilidae). Apidologie. 41 (2), 169-177 (2010).
- Seidelmann, K. Open-cell parasitism shapes maternal investment patterns in the Red Mason bee Osmia rufa. Behav Ecol. 17 (5), (2006).
- Becker, M. C., Keller, A. Laboratory rearing of solitary bees and wasps. Insect Science. 23 (6), 918-923 (2016).
- Bosch, J. The nesting behaviour of the mason bee Osmia cornuta (Latr) with special reference to its pollinating potential (Hymenoptera, Megachilidae). Apidologie. 25, 84-93 (1994).
- Krunić, M., Stanisavljević, L., Pinzauti, M., Felicioli, A. The accompanying fauna of Osmia cornuta and Osmia rufa and effective measures of protection. B Insectol. 58 (2), 141-152 (2005).
- Elliott, S. E., Irwin, R. E., Adler, L. S., Williams, N. M. The nectar alkaloid, gelsemine, does not affect offspring performance of a native solitary bee, Osmia lignaria (Megachilidae). Ecol Entomol. 33 (2), 298-304 (2008).
- Toby Mordkoff, J. The Assumption(s) of Normality. , Available from: http://www2.psychology.uiowa.edu/faculty/mordkoff/GradStats/part 1/I.07 normal.pdf (2016).
- Hendriksma, H. P., Härtel, S., Steffan-Dewenter, I. Honey bee risk assessment: New approaches for in vitro larvae rearing and data analyses. Methods Ecol and Evol. 2 (5), 509-517 (2011).
- Aupinel, P., et al. Improvement of artificial feeding in a standard in vitro method for rearing Apis mellifera larvae. B Insectol. 58 (2), 107-111 (2005).
- Beekman, M., Ratnieks, F. L. W. Long-range foraging by the honey-bee, Apis mellifera L. Funct Ecol. 14 (4), 490-496 (2000).
- Gathmann, A., Tscharntke, T. Foraging ranges of solitary bees. J Anim Ecol. 71 (5), 757-764 (2002).
- Greenleaf, S. S., Williams, N. M., Winfree, R., Kremen, C. Bee foraging ranges and their relationship to body size. Oecologia. 153 (3), 589-596 (2007).
- Bee Pollen Supplement - Bee Rescued. , Available from: https://beerescued.com/product/bee-rescued-bee-pollen-supplement/ (2018).
- Holly-Leaf Oregon-Grape (Mahonia aquifolium) Species Details and Allergy Info, Teton county, Wyoming. , Available from: http://www.pollenlibrary.com/Local/Specie/Mahonia+aquifolium/in/Teton County/WY/ (2018).
- Cane, J. H., Griswold, T., Parker, F. D. Substrates and Materials Used for Nesting by North American Osmia Bees (Hymenoptera: Apiformes: Megachilidae). Annals of the Entomological Society of America. 100 (3), 350-358 (2007).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
