Prezentujemy zestaw pęsety optycznej sprzężonej z mikroskopem z arkuszem świetlnym oraz jej implementację do badania mechaniki komórkowej bez koralików w zarodku Drosophila.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Sondowanie mechaniki komórkowej za pomocą pęsety optycznej bez koralików w zarodku Drosophila
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Morfogeneza wymaga koordynacji między wzorcami genetycznymi a siłami mechanicznymi, aby solidnie kształtować komórki i tkanki. W związku z tym wyzwaniem dla zrozumienia procesów morfogenetycznych jest bezpośredni pomiar sił komórkowych i właściwości mechanicznych in vivo podczas embriogenezy. Prezentujemy tutaj zestaw pęsety optycznej sprzężonej z mikroskopem arkuszowym, który pozwala na bezpośrednie przyłożenie sił do kontaktów komórka-komórka wczesnego zarodka Drosophila, podczas obrazowania z prędkością kilku klatek na sekundę. Technika ta ma tę zaletę, że nie wymaga wstrzykiwania do zarodka koralików, zwykle stosowanych jako sondy pośrednie, na które wywierane są siły optyczne. Szczegółowo opisujemy krok po kroku implementację konfiguracji i proponujemy narzędzia do wydobywania informacji mechanicznych z eksperymentów. Monitorując przemieszczenia kontaktów komórka-komórka w czasie rzeczywistym, można wykonywać pomiary naprężeń i badać reologię kontaktów komórkowych.
Wprowadzenie
Rozwój embrionalny to wysoce powtarzalny proces, podczas którego komórki i tkanki deformują się, aby ukształtować przyszłe zwierzę. Wykazano, że takie deformacje wymagają aktywnego generowania sił na poziomie komórki1,2. Aby zrozumieć procesy morfogenetyczne, podczas których komórki i tkanki zmieniają swój kształt, kluczowa jest zatem ocena właściwości mechanicznych zaangażowanych komórek oraz zmierzenie sił w tkance podczas tego procesu3,4. Warstwy nabłonkowe, zwłaszcza u Drosophila, były szeroko badane ze względu na ich geometrię quasi-2D i łatwą manipulację.
W związku z tym wiele technik zostało opracowanych przez nas i innych do oceny mechaniki nabłonka in vivo podczas rozwoju. Przedstawimy krótki przegląd trzech głównych technik stosowanych w tkankach nabłonkowych. Ablacja laserowa, szeroko stosowana metoda, pozwala na ujawnienie miejscowego naprężenia mechanicznego na połączeniach komórkowych5,6,7,8 lub na większą skalę9,10,11 wykonując lokalne cięcia, które zaburzają integralność mechaniczną celu. Dynamika otworu po cięciu dostarcza informacji zarówno o naprężeniu poprzedzającym ablację, jak i o reologii tkanki12,13. Wadą ablacji laserowej jest to, że jest inwazyjna, ponieważ wymaga lokalnego przerwania kory komórkowej. W związku z tym można wykonać tylko ograniczoną liczbę ablacji, jeśli chce się zachować integralność tkanki. Inną wadą jest to, że ablacje dostarczają tylko względnych szacunków napięcia na styku komórek, ponieważ prędkość otwierania zależy od tarcia lepkiego, które na ogół nie jest znane. Manipulacja magnetyczna została również opracowana i stosowana u Drosophila, obejmując użycie ferrofluidów14 lub liposomów ultramagnetycznych15. Mogą one zapewniać pomiary bezwzględne16,17, ale są również inwazyjne w tym sensie, że wymagają wstrzyknięcia sond w żądane miejsce. Może to być bardzo trudne w zależności od systemu, który nie zawsze jest podatny na precyzyjne wstrzyknięcia. Trzecią techniką, w pełni nieinwazyjną, jest wnioskowanie siłowe18,19,20. Wnioskowanie o sile opiera się na założeniu równowagi mechanicznej w punktach potrójnych (połączeniach trójkomórkowych lub wierzchołkach) i pozwala wywnioskować napięcia na wszystkich stykach komórka-komórka (i ewentualnie ciśnienia we wszystkich komórkach) poprzez rozwiązanie problemu odwrotnego. W przypadku naprężeń każdy wierzchołek zawiera dwa równania (X i Y). W ten sposób powstaje duży układ równań liniowych, które w pewnych warunkach można odwrócić, aby ocenić napięcie we wszystkich kontaktach komórek. Chociaż ta metoda jest bardzo atrakcyjna, ponieważ wymaga jedynie obrazu podzielonego na segmenty i nie wymaga dodatkowego eksperymentu ani konfiguracji, jej dokładność nie została jeszcze określona i ponownie zapewnia tylko wartości względne, chyba że zostanie wykonany bezwzględny pomiar kalibracyjny.
Aby przezwyciężyć niektóre z tych ograniczeń, wprowadzamy w tym artykule zestaw pęsety optycznej połączonej z mikroskopem z arkuszem świetlnym, aby przyłożyć kontrolowane siły na skali komórkowej w nabłonku embrionalnym Drosophila melanogaster. Pęseta optyczna była używana do wielu zastosowań biologicznych, w tym do pomiarów pojedynczych białek oraz manipulacji organellami i komórkami21. Podajemy tu przyłożone siły w zakresie kilkudziesięciu pN, co jest niewielkie, ale wystarczające do wywołania lokalnych deformacji kontaktów komórkowych i wykonania pomiarów mechanicznych in vivo. Zazwyczaj używamy prostopadłego odchylenia styków komórek, monitorowanego za pomocą analizy kymogramów, aby powiązać siłę z odkształceniem. Co ważne, nasz zestaw nie wymaga wstrzykiwania kulek w pożądane miejsce w tkance, ponieważ pęseta optyczna jest w stanie bezpośrednio wywierać siły na kontakty komórka-komórka. Sprzężenie pęsety optycznej z mikroskopem arkuszowym światła pozwala na szybkie obrazowanie (kilka klatek na sekundę), co jest bardzo przydatne w przypadku analizy mechanicznej w krótkich skalach czasowych i przy zmniejszonej fototoksyczności, ponieważ oświetlenie próbki jest ograniczone do płaszczyzny obrazowania22.
Ogólnie rzecz biorąc, pęsety optyczne są nieinwazyjnym sposobem na przyłożenie kontrolowanych sił do kontaktów komórkowych in vivo w zarodku Drosophila oraz na wydobycie informacji mechanicznych, takich jak sztywność i napięcie na styku komórki23, właściwości reologiczne24, oraz gradient lub anizotropia napięcia23.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Konfiguracja mikroskopu arkusza światła
- Należy odnieść się do opisu układu w poprzedniej publikacji25.
UWAGA: Układ składa się z podstawy mikroskopu pionowego oraz modułu arkusza światła, który wytwarza arkusz światła w płaszczyźnie poziomej. Obiektyw wzbudzenia 10X kieruje arkusz światła do kuwety szklanej (Rysunek 4). Obiektyw detekcyjny posiada wysoką aperturę numeryczną NA (1.1), co jest niezbędne do efektywnego chwytania optycznego (patrz poniżej).
2. Konfiguracja toru optycznej pęsety
UWAGA: Rysunek 1 przedstawia ogólny schemat układu optycznego.
- Umieść jednostkę lasera 1070 nm i przymocuj światłowód do stołu optycznego za pomocą uchwytu z zaciskiem w kształcie litery V. Upewnij się, że kolimator światłowodowy jest równolegle do stołu optycznego (zatem poziomo) oraz że wybrana w tym miejscu wysokość będzie wysokością dla wszystkich komponentów optycznych ustawianych na stole optycznym.
UWAGA: Wartość 100 mm może być odpowiednim wyborem dla tej wysokości. - Przekręć klucz jednostki lasera podczerwonego i naciśnij przycisk „Select”, aby włączyć wskaźnik ustawiający. Wiązka światła wychodząca z włókna musi być skierowana poziomo.
- Umieść migawkę na drodze optycznej i przymocuj ją do stołu optycznego w taki sposób, aby wiązka lasera podczerwonego przechodziła przez otwór migawki. Upewnij się, że odległość między stołem optycznym a środkiem otworu migawki odpowiada wysokości wybranej w kroku 2.1.
- Przekręć klucz sterownika migawki, wybierz tryb ręczny za pomocą strzałek i naciśnij przycisk „Enable”, aby otworzyć migawkę.
- Umieść, wyrównaj i przymocuj pierwsze lustro galwanometru.
UWAGA: Dwa lustra galwanometru muszą być sprzężone z tylną aperturą obiektywu detekcyjnego, tak aby podczas obrotu jednego z luster wiązka lasera nie wychodziła poza tylną aperturę obiektywu. Należy pamiętać, że odległość między pierwszym galwanometrem a tylną aperturą obiektywu musi zostać obliczona w celu określenia pozycji tego galwanometru względem obiektywu (f1+f1+f2+f2+f3+f3+f4+f4 = 30+30+30+30+30+200+200+500+500 = 1550 mm; fi=ogniskowa soczewki n)°i). - Włącz zasilacz galwanometrów. Upewnij się, że galwanometry pozostają pod napięciem przez cały pozostały czas trwania protokołu wyrównywania.
- Ustaw galwanometry na zero wychylenia (za pomocą oprogramowania NIMAX lub oprogramowania do pęsety optycznej – połączenia galwanometrów opisano w kroku 3).
- Ustawić, wyrównać i przymocować teleskop przekaźnikowy składający się z dwóch soczewek o ogniskowej 30 mm.
- Umieść, wyrównaj i zamocuj drugie lustro galwanometru. Należy pamiętać, że odległość między dwoma galwanometrami wynosi 4f = 4 x 30 mm = 120 mm (f = ogniskowa).
- Ustawić i przymocować teleskop.
UWAGA: Teleskop składa się z dwóch soczewek, które rozszerzają wiązkę do szerokości co najmniej równej średnicy tylnej apertury soczewki obiektywu. Soczewka o najkrótszej ogniskowej powinna znajdować się jako pierwsza. - Ustawić, wyrównać i przymocować peryskop, przesuwając górną część toru optycznego bliżej wejścia szyny zwierciadła dichroicznego.
- Zamocuj lustro gorące w prowadnicy, a następnie umieść prowadnicę w mikroskopie. Upewnij się, że prowadnica jest wycięta z prawej strony, aby umożliwić wprowadzenie lasera podczerwonego (Rycina 2).
- Należy sprawdzić, czy światło lasera opuszcza mikroskop – najpierw bez obiektywu, a następnie z obiektywem. Pozycję lasera przed obiektywem koryguje się za pomocą dolnego lustra peryskopu. Pozycję lasera za obiektywem koryguje się za pomocą górnego lustra peryskopu.
- Umieść 1 µL kulek fluorescencyjnych 500 nm do kuwety szklanej i dodać 10 ml wody destylowanej. Umieścić kuwetę pod obiektywem w uchwycie na kuwety i ustawić ostrość obiektywu (pozycja Z) tak, aby obiektyw dotykał powierzchni wody.
- Uruchom akwizycję za pomocą autorskiego oprogramowania sterującego AOTF, kamerą i stolikiem piezoelektrycznym. Można również zastosować bezpłatne oprogramowanie, takie jak Micro-Manager. Włącz tryb akwizycji w czasie rzeczywistym, naciskając przycisk „Live”.
- Ustaw moc lasera IR na 1 W.
- Założyć gogle ochronne (i nie zdejmować ich do zakończenia eksperymentu), a następnie włączyć laser. W ognisku lasera powinna zostać uwięziona kulka.
- Jeśli w ognisku lasera nie została uwięziona żadna kulka, należy sprawdzić, czy czerwony wskaźnik laserowy (współosiowy z laserem IR) wychodzi z obiektywu. Jeśli nie, należy ponownie przeprowadzić kroki wyrównania, w szczególności krok 2.13. Alternatywnie można zwiększyć moc lasera IR.
- Jeśli koralik znajduje się poza płaszczyzną ostrości (płaszczyzną obrazowania), należy delikatnie przesunąć ostatnią soczewkę ostatniego teleskopu (L4 w Rycina 1) wzdłuż osi optycznej, aby ustawić koralik w ognisku względem płaszczyzny obrazowania. Jeśli jest to niewystarczające, przesuń pierwszą soczewkę ostatniego teleskopu (L3 w Rysunek 1) wzdłuż osi optycznej.
- Jeśli uwięziona kulka nie znajduje się w centrum obrazu, należy użyć dwóch luster peryskopowych do skorygowania położenia pułapki. Jeżeli zmiana kąta nachylenia pierwszego lustra powoduje przesunięcie kulki, należy jednocześnie skorygować kierunek wiązki, zmieniając odpowiedni kąt nachylenia drugiego lustra. Najpierw skoryguj położenie w osi X (jedna śruba dla każdego lustra), a następnie położenie w osi Y (jedna śruba dla każdego lustra).
- W razie potrzeby skoryguj położenie 2nd soczewka teleskopu do obserwacji kuleczki w ognisku.
- W razie potrzeby należy skorygować kąt nachylenia luster peryskopu, aby kuleczka znajdowała się w centrum obrazu.
3. Interfejs instrumentu
UWAGA: Rysunek 3 przedstawia ogólny schemat połączeń karty National Instruments (NI).
- Wsuń kartę wyjściową (NI-9263) do pierwszego slotu obudowy (cDAQ-9178). Należy pamiętać, że można użyć innych modeli kart NI posiadających co najmniej 2 wyjścia analogowe i 3 wejścia analogowe.
- Wsuń kartę wejściową (NI-9215) do drugiego slotu obudowy.
- Podłącz pierwszy galwanometr do wyjścia analogowego AO0 i wejścia analogowego AI0 za pomocą kabli BNC. Należy pamiętać, że do połączenia dwóch kabli BNC w jeden można użyć adaptera T. W celu zlokalizowania pinów na płytce sterownika galwanometru należy zapoznać się z instrukcją obsługi galwanometru.
- W analogiczny sposób podłącz drugi galwanometr do AO1 i AI1.
- Podłącz PFI1 do wejścia trigger IN migawki (tył sterownika).
- Podłącz PFI0 do wyzwalacza (fire) kamery oraz do AI2.
- Podłącz AI3 do wyjścia trigger out migawki (tył sterownika).
- Skonfiguruj ustawienia sterownika migawki. Użyj strzałek, aby zmienić wartości parametrów, i naciśnij przycisk „Select”, aby zatwierdzić wybór i przejść do następnego parametru. Ustaw parametr „time open sec” na 000.000, „time closed sec” na 000.000, „mode” na SINGLE oraz „trigger” na EXT. Włącz sterowanie migawką, naciskając przycisk „Enable”.
- Otwórz program QtCreator (pobrany z https://www.qt.io/, wersja bezpłatna).
UWAGA: QtCreator to zintegrowane środowisko programistyczne (IDE) użyte do opracowania oprogramowania pęsety optycznej w języku C++. Biblioteka Qt służy tutaj do tworzenia widżetów. - Otwórz plik OT.pro (dołączony do plików kodu Qt). Ta czynność otworzy projekt. W pliku AOGenerator.cpp zmień nazwy wejść i wyjść zgodnie z używaną kartą (lub kartami) NI.
- Skompiluj i uruchom oprogramowanie OT.
4. Kalibracja pozycji pułapki optycznej za pomocą kulek
- Nagrywanie filmu kalibracyjnego
- Umieść 1 µL czerwonych fluorescencyjnych kuleczek o średnicy 500 nm w kuwecie szklanej, a następnie napełnij kuwetę 10 mL wody destylowanej. Rysunek 4 przedstawia widok kuwety w kontekście obserwacyjnym.
- Zamocuj kuwetę na stole piezoelektrycznym.
- Dostosuj pozycję Z kuwety tak, aby obiektyw detekcyjny był zanurzony w wodzie.
- Włącz laser podczerwony i ustaw moc na 1 W.
- Uruchom oprogramowanie do akwizycji obrazów.
- Aby uzyskać obrazy time-lapse, wybierz czas ekspozycji, wzmocnienie, odstęp czasu między dwoma obrazami, liczbę obrazów do pozyskania oraz moc lasera. Należy pamiętać, że do kalibracji pęsety optycznej za pomocą kuleczek laser do oświetlenia (561 nm) nie jest wymagany. Efekt dwufotonowy indukowany przez laser podczerwony jest wystarczający do wzbudzenia fluorescencji uwięzionej kuleczki.
- Uruchom autorskie oprogramowanie do pęsety optycznej.
- Ustaw parametry pęsety optycznej tak, aby wykreślić okrąg. Ustaw SamplingRate na 250 samp/s, bufferSize na 1000, parametry Waveform1 (galvo 1) na Sinusoidal, nbPeriod 1, amplitude 0.5 V, phase 0.0 rad, Offset 0.0 V, a parametry Waveform 2 (galvo 2) na Sinusoidal, nbPeriod 1, amplitude 0.5 V, phase 1.57 rad, Offset 0.0 V.
- Zaznacz pole „AI Parameters” oraz pole „Wait for it” … .
- Rozpocznij akwizycję obrazów (500 lub 1000 obrazów z wysoką częstotliwością klatek, np. 10 fps).
- Włącz pęsetę optyczną, naciskając przycisk „Generating!”.
- Pozwól uwięzionej kuleczce wykonać co najmniej dwa pełne okręgi i wyłącz pęsetę optyczną, puszczając przycisk „Generating!”.
- Zatrzymaj akwizycję obrazów. Należy pamiętać, że w domyślnym folderze „C:/TEMP/” (chyba że określono inną lokalizację) zostaną utworzone film w formacie tiff oraz plik tekstowy z napięciami galwanometru. W razie potrzeby można utworzyć kilka filmów kalibracyjnych z powiązanymi plikami danych.
- Jeśli okrąg nie jest pełny, oznacza to, że kuleczka została utracona podczas ruchu po okręgu. Może to wynikać ze zbyt wysokiej prędkości. Zmniejsz ją, obniżając częstotliwość próbkowania (sampling rate) w oprogramowaniu pęsety optycznej. Alternatywnie, używając czerwonego wskaźnika lasera podczerwonego, sprawdź, czy wiązka lasera wychodzi z obiektywu przez cały czas trwania ruchu po okręgu. Jeśli nie, lustra galwanometru mogą nie być sprzężone z tylną płaszczyzną ogniskową obiektywu. Skoryguj pozycje galwanometrów względem tylnej płaszczyzny ogniskowej obiektywu, rozpoczynając ponownie etapy wyrównania od kroku 2.5.
- Ustaw amplitudy na zero i włącz laser, aby uwięzić kuleczkę w stałej pozycji. Wyznacz punkt orientacyjny w miejscu pułapki.
- Interpolacja pozycji za pomocą analizy obrazu
- Otwórz program Matlab, przejdź do folderu kalibracyjnego i uruchom skrypt „position2tension” (dołączony do plików kodu Matlab). Skrypt ten oblicza funkcję interpolacyjną przekształcającą napięcia galwanometru na pozycję pułapki optycznej.
- Wybierz liczbę filmów kalibracyjnych, które zostaną wykorzystane. Można wybrać kilka filmów z różnymi trajektoriami, np. dwie prostopadłe elipsy. Zazwyczaj wystarczy jeden film kalibracyjny z trajektorią kołową.
- W oknie dialogowym (jedno okno na film) podaj numery pierwszej i ostatniej klatki, wybierając sekwencje z wyraźną trajektorią i dobrym stosunkiem sygnału do szumu.
- Podaj ścieżkę do pliku tekstowego zawierającego napięcia podczas akwizycji dla każdego filmu. Skrypt odczytuje plik i oblicza średnie napięcia dwóch galwanometrów dla każdego obrazu.
- Podaj ścieżkę do odpowiadającego filmu kalibracyjnego.
UWAGA: Skrypt wykrywa kuleczkę w każdej klatce z rozdzielczością subpikselową poprzez dopasowanie funkcji Gaussa 2D do kuleczki, wykorzystując funkcje niestandardowe oraz funkcje wyodrębnione z MTT26. Następnie wyświetla wykres przedstawiający trajektorię kuleczki. - Usuń wszelkie błędnie wykryte punkty (wartości odstające), klikając w nie.
- Sprawdź, czy mapa interpolacyjna dla pozycji lasera x i y, obliczona i wyświetlona przez skrypt, jest kompletna. Jeśli występuje wiele brakujących wartości (białe obszary na mapie), powtórz operację z nowym filmem kalibracyjnym, przy lepszym stosunku sygnału do szumu i/lub wolniejszej prędkości galwanometrów.
UWAGA: Obrazy te oraz wartości interpolacji są automatycznie zapisywane w tym samym folderze co obraz, pod nazwą convertFct.mat.
5. Montowanie zarodków Drosophila27
- Zebrać zarodki Drosophila z klatki inkubowanej w temperaturze 25 °C.
- Usunąć drożdże, przecierając zawartość płytki przez sito (rozmiar oczek powinien wynosić około 100 µm).
- Przemyć zarodki 100% wybielaczem (2,6% podchlorynu sodu) przez 45 s w celu usunięcia chorionu.
- Przemyć zarodki wodą przez 2 min.
- Przenieść zarodki na podkładkę agarową za pomocą pędzla.
- Wybrać około 10 zarodków zgodnie z pożądanym stadium i ustawić je w linii za pomocą szpikulca lub wilgotnego pędzla.
UWAGA: Ustawienie powinno być wykonane zgodnie z obszarem zainteresowania (obszar zainteresowania jak najbliżej obiektywu detekcyjnego). - Za pomocą diamentowego rysika wyciąć fragment szkiełka przedmiotowego o wymiarach 10 x 20 x 1 mm3.
- Nanieść klej na jedną stronę wyciętego fragmentu i pozostawić do wyschnięcia na 20 s.
- Odwrócić wycięty fragment i położyć go na linii zarodków, aby przykleić go do krawędzi szkiełka.
- Zamontować tak przygotowany preparat w uchwycie na próbki i umieścić go w kuwecie. Rysunek 4 przedstawia widok kuwety w kontekście obserwacji.
- Umieścić kuwetę na stole piezoelektrycznym.
6. Eksperyment pułapkujący in vivo
- Chwytanie kontaktów komórkowych — oscylacje (Rysunek 5)
- Zlokalizuj interesujący obszar w tkance.
UWAGA: W przypadku konieczności pracy w płaszczyźnie złączy przylegających pomocne może być użycie much z oznakowanymi kadherynami. - Przesuń punkt środkowy docelowego złącza w pozycję pułapki (punkt orientacyjny ustawiony w kroku 4.1.14) za pomocą stolika piezoelektrycznego.
- Ustaw parametry pułapki, aby uzyskać oscylacje prostopadłe do linii kontaktu. Ustaw fazy na zero. Ustaw amplitudy w kierunkach X i Y tak, aby ruch odbywał się prostopadle do linii kontaktu. Amplituda powinna wynosić zazwyczaj 0,1 V.
- Rozpocznij akwizycję (z wysoką częstotliwością klatek, np. 10 fps).
- Włącz pęsetę optyczną, naciskając przycisk „Generating!”.
- Po zakończeniu wyłącz pęsetę i zatrzymaj akwizycję obrazu. W wskazanym folderze powinien pojawić się film oraz plik tekstowy zawierający napięcia galwanometru podczas akwizycji.
- Chwytanie kontaktów komórkowych — rozciąganie i zwolnienie (Rysunek 6)
- Zlokalizuj interesujący obszar w tkance.
- Przesuń docelowe złącze za pomocą stolika piezoelektrycznego tak, aby jego punkt środkowy znajdował się zazwyczaj 1 µm od pozycji pułapki (punkt orientacyjny ustawiony w kroku 4.1.14).
- Ustaw amplitudy na 0, aby uzyskać stabilną pułapkę.
- Rozpocznij akwizycję obrazu (z wysoką częstotliwością klatek, np. 10 fps).
- Włącz pęsetę optyczną, naciskając przycisk „Generating!”.
- Po upływie pożądanego czasu wyłącz pułapkę i odczekaj do wystąpienia relaksacji.
- Zatrzymaj akwizycję obrazu. W wskazanym folderze powinien pojawić się film oraz plik tekstowy zawierający napięcia galwanometru podczas akwizycji.
- Zlokalizuj interesujący obszar w tkance.
- Półautomatyczne generowanie kymografu i detekcja pozycji interfejsu.
- W oknie poleceń Matlab wczytaj mapę interpolacji wygenerowaną podczas procedury kalibracji (4b): load('convertFct.mat'). Udostępni to zmienne fx i fy.
- W oknie poleceń Matlab uruchom funkcję autokymo(fx,fy), zawartą w plikach kodu Matlab. Celem tej funkcji jest wygenerowanie kymografu wzdłuż trajektorii lasera oraz detekcja pozycji linii kontaktu z rozdzielczością subpikselową dla każdej klatki.
- Wybierz wskazaną ścieżkę do pliku tekstowego zawierającego wartości napięć.
- Wybierz numery pierwszej i ostatniej klatki filmu do analizy.
- Wybierz plik filmu w formacie tiff. Wyświetlone zostaną dwa nowe rysunki: pierwszy to obraz kymografu, a drugi to wykres detekcji linii kontaktu i pozycji lasera w funkcji numeru obrazu.
UWAGA: Funkcja zapisuje wykres przedstawiający pozycję próbki i pozycję lasera w funkcji numeru obrazu (rysunek matlab, jpg), kymograf (obraz tiff) oraz kymograf z pozycją lasera (obraz tiff). W przypadku eksperymentów ze stabilną pułapką kymograf musi zostać wykonany ręcznie, na przykład przy użyciu programu ImageJ. Detekcja interfejsu z kymografu może następnie zostać przeprowadzona przy użyciu tego samego algorytmu.
7. Pomiary mechaniczne
- Pomiary sztywności i napięcia
- Przeprowadź eksperyment oscylacyjny (krok 6.1) oraz odpowiadającą mu analizę (krok 6.3) filmu poklatkowego.
- Wykreśl pozycję interfejsu
 jako funkcję pozycji pułapki
 , używając funkcji plot w programie Matlab lub dowolnego oprogramowania do wykresów danych.
UWAGA: Zależność ta powinna być w przybliżeniu liniowa. - Wykonaj dopasowanie liniowe, korzystając z darmowego zestawu narzędzi „ezfit” dla Matlab lub dowolnego oprogramowania umożliwiającego dopasowanie krzywych. Odwrotność nachylenia dopasowania daje średni stosunek
 .
- Oszacuj pozorną sztywność zginania interfejsu, która przy założeniu małych odkształceń i potencjału kwadratowego dla pułapki jest dana wzorem
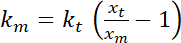 .
 oznacza sztywność pułapki (patrz krok 8 w celu kalibracji sztywności pułapki).
- Oszacuj napięcie, które można zdefiniować jako23:
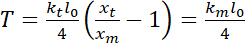 .
- Pomiary reologiczne
- Przeprowadź eksperymenty rozciągania i zwalniania (krok 6.2) oraz odpowiadającą im analizę (krok 6.3).
- Dopasuj otrzymaną krzywą do niestandardowego modelu reologicznego.
8. Kalibracja sztywności pułapki
UWAGA: Wyznaczenie sił bezwzględnych wymaga znajomości sztywności pułapki na granicach międzyfazowych. Można ją uzyskać za pomocą kulek, stosując procedurę dwuetapową.
- Wyznaczanie lepkości cytozolu
- Umieścić zarodki w oleju halokarbonowym i przeprowadzić mikrowstrzyknięcie fluorescencyjnych kuleczek polistyrenowych (rozcieńczenie roztworu zapasowego 1:1 000, średnica 0,46 µm) przy użyciu zestawu do mikroiniekcji23,27.
- Umieścić wstrzyknięte zarodki pod mikroskopem.
- Śledzić ruch pojedynczych kuleczek znajdujących się w cytozolu. Wyznaczyć średni kwadrat przemieszczenia kuleczek (należy wykorzystać dużą liczbę trajektorii > 100 kuleczek). Wyznaczyć stałą dyfuzji kuleczek na podstawie nachylenia średniego kwadratu przemieszczenia. Wykorzystując równanie Stokesa-Einsteina do powiązania stałej dyfuzji z lepkością, wyznaczyć efektywną lepkość cytozolu. W wczesnym zarodku raportowana lepkość wynosi około 3,5 Pa.s23.
- Wyznaczanie sztywności pułapki dla kuleczek
- Uchwycić pojedyncze kuleczki w cytozolu za pomocą pęsety optycznej.
- Przesuwać kuleczkę skokowo między dwiema pozycjami pułapki oddalonymi od siebie o 0,5 µm
- Wyznaczyć sztywność pułapki dla kuleczek jako stosunek współczynnika oporu do czasu relaksacji kuleczki przy przejściu z jednej pozycji pułapki do drugiej.
UWAGA: Współczynnik oporu wynosi , gdzie
 to lepkość wyznaczona w punkcie (8.1), a
 to promień kuleczki. Czas relaksacji uzyskuje się z dopasowań wykładniczych pozycji kuleczki, korzystając z programu Matlab lub dowolnego oprogramowania umożliwiającego dopasowywanie krzywych. Typowe wartości sztywności pułapki to 120 ±50 pN.µm-1 przy wzbudzeniu laserowym 200 mW.
- Wyznaczanie sztywności pułapki na styku komórek
- Skupić wiązkę lasera na linii styku i odchylić ją (zgodnie ze szczegółami w kroku 6). Zmierzyć amplitudę odkształcenia. Czynność tę należy powtórzyć na kilku liniach styku, aby uzyskać reprezentatywną średnią.
- Porównać wywołane odkształcenie z odkształceniem indukowanym przez kuleczki dociskane do linii styku. Ponieważ odkształcenie jest odwrotnie proporcjonalne do sztywności pułapki, wyznaczyć sztywność pułapki w miejscach kontaktów komórkowych.
UWAGA: Sztywność pułapki w kontaktach komórkowych była zazwyczaj od 2 do 3 razy mniejsza niż w przypadku kuleczek (średnica 0,46 µm).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Rysunek 5 przedstawia dane eksperymentalne uzyskane poprzez nadanie pułapce ruchu sinusoidalnego. Pułapka powoduje odchylenie interfejsu, co zilustrowano na 3 migawkach pokazujących 3 kolejne pozycje interfejsu (Rysunek 5A)23. Nagrane filmy służą do wygenerowania kymografu (Rysunek 5B>) i są następnie analizowane w celu wyznaczenia pozycji interfejsu z rozdzielczością subpikse...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Pęseta optyczna pozwala w sposób nieinwazyjny na wykonywanie bezwzględnych pomiarów mechanicznych bezpośrednio w rozwijającym się nabłonku zarodkowym. W tym sensie ma przewagę nad innymi metodami, takimi jak ablacja laserowa, która jest inwazyjna i zapewnia względne pomiary, siły magnetyczne, które wymagają wstrzyknięć, lub wnioskowanie o sile, które opiera się na silnych założeniach, a także zapewnia względne pomiary.
Protokół obejmuje kilka krytycznych kroków. Po pierwsze, ponieważ soczewka ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca była wspierana przez FRM Equipe Grant FRM DEQ20130326509, Agence Nationale de la Recherche ANR-Blanc Grant, Morfor ANR-11-BSV5-0008 (do P.-F.L.). Wyrażamy uznanie dla infrastruktury France-BioImaging wspieranej przez Francuską Narodową Agencję Badawczą (ANR-10-INBS-04-01, «Inwestycje w przyszłość»). Dziękujemy Brice'owi Detailleurowi i Claude'owi Morettiemu z infrastruktury PICSL-FBI za pomoc techniczną.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Laser światłowodowy iterbowy LP, 10 W, CW | IPG Laser | YLM-10-LP-SC | wraz z kolimatorem LP: wiązka D = 1,6 mm i czerwony laser prowadzący |
| & Oslash; Migawka wiązki optycznej 1/2 " | Thorlabs | SH05 | |
| Systemy galwanometryczne o małej średnicy wiązki | Thorlabs | GVS001 | 1 dla przemieszczenia X, 1 dla przemieszczenia Y |
| Zasilacz liniowy 1D lub 2D Galvo System Galwanometry | Thorlabs | GPS011 | zasilanie |
| 2 soczewki f = 30 mm | Thorlabs | LB1757-B | między 2 galwami |
| Soczewka f = 200 mm | Teleskop Thorlabs | LB1945-B | 2.5X |
| Obiektyw f = 500 mm | Teleskop Thorlabs | LB1869-B | 2.5X |
| Kątowe kinematyczne zwierciadło eliptyczne z gwintowanymi otworami na pręty klatkowe | Peryskopowe | Thorlabs | KCB1E |
| , jasnozielone soczewki, przepuszczalność światła widzialnego 59%, uniwersalny styl | Thorlabs | LG1 | |
| 45° AOI, średnica 50.0 mm, gorące lustro | Edmund Optics | #64-470 | |
| Emiter wielofotonowy HC 750/S | AHF | HC 750/SP | |
| Obudowa CompactDAQ | National Instruments | cDAQ-9178 | |
| Moduł wyjściowy napięcia serii C | National Instruments | NI-9263 | Moduł wyjść analogowych |
| Moduł wejściowy napięcia serii C | National Instruments | NI-9215 | Moduł wejść analogowych |
| FluoSpheres Mikrosfery modyfikowane karboksylanem, 0,5 i mikro; m, czerwona fluorescencyjna (580/605), 2% ciał stałych | Koraliki kalibracyjne | ThermoFisher Scientific | F8812 |
| C++ (Qt) domowe oprogramowanie | opracowane przez Oliviera Blanca i Claire Chardès. Alternatywne rozwiązanie: labview |
Bibliografia
- Lecuit, T., Lenne, P. -F., Munro, E. Force generation, transmission, and integration during cell and tissue morphogenesis. Annual review of cell and developmental biology. 27 (1), 157-184 (2011).
- Heisenberg, C. -P., Bellaïche, Y. Forces in tissue morphogenesis and patterning. Cell. 153 (5), 948-962 (2013).
- Sugimura, K., Lenne, P. -F., Graner, F. Measuring forces and stresses in situ in living tissues. Development. 143 (2), Cambridge, England. 186-196 (2016).
- Campàs, O. A toolbox to explore the mechanics of living embryonic tissues. Seminars in cell & developmental biology. 55, 119-130 (2016).
- Kiehart, D. P., Galbraith, C. G., Edwards, K. A., Rickoll, W. L., Montague, R. A. Multiple forces contribute to cell sheet morphogenesis for dorsal closure in Drosophila. Journal of Cell Biology. 149 (2), 471-490 (2000).
- Farhadifar, R., Roper, J. C., Aigouy, B., Eaton, S., Julicher, F. The influence of cell mechanics, cell-cell interactions, and proliferation on epithelial packing. Current Biology. 17 (24), 2095-2104 (2007).
- Rauzi, M., Verant, P., Lecuit, T., Lenne, P. F. Nature and anisotropy of cortical forces orienting Drosophila tissue morphogenesis. Nature Cell biology. 10 (12), 1401-1410 (2008).
- Ma, X., Lynch, H. E., Scully, P. C., Hutson, M. S. Probing embryonic tissue mechanics with laser hole drilling. Physical Biology. 6 (3), 036004(2009).
- Hutson, M. S., Tokutake, Y., et al. Forces for morphogenesis investigated with laser microsurgery and quantitative modeling. Science. 300 (5616), 145-149 (2003).
- Bonnet, I., Marcq, P., Bosveld, F., Fetler, L., Bellaïche, Y., Graner, F. Mechanical state, material properties and continuous description of an epithelial tissue. Journal of the Royal Society, Interface / the Royal Society. 9 (75), 2614-2623 (2012).
- Etournay, R., Popović, M., et al. Interplay of cell dynamics and epithelial tension during morphogenesis of the Drosophila pupal wing. eLife. 4, e07090(2015).
- Rauzi, M., Lenne, P. -F. Cortical forces in cell shape changes and tissue morphogenesis. Current topics in developmental biology. 95, 93-144 (2011).
- Saha, A., Nishikawa, M., Behrndt, M., Heisenberg, C. -P., Jülicher, F., Grill, S. W. Determining Physical Properties of the Cell Cortex. Biophysical journal. 110 (6), 1421-1429 (2016).
- Desprat, N., Supatto, W., Pouille, P. A., Beaurepaire, E., Farge, E. Tissue deformation modulates twist expression to determine anterior midgut differentiation in Drosophila embryos. Developmental cell. 15 (3), 470-477 (2008).
- Mitrossilis, D., Röper, J. -C., et al. Mechanotransductive cascade of Myo-II-dependent mesoderm and endoderm invaginations in embryo gastrulation. Nature Communications. 8, 13883(2017).
- Campàs, O., Mammoto, T., et al. Quantifying cell-generated mechanical forces within living embryonic tissues. Nature Methods. 11 (2), 183-189 (2013).
- Serwane, F., Mongera, A., et al. In vivo quantification of spatially varying mechanical properties in developing tissues. Nature Methods. 14 (2), 181-186 (2017).
- Chiou, K. K., Hufnagel, L., Shraiman, B. I. Mechanical stress inference for two dimensional cell arrays. PLoS computational biology. 8 (5), e1002512(2012).
- Ishihara, S., Sugimura, K. Bayesian inference of force dynamics during morphogenesis. Journal of theoretical biology. 313, 201-211 (2012).
- Brodland, G. W., Veldhuis, J. H., Kim, S., Perrone, M., Mashburn, D., Hutson, M. S. CellFIT: a cellular force-inference toolkit using curvilinear cell boundaries. PLoS ONE. 9 (6), e99116(2014).
- Svoboda, K., Block, S. M. Biological applications of optical forces. Annual Review of Biophysics and Biomolecular Structure. 23, 247-285 (1994).
- Huisken, J., Swoger, J., Del Bene, F., Wittbrodt, J., Stelzer, E. H. Optical sectioning deep inside live embryos by selective plane illumination microscopy. Science. 305 (5686), 1007-1009 (2004).
- Bambardekar, K., Clément, R., Blanc, O., Chardès, C., Lenne, P. -F. Direct laser manipulation reveals the mechanics of cell contacts in vivo. Proceedings of the National Academy of Sciences of the United States of America. , (2015).
- Clément, R., Dehapiot, B., Collinet, C., Lecuit, T., Lenne, P. -F. Viscoelastic Dissipation Stabilizes Cell Shape Changes during Tissue Morphogenesis. Current biology: CB. 27 (20), (2017).
- Chardès, C., Ménélec, P., Bertrand, V., Lenne, P. -F. Setting-up a simple light sheet microscope for in toto imaging of C. elegans development. Journal of visualized experiments. 87, e51342(2014).
- Serge, A., Bertaux, N., Rigneault, H., Marguet, D. Dynamic multiple-target tracing to probe spatiotemporal cartography of cell membranes. Nature Methods. 5 (8), 687-694 (2008).
- Cavey, M., Lecuit, T. Imaging Cellular and Molecular Dynamics in Live Embryos Using Fluorescent Proteins. Drosophila. 420, 219-238 (2008).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
