Ten manuskrypt opisuje prosty protokół izolacji tętniczek od siatkówki szczura, który może być wykorzystany w badaniach elektrofizjologicznych, obrazowania wapnia i miografii ciśnieniowej.
Artykuł metodologiczny
Izolacja tętniczek siatkówki do badań fizjologii komórek ex vivo
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Siatkówka jest wysoce aktywną metabolicznie tkanką, która wymaga znacznego dopływu krwi. Krążenie siatkówki podtrzymuje siatkówkę wewnętrzną, podczas gdy naczynia naczyniówkowe zaopatrują fotoreceptory. Zmiany w perfuzji siatkówki przyczyniają się do licznych zaburzeń zagrażających wzrokowi, w tym retinopatii cukrzycowej, jaskry i niedrożności żył gałęzi siatkówki. Zrozumienie mechanizmów molekularnych zaangażowanych w kontrolę przepływu krwi przez siatkówkę i tego, w jaki sposób są one zmieniane podczas choroby oczu, może prowadzić do identyfikacji nowych celów leczenia tych schorzeń. Tętniczki siatkówki są głównymi naczyniami oporowymi siatkówki, a co za tym idzie, odgrywają kluczową rolę w regulacji hemodynamiki siatkówki poprzez zmiany średnicy światła. W ostatnich latach opracowaliśmy metody izolowania tętniczek od siatkówki szczura, które nadają się do szerokiego zakresu zastosowań, w tym do badań fizjologii komórek. Preparat ten zaczął już przynosić nowe informacje na temat tego, w jaki sposób kontrolowany jest przepływ krwi w siatkówce i pozwolił nam zidentyfikować niektóre z kluczowych zmian, które zachodzą podczas choroby oczu. W tym artykule opisano metody izolacji tętniczek siatkówki szczura i załączamy protokoły ich stosowania w elektrofizjologii patch-clamp, obrazowaniu wapnia i badaniach miografii ciśnieniowej. Naczynia te mogą być również stosowane w badaniach opartych na PCR, western blotting i immunohistochemii.
Wprowadzenie
Zrozumienie, w jaki sposób kontrolowany jest przepływ krwi w siatkówce, jest ważnym celem, ponieważ nieprawidłowy przepływ krwi jest związany z patogenezą różnych zagrażających wzrokowi chorób siatkówki1,2,3,4. Krążenie siatkówkowe, które zaopatruje wewnętrzne neurony siatkówki i komórki glejowe, ma układ tętnicy końcowej, w którym cała krew z tętnic siatkówkowych i tętniczek przechodzi przez naczynia włosowate do żyłek siatkówki i wreszcie żył5. Przepływ krwi w siatkówce jest regulowany przez napięcie tętnic i tętniczek siatkówki, a także aktywność skurczową perycytów znajdujących się na ścianach naczyń włosowatych siatkówki i żyłek zawłosionych 6,7,8. Kontrola napięcia naczyniowego siatkówki jest złożona i modulowana przez szereg danych wejściowych z układu krążenia i otaczającej tkanki siatkówki, w tym gazometry, krążące cząsteczki i hormony oraz substancje wazoaktywne uwalniane ze śródbłonka naczyniowego siatkówki i makrogleju9,10,11. Tętniczki siatkówki to małe gałęzie tętnicze siatkówki i składają się z pojedynczej warstwy komórek mięśni gładkich naczyń krwionośnych i wewnętrznej wyściółki z podłużnie ułożonych komórek śródbłonka12,13,14. Naczynia te stanowią główne miejsce oporu naczyniowego w krążeniu siatkówkowym i dlatego odgrywają ważną rolę w lokalnej kontroli przepływu krwi w siatkówce. Tętniczki siatkówki regulują przepływ krwi włośniczkowej w siatkówce poprzez rozszerzenie lub zwężenie ich średnicy światła, w czym pośredniczą zmiany kurczliwości mięśni gładkich naczyń krwionośnych10,15,16. Zrozumienie mechanizmów molekularnych, za pomocą których tętniczki siatkówki regulują perfuzję siatkówki, wymaga zatem przygotowań, w ramach których można uzyskać dostęp do komórek mięśni gładkich tętniczek i badać je w warunkach jak najbardziej zbliżonych do fizjologicznych.
Preparaty ex vivo izolowanych naczyń krwionośnych siatkówki zapewniają dostęp do komórek mięśni gładkich naczyń krwionośnych, zachowując jednocześnie ich funkcjonalność i połączenie z leżącym poniżej śródbłonkiem. Większość dotychczasowych badań z wykorzystaniem izolowanych naczyń koncentrowała się na dużych naczyniach tętniczych bydła lub świń (60 - 150 μm). Można je zamontować w dostępnych na rynku systemach miografów przewodowych lub ciśnieniowych, aby umożliwić farmakologiczne badanie mechanizmów kurczliwości komórek mięśni gładkich naczyń krwionośnych17,18. Takie preparaty w znacznym stopniu przyczyniły się do poszerzenia naszej wiedzy na temat fizjologii naczyń siatkówki w normalnych warunkach. W niewielu badaniach wykorzystano tętniczki siatkówki wyizolowane od małych zwierząt laboratoryjnych, ponieważ ich mniejsza średnica (~ 8 - 45 μm) uniemożliwia ich stosowanie w konwencjonalnych systemach miografii19,20,21,22. Istotną zaletą stosowania naczyń krwionośnych pochodzących od małych zwierząt laboratoryjnych jest jednak szeroka dostępność modeli chorób modyfikowanych genetycznie, transgenicznych i siatkówkowych. Małe zwierzęta laboratoryjne są również bardziej podatne na badania interwencyjne in vivo.
Tutaj opisujemy proste protokoły izolacji i kaniulacji tętniczek siatkówki szczura do eksperymentów z miografią ciśnieniową. Szczegółowo opisano również protokoły obrazowania i elektrofizjologii Ca2+ z wykorzystaniem tych naczyń. Mogą one dostarczyć dalszych informacji na temat regulacji kurczliwości mięśni gładkich naczyń krwionośnych i przepływu krwi w siatkówce.
Protokół
Wszystkie opisane tutaj eksperymenty zostały przeprowadzone zgodnie z wytycznymi zawartymi w brytyjskiej ustawie o zwierzętach (procedury naukowe) z 1986 roku i zostały zatwierdzone przez Queen's University of Belfast Animal Welfare and Ethical Review Body.
1. Izolacja tętniczek siatkówki
Uwaga: Do izolacji tętniczek siatkówki stosuje się następujący protokół. Ta metoda jest zoptymalizowana pod kątem tętniczek siatkówki szczura, ale może być stosowana z siatkówkami myszy. Wydajność naczyń jest jednak niższa w przypadku korzystania z myszy.
- Uzupełnić roztwór o niskiej zawartościCa2+ zawierający Hanksa (LCH), jak pokazano w tabeli 1.
UWAGA: Roztwór ten można przechowywać do 3 dni w temperaturze 4 °C (w przypadku stosowania przechowywanego LCH należy upewnić się, że odpowiada temperaturze pokojowej, a pH jest prawidłowe przed użyciem). - Przed pobraniem tkanki należy zamontować następujący sprzęt, aby zapewnić szybką mikrodysekcję siatkówki: ząbkowane kleszcze, zakrzywione nożyczki, naczynie do preparowania (szalka Petriego pokryta silikonem), ostrze jednosieczne, 2 zestawy kleszczy () 1 szklana pipeta Pasteura (polerowana ogniowo do gładkiej, ale nie wąskiej końcówki), 1 jednorazowa pipeta plastikowa (z odciętą końcówką w celu zwiększenia otworu do ~ 5 - 7 mm), 1 szklana probówka z okrągłym dnem (5 ml) i uchwyt. Zdekantować około 50 ml LCH do szklanej zlewki i przygotować drugą zlewkę do dekantacji płynów odpadowych.
UWAGA: Zobacz tabelę materiałów, aby zapoznać się ze specyfikacjami i szczegółami producenta. - Poddaj szczura eutanazji za pomocąCO2, a następnie nakłuciu serca w celu wykrwawienia (unikaj zwichnięcia szyjki macicy lub wstrząsu mózgu, ponieważ mogą one uszkodzić naczynia krwionośne w oku). Cofnij powieki ząbkowanymi kleszczami, a następnie użyj zakrzywionych nożyczek, aby przeciąć mięśnie oczodołu i nerw wzrokowy. Delikatnie wyjmij oczy z oczodołu, uważając, aby przeciąć nożyczkami wszelkie pozostałe nasadki.
- Umieścić oczy zanurzone w roztworze LCH na naczyniu separacyjnym (w razie potrzeby oczy mogą być transportowane na lodzie w roztworze LCH). Użyj jednego zestawu kleszczy, aby zakotwiczyć oko w misce, przytrzymując przyczepy mięśni oczodołu lub nerw wzrokowy; Upewnij się, że punkt kotwiczenia znajduje się jak najbliżej twardówki, aby ustabilizować oko.
- Za pomocą ostrza przetnij rogówkę wzdłuż ora serrata i wyjmij soczewkę, delikatnie naciskając kleźówkę kleszczami.
- Przetnij muszlę oczną symetrycznie na pół przez tarczę nerwu wzrokowego. Za pomocą zamkniętych kleszczyków delikatnie "wyszczotkuj" siatkówki z dwóch połówek muszli ocznej, uważając, aby usunąć wszelkie pozostałe przyczepy na tarczy nerwu wzrokowego. Powtórz proces z drugim okiem i przenieś wypreparowane siatkówki do probówki za pomocą plastikowej pipety i małej kropli podłoża LCH.
- Za pomocą plastikowej pipety napełnij probówkę LCH do ~ 5 ml i pozwól siatkówkom osiąść na dnie.
- Przemyć chusteczkę około 3 razy, usuwając ~ 4 ml roztworu z probówki i dodając świeży LCH za pomocą plastikowej pipety. W razie potrzeby usuń obce tkanki, takie jak więzadła wieszadłowe, ciało szkliste i włosy.
- Umyj wnętrze szklanej pipety Pasteura (polerowana końcówka) LCH, aby zapobiec przywieraniu chusteczki do pipety. Za pomocą tej samej pipety usuń około 4 ml roztworu z probówki. Następnie dodaj około 2 ml świeżego LCH.
- Delikatnie rozdzielić (roztrzeć) siatkówki, powoli przeciągając tkankę przez końcówkę szklanej pipety i wyrzucić zawartość do probówki. Uwaga, staraj się nie wprowadzać bąbelków na tym etapie.
- Powtarzaj krok 1.10, aż siatkówki zostaną rozbite do rozmiaru około 2-3 mm2.
- Umyj wnętrze pipety około 2 ml LCH i wylej je do probówki. Pozostaw zawartość na dnie przez 5 - 10 minut.
- Powtórzyć proces rozcierania, jak opisano w 1.10 - 1.12 z nieco większą siłą, aż kawałki tkanki osiągną rozmiar około 1mm2. Ponownie pozwól tkance osiąść na 5-10 minut.
- Powtórz kroki 1.10 - 1.12 po raz trzeci z większą siłą, aż zawartość zostanie całkowicie zhomogenizowana i nie pozostaną żadne kawałki siatkówki (roztwór powinien stać się mleczny).
UWAGA: Ta technika pozwoli uzyskać do 8 segmentów tętniczek (stosunkowo wolnych od otaczającego neuropile i z niektórymi gałęziami pozostającymi nienaruszonymi) na izolację o średnicy 8 - 45 μm i długości 200 - 2500 μm. - Przenieść niewielką ilość izolatu do fizjologicznej komory rejestracyjnej lub dodać barwniki fluorescencyjne w celu pomiaru wewnątrzkomórkowego stężeniaCa2+ ([Ca2+]i; patrz sekcja 3). Resztki gałązek ocznych i roztworu usuniętego podczas procesu izolacji należy usunąć zgodnie z lokalnymi przepisami dotyczącymi postępowania z odpadami zwierzęcymi.
UWAGA: Chociaż zaleca się eksperymentowanie na naczyniach natychmiast po izolacji, nadmiar izolatu można przechowywać w temperaturze 4 °C przez maksymalnie 8 godzin.
2. Miografia ciśnienia tętniczego
UWAGA: Miografia ciśnienia tętniczego jest przeprowadzana w następujący sposób przy użyciu sprzętu opisanego w Rysunek 1A, B i Tabela Materiałów.
- Przenieść podwielokrotność homogenatu naczyń siatkówki (1 - 2 ml; wyizolowana zgodnie z sekcją 1) do fizjologicznej komory zapisu (częściowo wypełnionej nominalnie Ca2 + wolnym roztworem Hanksa; 0 Ca2 + Hanksa; patrz tabela 1) zamontowanej na stoliku mikroskopu odwróconego. Pozostawić naczynia na dnie komory rejestracyjnej na co najmniej 5 minut przed rozpoczęciem eksperymentów.
- Skan wzrokowy w poprzek komory rejestracyjnej w celu zidentyfikowania tętniczek o długości > 200 μm i posiadających otwarty koniec, przez który naczynie może być kaniulowane (identyfikacja typu naczynia jest bardziej szczegółowo omówiona w sekcji wyników). Ustaw naczynie w środku pola widzenia. Jeżeli nie ma odpowiednich naczyń, przenieść kolejną porcję homogenatu z naczynia do komory rejestrującej zgodnie z krokiem 2.1.
- Zakotwicz jeden koniec naczynia za pomocą cienkich kleszczy i małego ślizgu z drutu wolframowego (średnica 75 μm i długość ~ 2 - 4 mm) umieszczonego nad naczyniem (patrz Rysunek 1C(i)). Aby to zrobić, przytrzymaj drut w kleszczach i umieść kleszcze nad komorą nagrywania.
- Zidentyfikuj odpowiedni cień kleszczy pod mikroskopem, opuść kleszcze do wanny, aż drut stanie się widoczny. Umieść drut nad naczyniem około 200 μm od otwartego końca i upuść drut prostopadle do długiej osi naczynia.
UWAGA: Ciężar drutu wolframowego jest wystarczający, aby dystalnie zamknąć naczynie, zatrzymując przepływ zawartości światła podczas kaniulacji i zwiększania ciśnienia.
- Zidentyfikuj odpowiedni cień kleszczy pod mikroskopem, opuść kleszcze do wanny, aż drut stanie się widoczny. Umieść drut nad naczyniem około 200 μm od otwartego końca i upuść drut prostopadle do długiej osi naczynia.
- Przesunąć tętniczkę do odpowiedniej pozycji w komorze rejestracyjnej, tak aby leżała poziomo w poprzek kąpieli z otwartym końcem w jednej linii z kaniulą ciśnieniową (patrz Rysunek 1C(ii-iv)). Zrób to, delikatnie popychając zasłaniający zsuwkę drutu wolframowego dodatkowym odcinkiem drutu trzymanym w kleszczach; Nie dotykaj tętniczki, ponieważ nieodwracalnie przylgnie do kleszczy.
- Tam, gdzie to konieczne (dla długich odcinków tętniczki), dodać dodatkowe ślizgi drutu wolframowego nad naczyniem, tak aby odległość między niedrożnym a otwartym końcem naczynia nie przekraczała 200 μm; pomaga to zapobiec przesuwaniu się tętniczki poza pole widzenia po zwiększeniu ciśnienia. Jeśli naczynie posiada jakieś boczne odgałęzienia, należy je również zasłonić dodatkowymi zrazami z drutu wolframowego. Jeśli nie można zasłonić bocznej gałęzi, wyrzuć naczynie.
- Przeprowadzić fuzję komory za pomocą 0Ca2+ Hanks' w temperaturze 37 °C w celu usunięcia obcej tkanki siatkówki i podgrzania kąpieli do temperatury fizjologicznej.
UWAGA: Do tego celu można użyć standardowego systemu perfuzji kąpielowej z grawitacją grawitacyjną i grzałką liniową (patrz Rysunek 1A). 0Ca2+ Hanks' jest stosowany w celu ułatwienia procedury kaniulacji, ponieważ usunięcie zewnętrznego Ca2+ zapewnia, że tętniczki pozostają rozszerzone. - Wytwarzaj kaniule ciśnieniowe z kapilar z włókna ze szkła borokrzemianowego (średnica końcówki ~ 3 - 10 μm w zależności od średnicy naczynia, które ma być kaniulowane; mniejsze naczynia wymagają węższych kaniul; patrz Tabela materiałów) za pomocą ściągacza mikroelektrod i wypełnij z powrotem roztworem 0Ca2+ Hanksa. Upewnij się, że trzpień kaniuli jest delikatnie zwężający się w kierunku końcówki, aby ułatwić kaniulację.
- Zamontuj kaniulę w uchwycie na pipety podłączonym do strzykawki o pojemności 10 ml za pomocą łącznika Y i 3-kierunkowego kranu; służy do zwiększania ciśnienia w systemie, ciśnienie jest rejestrowane za pomocą manometru przymocowanego do drugiego bocznego ramienia złącza Y (patrz Rysunek 1B).
UWAGA: Do pomocy w procesie kaniulacji wymagana jest pipeta "pomocnicza". Pipetę należy wykonać z kapilary ze szkła borokrzemianowego naciągniętej na ściągacz do mikroelektrod do średnicy końcówki 0,5–2 μm. Mocno wypoleruj pipetę (często aż do zamknięcia) za pomocą mikrokuźni. - Ostrożnie ustawić pipetę pomocniczą pod kątem prostym do długiej osi naczynia w pobliżu otwartego końca za pomocą 3-osiowego manipulatora mechanicznego (patrz Rysunek 1D). Umieść pipetę pomocniczą tuż nad naczyniem, ale nie dotykając go.
- Umieść pipetę kaniulacyjną na otwartym końcu naczynia (patrz Rysunek 1D i 2A(i)) za pomocą precyzyjnego mikromanipulatora; umieść końcówkę bezpośrednio przylegającą do otworu, zgodnie z oceną, regulując płaszczyznę ostrości na mikroskopie (przy 20X). Gdy zarówno koniec naczynia, jak i końcówka kaniuli są w tym samym czasie zogniskowane, kaniula jest prawidłowo ustawiona do kaniulacji (patrz Rysunek 2A(ii)).
- Wsuń kaniulę ciśnieniową do otworu naczynia za pomocą elementów sterujących osi x precyzyjnego mikromanipulatora (patrz Rysunek 2A(iii)). Oceń powodzenie kaniulacji, przesuwając kaniulę wzdłuż osi y. Jeśli kaniula pozostaje w naczyniu, jest pomyślnie kaniulowana (patrz Rysunek 2A(iv)). Jeśli kaniula wysunie się na zewnątrz naczynia, prawdopodobnie kaniula znajdzie się nad naczyniem; Jeśli tak, powtórz kroki 2.10 - 2.11 z kaniulą w dolnej płaszczyźnie osi z.
- Po udanej kaniulacji delikatnie opuść pipetę pomocniczą na naczynie, aby unieruchomić tętniczkę. Poprowadź ścianę tętniczki przez kaniulę ciśnieniową za pomocą pipety pomocniczej, w tym samym czasie, gdy pipeta kaniulacji jest przesuwana dalej w światło naczynia na odległość około 30 - 50 μm (patrz Rysunek 2A(v,vi)).
UWAGA: Ta procedura wymaga jednoczesnego, kontrolowanego ruchu obu manipulatorów (pipeta pomocnicza przesuwa się w kierunku kaniuli, podczas gdy kaniula przesuwa się do światła naczynia) i będzie wymagała rozległej praktyki, aby osiągnąć wysoki wskaźnik sukcesu. - Zmienić roztwór kąpieli na normalny roztwór Hanksa zawierający 2 mM Ca2+ (patrz Tabela 1) w temperaturze 37 °C. Zazwyczaj powoduje to nieznaczne zwężenie tętniczki i utworzenie szczelnego uszczelnienia wokół kaniuli ciśnieniowej. Pipetę pomocniczą można następnie odsunąć od naczynia.
- Pozwól, aby wytworzyło się szczelne uszczelnienie przez 15 minut. Obejrzyj naczynie za pomocą kamery USB (i oprogramowania do akwizycji obrazu) podłączonej do mikroskopu i dostosuj ostrość, aby zmaksymalizować kontrast między granicami naczynia a przestrzeniami zewnętrznymi i wewnątrzświetlnymi (patrz Rysunek 2B). Obraz naczynia z prędkością 0,5 - 5 klatek/s.
- Po 1 minucie zapisu przy 0 mmHg zwiększ ciśnienie śródświetlne do pożądanego poziomu, zamykając 3-kierunkowy kran przymocowany do kaniuli ciśnieniowej (patrz Rysunek 1B) i zastosuj niewielką ilość nadciśnienia do systemu za pomocą strzykawki. Obserwuj zmianę ciśnienia na manometrze.
UWAGA: Ciśnienie można dodawać skokowo do 100 mmHg lub do jednej wartości, na przykład 40 mmHg (przybliżone ciśnienie tętniczki siatkówki in vivo)23. Naczynie powinno się szybko rozszerzyć, potwierdzając pomyślną kaniulację. Należy pamiętać, że zwężenie naczyń krwionośnych wywołane ciśnieniem (tj. reakcja miogenna) rozwinie się następnie w ciągu 15 minut, ale ze względu na mały rozmiar tych naczyń może to nie zawsze być wizualnie wykrywalne. - Uważnie monitoruj naczynie podczas początkowego zwiększania ciśnienia pod kątem oczywistych wycieków. Źródłem przecieku mogą być rozszczepione boczne gałęzie lub nieodpowiednie uszczelnienie kaniuli do wnętrza tętniczki.
- Uważaj, czy zawartość śródświateł nie opuszcza naczynia. Mniejsze, mniej oczywiste nieszczelności mogą z czasem stać się widoczne jako spadek ciśnienia na manometrze. Jeśli to możliwe, zatkaj otwór dodatkowymi ślizgami z drutu wolframowego, uważając, aby nie naruszyć kaniuli. Preparaty z oczywistym wyciekiem należy wykluczyć z dalszej analizy.
- Lek będący przedmiotem zainteresowania należy nanieść abluminnie na naczynie przed lub po 15-minutowym zwiększeniu ciśnienia, w zależności od celów eksperymentu (pierwsze pozwala określić wpływ na rozwój tonu miogennego, podczas gdy drugie umożliwia analizę wpływu na ton miogenny w stanie ustalonym). Typowy system dostarczania leków jest przedstawiony w Rysunek 3A.
- Umieść wylot tłoczny prostopadle do części naczynia będącej przedmiotem zainteresowania (jak pokazano na Rysunek 1D) w odległości ~ 500 μm od interesującego Cię naczynia, zwracając uwagę, aby upewnić się, że wylot jest optymalnie ustawiony, aby w pełni zalać obszar (patrz Rysunek 3B). Upewnij się, że zmiany w perfuzji nie zakłócają fizycznie naczynia.
- Po zakończeniu eksperymentu należy zastosować roztwór 0Ca2+ Hanks' zawierający 10 μM wortmanniny (inhibitor kinazy łańcucha lekkiego miozyny), aby maksymalnie rozszerzyć naczynie w celu określenia średnicy pasywnej.
UWAGA: Wytrzymałość uszczelki kaniulacyjnej można sprawdzić na zakończenie eksperymentu, podnosząc ciśnienie śródświetlne do >100 mmHg. Większość zbiorników pozostanie podłączona nawet przy tak wysokim ciśnieniu, co wskazuje na szczelne uszczelnienie. - Wykonuj analizę offline za pomocą wykrywania krawędzi w celu śledzenia zmian średnicy tętniczki (patrz Tabela materiałów, aby zapoznać się z sugerowanym oprogramowaniem). Znormalizuj średnicę tętniczki do średnicy biernej w celu porównania naczyń.
3. Obrazowanie Ca2+
Uwaga: Izolowane tętniczki siatkówki są przygotowywane do konwencjonalnego (mikrofluorymetria) i konfokalnego obrazowania Ca2+ w następujący sposób (przy użyciu sprzętu wyszczególnionego w Tabeli Materiałów).
- Przygotować homogenaty siatkówki w szklanej probówce o pojemności 5 ml, jak opisano w sekcji 1. Do 1 ml homogenatu siatkówki dodać Fura-2AM (zapis mikrofluorometryczny Ca2+) lub Fluo-4AM (obrazowanie konfokalne Ca2+), aby uzyskać końcowe stężenie 5 μM (chronić przed światłem); Wskaźniki barwnika preferencyjnie ładują się do komórek mięśni gładkich.
- Utrzymuj w temperaturze pokojowej w ciemności przez 2 godziny, przesuwając bok rurki co 15 - 20 minut, aby ponownie zawiesić tkankę siatkówki. Następnie rozcieńczyć homogenat w stosunku 1:4 roztworem LCH, aby zmniejszyć dalsze obciążenie barwnikiem.
UWAGA: Naczynia zachowują żywotność do 6 godzin (przy przechowywaniu w temperaturze 4 °C i w ciemności); Zaleca się jednak jak najszybsze rozpoczęcie eksperymentów w celu zmniejszenia wpływu podziału barwnika na przedziały w organellach wewnętrznych lub ekstruzji barwnika w czasie. - Przenieść 1 - 2 ml homogenatu siatkówki do komory zapisowej ze szklanym dnem (częściowo wypełnionej LCH) zamontowanej na stoliku mikroskopu odwróconego podłączonego do systemu mikrofluorymetrii Ca2+ lub mikroskopii konfokalnej.
- Tętniczki kotwiczne prostopadłe do kierunku przepływu w poprzek komory rejestracyjnej, z odcinkami drutu wolframowego (o średnicy 50 μm, długości 2 - 4 mm) rozmieszczonymi w odległości ~ 100 - 200 μm od siebie na długości naczynia (patrz Rysunek 3C) przy użyciu techniki podobnej do opisanej w kroku 2.3.
- Przeprowadzić fuzję kąpieli z normalnym roztworem Ca2 + Hanksa w temperaturze 37 °C. Ustawić wylot dostarczania leku, jak pokazano na rysunku Rysunek 3C i nanieść leki na naczynia zgodnie z opisem w kroku 2.17.
- W przypadku konwencjonalnego obrazowania Ca2+ należy oświetlić naczynie światłem o długości fali 340/380 nm za pomocą soczewki UV z zanurzeniem w oleju (np. 100X, NA 1,3) i zebrać wyemitowaną fluorescencję przy 510 nm za pomocą fotopowielacza zliczającego fotony (PMT).
- Na koniec każdego doświadczenia zmierzyć fluorescencję tła poprzez wygaszenie naczynia roztworem zawierającym MnCl (patrz Tabela 1). Do analizy należy użyć współczynników fluorescencji skorygowanych w tle (R-F340/F380) lub przekonwertować na wewnątrzkomórkowe Ca2+ ([Ca2+]i) za pomocą pomiarów Rmin i Rmax (patrz Tabela 1; stosowane przed hartowaniem24) i równania Grynkiewicza25.
- W przypadku obrazowania konfokalnego Ca2+ wzbudzić naczynia naładowane Fluo-4 przy 488 nm i uchwycić wynikowe emisje fluorescencji przy 490 - 535 nm w trybie skanowania liniowego (xt) lub trybie skanowania xyt (512 x 512 pikseli; sugerowany otwór 300 nm). Normalizuj pomiary do fluorescencji zarejestrowanej w czasie t=0s (F/F0). Oceń wszelkie zmiany w [Ca2+]i podczas aplikacji leków lub zwiększania ciśnienia offline w określonych obszarach zainteresowania (ROI) za pomocą oprogramowania do analizy obrazu.
- W razie potrzeby wykonaj obrazowanie Ca2+ z miografią ciśnieniową.
UWAGA: Powyższe opisy zostały zoptymalizowane dla zbiorników bezciśnieniowych; jednak możliwe jest połączenie obrazowania Ca2 + z miografią ciśnieniową w następujący sposób.- Wyizolować tętniczki zgodnie z punktem 1. Załaduj barwnikami wskaźnikowymi Ca2+ zgodnie z krokami 3.1 - 3.2. Przenieść tętniczki do komory rejestracyjnej i poddać kanulacji zgodnie z sekcją 2. Należy pamiętać, aby ograniczyć ekspozycję na światło podczas procedury montażu.
- Zmierz Ca2+ zgodnie z krokiem 3.5 lub 3.7 powyżej. Zwiększyć ciśnienie w naczyniu i powtórzyć pomiar Ca2+. Jednoczesny pomiar średnicy naczynia jest uzależniony od trybu pomiaru Ca2+ i zastosowanej aparatury.
UWAGA: W przypadku pomiaru konfokalnego Ca2+ może być konieczne zobrazowanie oddzielnych obszarów przed i po zwiększeniu ciśnienia z powodu bielenia barwnika podczas długich ekspozycji na światło.
4. Elektrofizjologia z zaciskiem łatkowym
Uwaga: Możliwe jest nagrywanie całokomórkowe i jednokanałowe z pojedynczych komórek mięśni gładkich tętniczek nadal osadzonych w ich tętniczkach macierzystych w następujący sposób (przy użyciu sprzętu wyszczególnionego w Tabeli Materiałów).
- Wyizolować i zakotwiczyć tętniczki siatkówki w komorze rejestracyjnej zgodnie z opisem w krokach 1, 2.3 i 3.3. W przypadku nagrywania metodą patch-clamp zsuwki drutu wolframowego są oddalone od siebie o 200 - 800 μm wzdłuż naczynia.
- Usuń blaszkę podstawy otaczającą tętniczkę i elektrycznie rozłącz sąsiednie komórki mięśni gładkich i leżące poniżej komórki śródbłonka przed zaciśnięciem łatki. W tym celu należy przelać naczynie za pomocą sekwencyjnej serii roztworów enzymatycznych (Tabela 1) w temperaturze 37 °C przez wymagany czas.
UWAGA: Czas ekspozycji na enzym jest zoptymalizowany dla tętniczek siatkówki szczura (proteaza, ~ 8 min; kolagenaza, ~ 12 min) i zależy od natężenia przepływu systemu dostarczania leku (~1 ml / min w naszym zestawie) i aktywności jednostkowej partii stosowanych enzymów. - Oceń poziom trawienia przy wizualnym oddzieleniu warstw śródbłonka i mięśni gładkich podczas etapu kolagenazy, jak pokazano na Rysunek 4. Po zaobserwowaniu separacji warstw komórkowych (jak pokazano na Rysunek 4B), zastosuj roztwór DNAzy I (~ 4 min), a następnie zakończ trawienie przez zastąpienie roztworu kąpieli normalnym roztworem Ca2 + Hanksa.
- Usuń wszelkie pozostałe pasma blaszki podstawnej i/lub neuropile obwodowej, ostrożnie przesuwając zamknięte końcówki cienkich kleszczyków wzdłuż powierzchni naczynia.
- Pociągnij i wypoleruj szklane kapilary (tabela materiałów), napełnij roztworem pipety (tabela 1) i umieść bezpiecznie w uchwycie na pipety w szyjce głównej patch-clamp. Ustawić pipetę pod kątem 45° w stosunku do komory rejestrującej i przesunąć ją w kierunku naczynia, korzystając z ustawienia zgrubnego na zmotoryzowanym mikromanipulatorze.
- Wybierz komórkę mięśni gładkich wystającą ze ściany naczynia, której powierzchnia jest wolna od widocznych zanieczyszczeń (patrz Rysunek 4B). Umieść końcówkę pipety z plastrem pionowo nad komórką zainteresowania i stopniowo obniżaj, wykorzystując delikatny/powolny ruch mikromanipulatora, aby zetknąć się z błoną mięśni gładkich.
- Oceń wizualnie kontakt między komórką a pipetą na podstawie ruchu komórki i zmiany rezystancji pipety mierzonej za pomocą protokołu testu membrany (uszczelnienia) w oprogramowaniu do akwizycji (ujemny krok 5-10 mV od 0 mV, częstotliwość 25 KHz; patrz Rysunek 5A(i)).
- Gdy rezystancja uszczelnienia wzrosła 5-krotnie (np. z 2 do 10 MΩ; Rysunek 5A(ii)) zastosować przejściowo podciśnienie z tyłu uchwytu pipety za pomocą złącza Y, 3-kierunkowego kranu, strzykawki i rurki dołączonej do uchwytu pipety (zmontowanej w podobny sposób jak ta używana do zwiększania ciśnienia w tętniczkach, patrz Rysunek 1B).
- Powtarzaj przyłożenia podciśnienia, aż powstanie gigaseal (rezystancja >1 GΩ; zgodnie z testem membrany w oprogramowaniu do akwizycji) (Rysunek 5A(iii)). Pamiętaj, że ten proces może potrwać od 1 do 5 minut. Jeśli nie uda się utworzyć gigaseal, wybierz inną komórkę do zaciśnięcia za pomocą nowej pipety do patchowania.
- Zastosuj potencjał utrzymywania do ogniwa za pomocą oprogramowania akwizycyjnego zgodnie z przeprowadzanym eksperymentem (zwykle 0, -40 lub -80 mV).
- Zbadaj aktywność pojedynczego kanału (na komórce) w obecnej konfiguracji. Alternatywnie, można wygenerować plastry na lewą stronę, szybko wycofując pipetę z plastrem z powierzchni komórki po utworzeniu gigaseal.
- Ponieważ wolne końce membrany mogą ulec ponownemu wyżarzaniu w tych warunkach, należy wyjąć pipetę z kąpieli poprzez szybki ruch pionowy manipulatora (ustawienie zgrubne). Szybko wróć przez menisku, aby usunąć zreformowaną membranę, pozostawiając tylko plaster wewnątrz końcówki pipety.
- Ustaw częstotliwość próbkowania w oprogramowaniu akwizycyjnym na 5 kHz i aktywuj tryb ciągłego nagrywania, aby rejestrować aktywność kanału. W razie potrzeby zastosuj wszelkie zmiany napięcia za pomocą oprogramowania lub wzmacniacza.
- W razie potrzeby nanieść leki na naczynie/błonę, jak opisano w kroku 2.17.
- Jeśli wymagane jest rozciągnięcie membrany, należy zastosować podciśnienie w tylnej części pipety za pomocą strzykawki podłączonej do manometru za pomocą 3-kierunkowego kranu i łącznika Y.
- Analizuj nagrania jednokanałowe pod kątem otwartego prawdopodobieństwa i przewodności unitarnej zgodnie ze standardowymi procedurami26.
- W przypadku pipet rejestrujących prąd całej komórki i polerujących zgodnie z tabelą materiałów, napełnić roztworem pipet zawierającym amfoterycynę B (dodać 3 mg amfoterycyny B do 50 μl DMSO; dodać 3-6 μl tej ilości do 1 ml roztworu pipety dla całych komórek; sonikować do mieszania) i utworzyć uszczelkę zgodnie z krokami 4.6 - 4.9.
- Ze względu na włączenie amfoterycyny B nie ma potrzeby pękania membrany w końcówce pipety, aby uzyskać dostęp do całej komórki. Monitorowanie dostępu, który będzie uzyskiwany stopniowo, przy użyciu protokołu testu membranowego w oprogramowaniu do akwizycji (krok -20 mV od -40 mV, częstotliwość próbkowania 25 KHz; patrz Rysunek 5B).
- Automatyczne dopasowanie pojemnościowych stanów nieustalonych w niektórych programach zapewnia pomiary rezystancji dostępu i pojemności komórki w czasie rzeczywistym (alternatywnie względny spadek stanów nieustalonych można ocenić na oko). Gdy rezystancja dostępu spadnie do < 15 MΩ, wykonaj szeregową kompensację rezystancji (Rysunek 5C) za pomocą pokręteł parametrów całego ogniwa (pojemność i rezystancja szeregowa) na wzmacniaczu.
- Aby to zrobić, użyj automatycznych wartości dopasowania, aby początkowo ustawić tarcze (patrz Rysunek 5C(ii)), a następnie zwiększ pokrętło kompensacji rezystancji szeregowej (zarówno predykcja, jak i korekcja, jeśli są dostępne na wzmacniaczu), ponownie dostosowując kompensacje całego ogniwa, jednocześnie zmniejszając pojemnościowy stan przejściowy (patrz Rysunek 5C(iii)).
- Uważanie, aby nie przesadzić z kompensacją (jak pokazano w Rysunek 5C(iv)). Zazwyczaj możliwe jest skompensowanie oporu szeregowego o 75% w trybie perforacji łatowej (wymaga ustawienia maksymalnej kompensacji opóźnienia).
- Jeśli nie jest dostępne automatyczne dopasowanie, zacznij od ustawienia parametrów całej komórki na 15 pF i 15 mΩ (typowe wartości dla tych komórek), a następnie dostosuj, aby uzyskać wyniki, jak pokazano na Rysunek 5C(ii). Zwiększ pokrętło kompensacji rezystancji szeregowej do ~75% i ponownie wyreguluj pokrętła parametrów całego ogniwa zgodnie z Rysunek 5C(iii).
- Przed rozpoczęciem eksperymentów należy zwrócić uwagę na pomiar pojemności ogniwa albo od początkowego automatycznego dopasowania, albo od tarczy po ręcznej kompensacji.
UWAGA: Ta wartość służy do normalizacji prądów do rozmiaru komórki. Kompensacja oporności szeregowej może wymagać dostosowania podczas eksperymentów, ponieważ dostęp może się nadal poprawiać ze względu na dalsze włączenie amfoterycyny B do plastra. - Nałóż leki na naczynia krwionośne zgodnie z opisem w kroku 2.17. Zastosuj protokoły napięcia (kroki lub rampy) zgodnie z wymaganiami eksperymentalnymi.
UWAGA: Typowe protokoły krokowe napięcia, trwające 0,1 - 1 s, są stosowane z potencjału podtrzymania w krokach co 5 - 10 mV co 5 - 10 s w celu wytworzenia rodziny prądów aktywowanych napięciem. Alternatywnie można użyć protokołów rampowych do pomiaru prądów przy szeregu napięć w jednym "przemiataniu", powoli zwiększając napięcie (100 - 200 mV/s) od np. -80 do +80 mV (stosowane co 5-10 s) z próbkowaniem prądu w trybie offline w odstępach 10 mV podczas rampy. - Możliwe jest połączenie obrazowania Ca2+ z zapisem patch-clamp w następujący sposób. Wyizolować tętniczki zgodnie z punktem 1. Załadować barwnikami wskaźnikowymi Ca2+ zgodnie z krokami 3.1 - 3.2. Zamontować w komorze zapisu zgodnie z sekcją 4. Należy pamiętać, aby ograniczyć ekspozycję na światło podczas tych zabiegów.
UWAGA: Do tej pory nie było możliwe połączenie patch-clamp z badaniami miografii ciśnieniowej ze względu na utratę błony podstawnej i integralności naczynia podczas procesu dysocjacji enzymatycznej
Wyniki
Rysunek 6A przedstawia schematyczny rysunek drzewa naczyniowego siatkówki szczura. Zakresy średnic tętniczek pierwszego rzędu (30 - 45 µm), drugiego rzędu (20 - 30 µm) oraz przedkapilarnych (8 - 20 µm) zostały potwierdzone eksperymentalnie w naszym laboratorium za pomocą obrazowania konfokalnego preparatów całych siatkówek szczura, znakowanych immunohistochemicznie pod kątem α-aktyny mięśni gładkich (Rysunek 6B). Po dysocjacji siatkówki tętniczki pierwotne, wtórne i przedkapilarne można zidentyfikować na podstawie ich kalibru oraz rozmieszczenia komórek mięśni gładkich naczyń. Tętniczki pierwszego i drugiego rzędu wyglądają podobnie w mikroskopii w polu jasnym, ale można je rozróżnić na podstawie ich rozmiaru (Rysunek 6C). Tętniczki przedkapilarne są najmniejszymi naczyniami tętniczymi w preparacie i są łatwo rozpoznawalne ze względu na rzadsze rozmieszczenie włókien mięśni gładkich naczyń. Wyizolowane tętniczki można wyraźnie odróżnić od kapilar i żyłek w obrębie izolacji. Kapilary widoczne są jako sieć naczyń o małym kalibrze (średnica 4 - 10 µm), natomiast żyłki mają cienkie ściany i nie posiadają warstwy komórek mięśni gładkich (Rysunek 6C). Tętniczki pierwotne, wtórne i przedkapilarne nadają się do myografii ciśnieniowej, obrazowania Ca2+ oraz badań metodą patch-clamp.
Rycina 7 przedstawia eksperyment z zakresu presyjnej miografii, w którym dokonano kanulacji pierwotnej tętniczki siatkówkowej szczura i zwiększono ciśnienie wewnątrzświatłowe do 40 mmHg. Tętniczkę utrzymywano następnie pod tym ciśnieniem, aby umożliwić wykształcenie napięcia miogenicznego przed dodaniem 0Ca2+ zawierający pożywkę Hanksa 10 µM wortmannin w celu uzyskania pasywnej średnicy naczynia. Rysunek 7A przedstawia fotomikrografie tętniczki w różnych punktach czasowych w trakcie trwania eksperymentu. Pełny zapis przebiegu czasowego, obrazujący zmiany średnicy naczynia w czasie, został przedstawiony na wykresie w Rycina 7B przy użyciu autorskiego oprogramowania do detekcji krawędzi27Bezpośrednio po nadciśnieniu naczynie ulega rozszerzeniu, po którym następuje aktywny skurcz miogenny osiągający poziom stanu stacjonarnego po 15 min. Dodanie 0Ca2+ Roztwór Hanksa/wortmannina rozszerza naczynie do poziomu zbliżonego do tego, który obserwowano bezpośrednio po wstępnym etapiey zwiększania ciśnienia. Jak opisano powyżej, leki można aplikować do naczyń przed lub po pressuryzacji, aby zbadać mechanizmy leżące u podstaw powstawania i utrzymywania napięcia miogenicznego w tych naczyniach. Stosując to podejście, wykazaliśmy wcześniej, że aktywowane rozciąganiem kanały TRP (Transient Receptor Potential) Vanilloid 2 (TRPV2) oraz woltażowo zależne kanały wapniowe typu L i T2+ kanały odgrywają kluczową rolę w ułatwianiu rozwoju napięcia miogenicznego w tętniczkach siatkówki szczura pierwszego i drugiego rzędu20,21,22Zakomunikowaliśmy również, że kanały wapniowe o dużym przewodnictwie (BK)2+ aktywowane kanały potasowe (kanały BK)19,28 oraz Kvzawierające bramkowane napięciowo kanały K1+ kanały te przeciwdziałają aktywności miogenicznej w tych naczyniach, ponieważ dodanie specyficznych inhibitorów każdego z tych kanałów wywołuje skurcz naczyń (Rycina 7C).
Rysunek 8 przedstawia przykłady konwencjonalnego i konfokalnego obrazowania Ca2+ w tętniczkach siatkówki przed i po ekspozycji na peptyd obkurczający naczynia, endotelinę-1 (Et-1). W konwencjonalnych rejestracjach opartych na fura-2 (Rysunek 8A), Et-1 (10 nM) wywołuje dwufazowy wzrost [Ca2+]i w warstwie mięśni gładkich tętniczek siatkówki, składający się z początkowej komponenty przejściowej, po której następuje niższa komponenta utrzymająca. Wcześniej scharakteryzowaliśmy komponentę przejściową i utrzymającą jako wynikające odpowiednio z uwalniania Ca2+ z retikulum endoplazmatycznego oraz napływu Ca2+ z przestrzeni zewnątrzkomórkowej29. Konfokalne obrazowanie Ca2+ oparte na Fluo-4 dostarcza bardziej szczegółowego obrazu efektów działania Et-1 na poziomie komórkowym. W tych eksperymentach ewidentne jest, że łagodne, stopniowe zmiany globalnego [Ca2+]i obserwowane w naszych badaniach mikrofluorymetrycznych wynikają ze stymulowania przez Et-1 aktywacji powtarzalnych, asynchronicznych oscylacji [Ca2+]i w sąsiednich komórkach mięśni gładkich tętniczek siatkówki wzdłuż ściany naczynia (Rysunek 8B, C;30).
Rysunek 9 przedstawia przykłady rejestracji prądów pojedynczego kanału oraz w konfiguracji whole-cell metodą patch clamp z komórek mięśni gładkich tętniczek siatkówki. Do tej pory przeprowadziliśmy rejestracje prądów pojedynczego kanału w konfiguracjach on-cell oraz inside-out22,28. Rycina 9A, na przykład B, przedstawia rejestrację metodą patch-clamp w konfiguracji on-cell przed i po rozciągnięciu błony (wywołanym poprzez zastosowanie podciśnienia w pipecie patchowej). Ten konkretny fragment błony zawiera dwa kanały aktywowane przez rozciąganie mechaniczne. Wykazaliśmy wcześniej, że prądy te można zahamować przy użyciu przeciwciał blokujących pory kanałów TRPV222Przewodność jednostkowa kanałów (249,71 pS) jest również zgodna z tym, że prądy te są pośredniczone przez TRPV231.
Prądy aktywowane napięciowo w konfiguracji whole-cell można wywołać, stosując protokoły skokowe napięcia. Rycina 9C przedstawia rodzinę wolto-aktywowanych prądów potasowych typu A (K+) zarejestrowanych przy użyciu tej metody. Prądy te stają się widoczne, gdy inne duże prądy występujące w tych komórkach (np. prądy BK oraz prądy Cl- aktywowane jonami Ca+) zostaną zablokowane za pomocą specyficznych środków farmakologicznych32,33. Prądy przepływające przez kanały jonowe niezależne lub słabo zależne od napięcia są zazwyczaj badane przy użyciu protokołów rampy napięcia. Wykorzystaliśmy takie protokoły do identyfikacji i charakterystyki prądów TRPV2 aktywowanych przez rozciąganie hypotoniczne22 oraz agonistami kanałów (Rycina 9D) w komórkach mięśni gładkich tętniczek siatkówki.
Rysunek 10 przedstawia myografię dwuciśnieniową oraz obrazowanie konfokalne Ca2+ zastosowane w pierwotnej tętniczce siatkówki szczura. Pressuryzacja wywołuje zwiększenie częstotliwości oscylacji [Ca2+]i w pojedynczych komórkach mięśni gładkich, podobnie jak w przypadku Et-1. Wykazaliśmy wcześniej, że oscylacje te są wyzwalane przez sumowanie się iskier Ca2+ (lokalnych zdarzeń uwalniania Ca2+) i przyczyniają się do generowania napięcia miogennego20.
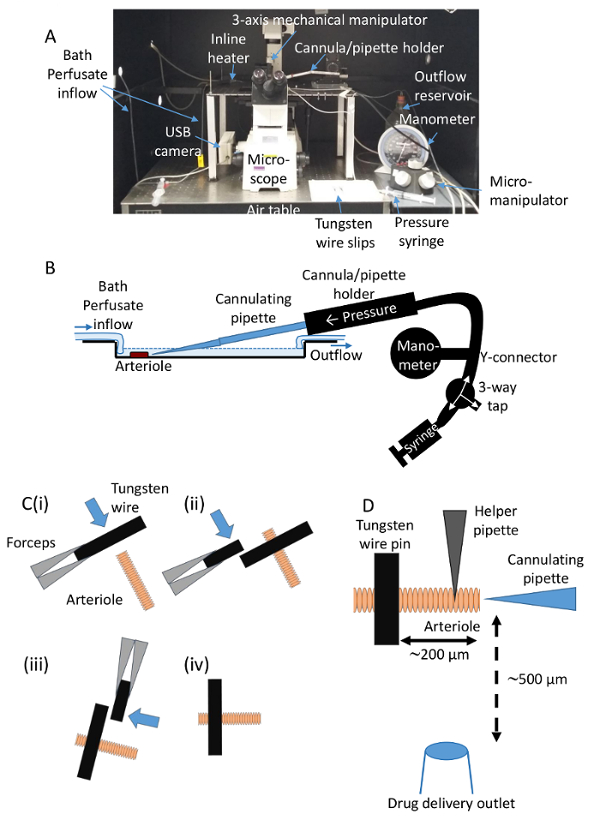
Rysunek 1. Układ doświadczalny do myografii ciśnieniowej tętniczek siatkówki szczura.A) Sprzęt eksperymentalny, w tym mikroskop odwrócony, podgrzewacz przepływowy perfuzatu do kąpieli, 3-osiowe manipulatory mechaniczne i mikromanipulatory, manometr, uchwyt do kaniuli oraz stół pneumatyczny. B) Schematycznie przedstawiono optymalne rozmieszczenie pipety kaniulacyjnej i badanego naczynia w komorze rejestracyjnej. Schemat ten obrazuje również podstawową konfigurację urządzenia do wytwarzania nadciśnienia. C) Schemat przedstawiający proces kotwiczenia i przesuwania naczynia przy użyciu dodatkowych uchwytów z drutu wolframowego trzymanych w pęsetie precyzyjnej. (i) Kropla 1st wsunąć pasek, aby zamknąć naczynie. (ii, iii) Użyć dodatkowych pasków, aby przesunąć pasek zamykający (kierunek wskazany strzałką) wraz z naczyniem do optymalnej orientacji przedstawionej na (iv). D) Schemat przedstawiający optymalne rozmieszczenie zatykającego wolframowego drutu poślizgowego, pipety pomocniczej i kaniuli w stosunku do naczynia, zgodnie z układem przed kaniulacją. Wylot systemu podawania leku znajduje się w odległości ~ 500 µm z naczynia, aby zredukować artefakty ruchowe podczas aplikacji leku. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
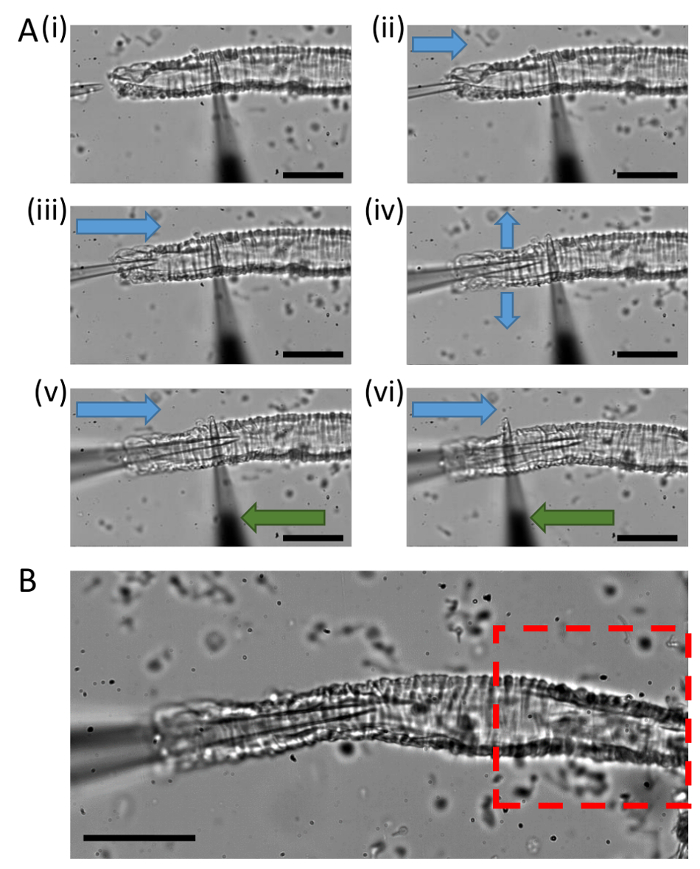
Rycina 2. Proces kanulacji w myografii ciśnieniowej.A) Fotomikrografie przedstawiające tętniczkę siatkówki zamocowaną w komorze pomiarowej przed (i), w trakcie (ii)-(v) oraz po kanulacji (vi). Niebieska strzałka wskazuje kierunek ruchu kanuli, a zielona strzałka wskazuje kierunek ruchu pipety pomocniczej. B) Fotomikrografia przedstawiająca optymalny obszar rejestracji aktywności miogennej podczas ciśnieniowania, zaznaczony na czerwono. Należy zauważyć, że regulacja światła i ostrości w celu zwiększenia kontrastu ścian naczyń umożliwia lepsze śledzenie krawędzi naczyń podczas analizy zautomatyzowanej. Pasek skali wskazuje 50 µm. Aby wyświetlić większą wersję tej ryciny, kliknij tutaj.
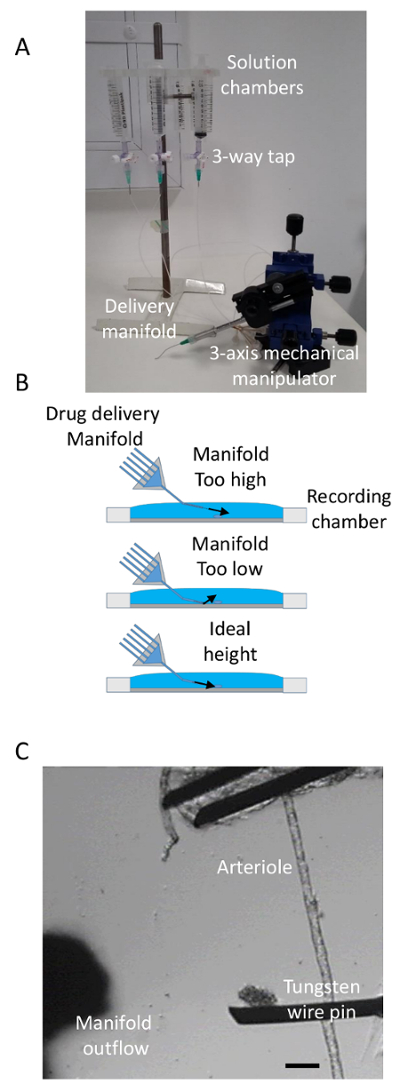
Rysunek 3. Podawanie leku. A) Urządzenie wykorzystywane do podawania leku, przedstawiające zbiorniki z roztworem połączone z wielokanałowym rozdzielaczem doprowadzającym, sterowanym za pomocą zaworów trójdrożnych i przymocowanym do 3-osiowego manipulatora mechanicznego. B) Schemat przedstawiający optymalne ustawienie pionowe rozdzielacza do podawania leku w stosunku do komory rejestracyjnej. C) Fotomikrografia naczynia przymocowanego w komorze rejestracyjnej, pokazująca idealne rozmieszczenie wylotu do podawania leku. Pasek skali reprezentuje 100 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
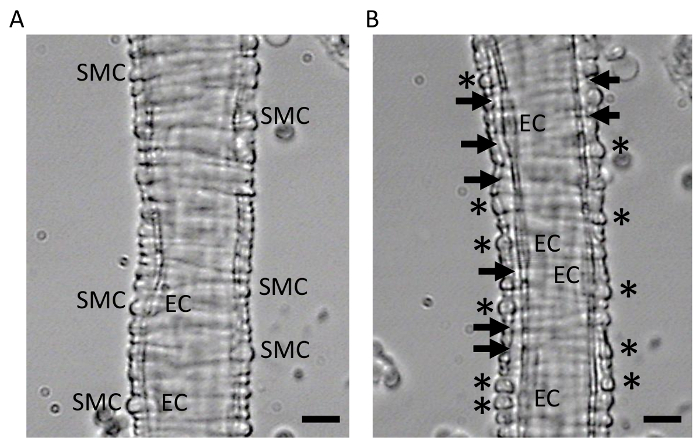
Rysunek 4. Trawienie enzymatyczne tętniczek siatkówki do rejestracji patch clamp. Mikrofotografie świetlne tętniczki siatkówki przed (A) i po (B) trawieniu enzymatycznym. Zwróć uwagę na fizyczne oddzielenie (wskazane strzałkami) komórek mięśni gładkich (SMCs) od leżących pod nimi komórek śródbłonka (ECs). Komórki mięśni gładkich odpowiednie do techniki patch clamp zaznaczono gwiazdką. Pasek skali odpowiada 10 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
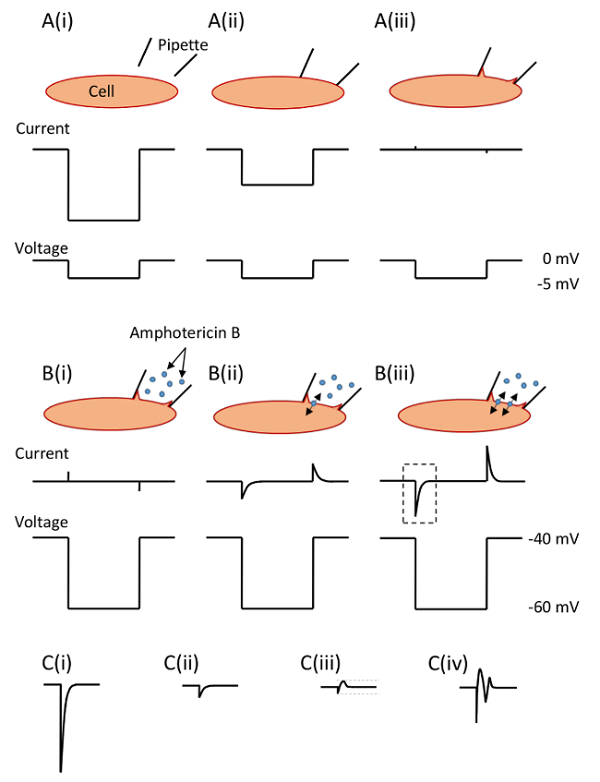
Rycina 5Rejestracja prądów pojedynczego kanału oraz całej komórki metodą patch clamp. A) Ilustracja prądów testowych obserwowanych podczas protokołu „testu szczelności” (seal test), gdy: (i) pipeta do patch-clampu wnika do zewnętrznego medium kąpielowego, (ii) końcówka pipety styka się z błoną plazmatyczną komórki mięśni gładkich naczyń i (iii) do tylnej części pipety przyłożone zostaje podciśnienie w celu utworzenia gigauszczelnienia (gigaseal). Po kompensacji pojemności pipety za pomocą wzmacniacza patch-clampowego można teraz rejestrować prądy pojedynczych kanałów w konfiguracji on-cell lub wyciąć fragment błony poprzez szybkie wycofanie pipety, tworząc patch „inside-out”. B) Zmiany prądowe związane z uzyskaniem dostępu elektrycznego do wnętrza komórki podczas zastosowania techniki perforowanego patch clampa z użyciem amfoterycyny B w całej komórce (i): (ii) w miarę wbudowywania się amfoterycyny B w błonę, rezystancja dostępu spada, a przejściowe prądy pojemnościowe wywołane skokami napięcia hiperpolaryzującego (od -40 do -60 mV) zwiększają się; (iii) po tym, jak rezystancja dostępu (Ra) spadło do < 15 MΩpo czym zazwyczaj w ciągu 5–10 min od uzyskania giga-uszczelnienia (gigaseal) można przystąpić do eksperymentu. CPrzed rozpoczęciem rejestracji w konfiguracji whole-cell należy skompensować rezystancję dostępu oraz pojemność komórki, korzystając z odpowiednich pokręteł wzmacniacza patch-clamp. W celu przeprowadzenia tego procesu można posłużyć się wartościami rezystancji dostępu i pojemności komórki dostarczanymi przez funkcje automatyczne oprogramowania do patch-clampu: (i) przedstawia przejściowy skok pojemności przed kompensacją, pobrany z zaznaczonego obszaru w B(iii); (ii) przedstawia redukcję skoku pojemności, zazwyczaj obserwowaną podczas kompensacji rezystancji dostępu i pojemności; (iii) kompensację rezystancji szeregowej należy następnie skorygować do poziomu 75%, a kompensację rezystancji dostępu i pojemności precyzyjnie dostroić tak, aby wynikający z tego skok miał relatywnie taką samą amplitudę powyżej i poniżej poziomu plateau prądu podczas skoku napięcia. (iv) Należy zadbać o to, aby nie doprowadzić do nadmiernej kompensacji rezystancji dostępu (oznaczonej wystąpieniem „oscylacji” sygnału przejściowego), co może czasami zdarzyć się, jeśli rezystancja dostępu nadal ulega poprawie w trakcie trwania eksperymentu. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
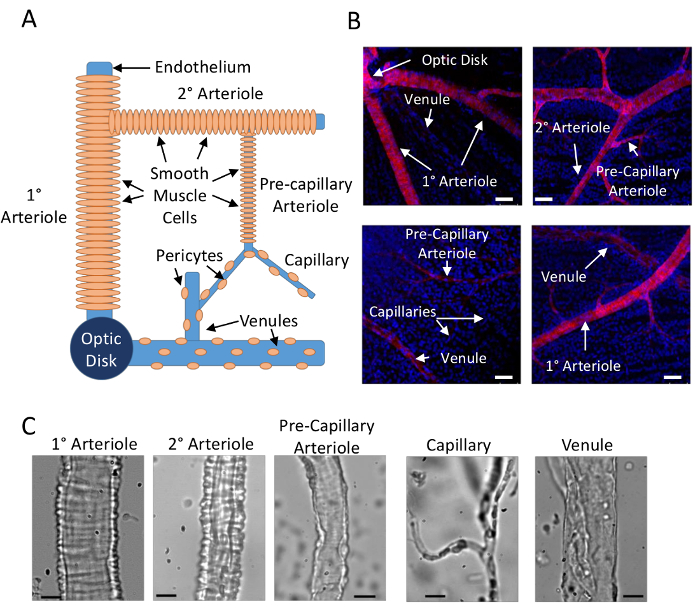
Rysunek 6. Identyfikacja izolowanych tętniczek siatkówki szczura. A) Ilustracja przedstawiająca układ drzewa mikro naczyniowego siatkówki szczura. B) Obrazy konfokalne tętniczek i żyłek siatkówki szczura w preparatach typu flat mount barwionych na αSMA (czerwony; jądra zabarwione na niebiesko; paski skali reprezentują 50 µm). C) Mikrografie świetlne izolowanych tętniczek 1°, 2° i przedkapilarnych, sieci kapilarnej oraz żyłki (paski skali reprezentują 10 µm). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
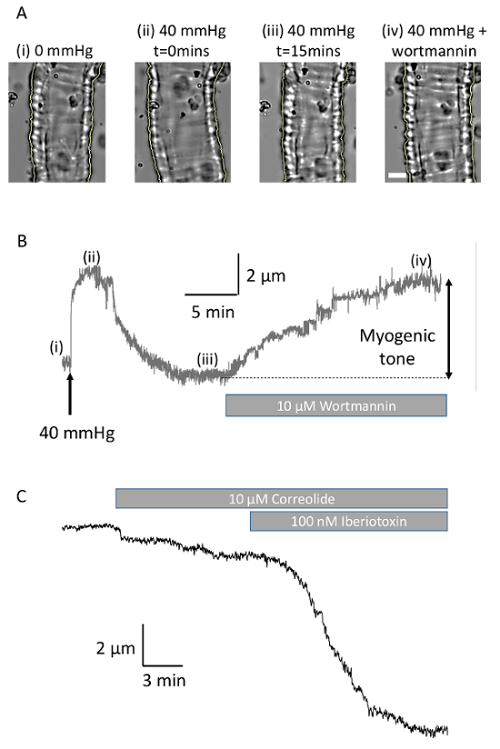
Rycina 7. Pomiary myograficzne ciśnienia w arteriolach. A) Obrazy kaniulowanej arterioli siatkówki pokazujące (i) średnicę spoczynkową (około 35.6 µm), (ii) rozszerzenie po podniesieniu ciśnienia, (iii) rozwój miogennego skurczu naczyń oraz (iv) rozszerzenie po dodaniu 10 µM wortmanniny w roztworze Hanksa 0Ca2+. Pasek skali reprezentuje 10 µm. B) Wykres przebiegu czasowego średnicy naczynia dla pełnego eksperymentu pokazanego w A (próbkowanie w częstotliwości 2.5 klatek/s). C) Zapis średnicy innej arterioli przy stałym napięciu miogennym (średnica 38.7 µm) pokazujący efekty inhibitora kanałów Kv1 correolidu (10 µM) oraz inhibitora kanałów BK iberiotoksyny (100 nM) (próbkowanie w częstotliwości 0.5 klatek/s). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
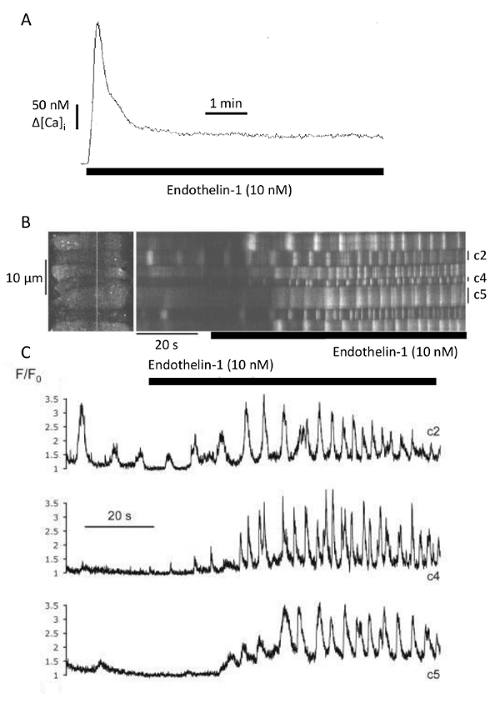
Rysunek 8. Wpływ Et-1 na aktywność sygnalizacyjną [Ca2+]i w tętniczkach siatkówki szczura. A) Klasyczny pomiar z użyciem fura-2 wykazujący wpływ Et-1 (10nM) na globalne [Ca2+]i. Poziom podstawowy [Ca2+]i w tej tętniczce 1° wynosił 82 nM. B) Konfokalne obrazy xt z użyciem Fluo-4 wykazujące wpływ Et-1 na [Ca2+]i na poziomie komórkowym. C) Wykres znormalizowanej intensywności fluorescencji (F/F0) zmierzonej w komórkach zaznaczonych na rysunku B. Rysunek zmodyfikowany na podstawie pracy Tumelty et al.30 za zgodą autorów. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
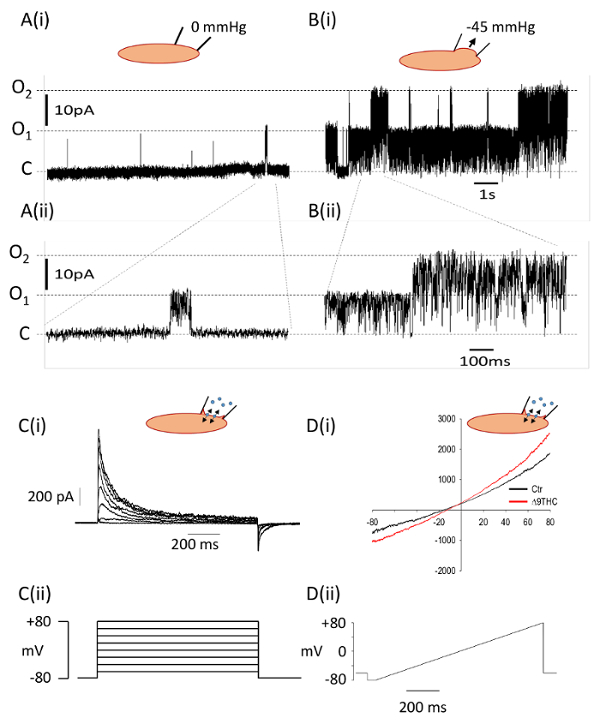
Rycina 9. Rejestracje patch-clamp pojedynczego kanału i całej komórki z komórek mięśni gładkich tętniczek siatkówki szczura. A, B) Rejestracje pojedynczego kanału w konfiguracji on-cell z tego samego fragmentu błony przed (A) i podczas (B) przyłożenia podciśnienia (-45 mmHg) do pipety patchowej. W fragmencie błony obecne są dwa kanały (prąd jednostkowy 12,81 pA; przewodność jednostkowa 249,71 pS), które wykazują znaczny wzrost aktywacji w warunkach rozciągania. Wybrane obszary z górnych paneli (i) przedstawiono w niższych panelach (ii) w krótszej skali czasowej. C) Rodzina prądów kanałów K+ typu A (i) zarejestrowanych w trybie whole-cell w obecności inhibitorów kanałów BK i kanałów Cl- aktywowanych przez Ca2+, wywołana w odpowiedzi na skokowe przyrosty napięcia o wartości 20 mV w zakresie od -80 mV do +80 mV (ii). D) Prądy całej komórki (i) wywołane rampami napięcia między -80 mV a +80 mV przed (linia czarna) i podczas (linia czerwona) aplikacji agonisty kanałów TRPV2, delta-9-tetrahydrokannabinolu (Δ9-THC). Protokół rampy napięcia przedstawiono w dolnym panelu (ii). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
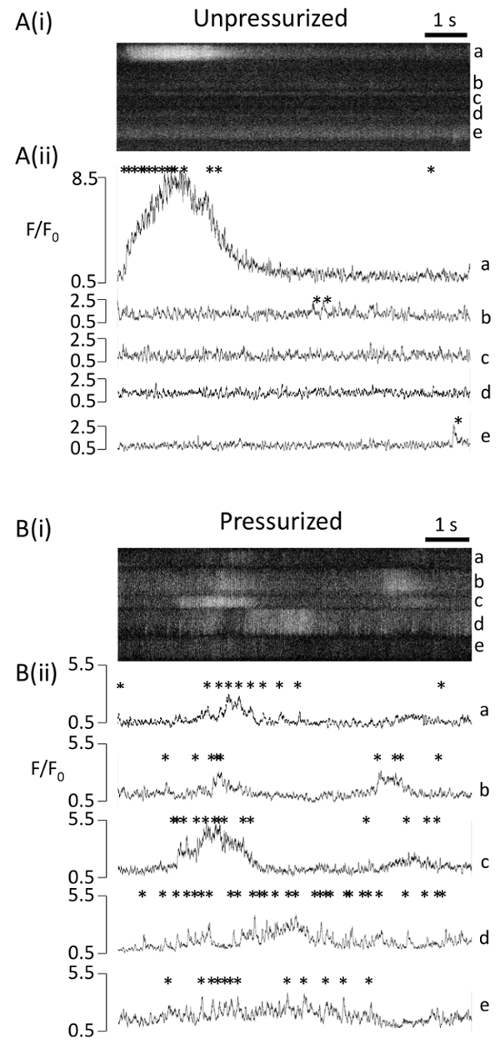
Rysunek 10. Obrazowanie konfokalne Ca2+ przed i po zwiększeniu ciśnienia w tętniczce siatkówki szczura. Reprezentatywne skany konfokalne xt (i) komórek mięśni gładkich tętniczki siatkówki w warunkach (A) bez zwiększonego ciśnienia oraz (B) pod zwiększonym ciśnieniem, uzyskane z oddzielnych obszarów tego samego naczynia. (ii) Zmiany znormalizowanej fluorescencji (F/F0) zarejestrowane w poszczególnych komórkach a - e, wskazanych na (i), przedstawione w funkcji czasu. Gwiazdki oznaczają poszczególne subkomórkowe rozbłyski (sparks) Ca2+, których częstotliwość wzrasta po zwiększeniu ciśnienia i które sumują się, wyzwalając komórkowe oscylacje Ca2+. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
| Związek (mM) | Hanks' z niską zawartością Ca2+ | Hanks' 0Ca2+ | Hanks' normalny | Enzym izolacyjny proteaza | Enzym izolacyjny kolagenaza | Enzym izolacyjny DNAza | Roztwór wygaszający | Roztwór Rmin | Roztwór Rmax | Zewnątrzkomórkowy roztwór cell-attached | Roztwór do pipety cell-attached | Zewnątrzkomórkowy roztwór whole-cell | Roztwór do pipety whole-cell |
| Czystość wody (rezystywność) | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥15 MΩ.cm | ≥18 MΩ.cm | ≥15 MΩ.cm | ≥18 MΩ.cm |
| NaCl | 140 | 140 | 140 | 140 | 140 | 140 | 140 | 140 | 140 | 140 | |||
| kCl | 6 | 6 | 6 | 6 | 6 | 6 | 6 | 6 | 6 | 6 | 138 | ||
| D-glukoza | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | |
| MgCl2 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1 |
| HEPES | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 |
| CaCl2 | 0.1 | 2 | 0.1 | 0.1 | 0.1 | 10 | 2 | 2 | 2 | 0.2 | |||
| EGTA | 4 | 0.5 | |||||||||||
| MnCl | 10 | ||||||||||||
| Ionomycyna | 0.01 | ||||||||||||
| KOH | 140 | 130 | |||||||||||
| Kwas D-glukonowy | 130 | 130 | |||||||||||
| NaOH | 10 | ||||||||||||
| Penitrem A | 0.0001 | 0.0001 | 0.0001 | ||||||||||
| 4-aminopirydyna | 10 | ||||||||||||
| Nimodypina | 0.01 | 0.01 | |||||||||||
| Fluoksetyna | 0.1 | ||||||||||||
| Kwas 9-antraceknowy | 1 | ||||||||||||
| Amfoterycyna B | 300-600 μg mL-1 | ||||||||||||
| Proteaza typ XIV | ~0.01 % (0.4-0.6 mg/40 mL) | ||||||||||||
| Kolagenaza typ 1A | 0.1 % (6 mg/60 mL) | ||||||||||||
| DNAza I | 20 KU (20 μL roztworu stokowego 1 MU/mL w 20 mL) | ||||||||||||
| pH | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.2 |
| miareczkowano za pomocą | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | Tris | Tris | NaOH | KOH |
Tabela 1. Skład roztworów wykorzystanych w eksperymentach, zawierający przykłady roztworów zewnętrznych i pipetowych stosowanych dla prądów jednokanałowych (TRPV2) oraz prądów całokomórkowych (typu A).
Dyskusja
Opisane powyżej protokoły wymagają praktyki, ale powinny być osiągalne przy minimalnym rozwiązywaniu problemów. W ciągu przeciętnego dnia uzyskalibyśmy 6 - 8 użytecznych tętniczek z izolacji i osiągnęlibyśmy 3 - 4 udane eksperymenty. Jeśli jednak wystąpią problemy, istnieją pewne kroki, które można podjąć, aby poprawić wskaźniki sukcesu. Czasami stwierdzaliśmy, szczególnie w przypadku młodszych szczurów (< 8 tygodni), że wydajność tętniczek może być niska. Aby obejść ten problem, sugerujemy odwirowanie tkanki siatkówki (10 - 30 s przy 500 x g) między każdym z etapów rozcierania w krokach 1.12 - 1.14. Często pomaga to poprawić wydajność naczyń krwionośnych, ale także zwiększa ilość resztek komórkowych w preparacie.
Podczas kaniulacji naczyń do badań miografii ciśnieniowej ważne jest, aby dokładnie sprawdzić tętniczki pod kątem bocznych gałęzi, które mogły zostać rozszczepione w pobliżu miejsca rozwidlenia. Stanowi to częstą przyczynę wycieku i utraty ciśnienia podczas eksperymentowania. Głównym problemem, który może pojawić się w przypadku protokołów [Ca2+]i , jest poziom obciążenia barwnikiem. Słabe obciążenie barwnikiem prowadzi do niskiego stosunku sygnału do szumu, podczas gdy przeciążenie powoduje zakłócenie normalnej homeostazyCa2+ . Aby zmniejszyć prawdopodobieństwo wystąpienia któregokolwiek z tych problemów, można usunąć niewielką porcję homogenatu siatkówki, a izolowane naczynia być okresowo sprawdzane podczas protokołu załadunku. Podczas przeprowadzania eksperymentów z zaciskami krosowymi, wskaźnik powodzenia tworzenia gigaseal zależy w dużym stopniu od tego, jak dobrze blaszka podstawna została strawiona. Podczas początkowego testowania tego protokołu lub stosowania nowych partii enzymów może być konieczne dostosowanie stężenia/czasu trawienia enzymów. Uważne monitorowanie separacji warstw śródbłonka i mięśni gładkich zapewni wystarczające trawienie, aby usunąć wystarczającą ilość blaszki podstawnej, aby uzyskać dostęp. Konieczne jest również dokładne monitorowanie, aby uniknąć nadmiernego trawienia, które może objawiać się, gdy naczynie zaczyna się zwężać. Jeśli tak się stanie, komórki mięśni gładkich są często zbyt delikatne, aby można je było zarejestrować za pomocą zacisku krosowego. Podczas stosowania enzymów ważne jest, aby uwzględnić DNAzę I, aby zapewnić usunięcie nici DNA uwolnionych z uszkodzonych komórek podczas procesu izolacji. Fragmenty DNA są lepkie i powodują, że kleszcze przylegają do tętniczki podczas końcowych etapów procesu czyszczenia (krok 4.4), co często prowadzi do utraty naczynia. Czyszczenie naczyń jest trudne technicznie i najlepiej wykonywać je przy dużym powiększeniu (20X) delikatnymi ruchami zamiatania zamkniętych kleszczy o najdrobniejszej możliwej średnicy końcówki. Pomiędzy zamiataniem wyczyść kleszcze rolką laboratoryjną.
Jak podkreślono wcześniej, kluczową motywacją stojącą za opracowaniem protokołów opisanych w tym manuskrypcie było lepsze zrozumienie, dlaczego przepływ krwi jest zakłócony podczas chorób naczyniowych siatkówki. Większość naszej dotychczasowej pracy koncentrowała się na cukrzycowej chorobie oczu28,33. Tętniczki można wyizolować z siatkówek eksperymentalnych modeli cukrzycy u gryzoni przy użyciu metod opisanych w punkcie 1. Podczas eksperymentów na izolowanych tętniczkach siatkówki od zwierząt z cukrzycą ważne jest, aby starać się dokładnie odtworzyć stany hiperglikemii doświadczane przez naczynia in vivo. Z tego powodu normalnie podnieślibyśmy poziom D-glukozy w naszych roztworach izolacyjnych i eksperymentalnych do 25 mM. Pogrubienie błon podstawnych naczyń krwionośnych jest dobrze rozpoznanym zjawiskiem w naczyniach siatkówki podczas cukrzycy34,35. W przypadku wykorzystywania zwierząt z przedłużoną cukrzycą (> 1 miesiąc trwania choroby) często konieczne jest zwiększenie stężenia enzymów lub czasu trawienia, aby umożliwić zastosowanie metod rejestracji typu patch-clamp.
Istotnym ograniczeniem stosowania izolowanych ex vivo tętniczek siatkówki do badania fizjologii i patofizjologii naczyń siatkówki jest utrata otaczającego neuropile siatkówki. Chociaż usunięcie komórek glejowych i neuronalnych siatkówki umożliwia łatwy dostęp do komórek mięśni gładkich naczyń krwionośnych siatkówki w celu badań fizjologii komórki, odpowiedź naczyń na mediatory wazoaktywne może się dramatycznie zmienić przy braku i obecności tkanki siatkówki. Dobrym przykładem jest działanie adenozynotrójfosforanu (ATP), które jest tego dobrą ilustracją. W izolowanych tętniczkach siatkówki szczura dodanie ATP powoduje silne zwężenie naczyń36, podczas gdy w obecności nienaruszonego neuropile naczynia rozszerzają się37. Dlatego, gdy tylko jest to możliwe, zwykle staramy się potwierdzić kluczowe wyniki naszych izolowanych preparatów tętniczych za pomocą całych wierzchowców siatkówki ex vivo oraz pomiarów in vivo średnicy naczynia i przepływu krwi16,37. Warto zauważyć, że ostatnio pojawiły się nowe metody badania małych tętniczek i naczyń włosowatych w całych perfundowanych siatkówkach świń ex vivo38,39. Takie preparaty prawdopodobnie znacznie poprawią naszą wiedzę na temat tego, w jaki sposób neuropile siatkówki reguluje napięcie tętniczek i naczyń włosowatych siatkówki oraz jak zmiany w hemodynamice siatkówki modulują aktywność neuronów w siatkówce.
Chociaż procedury opisane w tym artykule koncentrują się na wykorzystaniu izolowanych tętniczek siatkówki szczura w celu zrozumienia fizjologii komórek mięśni gładkich tętniczek, obecnie opracowujemy protokoły, które umożliwią również badanie funkcji komórek śródbłonka w tych naczyniach. W pracach wstępnych udało nam się zmodyfikować trawienie enzymatyczne segmentów tętniczek siatkówki w celu uzyskania żywotnych rurek komórkowych śródbłonka, które są podatne na obrazowanie Ca2 + i badania zapisu patchclamp. Kaniulacja izolowanych tętniczek na obu końcach, umożliwiająca doświetlne dostarczanie leków, może w przyszłości umożliwić również zbadanie zależnych od śródbłonka odpowiedzi rozszerzających naczynia krwionośne w tych naczyniach.
Oświadczenia
Dr Joanna Kur jest obecnie pracownikiem firmy Medtronic (Twin-Cities, Minnesota, USA), jej obecna praca nie koliduje z tą prezentowaną tutaj.
Podziękowania
Rozwój protokołów opisanych w tym artykule był wspierany przez granty z następujących agencji finansujących: BBSRC (BB/I026359/1), Fight for Sight (1429 i 1822), The Juvenile Diabetes Research Foundation (2-2003-525), Wellcome Trust (074648/Z/04), British Heart Foundation (PG/11/94/29169), HSC R&D Division (STL/4748/13) i MRC (MC_PC_15026).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Zlewki | Fisherbrand | 15409083 | Lub dowolny produkt równoważny |
| Nożyczki zakrzywione | Fisher Scientific | 50-109-3542 | Lub dowolny produkt równoważny |
| Jednorazowa plastikowa pipeta / transfer | Sarstedt | 86.1174 | 6 ml jest najlepsza, ale dopuszczalne są inne rozmiary; Usuń końcówkę, aby poszerzyć otwór |
| Mikroskop preparacyjny | Brunel Microscopes LTD | Lub dowolny produkt equilavent | |
| Kleszcze | World Precision Instruments | Dumont #5 14095 | Dowolne równoważne drobne kleszcze |
| Pipeta | Pasteur Fisherbrand | 11546963 | Polerowane ogniowo w celu zmniejszenia tarcia, ale nie na tyle, aby zwęzić końcówkę |
| szalka Petriego Sigma-Aldrich | P7741 | Lub dowolny produkt equilavent 10 cm | |
| Smoczek do pipet | Fisherbrand | 12426180 | Lub dowolny produkt equilavent |
| Zaopatrzenie w wodę oczyszczoną | Merek | Milli-Q Zintegrowany system oczyszczania wody | Lub dowolny system equilavent |
| Probówka z okrągłym dnem | Fisherbrand | 14-958-10 B | 5 mL; dowolny produkt equilavent |
| Kleszcze odsetkowe | Fisher Scientific | 17-467-230 | Lub dowolny produkt równoważny |
| Ostrza jednokrawędziowe | Agar Scientific | T585 | Lub dowolny produkt ekwiwalentny |
| Sylgard | Dow Corning | 184 | Lub dowolna giętka powierzchnia |
| Stojak na probówki | Fisherbrand Derlin | 10257963 | Lub dowolny równoważny produkt |
| Miografia | |||
| 3-osiowy manipulator mechaniczny | Scientifica | LBM-7 | x2 (lub dowolny produkt równoważny) |
| Krany 3-drogowe | Cole-Parmer | UY-30600-02 | Lub dowolny produkt równoważny |
| Stół powietrzny | Technical Manufacturing Corporation | Clean Bench | Lub dowolne równoważne |
| oprogramowanie do analizy produktów | Obraz J | https://downloads.imagej.net/fiji/ | Darmowe oprogramowanie do obrazowania |
| Wtyczka analityczna | Myotraker | https://doi.org/10.1371/journal.pone.0091791.s002 | Niestandardowa wtyczka do imageJ Dostępna bezpłatnie do pobrania |
| Szkło do pipet kaniulacyjnych | Instrumenty World Percision | TW150F-4 | Lub dowolny produkt równoważny |
| Komputer | Dell Optiplex 7010 | Lub dowolny równoważny produkt | |
| Termometr cyfrowy | RS | 206-3722 | Lub dowolny produkt równoważny |
| Fluo-4-AM | Thermo Fisher Scientific | F14201 | Zrób 1 mM zapasu w |
| kleszczach | World Precision Instruments | Dumont #7 14097 | Dowolne równoważne drobne kleszcze |
| Fura-2-AM | Thermo Fisher Scientific | F1221 | Zrób 1 mM zapas w |
| DMSO Komora nagraniowa ze szklanym dnem | Warner Instruments | 64-0759 | Lub dowolny równoważny produkt |
| Szkło | do pipet HelperInstrumenty World Percision | IB150F-3 | Lub dowolny produkt równoważny |
| Grzałka liniowa | Wykonany | ekwiwalent komercyjny SH-27B Rozwiązanie Grzałka liniowa z aparatu Harvarda | |
| Mikroskop odwrócony | Nikon | Eclypse TE 300 | Lub dowolny równoważny produkt |
| Manometr | Riester | LF1459 | Lub dowolny produkt równoważny |
| Ściągacz | do mikroelektrodInstrumenty Sutter | P97 | Lub dowolny równoważny produkt |
| Microforge + Mikroskop Olympus CX 31 | Glassworks | Fine Point F-550 | Lub dowolny produkt równoważny |
| Mikromanipulator | Instrumenty Sutter | MP-285 | Lub dowolny produkt równoważny |
| Wielokanałowy rozdzielacz | Zautomatyzuj | naukowy ołówek perfuzyjny | lub dowolny równoważny produkt |
| Napełniacz do pipet | BD Plastipak | 1 ml | podgrzewana i ciągnięta do wewnętrznej średnicy pipety |
| Uchwyt na pipety | Urządzenia molekularne | 1-HL-U | Lub dowolny produkt równoważny |
| Pompa ssąca | Interpet | AP1 | Przerobiona pompa napowietrzająca przez odwrócenie mieszka |
| Strzykawka | BD Plastipak | 20mL Luer-lok | Lub dowolny produkt równoważny |
| Drut wolframowy | Adwent | W558818 | 75μ m średnica |
| Tygon Rurki | VWR | różne rozmiary | Lub dowolny równoważny produkt |
| Kamera USB | Logitech | HD Pro Webcam C920 | Lub dowolny równoważny produkt |
| Oprogramowanie do przechwytywania wideo | Hypercam | w wersji 2.28.01 | Lub dowolny produkt równoważny |
| Kąpiel wodna | Grant | Sub Aqua 12 Plus | Lub dowolny produkt równoważny |
| x20 obiektyw | Nikon | 20x/0.40 WD 3.8, ∞/0.17 | Lub dowolny produkt równoważny |
| x4 obiektyw | Nikon | 4x/0.10, WD 30, ∞/- | Lub dowolny produkt equilavent |
| Łączniki Y | World Percision Instruments | 14012 | Lub dowolny produkt equilavent |
| Gwintowniki 3-drogowe | |||
| krosowym | |||
| 3-osiowy manipulator mechaniczny | Scientifica | LBM-7 | Lub dowolny równoważny produkt |
| Stół powietrzny | Korporacja Techniczno-Produkcyjna | Czysta ławka | Lub dowolny równoważny produkt |
| Amfoterycyna B | Sigma-Aldrich | A2411 | 3 mg rozpuszczona dziennie w 50 μ L z DMSO (sonicate to dissolve) |
| Wzmacniacz | Urządzenia molekularne | Axopatch 200a | Lub dowolny produkt równoważny |
| Przetwornik analogowo-cyfrowy | Axon | Digidata 1440A | Lub dowolny produkt równoważny |
| Kolagenaza Typ 1A | Sigma-Aldrich | C9891 | 0,1 mg/ml w LCH |
| Komputer | Dell | Optiplex 7010 | Lub dowolny produkt równoważny |
| Termometr cyfrowy | RS | 206-3722 | Lub dowolny produkt równoważny |
| DNAzy I | Milipore | 260913 | Zapas roboczy 1 MU mL-1 (10 MU rozcieńczony w 10 ml LCH) |
| Klatka Faradaya | Wykonane | Dowolny równoważny produkt handlowy | |
| Drobne kleszcze | Dumont | No. 7 | Dowolny bardzo drobny kleszcz |
| Komora nagraniowa ze szklanym dnem | Warner Instruments | 64-0759 | Lub dowolny produkt równoważny |
| Headstage | Molecular Devices | CV203BU | Lub dowolny produkt równoważny |
| Grzejnik liniowy | Wykonane | na zamówienie | Ekwiwalent komercyjny SH-27B Roztwór Grzałka liniowa z Harvard |
| Aparat Mikroskop odwrócony | Nikon | Eclypse TE 300 | Lub dowolny produkt równoważny |
| Ściągacz mikroelektrod | Instrumenty Sutter | P97 | Lub dowolny produkt równoważny |
| Microforge + Mikroskop Olympus CX 31 | Glassworks | Fine Point F-550 | Lub dowolny produkt równoważny |
| Mikromanipulator | Instrumenty Sutter | MP-285 | Lub dowolny produkt równoważny |
| Wielokanałowy rozdzielacz | Zautomatyzuj naukowy | ołówek perfuzyjny | Lub dowolny produkt równoważny |
| Oprogramowanie do łatania | Urządzenia molekularne | Pclamp v10.2 | Lub dowolny równoważny produkt |
| Napełniacz do pipet | BD Plastipak | 1mL | podgrzewana i ciągnięta do wewnętrznej średnicy pipety |
| Uchwyt na pipety | Urządzenia molekularne | 1-HL-U | Lub dowolny równoważny produkt |
| Proteaza Typ XIV | Sigma-Aldrich | P5147 | 0,01 mg/ml w LCH |
| Jednokanałowa szklana pipeta | Instrumenty World Percision | IB150F-3 | Lub dowolny produkt równoważny |
| Pompa ssąca | Interpet | AP1 | Przerobiona pompa napowietrzająca przez rewers mieszkowy |
| Strzykawka | BD Plastipak | 20mL Luer-lok | Lub dowolny produkt równoważny |
| Drut wolframowy | Advent | W557418 | 50μ m |
| średnica Tygon Rurki | VWR | różne rozmiary | Dowolny równoważny produkt pasujący do |
| kamery USB | Logitech | HD Pro Webcam C920 | Lub dowolny produkt równoważny |
| Kąpiel wodna | Grant | Sub Aqua 12 Plus | Lub dowolny produkt równoważny |
| Szkło do pipet pełnokomórkowych | Warner | Instruments GC150TF-7.5 | Lub dowolny produkt równoważny |
| obiektyw x20 | Nikon | 20x/0.40 WD 3.8, ∞/0.17 | Lub dowolny produkt równoważny |
| x4 obiektyw | Nikon | 4x/0.10, WD 30, ∞/- | Lub dowolny produkt equilavent |
| x40 obiektyw | Nikon | 40x/0.55, WD 2.1, ∞/1.2 | Lub dowolny produkt równoważny |
| Y-connectors | World Percision Instruments | 14012 | Lub dowolny produkt równoważny |
| Ca2+ Gwintowniki | |||
| 3-kierunkowe | Cole-Parmer | UY-30600-02 | Lub dowolny produkt równoważny |
| 3-osiowy manipulator mechaniczny | Scientifica | LBM-7 | Lub dowolny równoważny produkt |
| Oprogramowanie do akwizycji | Cairn Research Sp. z o.o. | Silnik akwizycji V1.1.5 | Lub dowolny produkt równoważny; mikrofluorymetria |
| Stół powietrzny | Korporacja Produkcji Technicznej | Clean Bench | Lub dowolny produkt equilavent |
| Oprogramowanie analityczne do obrazowania konfokalnego | Image J | https://downloads.imagej.net/fiji/ | Darmowe oprogramowanie do obrazowania |
| Komputer | Dell | Optiplex 7010 | Lub dowolny produkt równoważny |
| Mikroskop konfokalny | Leica | Geosystems SP5 | Lub dowolny produkt ekwiwalentny; konfokalny |
| Termometr cyfrowy | RS | 206-3722 | Lub dowolny produkt równoważny |
| Drobne kleszcze | Dumont | nr 7 | Dowolny bardzo drobny kleszcz |
| Komora nagraniowa ze szklanym dnem | Warner Instruments | 64-0759 | Lub dowolny produkt równoważny |
| Grzałka liniowa | Wykonany | ekwiwalent handlowy SH-27B Rozwiązanie Grzałka liniowa firmy Harvard | |
| Apparatus Odwrócona mikroskop | Nikon | Eclipse TE2000 | Lub dowolny równoważny produkt; mikrofluorymetria |
| Monochromator | Cairn Research Sp. z o.o. | Optoscan | Lub dowolny równoważny produkt; mikrofluorymetria |
| Wielokanałowy kolektor tłoczny | Zautomatyzuj | naukowy ołówek perfuzyjny | lub dowolny równoważny produkt |
| Napełniacz do pipet | BD Plastipak | 1mL | podgrzewana i ciągnięta do wewnętrznej średnicy pipety |
| Oprogramowanie do mikroskopu konfokalnego | Leica Geosystems | LAS-AF wersja 3.3. | Lub dowolny produkt ekwiwalentny; konfokalny |
| Pompa ssąca | Interpet | AP1 | Przerobiona pompa napowietrzająca przez rewers mieszkowy |
| Strzykawka | BD Plastipak | 20mL Luer-lok | Lub dowolny równoważny produkt |
| Drut wolframowy | Advent | W557418 | 50μ m |
| średnica Rurka Tygon VWR | różne rozmiary | Dowolny produkt equilavent pasujący do | |
| kąpieli wodnej | Grant | Sub Aqua 12 Plus | Lub dowolny produkt równoważny |
| x100 | Nikon | x100 N.A. 1.3 olej | Lub dowolny produkt równoważny; obiektyw do mikrofluorymetrii |
| x20 | Nikon | 20x/0.40 WD 3.8, ∞/0.17 | Lub dowolny produkt równoważny; mikrofluorymetria |
| x20 obiektyw | Leica Geosystems | HCX PL FLUOTAR, 20x/0.50, ∞/0.17/D | Lub dowolny produkt równoważny; konfokalny |
| obiektyw x4 | Nikon | 4x/0.10, WD 30, ∞/- | Lub dowolny równoważny produkt; Obiektyw do mikrofluorymetrii |
| x63 | Leica Geosystems | HCX PL APO, 63x/1.40 - 0.60 OIL CS ∞/0.17/E | Lub dowolny równoważny produkt; konfokalne |
| złącza Y World | Percision Instrumenty | 14012 | Lub dowolny produkt równoważny |
| < pipety strong> | Specyfikacje i ustawienia dotyczące produkcji pipet do eksperymentów | ||
| Helper pipeta | World Percision | IB150F-3 | Średnica wewnętrzna: 0,86 mm Rampa: 261 Ciśnienie: 300 Ciepło: 280 Ciągnij: 0 Prędkość: 56 Czas: 250 Liczba cykli: 4 Średnica końcówki: 0,5-2 μ m Polerowanie: tak Odporność końcowa: >10 MΩ |
| Pipeta do kaniulacji | Instrumenty World Percision | TW150F-4 | Średnica wewnętrzna: 1,17 mm Rampa: 290 Ciśnienie: 300 Ciepło: 280 Ciągnięcie: 0 Prędkość: 58 Czas: 150 Liczba cykli: 4 Średnica końcówki: 3-10 μ m Polerowanie: no Odporność końcowa: < 1 MΩ |
| Łatanie na komórkach | Instrumenty World Percision | IB150F-3 | Średnica wewnętrzna: 0,86 mm Rampa: 261 Ciśnienie: 300 Ciepło: 280 Ciąg: 0 Prędkość: 56 Czas: 250 Liczba cykli: 4 Średnica końcówki: 0,5-2 μ m Polerowanie: tak Odporność końcowa: >5 MΩ |
| Łatanie całych komórek | Warner Instruments | GC150TF-7,5 | Średnica wewnętrzna: 1,17 mm Rampa: 296 Ciśnienie: 200 Ciepło: 287 Ciąg: 0 Prędkość: 50 Czas: 250 Liczba cykli: 4 Średnica końcówki: 2-3 μ m Polerowanie: pomocne, ale nie konieczne Odporność końcowa: 1-2 MΩ |
Bibliografia
- Kohner, E. M., Patel, V., Rassam, S. M. Role of blood flow and impaired autoregulation in the pathogenesis of diabetic retinopathy. Diabetes. 44, 603-607 (1995).
- Hafez, A. S., Bizzarro, R. L., Lesk, M. R. Evaluation of optic nerve head and peripapillary retinal blood flow in glaucoma patients, ocular hypertensives, and normal subjects. American Journal of Ophthalmology. 136, 1022-1031 (2003).
- Curtis, T. M., Gardiner, T. A., Stitt, A. W. Microvascular lesions of diabetic retinopathy: clues towards understanding pathogenesis? Eye (London). 23, 1496-1508 (2009).
- Pournaras, C. J., Rungger-Brändle, E., Riva, C. E., Hardarson, S. H., Stefansson, E. Regulation of retinal blood flow in health and disease). Progress in Retinal and Eye Research. 27, 284-330 (2008).
- Kuwabara, T., Cogan, D. G. Studies of retinal vascular patterns. I. Normal architecture. Archives of Ophthalmology. 64, 904-911 (1960).
- Scholfield, C. N., McGeown, J. G., Curtis, T. M. Cellular physiology of retinal and choroidal arteriolar smooth muscle cells. Microcirculation. 14 (1), 11-24 (2007).
- Puro, D. G. Retinovascular physiology and pathophysiology: new experimental approach/new insights. Progress in Retinal and Eye Research. 31 (3), 258-270 (2012).
- Kur, J., Newman, E. A., Chan-Ling, T. Cellular and physiological mechanisms underlying blood flow regulation in the retina and choroid in health and disease. Progress in Retinal and Eye Research. 31 (5), 377-406 (2012).
- Delaey, C., Van de Voorde, J. Regulatory Mechanisms in the Retinal and Choroidal Circulation. Ophthalmic Research. 32 (6), 249-256 (2000).
- Metea, M. R., Newman, E. A. Glial cells dilate and constrict blood vessels: a mechanism of neurovascular coupling. Journal of Neuroscience. 26, 2862-2870 (2006).
- Pournaras, C. J., Rungger-Brändle, E., Riva, C. E., Hardarson, S. H., Stefansson, E. Regulation of retinal blood flow in health and disease. Progress in Retinal and Eye Research. 27 (3), 284-330 (2008).
- Hughes, S., Chan-Ling, T. Characterization of smooth muscle cell and pericyte differentiation in the rat retina in vivo. Investigative Ophthalmology & Visual Science. 45 (8), 2795-2806 (2004).
- Shepro, D., Morel, N. M. Pericyte physiology. The FASEB Journal. 7 (11), 1031-1038 (1993).
- Kornfield, T. E., Newman, E. A. Regulation of Blood Flow in the Retinal Trilaminar Vascular Network. Journal of Neuroscience. 34 (34), 11504-11513 (2014).
- Matsushita, K., Puro, D. G. Topographical heterogeneity of KIR currents in pericyte-containing microvessels of the rat retina: effect of diabetes. Journal of Physiology. 573, 483-495 (2006).
- Needham, M., et al. The role of K+ and Cl- channels in the regulation of retinal arteriolar tone and blood flow. Investigative Ophthalmology & Visual Science. 55 (4), 2157-2165 (2014).
- Hessellund, A., Jeppesen, P., Aalkjaer, C., Bek, T. Characterization of vasomotion in porcine retinal arterioles. Acta Ophthalmologicaogica Scandinavica. 81, 278-282 (2003).
- Delaey, C., Van de Voord, J. Pressure-induced myogenic responses in isolated bovine retinal arteries. Investigative Ophthalmology & Visual Science. 41, 1871-1875 (2000).
- Kur, J., et al. Role of ion channels and subcellular Ca2+ signaling in arachidonic acid-induced dilation of pressurized retinal arterioles. Investigative Ophthalmology & Visual Science. 55 (5), 2893-2902 (2014).
- Kur, J., Bankhead, P., Scholfield, C. N., Curtis, T. M., McGeown, J. G. Ca(2+) sparks promote myogenic tone in retinal arterioles. British Journal of Pharmacology. 168 (7), 1675-1686 (2013).
- Fernández, J. A., McGahon, M. K., McGeown, J. G., Curtis, T. M. CaV3.1 T-Type Ca2+ Channels Contribute to Myogenic Signaling in Rat Retinal Arterioles. Investigative Ophthalmology & Visual Science. 56 (9), 5125-5132 (2015).
- McGahon, M. K., et al. TRPV2 Channels Contribute to Stretch-Activated Cation Currents and Myogenic Constriction in Retinal Arterioles. Investigative Ophthalmology & Visual Science. 57 (13), 5637-5647 (2016).
- Guidoboni, G., et al. Intraocular Pressure, Blood Pressure, and Retinal Blood Flow Autoregulation: A Mathematical Model to Clarify Their Relationship and Clinical Relevance. Investigative Ophthalmology & Visual Science. 55 (7), 4105-4118 (2014).
- Scholfield, C. N., Curtis, T. M. Heterogeneity in cytosolic calcium regulation among different microvascular smooth muscle cells of the rat retina. Microvascular Research. 59 (2), 233-242 (2000).
- Grynkiewicz, G., Poenie, M., Tsien, R. Y. A new generation of Ca2+ indicators with greatly improved fluorescence properties. Journal of Biological Chemistry. 260, 3440-3450 (1985).
- Sakmann, B., Neher, E. Single Channel Recording, Second Edition. , Plenum Press. New York. 53-90 (1995).
- Fernández, J. A., Bankhead, P., Zhou, H., McGeown, J. G., Curtis, T. M. Automated detection and measurement of isolated retinal arterioles by a combination of edge enhancement and cost analysis. PLoS One. 9, e91791(2014).
- McGahon, M. K., et al. Diabetes downregulates large-conductance Ca2+-activated potassium beta 1 channel subunit in retinal arteriolar smooth muscle. Circulation Research. 100 (5), 703-711 (2007).
- Curtis, T. M., Scholfield, C. N. Nifedipine blocks Ca2+ store refilling through a pathway not involving L-type Ca2+ channels in rabbit arteriolar smooth muscle. Journal of Physiology. 532 (3), 609-623 (2001).
- Tumelty, J., et al. Endothelin 1 stimulates Ca2+-sparks and oscillations in retinal arteriolar myocytes via IP3R and RyR-dependent Ca2+ release. Investigative Ophthalmology & Visual Science. 52 (6), 3874-3879 (2011).
- Huynh, K. W., et al. Structural insight into the assembly of TRPV channels. Structure. 22 (2), 260-268 (2014).
- McGahon, M. K., Dawicki, J. M., Scholfield, C. N., McGeown, J. G., Curtis, T. M. A-type potassium current in retinal arteriolar smooth muscle cells. Investigative Ophthalmology & Visual Science. 46 (9), 3281-3287 (2005).
- McGahon, M. K., Zhang, X., Scholfield, C. N., Curtis, T. M., McGeown, J. G. Selective downregulation of the BKbeta1 subunit in diabetic arteriolar myocytes. Channels (Austin). 1 (3), 141-143 (2007).
- Ljubimov, A. V., et al. Basement membrane abnormalities in human eyes with diabetic retinopathy. Journal of Histochemistry and Cytochemistry. 44, 1469-1479 (1996).
- Roy, S., Maiello, M., Lorenzi, M. Increased expression of basement membrane collagen in human diabetic retinopathy. Journal of Clinical Investigation. 93, 438-442 (1994).
- Scholfield, C. N., McGeown, J. G., Curtis, T. M. Cellular physiology of retinal and choroidal arteriolar smooth muscle cells. Microcirculation. 14 (1), 11-24 (2007).
- Hinds, K., Monaghan, K. P., Frølund, B., McGeown, J. G., Curtis, T. M. GABAergic control of arteriolar diameter in the rat retina. Investigative Ophthalmology & Visual Science. 54 (10), 6798-6805 (2013).
- Torring, M. S., Aalkjaer, C., Bek, T. Constriction of porcine retinal arterioles induced by endothelin-1 and the thromboxane analogue U46619 in vitro decreases with increasing vascular branching level. Acta Ophthalmologica. 92 (3), 232-237 (2014).
- P, S. kov J. ensen, S, M. etz M. ariendal P. edersen, Aalkjaer, C., Bek, T. The vasodilating effects of insulin and lactate are increased in precapillary arterioles in the porcine retina ex vivo. Acta Ophthalmologica. 94 (5), 454-462 (2016).
Przedruki i uprawnienia
