Tutaj prezentujemy protokół ilościowego określania zawartości fikobiliproteiny w cyjanobakterii Synechocystis za pomocą metody spektrofotometrycznej. Procedura ekstrakcji została również z powodzeniem zastosowana do innych szczepów sinic i glonów; Jednak ze względu na różnice w widmach absorpcji pigmentu konieczne jest przetestowanie równań spektrofotometrycznych dla każdego szczepu indywidualnie.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Spektrofotometryczne oznaczanie zawartości fikobiliproteiny w Cyanobacterium synechocystis
W tym artykule
Podsumowanie
Streszczenie
To jest prosty protokół do ilościowego oznaczania zawartości fikobiliproteiny w modelu cyjanobakterii Synechocystis. Fikobiliproteiny są najważniejszymi składnikami fikobilisomów, głównych czułków zbierających światło u cyjanobakterii i kilku taksonów glonów. Fikobilisomy Synechocystis zawierają dwie fikobiliproteiny: fikocyjaninę i allofikocyjaninę. Protokół ten opisuje prostą, wydajną i niezawodną metodę ilościowego oznaczania zarówno fikocyjaniny, jak i allofikocyjaniny w tym modelu cyjanobakterii. Porównaliśmy kilka metod ekstrakcji fikobiliprotein i spektrofotometrycznej kwantyfikacji ilościowej. Procedura ekstrakcji opisana w tym protokole została również z powodzeniem zastosowana do innych szczepów sinic, takich jak Cyanothece sp., Synechococcuselongatus, Spirulina sp., Arthrospira sp. i Nostoc sp., a także do krasnorostów Porphyridium cruentum. Jednak współczynniki ekstynkcji określonych fikobiliprotein z różnych taksonów mogą się różnić, dlatego zaleca się walidację metody spektrofotometrycznej kwantyfikacji dla każdego szczepu z osobna. Protokół zajmuje niewiele czasu i może być wykonany w każdym standardowym laboratorium nauk przyrodniczych, ponieważ wymaga tylko standardowego sprzętu.
Wprowadzenie
fFikobiliproteiny to rozpuszczalne w wodzie kompleksy pigmentowo-białkowe, które reprezentują główne składniki anten zbierających światło u prokariotycznych cyjanobakterii (Cyanophyta) i kilku taksonów eukariotycznych (Glaucophyta, Rhodophyta, and Cryptophyta)1. Występują głównie jako kompleksy supramolekularne zwane fikobilisomami i są zwykle przyczepione do powierzchni błon fotosyntetycznych po stronie zrębu, z wyjątkiem Cryptophyta, gdzie fikobiliproteiny są zlokalizowane w świetle tylakoidów2. Do tej pory zidentyfikowano cztery typy fikobiliprotein: podstawową allofikocyjaninę oraz obwodową fikocyjaninę, fikoerytrynę i fikoerytrocyjaninę1. Jako główne kompleksy zbierające światło, fikobilisomy stanowią jeden z kluczowych czynników produktywności masowych kultur glonów i sinic. Wykazano, że obcinanie fikobilisomów może zwiększyć akumulację biomasy w silnym świetle3. Z drugiej strony, przy umiarkowanym lub niskim natężeniu promieniowania, obcięcie anteny skutkowało tempem wzrostu i zmniejszeniem akumulacji biomasy3,4. Fikobiliproteiny są komercyjnie stosowane jako barwniki spożywcze, farmaceutyki i dodatki do żywności, w przemyśle kosmetycznym oraz jako sondy fluorescencyjne z zastosowaniami w cytometrii przepływowej, fluorescencyjnych testach immunologicznych i mikroskopii fluorescencyjnej5.
Ten protokół skupia się na ilościowym określaniu fikobiliprotein w modelu cyjanobakterii Synechocystis. Sinice są najwcześniejszymi tlenowymi autotrofami fotosyntetycznymi; tworzą biosferę Ziemi od ponad 2,4 miliarda lat6. Odgrywają kluczową rolę w globalnych cyklach biogeochemicznych azotu, węgla, tlenu i innych pierwiastków. Wśród sinic jednokomórkowy szczep Synechocystis zyskał wyjątkową pozycję, ponieważ był pierwszym cyjanobakterią z całym genomem zsekwencjonowanym7,8, jest naturalnie przekształcany przez egzogenne DNA9, i osiąga stabilny i stosunkowo szybki wzrost10,11. W Synechocystis główny składnik anteny, allofikocyjanina, jest związana z integralnymi białkami błonowymi, a przyłączona fikocyjanina znajduje się na obrzeżach błony tylakoidowej.
W ramach tego protokołu porównano kilka metod ekstrakcji i kwantyfikacji fikobiliprotein. Końcowa procedura ekstrakcji została z powodzeniem zastosowana do Synechocystis, a także do innych szczepów sinic, w tym Cyanothece sp., Synechococcuselongatus, Spirulina sp., Arthrospira sp. i Nostoc sp., a także została z powodzeniem zastosowana do krasnorostów Porphyridium cruentum. Dlatego metodę opracowaną w tym protokole można uznać za uniwersalną metodę ekstrakcji fikobiliproteiny. Mimo że niektóre z testowanych metod ekstrakcji skutkowały wyższymi całkowitymi wydajnościami białka, opisana tutaj procedura ekstrakcji zapewniła najwyższą wydajność fikobiliproteiny wraz z najniższą zawartością reszty chlorofilu A w ekstrakcie fikobiliproteiny. Zmniejszenie zawartości chlorofilu a było niezbędne do prawidłowej spektrofotometrycznej kwantyfikacji fikocyjaniny i allofikocyjaniny.
Widma absorpcji fikobiliprotein mogą się znacznie różnić między różnymi gatunkami glonów i sinic12,13,14,15,16,17, a nawet wśród kilku szczepów jednego rodzaju sinic18. W związku z tym określone długości fal i współczynniki absorpcji stosowane do oznaczania fikocyjaniny i allofikocyjaniny w Synechocystis nie mają ogólnego zastosowania do innych szczepów. Dodatkowo Synechocystis nie zawiera fikoerytryny i fikoerytrocyjaniny, które można znaleźć w niektórych innych algach i sinicach. Do celów oznaczania fikobiliprotein w szczepach innych niż Synechocystis zaleca się ocenę równań spektrofotometrycznych dla każdego szczepu indywidualnie.
Chociaż protokół zawiera dwa dłuższe etapy (nocne liofilizację granulek komórkowych i 1-godzinną ekstrakcję białka), całkowity czas pracy nad kwantyfikacją fikobiliprotein nie przekracza 2 godzin.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
1. Hodowla cyjanobakterii
- Hodować komórki Synechocystis w kolbach Erlenmeyera lub w fotobioreaktorach10,19 w buforowanym medium BG120 w celu utrzymania pH < 10 (np. stosując 17 mM HEPES10).
UWAGA: Standardowe warunki hodowli wymagają kontrolowanej temperatury (zazwyczaj 30 °C, temperatura optymalna to 35 °C)21, oświetlenia (zazwyczaj białe światło o natężeniu do 800 µmol[fotonów]/[m2·s])21 oraz dopływu CO2 (w płaskim fotobioreaktorze o pojemności 40 mL nasycające wzrost stężenie CO2 wynosi 1 70 ppm)21. - Aby określić gęstość kultury, zmierzyć spektrofotometrycznie gęstość optyczną kultury przy 730 nm (OD730), używając kuwety o drodze optycznej 1 cm. Alternatywnie można policzyć komórki pod mikroskopem za pomocą hemocytometru lub automatycznego licznika komórek.
2. Przygotowanie próbek
- Pracuj przy niskim natężeniu oświetlenia, aby zapobiec degradacji fikobiliprotein.
- Pobierz 3 x 1 mL zawiesiny hodowli do probówek z bezpiecznym zamknięciem. Wykorzystaj triplikaty do oszacowania błędów technicznych pomiaru. Aby pobrać próbki hodowli w warunkach sterylnych, wykonaj zbiór komórek w komorze z laminarnym przepływem powietrza, przestrzegając odpowiednich zasad pracy i bezpieczeństwa.
- Wirowarkuj komórki przy 15,0 x g w temperaturze laboratoryjnej przez 5 min. Zwróć uwagę na prawidłowe wyważenie rotora wirówki. Po wirowaniu odlej naddatki. Uważaj, aby nie naruszyć osadu.
- Przechowuj próbki w zamrażarce. Do długotrwałego przechowywania zachowaj próbki w temperaturze -80 °C. Jest to niezbędne, aby zapobiec degradacji fikobiliprotein. Do krótkotrwałego przechowywania wystarczająca jest temperatura -20 °C.
- Liofilizuj próbki przez noc. Aby zapewnić prawidłowy przebieg liofilizacji, utrzymuj temperaturę kondensatora liofilizatora poniżej -60 °C, a ciśnienie w komorze liofilizatora na poziomie około 1 hPa.
- Po zakończeniu cyklu liofilizacji jak najszybciej zamknij probówkę, aby zapobiec ponownemu wchłanianiu wody z powietrza.
3. Homogenizacja komórek i ekstrakcja pigmentów
- Do każdej probówki z próbką dodać cztery szklane kuleczki (o średnicy 2 mm) i zamknąć probówki.
UWAGA: Jeśli wieczko probówki typu safe-lock użytej do homogenizacji jest zbyt cienkie, może ono pęknąć podczas procesu; dlatego do tego protokołu zaleca się stosowanie wyłącznie probówek safe-lock z wytrzymałymi wieczkami. - Homogenizować próbki z szklanymi kuleczkami przez 15 s za pomocą homogenizatora w temperaturze laboratoryjnej.
UWAGA: Prawidłowo zhomogenizowana próbka powinna pokrywać całą wewnętrzną powierzchnię probówek safe-lock. - W celu ekstrakcji fikobiliprotein do próbek dodać 1 mL buforu PBS (pH 7.4), schłodzonego wcześniej do 4 °C.
UWAGA: Od tego momentu próbki należy przechowywać na lodzie, aby zapobiec degradacji ekstrahowanych białek. Jest to krytyczne. - Mieszć próbki z PBS przez 5 s za pomocą homogenizatora w temperaturze laboratoryjnej.
UWAGA: Po wymieszaniu próbki mają zielonkawy kolor. - Po wymieszaniu przechowywać próbki na lodzie przez 60 min. Kąpiel lodową należy przykryć pokrywką, aby zapobiec degradacji pigmentów.
- Po 60 min ekstrakcji fikobiliprotein odwirować próbki przy 15,0 x g w temperaturze 4 °C przez 5 min. Należy zadbać o prawidłowe wyważenie rotora wirówki.
UWAGA: Po wirowaniu nadsadzin ma kolor cyjanowy.
4. Ilościowe oznaczenie fikosybiliprotein
- Przed pomiarem spektrofotometrycznym skalibrować spektrofotometr do poziomu bazowego, używając buforu PBS jako próbki ślepej.
- Po skalibrowaniu spektrofotometru należy wylać PBS z jednej kuwety spektrofotometrycznej, a następnie pipetować supernatant z ekstrahowanymi fikobiliproteinami zamiast wylanego buforu.
- Ilościowo określ stężenie fikobiliprotein spektrofotometrycznie, stosując szerokość szczeliny wynoszącą 0,5 nm.
- Zmierz absorbancję fikocyjanobilin w fikocyjaninie i allofikocyjaninie względem próbki ślepej z buforu PBS przy 615 nm (A615) oraz 652 nm (A652), odpowiednio, a następnie zmierzyć absorbancję pozostałości komórkowych przy 720 nm (A720).
- Oblicz stężenie fikocyjaniny i allofikocyjaniny zgodnie z równaniami (1) i (2) autorstwa Bennetta i Bogorada12:
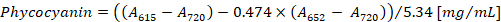
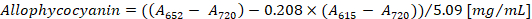
UWAGA: A615, A652, i A720 powinno mieścić się w zakresie liniowym absorbancji spektrofotometru. W razie potrzeby rozcieńczyć próbkę buforem PBS.
- Należy ponownie obliczyć stężenie pigmentu w oryginalnych próbkach. Stężenie pigmentu w próbce odpowiada bezpośrednio wynikom równań (1) i (2) w przypadku zastosowania do analizy 1 ml kultury oraz 1 ml buforu do ekstrakcji. W przypadku użycia innych objętości próbek cyjanobakterii i/lub buforu PBS, końcowe stężenie pigmentu należy obliczyć zgodnie z równaniem (3):
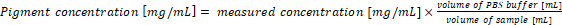 (3)
UWAGA: W przypadku normalizacji zawartości ficobiliprotein w przeliczeniu na suchą masę komórek, końcowe stężenie pigmentu należy obliczyć zgodnie z równaniem (4)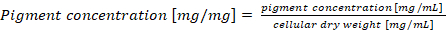 (4)
5. Oznaczanie suchej masy komórek (opcjonalnie)
- Zważ trzy puste probówki typu safe-lock na wadze analitycznej.
UWAGA: Krytyczne jest, aby probówki safe-lock były suche. W przypadku przechowywania probówek w wilgotnym środowisku, przed ważeniem należy je suszyć przez kilka godzin w liofilizatorze. Manipuluj probówkami ostrożnie i wyłącznie w rękawiczkach bezpudrowych, aby uniknąć kontaktu materiału z palcami badacza. Utrzymuj wszystkie uchwyty i wirówki w czystości, aby zapobiec przeniesieniu jakichkolwiek zanieczyszczeń do probówek. - Pobierz 1 x 15 mL zawiesiny hodowli do stożkowej probówki o pojemności 15 mL.
- Wiruj zawiesinę hodowli w probówkach stożkowych 15 mL przy 4,0 x g w temperaturze laboratoryjnej przez 10 min. Zrównoważ rotor wirówki za pomocą trzech dodatkowych probówek stożkowych 15 mL, z których każda zawiera 15 mL wody. Po wirowaniu odlej 12 mL supernatantu.
- Resuspenduj osad w pozostałym supernatancie i przenieś 3 x 1 mL mieszaniny do trzech probówek safe-lock 1,5 mL za pomocą pipety. Jeśli w probówce stożkowej 15 mL pozostały resztki osadu, dodaj do niej 1,5 mL wody dejonizowanej, wymieszaj na wortexie lub wstrząśnij probówką, aby resuspendować pozostały osad, a następnie przenieś 3 x 0,5 mL mieszaniny do trzech probówek safe-lock 1,5 mL (zawierających już 3 x 1 mL osadu) za pomocą pipety.
UWAGA: Podział osadu na trzy probówki safe-lock 1,5 mL pozwoli na oszacowanie błędu technicznego pomiaru suchej masy. - Wiruj komórki w probówkach safe-lock 1,5 mL przy 15,00 x g w temperaturze laboratoryjnej przez 5 min. Zrównoważ rotor wirówki dodatkową probówką safe-lock 1,5 mL zawierającą 1 mL wody. Po wirowaniu odlej supernatanty.
- Umieść próbki w zamrażarce. Do długotrwałego przechowywania zachowaj próbki w temperaturze -80 °C; do krótkotrwałego przechowywania wystarczająca jest temperatura -20 °C.
- Liofilizuj próbki przez noc. Aby zapewnić prawidłowy proces liofilizacji, utrzymuj temperaturę kondensatora liofilizatora poniżej -90 °C, a ciśnienie w komorze liofilizatora na poziomie około 1 hPa.
- Po liofilizacji zamknij probówki i zważ próbki na wadze analitycznej.
UWAGA: Wartość suchej masy może zostać wykorzystana do normalizacji zawartości fikobiliprotein w przeliczeniu na suchą masę komórek.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
W początkowych testach metody Synechocystis hodowano w kulturach okresowych w kolbach Erlenmeyera na wytrząsarce w pożywce BG120 (uzupełnionej o 17 mM HEPES) w temperaturze 25 °C, przy ciepłym białym świetle o natężeniu 50 µmol(photons)/(m2·s) i z dodatkiem 1% CO2 w atmosferze hodowlanej. W trakcie hodowli pobierano próbk i przenoszono je do probówek typu safe-lock, a następnie wirowano (15,0 x g w temperaturze laboratoryjnej...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Protokół ten opisuje prostą, szybką i powtarzalną metodę oznaczania ilościowego zawartości fikobiliproteiny w modelowym cyjanobakterii Synechocystis. Porównano kilka metod homogenizacji komórek, ekstrakcji białek oraz kwantyfikacji fikocyjaniny i allofikocyjaniny, a końcowy protokół stanowi kombinację optymalnych etapów każdej procedury. Jako dane reprezentatywne, zawartość fikobiliprotein określono ilościowo w komórkach Synechocystis pod wpływem rosnącego natężenia światła. Mimo że analiza wymaga podob...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Protokół został zaczerpnięty z poprzedniej publikacji11. T. Z., D. Ch. i J. Č. byli wspierani przez Ministerstwo Edukacji, Młodzieży i Sportu Republiki Czeskiej w ramach Narodowego Programu Zrównoważonego Rozwoju I (NPU I), grant numer LO1415. J. Č. był również wspierany przez GA CR, numer grantu 18-24397S. Dostęp do instrumentów i innych udogodnień był wspierany przez czeską infrastrukturę badawczą dla biologii systemowej C4SYS (projekt nr LM2015055). Projekt M. A. S. otrzymał grant z Rosyjskiej Fundacji Naukowej [nr 14-14-00904].
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Synechocystis sp. PCC 6803 Institut | Pasteur, Paryż, Francja | 6803 | Cyanobacterium szczep |
| Roti-CELL PBS | Carl Roth GmbH + Co. KG, Karlsruhe, Niemcy | 9143.1 | Roztwór soli fizjologicznej buforowany fosforanami (PBS), pH 7,4 |
| Probówki Eppendorf safe-lock | Eppendorf, Hamburk, Niemcy | 30120086 | Probówki Safe-lock 1,5 ml |
| 80-miejscowy system przechowywania | VWR International, Radnor, Pensylwania, USA | 30128-282 | Uchwyt na probówki z blokadą sejfu |
| RAININ 100 &mikro; l -1000 &mikro; l | Mettler-Toledo, Columbus, Ohio, Stany Zjednoczone | 17014382 | Pipeta |
| GP-LTS-A-1000µ L-/F-768/8 | Mettler-Toledo, Columbus, Ohio, Stany Zjednoczone | 30389272 | Końcówki do pipet |
| Rotina 420R | Hettich, Kirchlengern, Niemcy | 4701 | Wirówka z chłodzeniem do probówek Safe-lock 1,5 ml i stożkowych probówek wirówkowych 15 ml |
| LCexv 4010 | Liebherr, Bulle, Szwajcaria | 9005382197172 | Lodówka i zamrażarka -20 ° C |
| Revco ExF -86° C Pionowa zamrażarka niskotemperaturowa | Thermo Fisher Scientific, Waltham, Massachusetts, USA | EXF24086V | Zamrażarka -80 ° C |
| CoolSafe | LaboGene, Liller & oslash; d, Dania | 7.001.000.615 | Liofilizator |
| Spektrofotometr | UV-2600 | Shimadzu, Kioto, Japonia | UV-2600 |
| Kuwety absorpcyjne Hellma, semi Micro | Sigma-Aldrich, St. Louis, Missouri, USA | Z600288 | Kuwety półmikro VIS/UV-VIS 0,75-1,5 ml, zakres spektralny 200-2500 nm |
| Silamat S6 | Ivoclar Vivadent, Schaan, Liechtenstein | 602286WU | Homogenizator |
| Koraliki szklane | Sigma-Aldrich, St. Louis, Missouri, USA | Z273627 | Koralik szklany o średnicy 2 mm |
| CPA225D-0CE | Sartorius AG, Gö ttingen, Niemcy | SECURA225D-1OBR | Wagi analityczne |
| C-fikocyjanina firmy Spirulina sp. | Sigma-Aldrich, St. Louis, Missouri, USA | P2172 | Standard fikocyjaniny |
| Allofikocyjanina | Sigma-Aldrich, St. Louis, Missouri, USA | A7472 | we wzorcu allofikocyjaniny |
| Sigma-Aldrich, St. Louis, Missouri, Stany Zjednoczone | BCA1, B9643 | Kompletny zestaw do oznaczania białek całkowitych | |
| AlgaeTron | Photon System Instruments Sp. z o.o., Drá sov, Republika Czeska | AG 130-ECO | Komora uprawowa dla kolb E., z regulowanym oświetleniem i atmosferą |
| Fotobioreaktor | Photon System Instruments Ltd., Drá sov, Republika Czeska | FMT-150 | Sprzęt do uprawy sinic i glonów z całkowicie kontrolowanym środowiskiem |
| Wiolonczemiernik | Nexcelom Bioscience, Lawrence, Massachusetts, USA | Auto M10 | Licznik komórek |
| Probówki wirówkowe Corning 15 ml | Sigma-Aldrich, St. Louis, Missouri, USA | CLS430791 | 15 ml Probówka wirówkowa do pobierania próbek na sucho |
| Herasafe KS | Thermo Fisher Scientific, Waltham, Massachusetts, Stany Zjednoczone | 51024579 | Okap z przepływem laminarnym |
Bibliografia
- Mimuro, M., Kikuchi, H. Antenna Systems and Energy Transfer in Cyanophyta and Rhodophyta. Light-Harvesting Antennas in Photosynthesis. Green, B. R., Parson, W. W. , Springer. Dordrecht, The Netherlands. 281-306 (2003).
- Spear-bernstein, L., Miller, K. R. Unique location of the phycobiliprotein light-harvesting pigment in the Cryptophyceae. Journal of Phycology. 25 (3), 412-419 (1989).
- Kirst, H., Formighieri, C., Melis, A. Maximizing photosynthetic efficiency and culture productivity in cyanobacteria upon minimizing the phycobilisome light-harvesting antenna size. Biochimica et Biophysica Acta - Bioenergetics. 1837 (10), 1653-1664 (2014).
- Page, L. E., Liberton, M., Pakrasi, H. B. Reduction of photoautotrophic productivity in the cyanobacterium Synechocystis sp. strain PCC 6803 by phycobilisome antenna truncation. Applied and Environmental Microbiology. 78 (17), 6349-6351 (2012).
- Sonani, R. R. Recent advances in production, purification and applications of phycobiliproteins. World Journal of Biological Chemistry. 7 (1), 100(2016).
- Bryant, D. A. The Molecular Biology of Cyanobacteria. , Springer Netherlands. Dordrecht, The Netherlands. (1994).
- Kaneko, T., et al. Sequence analysis of the genome of the unicellular cyanobacterium Synechocystis sp. strain PCC6803. I. Sequence features in the 1 Mb region from map positions 64% to 92% of the genome. DNA Research. 2, 191-198 (1995).
- Kaneko, T., et al. Sequence analysis of the genome of the unicellular cyanobacterium Synechocystis sp. strain PCC6803. II. Sequence determination of the entire genome and assignment of potential protein-coding regions. DNA Research. 3, 109-136 (1996).
- Grigorieva, G., Shestakov, S. Transformation in the cyanobacterium Synechocystis sp 6803. FEMS Microbiology Letters. 13 (4), 367-370 (1982).
- Zavřel, T., Sinetova, M. A., Búzová, D., Literáková, P., Červený, J. Characterization of a model cyanobacterium Synechocystis sp: PCC 6803 autotrophic growth in a flat-panel photobioreactor. Engineering in Life Sciences. 15 (1), (2015).
- Zavřel, T., Očenášová, P., Červený, J. Phenotypic characterization of Synechocystis sp. PCC 6803 substrains reveals differences in sensitivity to abiotic stress. PLoS One. 12 (12), e0189130(2017).
- Bennett, A., Bogorad, L. Complementary chromatic adaption in a filamentous blue-green alga. The Journal of Cell Biology. 58, 419-435 (1973).
- Lüder, U. H., Knoetzel, J., Wiencke, C. Acclimation of photosynthesis and pigments to seasonally changing light conditions in the endemic antarctic red macroalga Palmaria decipiens. Polar Biology. 24 (8), 598-603 (2001).
- Evans, L. V. The effects of spectral composition and irradiance level on pigment levels in seaweeds. Experimental Phycology: A Laboratory Manual. Lobban, C. S., Chapman, D. J., Kremer, B. P. , Cambridge University Press. Cambridge, New York, New Rochelle, Melbourne, Sydney. 123-133 (1988).
- Sampath-Wiley, P., Neefus, C. D. An improved method for estimating R-phycoerythrin and R-phycocyanin contents from crude aqueous extracts of Porphyra (Bangiales, Rhodophyta). Journal of Applied Phycology. 19 (2), 123-129 (2007).
- Chung, Y. H., Park, Y. M., Moon, Y. J., Lee, E. M., Choi, J. S. Photokinesis of Cyanobacterium Synechocystis sp. PCC 6803. Journal of Photoscience. 11 (3), 89-94 (2004).
- Sun, L., et al. Phycobilisomes from Cyanobacteria. Handbook on Cyanobacteria: Biochemistry, Biotechnology and Applications. Gault, P. M., Marler, H. J. , Nova Science Publishers, Inc. New York, NY. 105-160 (2009).
- Six, C., et al. Diversity and evolution of phycobilisomes in marine Synechococcus spp.: A comparative genomics study. Genome Biology. 8 (12), (2007).
- Sinetova, M. A., Červený, J., Zavřel, T., Nedbal, L. On the dynamics and constraints of batch culture growth of the cyanobacterium Cyanothece sp. ATCC 51142. Journal of Biotechnology. 162 (1), (2012).
- Stanier, R. Y., Kunisawa, R., Mandel, M., Cohen-Bazire, G. Purification and properties of unicellular blue-green algae (order Chroococcales). Bacteriological Reviews. 35 (2), 171-205 (1971).
- Zavřel, T., Sinetova, M. A., Búzová, D., Literáková, P., Červený, J. Characterization of a model cyanobacterium Synechocystis sp. PCC 6803 autotrophic growth in a flat-panel photobioreactor. Engineering in Life Sciences. 15 (1), 122-132 (2015).
- Hemlata, G., Fareha, B. Studies on Anabaena sp. nccu-9 with special reference to phycocyanin. Journal of Algal Biomass Utilization. 2 (1), 30-51 (2011).
- Rito-Palomares, M., Nuez, L., Amador, D. Practical application of aqueous two-phase systems for the development of a prototype process for c-phycocyanin recovery from Spirulina maxima. Journal of Chemical Technology & Biotechnology. 76 (12), 1273-1280 (2001).
- Zhang, H., et al. Selenium-Containing Allophycocyanin Purified from Selenium-Enriched Spirulina platensis Attenuates AAPH-Induced Oxidative Stress in Human Erythrocytes through Inhibition of ROS Generation. Journal of Agricultural and Food Chemistry. 59 (16), 8683-8690 (2011).
- Nedbal, L., Trtílek, M., Cervený, J., Komárek, O., Pakrasi, H. B. A photobioreactor system for precision cultivation of photoautotrophic microorganisms and for high-content analysis of suspension dynamics. Biotechnology and Bioengineering. 100 (5), 902-910 (2008).
- Zavřel, T., Knoop, H., Steuer, R., Jones, P. R., Červený, J., Trtílek, M. A quantitative evaluation of ethylene production in the recombinant cyanobacterium Synechocystis sp. PCC 6803 harboring the ethylene-forming enzyme by membrane inlet mass spectrometry. Bioresource Technology. 202, 142-151 (2016).
- Smith, P. K., et al. Measurement of protein using bicinchoninic acid. Analytical Biochemistry. 150 (1), 76-85 (1985).
- Lawrenz, E., Fedewa, E. J., Richardson, T. L. Extraction protocols for the quantification of phycobilins in aqueous phytoplankton extracts. Journal of Applied Phycology. 23 (5), 865-871 (2011).
- Lea-Smith, D. J., et al. Phycobilisome-Deficient Strains of Synechocystis sp. PCC 6803 Have Reduced Size and Require Carbon-Limiting Conditions to Exhibit Enhanced Productivity. Plant Physiology. 165 (2), 705-714 (2014).
- Seo, Y. C., et al. Stable isolation of phycocyanin from Spirulina platensis associated with high-pressure extraction process. International Journal of Molecular Sciences. 14 (1), 1778-1787 (2013).
- Touloupakis, E., Cicchi, B., Torzillo, G. A bioenergetic assessment of photosynthetic growth of Synechocystis sp. PCC 6803 in continuous cultures. Biotechnology for Biofuels. 8 (1), 133(2015).
- Touloupakis, E., Cicchi, B., Benavides, A. M. S., Torzillo, G. Effect of high pH on growth of Synechocystis sp. PCC 6803 cultures and their contamination by golden algae (Poterioochromonas sp.). Applied Microbiology and Biotechnology. 100 (3), 1333-1341 (2016).
- Ishii, A., Hihara, Y. An AbrB-Like Transcriptional Regulator, Sll0822, Is Essential for the Activation of Nitrogen-Regulated Genes in Synechocystis sp. PCC 6803. Plant Physiology. 148 (1), 660-670 (2008).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
