Tutaj prezentujemy protokół modelowania ludzkiej gruźlicy u dorosłego danio pręgowanego przy użyciu jego naturalnego patogenu Mycobacterium marinum. Wyekstrahowane DNA i RNA z narządów wewnętrznych zakażonego danio pręgowanego można wykorzystać do ujawnienia całkowitego obciążenia prątkami u ryb i odpowiedzi immunologicznej gospodarza za pomocą qPCR.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Modelowanie gruźlicy u dorosłych ryb pręgowanych zakażonych Mycobacterium marinum
W tym artykule
Podsumowanie
Streszczenie
Mycobacterium tuberculosis jest obecnie najbardziej śmiercionośnym ludzkim patogenem, powodującym 1,7 miliona zgonów i 10,4 miliona infekcji rocznie. Narażenie na tę bakterię powoduje szerokie spektrum chorób u ludzi, od wysterylizowanej infekcji po aktywnie postępującą śmiertelną chorobę. Najczęstszą postacią jest gruźlica utajona, która przebiega bezobjawowo, ale może reaktywować się w chorobę piorunującą. Dorosłe rybo pręgowane i jego naturalny patogen Mycobacterium marinum okazały się ostatnio odpowiednim modelem do badania szerokiego spektrum chorób gruźlicy. Co ważne, w tym modelu można badać spontaniczne utajenie i reaktywację, a także adaptacyjne odpowiedzi immunologiczne w kontekście infekcji prątkami. W tym artykule opisujemy metody eksperymentalnego zakażenia dorosłego danio pręgowanego, pobierania narządów wewnętrznych do ekstrakcji kwasów nukleinowych w celu pomiaru ładunków prątków i odpowiedzi immunologicznych gospodarza za pomocą ilościowego PCR. Opracowany przez nas, specyficzny dla M. marinum test qPCR jest bardziej czuły niż tradycyjne metody posiewu, ponieważ wykrywa również DNA z niedzielących się, uśpionych lub niedawno martwych prątków. Ponieważ zarówno DNA, jak i RNA są ekstrahowane od tej samej osoby, możliwe jest badanie relacji między stanem chorobowym a ekspresją genów gospodarza i patogenu. Model dorosłego ryba pręgowanego pod kątem gruźlicy prezentuje się zatem jako wysoce przydatny, niezależny od ssaków system in vivo do badania interakcji gospodarz-patogen.
Wprowadzenie
Danio rerio) jest powszechnie używanym modelem zwierzęcym w badaniach biomedycznych i jest akceptowanym modelem dla biologii kręgowców powszechnych. Danio pręgowany został zaadaptowany do wielu dziedzin badań modelujących choroby i zaburzenia człowieka, począwszy od raka1 i choroby serca2 po infekcje i badania immunologiczne kilku bakteryjnych 3 i infekcji wirusowych4,5. Ponadto rozwój ex utero zarodków danio pręgowanego sprawił, że danio pręgowany stał się popularnym modelem w biologii rozwojowej6 i toxicology7,8.
W wielu dziedzinach badań, w tym w biologii infekcji, optycznie przezroczyste larwy zebrygół zebry są powszechnie używane. Pierwsze komórki odpornościowe pojawiają się w ciągu 24 godzin po zapłodnieniu (hpf), gdy wykrywane są prymitywne makrofagi9. Neutrofile są kolejnymi komórkami odpornościowymi, które pojawiają się około 33 hpf10. Larwy danio pręgowanego są zatem możliwe do badania wczesnych stadiów infekcji i roli odporności wrodzonej w przypadku braku adaptacyjnych komórek odpornościowych11. Jednak dorosły danio pręgowany z w pełni funkcjonalnym adaptacyjnym układem odpornościowym zapewnia dodatkową warstwę złożoności dla eksperymentów z infekcjami. Limfocyty T można wykryć około 3 dni po zapłodnieniu12, a limfocyty B są w stanie wytworzyć funkcjonalne przeciwciała do 4 tygodni po zapłodnieniu13. Dorosły danio pręgowany ma wszystkie główne odpowiedniki wrodzonego i adaptacyjnego układu odpornościowego ssaków. Główne różnice między układem odpornościowym ryb i ludzi występują w izotypach przeciwciał, a także w anatomii tkanek limfatycznych. Danio pręgowany ma tylko trzy klasy przeciwciał14, podczas gdy ludzie mają pięć15. W przypadku braku szpiku kostnego i węzłów chłonnych, głównymi narządami limfatycznymi u ryb są nerka i grasica16, a śledziona, nerka i jelita służą jako wtórne narządy limfoidalne17. Pomimo tych różnic, dzięki pełnemu arsenałowi immunologicznemu komórek wrodzonych i adaptacyjnych, dorosły danio pręgowany jest wysoce stosowalnym, łatwym w użyciu, niessakowym modelem do badań interakcji gospodarz-patogen.
Danio pręgowany został ostatnio uznany za możliwy model do badania gruźlicy18,19,20,21,22. Gruźlica jest chorobą przenoszoną drogą powietrzną wywoływaną przez Mycobacterium tuberculosis. Według Światowej Organizacji Zdrowia gruźlica spowodowała1,7 miliona zgonów w 2016 roku i jest główną przyczyną zgonów spowodowanych przez pojedynczy patogen na całym świecie23. Myszy24,25, króliki26 i naczelne inne niż ludzie27 są najbardziej znanymi modelami zwierzęcymi w badaniach nad gruźlicą, ale każdy z nich ma swoje ograniczenia. Model zakażenia M. tuberculosis u naczelnych jest najbardziej zbliżony do choroby ludzkiej, ale stosowanie tego modelu jest ograniczone ze względu na poważne względy etyczne. Inne modele zwierzęce są utrudnione przez specyficzność M. tuberculosis dla gospodarza, która wpływa na patologię choroby. Prawdopodobnie największym problemem w modelowaniu gruźlicy jest szerokie spektrum infekcji i wyników choroby u ludzi: gruźlica jest bardzo niejednorodną chorobą, począwszy od odporności sterylizującej, a skończywszy na infekcji utajonej, aktywnej i reaktywowanej28, która może być trudna do odtworzenia i modelowania eksperymentalnie.
Mycobacterium marinum jest bliskim krewnym M. tuberculosis z ~3,000 ortologicznych białek z 85% tożsamością aminokwasów29. M. marinum w naturalny sposób infekuje danio pręgowanego, wytwarzając ziarniniaki, cechy charakterystyczne gruźlicy, w narządach wewnętrznych19,30. W przeciwieństwie do innych modeli zwierzęcych wykorzystywanych w badaniach nad gruźlicą, danio pręgowany wydaje wiele potomstwa, wymaga jedynie ograniczonej przestrzeni i co ważne, jest neurofizjologicznie najmniej rozwiniętym dostępnym modelem gruźlicy kręgowców. Dodatkowo, zakażenie M. marinum powoduje utajoną infekcję, aktywną chorobę, a nawet sterylizację infekcji prątkami u dorosłego danio pręgowanego, ściśle naśladując spektrum skutków chorobowych ludzkiej gruźlicy19,31,32. W tym miejscu opisujemy metody eksperymentalnego modelu gruźlicy dorosłego danio pręgowanego poprzez wstrzyknięcie M. marinum do jamy brzusznej i zastosowanie ilościowego PCR do pomiaru obciążenia prątkami i odpowiedzi immunologicznej z próbek tkanek danio pręgowanego.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wszystkie eksperymenty z wykorzystaniem rybek danio-pręgowanych zostały zatwierdzone przez Radę ds. Doświadczeń na Zwierzętach w Finlandii (ESAVI/8245/04.10.07/2015). Metody są wykonywane zgodnie z ustawą (497/2013) oraz rozporządzeniem rządowym (564/2013) dotyczącym ochrony zwierząt wykorzystywanych do celów naukowych lub edukacyjnych w Finlandii.
1. Hodowla Mycobacterium marinum
UWAGA: Ponieważ Mycobacterium marinum jest patogenem zdolnym do wywoływania powierzchownych infekcji u ludzi, przed rozpoczęciem pracy z tą bakterią należy zapoznać się z lokalnymi wytycznymi dotyczącymi bezpieczeństwa osobistego oraz utylizacji odpadów biologicznych.
- Hodować M. marinum na płytce 7H10 uzupełnionej o 10% wzbogacenia OADC (kwas oleinowy, albumina, dekstroza, katalaza) i 0,5% v/v glicerolu w temperaturze 29 °C przez co najmniej 5 dni. Utrzymywać kultury M. marinum poprzez wyjmowanie świeżych bakterii z zamrażarki co dwa tygodnie i przenoszenie ich na nową płytkę co drugi tydzień.
UWAGA: M. marinum jest naturalnym patogenem ryb infekującym gatunki wodne, dlatego ważne jest podjęcie środków ostrożności, aby nie zanieczyścić stad rybek danio tymi bakteriami. Zainfekowane rybki danio oraz przedmioty zanieczyszczone bakteriami muszą być przechowywane oddzielnie od obiektów hodowlanych. - Za pomocą sterylnej pętli szczepiącej o pojemności 1-µL aseptycznie przenieść pętlę masy bakteryjnej M. marinum do kolby do hodowli komórkowych zawierającej 10 mL pożywki 7H9 z 10% wzbogacenia ADC (albumina, dekstroza, katalaza), 0,2% v/v polisorbanu 80 i 0,2% v/v glicerolu. Hodować przez 3–4 dni do uzyskania wartości OD600 (gęstość optyczna) około 0,7 w temperaturze 29 °C w ciemności, bez wytrząsania. Pozostawić zakrętkę lekko poluzowaną lub użyć zakrętki z filtrem, aby umożliwić wystarczającą wymianę gazową.
UWAGA: Polisorban 80 dodaje się do pożywki, aby zapobiec agregacji bakterii. Ponadto ekspozycja na światło prowadzi do zmian fenotypowych w koloniach bakteryjnych (np. zmiana koloru z białego na żółty). Aby tego uniknąć, należy przechowywać kultury w ciemności. - Zmierzyć wartość OD600 za pomocą spektrofotometru. Rozcieńczyć kulturę płynną do wartości OD600 od 0,07 do 0,09 i kontynuować hodowlę przez 2 dni w temperaturze 29 °C w ciemności, bez wytrząsania. Pozostawić zakrętkę poluzowaną.
UWAGA: W ciągu tych dwóch dni zawiesina bakteryjna osiągnie wartość OD600 około 0,5, co odpowiada wczesnej fazie logarytmicznej.
2. Przygotowanie zawiesiny bakteryjnej do zakażania dorosłych rybek danio pręgowanych
- Przenieś zawiesinę bakteryjną do dużej sterylnej kuwety lub probówki o pojemności 15 mL i pozostaw ją w ciemności w temperaturze pokojowej na 15 min, aby umożliwić osadzenie się największych grudek.
- Przenieś górne 5–7 mL zawiesiny do czystej probówki lub kuwety i zmierz OD600. Tę górną fazę zawiesiny wykorzystaj do infekcji.
- Pobierz 1 mL hodowli M. marinum do nowej probówki i wiruj przez 3 min przy 10,000 x g. Usuń nadsącz i resuspenduj osad w 1 mL sterylnego 1x PBS.
- Rozcieńcz zawiesinę do osiągnięcia pożądanej koncentracji bakterii, używając sterylnego 1x PBS z 0,3 mg/mL czerwieni fenolowej jako znacznika. Podziel rozcieńczoną zawiesinę na trzy alikwoty.
UWAGA: Użyj wcześniej wyznaczonej krzywej zależności OD600 od CFU (jednostek tworzących kolonie)/µL, aby oszacować rozcieńczenie wymagane do uzyskania pożądanej liczby bakterii w 5 µL objętości iniekcyjnej34. Korelacja między OD600 a stężeniem zawiesiny bakteryjnej musi zostać zwalidowana przed rozpoczęciem właściwych eksperymentów z infekcją. Zarezerwuj dwa tygodnie na zebranie danych do tej walidacji. - Za pomocą strzykawki 1 mL powoli przeciągnij zawiesinę przez igłę 27 G 3 razy. W przypadku każdego alikwotu wykonaj ten krok bezpośrednio przed użyciem.
UWAGA: Nie używaj tego samego roztworu bakteryjnego przez więcej niż 2 h.
3. Eksperymentalna infekcja M. marinum poprzez wstrzyknięcie doszpikowe
- Nanieś pipetą kroplę 5 µL rozcieńczonego roztworu bakterii na kawałek folii parafilmowej, a następnie wciągnij kroplę do igły insulinowej 30 G.
- Do eksperymentu wykorzystaj ryby typu dzikiego oraz ryby mutanty rag1−/−hu1999 w wieku od 5 do 8 miesięcy. Zzniecz dorosłe danio pręgowane w wodzie akwariowej za pomocą 0,02% estru etylowego kwasu 3-aminobenzoesowego (pH 7.0). Umieść rybę stroną brzuszną do góry w szczelinie w wilgotnej piance plastikowej.
UWAGA: Ryby mutanty Rag-/- nie są zdolne do rekombinacji somatycznej i nie wytwarzają funkcjonalnych limfocytów T i B. - Wprowadź igłę między płetwy brzuszne pod kątem około 45°. Trzymaj otwór igły skierowany do góry, aby upewnić się, że cały otwór znajduje się w jamie brzusznej. Powoli wstrzyknij zawiesinę bakteryjną i ostrożnie wyjmij igłę.
UWAGA: W przypadku wycieku czerwonego znacznika z ryby podczas wstrzykiwania, wyklucz tę rybę z eksperymentu. - Bezpośrednio po iniekcji przenieś rybę do zbiornika regeneracyjnego ze świeżą wodą akwariową.
- Co 15 min pobieraj próbki używanej porcji zawiesiny bakteryjnej na płytki 7H10, inkubuj bakterie w temperaturze 29 °C przez 5 dni i zweryfikuj dawkę zakażenia poprzez zliczenie kolonii na płytkach.
- Regularnie sprawdzaj stan zdrowia ryb i uśmiercaj wszystkie osobniki wykazujące objawy infekcji, stosując stężenie estru etylowego kwasu 3-aminobenzoesowego (pH 7.0) powyżej 0,02%.
UWAGA: Około 7% dorosłych danio pręgowanych zakażonych dawką 34 ± 15 CFU oraz 30% zakażonych dawką 2029 ± 709 CFU wykazuje objawy do 8 tygodnia19. Objawy mogą obejmować nieprawidłowe pływanie, brak reakcji na dotyk, łapanie powietrza, obrzęki lub widoczne wyniszczenie. - Utrzymuj danio pręgowane zgodnie z powszechnie przyjętymi standardami35.
4. Pobieranie organów wewnętrznych
- Uśmierć danio pręgowanego poprzez przedawkowanie esteru etylowego kwasu 3-aminobenzoowego (stężenie powyżej 0.02%, pH 7.0) w wodzie w zbiorniku.
- Wbij jedną szpilkę za promieniami błony skrzelowej i drugą przez ogon, aby przymocować rybę do platformy.
- Otwórz skalpelem całą jamę brzuszną i pobierz narządy wewnętrzne, używając małej łyżeczki oraz pęsety z ostrymi końcami. Zacznij od serca i przesuwaj się wzdłuż kręgosłupa w stronę ogona, aby oddzielić wszystkie narządy wewnętrzne w jednym bloku.
UWAGA: Należy upewnić się, że pobrano całą tkankę nerek, zeskrobując ją łyżeczką wzdłuż kręgosłupa. - Na koniec użyj pęsety, aby oddzielić jelita w okolicy otworu kąpielowego i przenieś narządy do probówki do homogenizacji o pojemności 1.5 mL zawierającej sześć ceramicznych kulek o średnicy 2.8 mm. Natychmiast umieść próbkę na suchym lodzie w celu jej zamrożenia. Próbkę można przechowywać w temperaturze -80 °C do momentu homogenizacji.
- Pomiędzy kolejnymi osobnikami płucz narzędzia w 70% etanolu.
5. Homogenizacja i ekstrakcja RNA z bloku narządowego.
UWAGA: Metoda została zmodyfikowana na podstawie protokołów Uniwersytetu Stanforda36.
- Dodaj do próbki roztwór tiocyjanianu guanydyny i fenolu stosowany do ekstrakcji kwasów nukleinowych (Tabela materiałów) do całkowitej objętości 1 500 µL. Upewnij się, że próbka stanowi maksymalnie 10% całkowitej objętości.
UWAGA: Przewidywana objętość pobranej tkanki wynosi 100 µL. Roztwór tiocyjanianu guanydyny i fenolu zawiera związki toksyczne i drażniące, dlatego wymagane jest stosowanie odzieży ochronnej, rękawic nitrylowych oraz praca w dygestorium. Nie łączyć z wybielaczem, ponieważ spowoduje to powstanie toksycznych gazów. Przed użyciem zapoznać się z kartą charakterystyki materiału (MSDS). - Zhomogenizuj próbki za pomocą homogenizatora kulkowego 3 razy przez 40 s przy 3 200 rpm. Chłodź na lodzie przez 30 s pomiędzy cyklami. Poddaj zhomogenizowane próbki sonikacji w łaźni wodnej przez 9 min.
- Wiruj próbki przy 12 000 x g przez 10 min w temperaturze 4 °C i przenieś 1 000 µL oczyszczonego homogenatu do nowej probówki do mikrowirówki.
- Dodaj 200 µL chloroformu, natychmiast wymieszaj w vorteksie przez 15 s i inkubuj przez 2 min w temperaturze pokojowej.
UWAGA: Chloroform jest związkiem toksycznym i drażniącym w przypadku inhalacji, połknięcia lub kontaktu ze skórą lub oczami. Stosuj niezbędny sprzęt ochronny i pracuj w dygestorium. Przed użyciem zapoznać się z kartą charakterystyki materiału (MSDS). - Wiruj przy 12 000 x g przez 15 min w temperaturze 4 °C, aby rozdzielić fazę wodną i organiczną.
- Ostrożnie przenieś 500 µL górnej fazy do nowej probówki, aby uniknąć zanieczyszczenia RNA. Usuń i zutylizuj resztę fazy wodnej (~100 µL), a interfazę i fazę organiczną przechowuj w temperaturze 4 °C do ekstrakcji DNA.
UWAGA: Górna faza zawiera RNA. - Dodaj 500 µL 2-propanolu i natychmiast wymieszaj w vorteksie przez 15 s. Inkubuj przez 10 min w temperaturze pokojowej, aby wytrącić RNA.
- Wiruj przy 12 000 x g przez 10 min w temperaturze 4 °C, aby uzyskać osad RNA. Usuń nadsącz za pomocą pipety.
- Dodaj 1 mL 75% etanolu i vorteksuj przez 10 s.
UWAGA: Protokół można w tym miejscu przerwać, a próbki przechowywać przez noc w temperaturze 4 °C. - Wiruj przy 7 500 x g przez 5 min w temperaturze 4 °C. Usuń nadsącz za pomocą pipety.
- Powtórz etapy płukania 5.9–5.10. Ostrożnie usuń nadsącz za pomocą pipety i pozostaw osad do wyschnięcia na powietrzu w dygestorium.
- Rozpuść osad RNA w 500 µL wody wolnej od nukleaz i przechowuj próbki na lodzie. Zmierz stężenia za pomocą spektrofotometru mikropojemnościowego lub równoważnego urządzenia. Przechowuj RNA w temperaturze -80 °C.
6. Oczyszczanie współwyekstrahowanego DNA z danio pręgowanego i bakterii prątkowatych
- Przygotować bufor do reekstrakcji (BEB), rozpuszczając 118,2 g tiocyjanianu guanidyny (stężenie końcowe 4 M), 3,68 g cytrynianu sodu (stężenie końcowe 50 mM) oraz 30,29 g Tris free base (stężenie końcowe 1 M) w 120 mL wody wolnej od nukleaz (może być wymagane mieszanie przez noc). Dodać wodę wolną od nukleaz do końcowej objętości 250 mL i przefiltrować w celu sterylizacji roztworu.
UWAGA: Bufor ten można przechowywać w temperaturze pokojowej do 6 miesięcy. Nie łączyć BEB z wybielaczem, ponieważ reagują one, tworząc toksyczne gazy, takie jak chlorek wodoru i cyjanek wodoru. - Do ekstrakcji DNA prątków wykorzystać interfazę i fazę organiczną próbki. Dodać 500 μL BEB do każdej probówki. Mieszać intensywnie przez 10 min poprzez odwracanie probówek w temperaturze pokojowej.
- Wirować probówki z prędkością 12,000 x g przez 30 min w temperaturze pokojowej, a następnie ostrożnie przenieść 500 µL górnej fazy wodnej zawierającej DNA do nowej probówki.
- Dodać 400 μL 2-propanolu. Wymieszać przez odwracanie i inkubować przez 10 min w temperaturze pokojowej.
- Wirować próbki z prędkością 12,000 x g przez 15 min w temperaturze 4 °C. Na tym etapie powinien być widoczny osad zawierający DNA. Ostrożnie usunąć nadsącz za pomocą pipety.
- Dodać 800 μL 70% etanolu. Przepłukać osad poprzez odwracanie probówek. Na tym etapie nie mieszać próbek w wirówce typu vortex, ponieważ DNA genomowe łatwo ulega degradacji.
- Wirować próbki z prędkością 12,000 x g przez 15 min w temperaturze 4°C i usunąć nadsącz za pomocą pipety. Powtórzyć płukanie etanolem (kroki 6.6 i 6.7).
- Usunąć etanol, ostrożnie pipetując. Pozostawić próbki do wyschnięcia na powietrzu przez 5–10 min. Rozpuścić osad w 200 μL wody wolnej od nukleaz.
- Zmierzyć stężenie DNA za pomocą mikroobjętościowego spektrofotometru lub równoważnego sprzętu. DNA można przechowywać w temperaturze 4 °C lub -20 °C w przypadku długoterminowego przechowywania.
7. Ilościowa PCR do pomiaru miana prątków
- Przygotować mieszaniny reakcyjne qPCR bez barwnika ROX (karboksy-X-rodaminy) skierowane przeciwko wewnętrznemu sekwencerowi transkrybowanemu (ITS) bakterii M. marinum pomiędzy 16S-23S ITS zgodnie z instrukcjami producenta, wykorzystując startery MMITS1 (Tabela 1). Nanieść pipetą mieszaninę reakcyjną oraz rozcieńczenia próbek w dwóch powtórzeniach na płytkę 96-dołkową odpowiednią do qPCR. W każdym przebiegu należy uwzględnić serię rozcieńczeń standardu DNA o znanej ilości bakterii.
UWAGA: Oczekiwany ładunek M. marinum na rybę w 4 wpi może wynosić od 0 CFU do 1 000 000 CFU. Test qPCR można przeprowadzić również z użyciem innych zestawów do qPCR, jednak temperatura przyłączania starterów musi zostać ponownie zoptymalizowana. - Uszczelnić płytkę optycznie przezroczystą folią i odwirować płytkę z prędkością 2 000 x g przez 2 min w temperaturze 4 °C.
- Uruchomić program qPCR przedstawiony w Tabeli 2.
- Na podstawie krzywej standardowej obliczyć liczbę bakterii w całej próbce ryby.
8. Traktowanie próbek RNA nukleazą DNazą
- Aby usunąć ewentualne pozostałości DNA genomicznego z RNA, przeprowadź traktowanie DNazą I. Odmroź próbki RNA na lodzie.
UWAGA: Przed rozpoczęciem pracy należy używać wyłącznie sprzętu i roztworów wolnych od RNaz oraz przetrzeć powierzchnię roboczą i pipety odczynnikiem dekontaminującym eliminującym RNazy (Tabela materiałów). Noś fartuch laboratoryjny z długimi rękawami oraz rękawiczki, aby chronić próbki. - Przygotuj na lodzie 10 μL mieszanin reakcyjnych z DNazą I zgodnie z instrukcjami producenta. Wymieszaj 1 μL DNazy I, 1 μL 10x buforu do DNazy i 8 μL próbki RNA zawierającej maksymalnie 1 μg RNA.
- Delikatnie wymieszaj reakcje (nie używaj vortexa) i inkubuj przez 30 min w temperaturze 37 °C.
- Przed inaktywacją termiczną dodaj 1 µL 50 mM EDTA do każdej 10 µL próbki. Jeśli EDTA nie zostanie dodane, RNA ulegnie degradacji chemicznej podczas podgrzewania.
- Inkubuj przez 10 min w temperaturze 65 °C, aby termicznie inaktywować DNazę I. Przejdź bezpośrednio do syntezy cDNA lub przechowuj RNA potraktowane DNazą w temperaturze -80 °C.
9. Synteza cDNA
- Wszystkie odczynniki i próbki należy przechowywać w lodzie, a mieszaniny reakcyjne przygotować zgodnie z instrukcjami producenta. Dla 5 μL mieszanina reakcyjna, zawiera 1 μL mieszaniny Reverse Transcription Master Mix, 3 μL wody wolnej od nukleaz i 1 μL RNA traktowanego DNazą.
- Delikatnie wymieszać reakcje odwrotnej transkrypcji i w razie potrzeby krótko odwirować probówkę.
- Umieść próbki w termocyklerze i zastosuj program przedstawiony w Tabela 3.
- Rozcieńczyć cDNA w wodzie wolnej od nukleaz do maksymalnego stężenia 2,5 ng/µl w celu przeprowadzenia qPCR.μL, jeśli jest to konieczne. cDNA można przechowywać w temperaturze -20 °C.
10. Pomiar ekspresji genów u danio pręgowanego za pomocą ilościowej reakcji PCR
- Przygotować na lodzie mieszaninę master mix do qPCR zgodnie z instrukcją producenta, chroniąc ją przed światłem. Należy użyć starterów przedstawionych w Tabeli 1.
UWAGA: Aby obliczyć krotność indukcji dla każdego genu, należy zmierzyć ekspresję również w połączonej próbce bazowej wyekstrahowanej z 6 zdrowych danio pręgowanych. - Przygotować powtórzenia każdej próbki i nanieść mieszaniny reakcyjne pipetą na płytkę do qPCR. Uszczelnić płytkę optycznie przezroczystą folią i wirować płytkę z prędkością 2,000 x g przez 2 min w temperaturze 4 °C przed rozpoczęciem cyklu.
- Uruchomić program qPCR przedstawiony w Tabeli 4, przyjmując temperaturę przyłączania zależną od zastosowanej pary starterów (Tabela 1).
- Przeanalizować stosunek ekspresji genów w odniesieniu do genu referencyjnego (loopern437) metodą ΔCt, korzystając z równania:
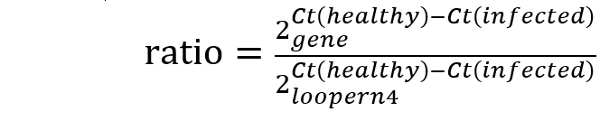
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Naturalny patogen ryb Mycobacterium marinum zakaża narządy wewnętrzne danio pręgowanego, wywołując infekcję systemową z histologicznie widocznymi ziarniniakami19. Dorosłe osobniki danio pręgowanego są zakażane M. marinum poprzez wstrzyknięcie dosytnio. Następnie ekstrahuje się DNA oraz RNA, a miano prątków mierzy się za pomocą ilościowej reakcji polimerazy łańcuchowej (qPCR), wykorzystując DNA jako matrycę. Schemat metody przedstawiono na
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
W tym miejscu opisujemy aplikację opartą na qPCR do pomiaru obciążenia prątkami z DNA wyekstrahowanego z eksperymentalnie zakażonych tkanek dorosłego danio pręgowanego. Ta aplikacja opiera się na starterach zaprojektowanych wokół sekwencji40 pasków dystansowych 16S-23S rRNA z transkrypcją wewnętrzną. Całkowite obciążenie prątkami w próbce ryb szacuje się przy użyciu krzywej wzorcowej przygotowanej z DNA wyekstrahowanego ze znanej liczby hodowanych prątków i przy założeniu, że jedna bakteria ma jed...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca została wsparta przez Fińską Fundację Kultury (H.L.), Fundację Gruźlicy Tampere (H.L., L.-M.V., M.M.H., M.P.), Fundację Fińskiego Stowarzyszenia Przeciwgruźliczego (Suomen Tuberkuloosin Vastustamisyhdistyksen Säätiö) (H.L., M.M.H., M.P.), Sigrid Jusélius Foundation (M.P.), Fundację Emila Aaltonena (M.M.H.), Fundacja Jane i Aatos Erkko (M.P.) oraz Akademia Fińska (M.P.). Leena Mäkinen, Hanna-Leena Piippo i Jenna Ilomäki zostały docenione za pomoc techniczną. Autorzy dziękują Laboratorium Danio Pręgowanego w Tampere za ich usługi.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Mycobacterium marinum | American Type Culture Collection | ATCC 927 | |
| Middlebrock 7H10 agar | BD, Thermo Fisher Scientific | 11799042 | |
| Middlebrock OADC enrichment | BD, Thermo Fisher Scientific | 11718173 | |
| Middlebrock 7H9 medium | BD, Thermo Fisher Scientific | 11753473 | |
| Wzbogacanie ADC Middlebrock | BD, Thermo Fisher Scientific | 11718173 | |
| Tween 80 | Sigma-Aldrich | P1754 | |
| Glicerol | Sigma-Aldrich | G5516-500ML | |
| Spektrofotometr GENESYS20 | Thermo Fisher Scientific | ||
| Tabletki soli fizjologicznej buforowane fosforanami (PBS) | Sigma-Aldrich | P4417-50TAB | |
| Czerwień fenolowa | Sigma-Aldrich | P3532 | |
| Igła 27 G | Henke Sass Wolf | 4710004020 | |
| strzykawka 1 ml Henke | Sass Wolf | 4010.200V0 | |
| Omnican 100 30 G igła insulinowa | Braun | 9151133 | |
| ester etylowy kwasu 3-aminobenzoesowego (pH 7,0) | Sigma-Aldrich | A5040 | |
| 1,5 ml probówka homogenizacyjna | Qiagen | 13119-1000 | |
| Koraliki ceramiczne 2,8 mm | Qiagen | 13114-325 | |
| Etanol, ETAX Aa | Altia | ||
| 2-propanol | Sigma-Aldrich | 278475 | |
| Chloroform | VWR | 22711.290 | |
| Tiocyjanian guanidyny | Sigma-Aldrich | G9277 | FW 118,2 g/mol |
| Cytrynian | soduSigma-Aldrich | 1613859 | FW 294.1 g/mol |
| Tris (wolna zasada) | Sigma-Aldrich | TRIS-RO | FW 121.14 g/mol |
| Odczynnik TRI | Centrum Badań Molekularnych | TR118 | Roztwór tiocyjanianu guanidyny i fenolu |
| Homogenizator PowerLyzer24 | Qiagen | ||
| Sonicator m08 | Finnsonic | ||
| Nanodrop 2000 | Thermo Fisher Scientific | ||
| SENSIFAST No-ROX SYBR, Green Master Mix | Bioline | BIO-98005 | |
| qPCR 96-dołkowa płytka | BioRad | HSP9601 | |
| Folia optycznie przezroczysta | BioRad | MSB1001 | |
| C1000 Termocykler z systemem czasu rzeczywistego CFX96 | BioRad | ||
| RNase AWAY | Thermo Fisher Scientific | 10666421 | odczynnik do dekontaminacji eliminujący RNazy |
| DNazy I | Thermo Fisher Scientific | EN0525 | |
| Reverse Transcription Master Mix | Fluidigm | 100-6298 | |
| SsoFast Eva Green master mix | BioRad | 172-5211 |
Bibliografia
- Zhao, S., Huang, J., Ye, J. A fresh look at zebrafish from the perspective of cancer research. Journal of Experimental & Clinical Cancer Research. 34, 80(2015).
- Bournele, D., Beis, D. Zebrafish models of cardiovascular disease. Heart failure reviews. 21 (6), 803-813 (2016).
- Torraca, V., Mostowy, S. Zebrafish Infection: From Pathogenesis to Cell Biology. Trends in cell biology. 28 (2), 143-156 (2018).
- Varela, M., Figueras, A., Novoa, B. Modelling viral infections using zebrafish: Innate immune response and antiviral research. Antiviral Research. 139, 59-68 (2017).
- Goody, M. F., Sullivan, C., Kim, C. H. Studying the immune response to human viral infections using zebrafish. Developmental and comparative immunology. 46 (1), 84-95 (2014).
- Thisse, C., Zon, L. I. Organogenesis--heart and blood formation from the zebrafish point of view. Science. 295 (5554), 457-462 (2002).
- Eimon, P. M., Rubinstein, A. L. The use of in vivo zebrafish assays in drug toxicity screening. Expert Opinion on Drug Metabolism & Toxicology. 5 (4), 393-401 (2009).
- Sukardi, H., Chng, H. T., Chan, E. C. Y., Gong, Z., Lam, S. H. Zebrafish for drug toxicity screening: bridging the in vitro cell-based models and in vivo mammalian models. Expert Opinion on Drug Metabolism & Toxicology. 7 (5), 579-589 (2011).
- Wittamer, V., Bertrand, J. Y., Gutschow, P. W., Traver, D. Characterization of the mononuclear phagocyte system in zebrafish. Blood. 117 (26), 7126-7135 (2011).
- Harvie, E. A., Huttenlocher, A. Neutrophils in host defense: new insights from zebrafish. Journal of leukocyte biology. 98 (4), 523-537 (2015).
- Yoshida, N., Frickel, E., Mostowy, S. Macrophage-Microbe interactions: Lessons from the Zebrafish Model. Frontiers in Immunology. 8, 1703(2017).
- Langenau, D. M., et al. In vivo tracking of T cell development, ablation, and engraftment in transgenic zebrafish. Proceedings of the National Academy of Sciences of the United States of America. 101 (19), 7369-7374 (2004).
- Lewis, K. L., Del Cid, N., Traver, D. Perspectives on antigen presenting cells in zebrafish. Developmental and comparative immunology. 46 (1), 63-73 (2014).
- Hu, Y., Xiang, L., Shao, J. Identification and characterization of a novel immunoglobulin Z isotype in zebrafish: Implications for a distinct B cell receptor in lower vertebrates. Molecular immunology. 47 (4), 738-746 (2010).
- Danilova, N., Bussmann, J., Jekosch, K., Steiner, L. A. The immunoglobulin heavy-chain locus in zebrafish: identification and expression of a previously unknown isotype, immunoglobulin Z. Nature immunology. 6 (3), 295-302 (2005).
- Zapata, A., Diez, B., Cejalvo, T., Frias, C. G., Cortes, A. Ontogeny of the immune system of fish. Fish & shellfish. 20 (2), 126-136 (2006).
- Traver, D., Paw, B. H., Poss, K. D., Penberthy, W. T., Lin, S., Zon, L. I. Transplantation and in vivo imaging of multilineage engraftment in zebrafish bloodless mutants. Nature immunology. 4 (12), 1238-1246 (2003).
- Hammaren, M. M., et al. Adequate Th2-Type Response Associates with Restricted Bacterial Growth in Latent Mycobacterial Infection of Zebrafish. Plos Pathogens. 10 (6), e1004190(2014).
- Parikka, M., et al. Mycobacterium marinum Causes a Latent Infection that Can Be Reactivated by Gamma Irradiation in Adult Zebrafish. PLoS Pathog. 8 (9), 1-14 (2012).
- Tobin, D. M., et al. Host Genotype-Specific Therapies Can Optimize the Inflammatory Response to Mycobacterial Infections. Cell. 148 (3), 434-446 (2012).
- Lesley, R., Ramakrishnan, L. Insights into early mycobacterial pathogenesis from the zebrafish. Current opinion in microbiology. 11 (3), 277-283 (2008).
- Berg, R. D., Ramakrishnan, L. Insights into tuberculosis from the zebrafish model. Trends in molecular medicine. 18 (12), 689-690 (2012).
- World Health Organization. WHO Global tuberculosis report 2017. , Available from: http://www.who.int/tb/publications/global_report/en/ (2017).
- Ordonez, A. A., et al. Mouse model of pulmonary cavitary tuberculosis and expression of matrix metalloproteinase-9. Disease Models & Mechanisms. 9 (7), 779-788 (2016).
- Kramnik, I., Beamer, G. Mouse models of human TB pathology: roles in the analysis of necrosis and the development of host-directed therapies. Seminars in Immunopathology. 38 (2), 221-237 (2016).
- Manabe, Y. C., et al. The aerosol rabbit model of TB latency, reactivation and immune reconstitution inflammatory syndrome. Tuberculosis. 88 (3), 187-196 (2008).
- Pena, J. C., Ho, W. Monkey Models of Tuberculosis: Lessons Learned. Infection and immunity. 83 (3), 852-862 (2015).
- Cadena, A. M., Fortune, S. M., Flynn, J. L. Heterogeneity in tuberculosis. Nature Reviews Immunology. 17 (11), 691-702 (2017).
- Stinear, T. P., et al. Insights from the complete genome sequence of Mycobacterium marinum on the evolution of Mycobacterium tuberculosis. Genome research. 18 (5), 729-741 (2008).
- Swaim, L. E., Connolly, L. E., Volkman, H. E., Humbert, O., Born, D. E., Ramakrishnan, L. Mycobacterium marinum infection of adult zebrafish causes caseating granulomatous tuberculosis and is moderated by adaptive immunity. Infection and immunity. 74 (11), 6108-6117 (2006).
- Myllymaki, H., Bauerlein, C. A., Ramet, M. The Zebrafish Breathes new Life into the Study of Tuberculosis. Frontiers in Immunology. 7, 196(2016).
- Luukinen, H., et al. Priming of Innate Antimycobacterial Immunity by Heat-killed Listeria monocytogenes Induces Sterilizing Response in Adult Zebrafish Tuberculosis Model. Disease Models and Mechanisms. 11, (2018).
- Sar, A. M., Abdallah, A. M., Sparrius, M., Reinders, E., Vandenbroucke-Grauls, C., Bitter, W. Mycobacterium marinum strains can be divided into two distinct types based on genetic diversity and virulence. Infection and immunity. 72 (11), 6306-6312 (2004).
- Madigan, M., Martinko, J. Brock Biology of Microorganisms. , (2016).
- Nüsslein-Volhard, C., Dahm, R. Zebrafish:a practical approach. , Oxford University Press. Oxford. (2002).
- Anonymous Stanford University Protocols. , Available from: http://med.stanford.edu/labs/vanderijn-west/Protocols.html (2018).
- Vanhauwaert, S., et al. Expressed Repeat Elements Improve RT-qPCR Normalization across a Wide Range of Zebrafish Gene Expression Studies. Plos One. 9 (10), e109091(2014).
- Hammaren, M. M., et al. Adequate Th2-Type Response Associates with Restricted Bacterial Growth in Latent Mycobacterial Infection of Zebrafish. Plos Pathogens. 10 (6), e1004190(2014).
- Oksanen, K. E., et al. An adult zebrafish model for preclinical tuberculosis vaccine development. Vaccine. 31 (45), 5202-5209 (2013).
- Roth, A., Fischer, M., Hamid, M. E., Michalke, S., Ludwig, W., Mauch, H. Differentiation of phylogenetically related slowly growing mycobacteria based on 16S-23S rRNA gene internal transcribed spacer sequences. Journal of clinical microbiology. 36 (1), 139-147 (1998).
- Rajararna, M. V. S., Ni, B., Dodd, C. E., Schlesinger, L. S. Macrophage immunoregulatory pathways in tuberculosis. Seminars in immunology. 26 (6), 471-485 (2014).
- Vynnycky, E., Fine, P. The natural history of tuberculosis: the implications of age-dependent risks of disease and the role of reinfection. Epidemiology and infection. 119 (2), 183-201 (1997).
- Cobat, A., et al. Two loci control tuberculin skin test reactivity in an area hyperendemic for tuberculosis. Journal of Experimental Medicine. 206 (12), 2583-2591 (2009).
- Delogu, G., Goletti, D. The Spectrum of Tuberculosis Infection: New Perspectives in the Era of Biologics. Journal of Rheumatology. 41, 11-16 (2014).
- Abel, L., et al. Genetics of human susceptibility to active and latent tuberculosis: present knowledge and future perspectives. Lancet Infectious Diseases. 18 (3), E75(2018).
- Guryev, V., et al. Genetic variation in the zebrafish. Genome research. 16 (4), 491-497 (2006).
- Brown, K. H., et al. Extensive genetic diversity and substructuring among zebrafish strains revealed through copy number variant analysis. Proceedings of the National Academy of Sciences of the United States of America. 109 (2), 529-534 (2012).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
