Makropinocytoza, niespecyficzny pobór płynów na dużą skalę, jest ważna w wielu dziedzinach biologii klinicznej, w tym w immunologii, infekcjach, nowotworach i chorobach neurodegeneracyjnych. W tym przypadku istniejące techniki zostały zaadaptowane, aby umożliwić wysokoprzepustowy pomiar makropinocytozy z rozdzielczością pojedynczej komórki w organizmie modelowym makropinocytozy Dictyostelium discoideum przy użyciu cytometrii przepływowej.
Artykuł metodologiczny
Wysokoprzepustowy pomiar makropinocytozy Dictyostelium discoideum za pomocą cytometrii przepływowej
W tym artykule
Podsumowanie
Streszczenie
Niespecyficzny pobór płynów na dużą skalę przez makropinocytozę jest ważny dla proliferacji niektórych komórek nowotworowych, pobierania próbek antygenu, inwazji komórek gospodarza i rozprzestrzeniania się chorób neurodegeneracyjnych. Powszechnie stosowane w laboratorium szczepy ameby Dictyostelium discoideum charakteryzują się wyjątkowo wysokimi wskaźnikami wchłaniania płynów, gdy są uprawiane w pożywce, z czego ponad 90% jest spowodowane makropinocytozą. Ponadto obecnych jest również wiele znanych podstawowych składników makropinocytozy ssaków, co czyni go doskonałym systemem modelowym do badania makropinocytozy. W tym przypadku standardowa technika pomiaru zinternalizowanego płynu przy użyciu fluorescencyjnego dekstranu jako etykiety jest dostosowana do formatu płytki 96-dołkowej, przy czym próbki są analizowane za pomocą cytometrii przepływowej przy użyciu przystawki do pobierania próbek o wysokiej przepustowości (HTS).
Komórki są karmione niegasnącym fluorescencyjnym dekstranem przez określony czas, myte przez zanurzenie w lodowatym buforze i odłączane za pomocą 5 mM azydku sodu, który również zatrzymuje egzocytozę. Komórki w każdym dołku są następnie analizowane za pomocą cytometrii przepływowej. Metodę można również dostosować do pomiaru wychwytu błonowego i fagocytozy kulek fluorescencyjnych lub bakterii.
Ta metoda została zaprojektowana, aby umożliwić pomiar poboru płynów przez Dictyostelium w sposób efektywny pod względem przepustowości, pracy i zasobów. Pozwala to na równoległe porównywanie wielu szczepów (np. mutantów nokautujących genu) i warunków (np. komórek w różnych pożywkach lub traktowanych różnymi stężeniami inhibitora) i upraszcza przebiegi czasowe.
Wprowadzenie
Niespecyficzny wychwyt płynów na dużą skalę przez makropinocytozę jest ważny w kilku kontekstach biologicznych1, w tym pobieranie próbek antygenu przez komórki odpornościowe2, wejście patogenu do komórek gospodarza3, proliferacja komórek rakowych4 i rozprzestrzenianie się chorób prionowych5. W komórkach ssaków i Dictyostelium actin6,7, PI(3,4,5)P38,9,10 (chociaż dokładna natura lipidu różni się między tymi dwoma11), aktywował Ras12,13 i aktywował Rac14,15 są ważne dla efektywnego wchłaniania płynów przez makropinocytozę, chociaż pozostaje wiele pytań bez odpowiedzi na temat tego, w jaki sposób łata makropinocytarna jest tworzona, organizowana i ostatecznie internalizowana. Odkrycie większej liczby białek ważnych dla makropinocytozy, a następnie określenie, w jaki sposób są one ważne w różnych kontekstach biologicznych, pozwoli na pełniejsze zrozumienie makropinocytozy i potencjalnie umożliwi opracowanie ukierunkowanych metod leczenia wielu schorzeń.
Dictyostelium to idealny system modelowy do badania makropinocytozy. Wysoki poziom konstytutywnej makropinocytozy w standardowych szczepach laboratoryjnych oznacza, że pobór płynów jest spowodowany makropinocytozą6. Pozwala to na pomiar makropinocytozy wyłącznie poprzez określenie wychwytu płynów, w przeciwieństwie do komórek ssaków, w których udział wychwytu płynów z powodu makropinocytozy jest znacznie niższy. To, że makropinocytoza jest tak dobrze zdefiniowana i łatwa do wizualizacji12 w tym systemie podobnie oferuje wyraźne korzyści w badaniu podstawowych konserwatywnych składników makropinosomu w porównaniu z innymi systemami, w których może występować wiele sygnałów regulacyjnych16,17.
Standardowa technika używana do pomiaru makropinocytozy przez komórki ssaków polega na utrwalaniu komórek po pulsowaniu dekstranu przez krótki okres czasu, a następnie mikroskopii w celu określenia obszaru komórki, który jest zajęty przez pęcherzyki dekstranowo-dodatnie18. Technika ta nie uwzględnia jednak możliwości kurczenia się makropinosomów po wejściu do komórki, co zostało opisane w Dictyostelium19, i uwzględnia tylko pojedyncze płaszczyzny komórki, co oznacza, że zinternalizowana objętość jest niejasna. Alternatywna technika, polegająca na zliczaniu liczby makropinosomów zinternalizowanych w danym czasie, ma te same wady20. Korzystanie z Dictyostelium pozwala uniknąć tych problemów; jednak istniejące techniki pomiaru wychwytu płynów przez Dictyostelium są stosunkowo pracochłonne, przy użyciu dużej ilości zarówno komórek, jak i dekstranu21. Komórki są wstrząsane z dużą gęstością we fluorescencyjnym dekstranie, a próbki są usuwane w różnych punktach czasowych w celu oznaczenia zinternalizowanej fluorescencji za pomocą fluorymetru. Tak przygotowane komórki mogą być analizowane za pomocą cytometrii przepływowej w celu uzyskania rozdzielczości pojedynczej komórki, a nie na poziomie populacji22, chociaż nadal jest to niska przepustowość.
Tutaj standardowa technika pomiaru zinternalizowanego płynu przy użyciu fluorescencyjnego dekstranu jako etykiety jest dostosowana do formatu płytki 96-dołkowej, z próbkami analizowanymi za pomocą cytometrii przepływowej przy użyciu wysokoprzepustowego łącznika do pobierania próbek (HTS). Komórki są karmione niegasnącym fluorescencyjnym dekstranem przez określony czas, przemywane przez zanurzenie w lodowatym buforze i odłączane za pomocą 5 mM azydku sodu, który również zatrzymuje egzocytozę. Komórki w każdym dołku są następnie analizowane za pomocą cytometrii przepływowej. Metoda ta została opracowana w celu przezwyciężenia ograniczeń powyższych metod i umożliwienia jednoczesnego porównania poboru płynów przez dużą liczbę odkształceń/warunków przy jednoczesnym zużyciu mniejszej ilości zasobów i zmniejszeniu zaangażowanego wysiłku.
Protokół
1. Przygotowanie komórek i materiałów
- Hoduj komórki na płytkach agarowych SM wraz z bakteriami takimi jak Klebsiella aerogenes lub w pożywce odżywczej takiej jak HL5, zgodnie z opisem23.
UWAGA: Hodowanie mutantów z nokautem, które wykazują defekt makropinocytozy, na bakteriach pomaga zapobiec akumulacji mutacji wtórnych, które mogłyby zwiększyć tempo makropinocytozy. Dla uzyskania optymalnych wyników należy utrzymać liczbę pasaży poniżej 4 po wysianiu komórek z zapasów. Mutanty powinny być przechowywane jako zamrożone zapasy jak najszybciej po izolacji. - Aby hodować komórki na płytkach agarowych SM, wyhoduj K. aerogenes do konfluencji w pożywce SM. Nanieś 200–300 μL bakterii na płytkę agarową SM i rozprowadź. Pobierz sterylną pętlą komórki (podczas przenoszenia z innej płytki bakteryjnej) i rozprowadź je przy jednej krawędzi płytki. Inkubuj w temperaturze 22 °C przez maksymalnie tydzień.
- Rozpuść dekstran z izotiocyjanianem tetrametylorodaminy (TRITC-) do stężenia 50 mg/mL w wodzie, przefiltruj przez filtry 0,22 μm do aplikacji o objętości 1 mL i przechowuj w temperaturze -20 °C. Aplikacje można przechowywać w nieskończoność.
UWAGA: 155 kDa to typowy rozmiar stosowany w tej metodzie, ponieważ można go tanio kupić w dużych ilościach, ale mniejsze dekstrany mierzą makropinocytozę równie skutecznie w Dictyostelium24. Alternatywą w przypadku zapotrzebowania na inne fluorofory są różne niegasnące dekstrany, takie jak cascade blue lub Alexa-647.
2. Przekształcanie pomiarów jakościowych na ilościowe (opcjonalnie)
- Wykonaj test pobierania płynu przy użyciu komórek w zawiesinie.
- Odwirować aksenicznie hodowane komórki przy 300 x g przez 3 min, odlać supernatant i resuspender w pożywce do stężenia 1x10⁷ komórek/mL. Dodać TRITC-dekstran do stężenia 0,5 mg/mL i mieszać przy 180 rpm w temperaturze 22 °C.
- Rozcieńczyć próbki o objętości 0,8 mL w 0,7 mL lodowatego buforu KK2 w czasie 0, 30, 60, 90 i 120 min. Przemyć raz w 1,5 mL lodowatego buforu KK2 23 w wirówce laboratoryjnej, resuspender do 1 mL w tym samym buforze i przechowywać na lodzie.
UWAGA: przemywanie natychmiastowe lub po zebraniu wszystkich próbek daje równoważne wyniki.
- Wyznaczyć objętość płynu zinternalizowanego przez komórki.
- Ustawić fluorymetr do pomiaru fluorescencji przy użyciu długości fali wzbudzenia 544 nm i długości fali emisji 574 nm z szparą 10 nm. Przygotować szereg rozcieńczeń TRITC-dekstranu i wykorzystać go do pomiaru fluorescencji dla określonych objętości dekstranu. Stworzyć krzywą kalibracyjną.
- Zmierzyć fluorescencję zinternalizowaną przez komórki z sekcji 2.1, wykorzystując 0,9 mL zawiesiny komórkowej. Obliczyć objętość płynu zinternalizowanego na jedną komórkę, korzystając z krzywej kalibracyjnej24.
- Rozcieńczyć pozostałe komórki z każdego punktu czasowego oddzielnie w 0,5 mL lodowatego buforu KK2. Przefiltrować przez sitko komórkowe 70 µm do polistyrenowych probówek do cytometrii przepływowej o objętości 5 mL. Ustawić cytometr przepływowy tak, aby komórki z każdego punktu czasowego były od siebie odróżnialne, i zarejestrować ich fluorescencję (patrz sekcje 3.4 i 3.5).
- Zmierzyć fluorescencję kulek kalibracyjnych w cytometrze przepływowym przy użyciu powyższych ustawień i zarejestrować wynik.
UWAGA: Służy to jako punkt odniesienia dla wszystkich przyszłych pomiarów fluorescencji w cytometrze przepływowym: przed ponownym użyciem należy przeanalizować kulki i dostosować ustawienia tak, aby miały tę samą fluorescencję. Pozwoli to uzyskać bardzo wąski, zdefiniowany pik. Ustawienie bramki wokół piku fluorescencji może ułatwić ten proces. - Powtórzyć procedurę trzykrotnie i nanieść na wykres dane fluorescencji komórek uzyskane w sekcjach 2.2 i 2.3 względem siebie. Wyznaczyć linię trendu i użyć równania do przekształcenia danych jakościowych z cytometrii przepływowej na jednostki ilościowe.
3. Pomiar pobierania płynów
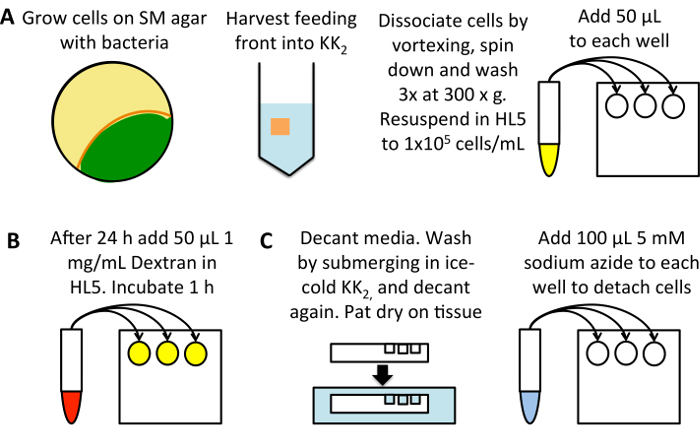
Rysunek 1: Schemat wysokoprzepustowego pomiaru makropinocytozy. (A) Hodować Dictyostelium na płytce SM z zasiającymi bakteriami K. aerogenes (żółte). Zebrać komórki z frontu żerowania (pomarańczowe), unikając komórek już rozwiniętych (zielone), do 25 mL buforu KK2. Wymieszać w wortexie w celu dysocjacji, odwirować przez 3 min w 300 x g, a następnie przemyć 3 razy w 50 mL buforu KK2, za każdym razem odlewając nadmiar cieczy. Resuspender do stężenia 1 x 10⁵ komórek/mL w pożywce wzrostowej HL5 i dodać 50 µL do trzech studzienek na próbkę w 96-dołkowej płytce z płaskim dnem. Inkubować w 22 °C przez 24 h. (B) Rozcieńczyć TRITC-dekstran do stężenia 1 mg/mL w pożywce wzrostowej HL5 z roztworu zapasowego o stężeniu 50 mg/mL. Dodać 50 µL do każdej próbki (z wyłączeniem studzienek kontrolnych dla poboru w czasie 0 min) i inkubować w 22 °C przez 1 h, po czym dodać dekstran do kontroli poboru w czasie 0 min. (C) Natychmiast odlać pożywkę, osuszyć płytkę ręcznikiem papierowym, aby usunąć nadmiar pożywki, i zanurzyć w kąpieli z lodowatego buforu KK2, wypełniając studzienki w celu przemycia. Odlać bufor i ponownie osuszyć. Dodać 100 µL 5 mM azotku sodu rozpuszczonego w KK2MC, aby odczepić komórki. Przenieść do cytometru przepływowego w celu pomiaru zinternalizowanej fluorescencji. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
- Przygotować 96-dołkową płytkę inkubacyjną z płaskim dnem (Rycina 1A). Użyć komórek hodowanych na bakteriach i przenieść je do medium HL5 (zawierającego 100 µg/mL dihydrostreptomycyny, 100 µg/mL ampicyliny i 50 µg/mL kanamycyny) 24 h przed analizą; pozwala to na zwiększenie poziomu makropinocytozy z niskich wartości obserwowanych w komórkach hodowanych na bakteriach24. Alternatywnie można rozcieńczyć komórki bezpośrednio z kultury aksenicznej, inkubując je przez 24 h przed analizą, aby zredukować błędy wynikające z rozcieńczania komórek o różnej gęstości.
- Zebrać komórki z frontu żerowania do 25 mL KK2 w probówce wirówkowej o pojemności 50 mL. Rozdzielić komórki poprzez wortexowanie i odwirować przy 300 x g przez 3 min. Odlać supernatant, resuspender osad i przemyć 3 razy przy 300 x g przez 3 min w 50 mL KK2, za każdym razem odlewając supernatant, aby usunąć bakterie.
- Określić gęstość komórek (używając hemacytometru lub innego systemu liczenia komórek) i rozcieńczyć w medium HL5 z antybiotykami do stężenia 1 x 10⁵ komórek/mL. Pipetować 50 μL do każdego dołka, wykorzystując trzy dołki dla każdego wariantu. Inkubować w temperaturze 22 °C przez 24 h. Należy pamiętać o przygotowaniu kontroli poboru w czasie 0 min.
UWAGA: Można zastosować alternatywne medium, np. SIH lub VL6.
- Obciążyć komórki dekstranem TRITC (Rycina 1B).
- Rozcieńczyć dekstran do stężenia 1 mg/mL w stosowanym medium (stężenie to można zwiększyć do 2,5–5 mg/mL przy ocenie komórek o bardzo niskim poborze). Dodać 50 μL do każdego dołka (uzyskując końcowe stężenie 0,5 mg/mL dekstranu TRITC) i inkubować płytkę w 22 °C przez 1 h, co pozwala na znaczną akumulację dekstranu, zanim rozpocznie się jego egzocytoza.
UWAGA: Użycie pipety wielokanałowej pozwala na szybsze wykonanie tego kroku, co redukuje błędy.
- Rozcieńczyć dekstran do stężenia 1 mg/mL w stosowanym medium (stężenie to można zwiększyć do 2,5–5 mg/mL przy ocenie komórek o bardzo niskim poborze). Dodać 50 μL do każdego dołka (uzyskując końcowe stężenie 0,5 mg/mL dekstranu TRITC) i inkubować płytkę w 22 °C przez 1 h, co pozwala na znaczną akumulację dekstranu, zanim rozpocznie się jego egzocytoza.
- Przygotować komórki do cytometrii przepływowej (Rycina 1C).
- Bezpośrednio przed myciem dodać 50 μL medium zawierającego dekstran do kontroli poboru w czasie 0 min.
- Odlać medium i osuszyć płytkę delikatnie za pomocą chusteczki. Przemyć, zanurzając płytkę w lodowatym KK2, a następnie odlać ciecz.
UWAGA: Niektóre szczepy z defektami adhezji mogą odkleić się podczas tego kroku, np. przy nokaucie obu homologów Taliny (talA-/talB-)25. Należy zachować ostrożność podczas pracy z liniami komórkowymi słabo przylegającymi i w razie potrzeby aspirować medium. - Dodać 100 μL lodowatego 5 mM azotku sodu rozpuszczonego w KK2MC (KK2 + 2 mM MgSO4 i 100 μM CaCl2).
OSTROŻNIE: Azotek sodu jest niezwykle toksyczny. Podczas pracy z proszkiem należy używać maski przeciwpyłowej i okularów ochronnych. Zawsze nosić rękawiczki i fartuch laboratoryjny. Unikać przegrzania i nie mieszać z kwasami.
UWAGA: Komórki szybko się odklejają, a egzocytoza zostaje zahamowana24. Można to sprawdzić pod mikroskopem.
- Zmierzyć pobór cieczy za pomocą cytometrii przepływowej
- W przypadku planowanej konwersji wartości względnych na bezwzględne, użyć kulek do standaryzacji ustawień cytometru przepływowego (patrz sekcja 2). Alternatywnie można użyć komórek obciążonych dekstranem zgodnie z sekcją 2, aby upewnić się, że rozproszenie przednie (forward scatter) i boczne (side scatter) są ustawione odpowiednio do izolacji komórek (Rycina 2A), sprawdzić, czy urządzenie nie jest zablokowane (Rycina 2B) i dostosować parametry do pomiaru fluorescencji wewnątrzkomórkowej (Rycina 2C).
- Podłączyć system próbkowania wysokoprzepustowego i włożyć płytkę. Ustalić protokół pomiaru fluorescencji (dla dekstranu TRITC należy użyć laseru żółto-zielonego do wzbudzenia i mierzyć w kanale 582 nm lub podobnym) dla objętości do 65 μL zawiesiny komórkowej i uruchomić pomiar.
- Analizować wyniki cytometrii przepływowej
- Wyznaczyć bramkę (gate) dla komórek, korzystając z rozproszenia przedniego i bocznego (Rycina 2A). Obliczyć medianę fluorescencji komórek za pomocą opcji statystyk. Ustawić te parametry na jednej próbce i zastosować do wszystkich pozostałych.
UWAGA: Profile rozproszenia przedniego i bocznego mogą różnić się między próbkami przy zastosowaniu różnych mutantów lub inhibitorów. - Wyznaczyć średnią z trzech dołków dla każdego wariantu i odjąć wartość kontroli poboru w czasie 0 min. Następnie przekształcić dane na wartości ilościowe, korzystając z równania określonego w sekcji 2, lub znormalizować je względem kontroli.
- Wyznaczyć bramkę (gate) dla komórek, korzystając z rozproszenia przedniego i bocznego (Rycina 2A). Obliczyć medianę fluorescencji komórek za pomocą opcji statystyk. Ustawić te parametry na jednej próbce i zastosować do wszystkich pozostałych.
4. Wykonywanie analiz kinetyki pobierania płynów
- Przygotować komórki zgodnie z sekcją 3, wykorzystując trzy dołki dla każdego punktu czasowego oraz szczepu/warunku.
- Sekwencyjnie dodać do poszczególnych dołków pożywkę z oznakowanym dekstranem. Typowy przebieg czasowy obejmuje pomiar poboru płynu w 0, 30, 60, 90, 120 i 180 min. Dodać pożywkę zawierającą dekstran do dołków dla punktu czasowego 180 min, a następnie po 60 min dodać ją do dołków dla punktu czasowego 120 min, i tak dalej (Rycina 3A).
- W 0 min dodać 50 μL pożywki zawierającej dekstran, a następnie natychmiast odlać płyn i wypłukać płytkę zgodnie z sekcją 3.3. Przeprowadzić analizę zgodnie z opisem w sekcji 3.5.
5. Krzywe zależności dawka-odpowiedź
- Przygotować komórki zgodnie z opisem w sekcji 3, wykorzystując trzy dołki dla każdego szczepu i warunku.
- Rozcieńczyć badany związek w medium zawierającym 1 mg/mL dekstranu, tak aby uzyskać podwójne pożądane maksymalne stężenie końcowe związku. Przygotować drugą probówkę zawierającą medium z dekstranem z taką samą proporcją rozpuszczalnika jak w pierwszej probówce. Wymieszać za pomocą wortexa.
- Przygotować szereg rozcieńczeń badanego związku w medium z dekstranem w objętości 200 μL na próbkę (Rysunek 4A). Wymieszać za pomocą wortexa. Dodać 50 μL medium do każdego dołka z próbką na 1 h.
- Przepłukać i przeanalizować zgodnie z opisem w sekcji 3.3 i kolejnych.
6. Fagocytoza i pobieranie przez błonę
- Aby zmierzyć wychwyt błonowy, przygotować komórki zgodnie z opisem w sekcji 3. Dodać 50 μL pożywki zawierającej 20 μM FM 1-43, aby uzyskać stężenie końcowe 10 μM. Po obciążeniu przemyć i przygotować komórki do cytometrii przepływowej zgodnie z sekcją 3.3. Pomiaru należy dokonać na kanale 585 nm lub podobnym, wykorzystując laser niebieski do wzbudzenia.
UWAGA: Ponieważ transport błonowy jest szybszy niż transport w fazie ciekłej, bardziej odpowiednim punktem czasowym jest 10 min niż 1 h26. Zamiast tego można zastosować alternatywne barwniki, które fluorescują tylko po wbudowaniu się w błonę. - Do pomiaru fagocytozy należy użyć kulek znakowanych fluorescencyjnie lub bakterii. Nie można używać fluorescencyjnych drożdży, ponieważ nie dają się one oddzielić od Dictyostelium na podstawie rozproszenia światła przedniego (FSC) i bocznego (SSC)24. Przygotować komórki zgodnie z opisem w sekcji 3 i przeprowadzić analizę zgodnie z opisem27.
- Aby zmierzyć fagocytozę kulek, dodać kulek znakowanych kolorem żółto-zielonym zgodnie z opisem w sekcji 3.2 do stężenia końcowego 5 x 10⁷ kulek/mL (dla 1,75 i 2 μm) lub 1 x 10⁸ kulek/mL (dla 1 i 1,5 μm) na 1 h, a następnie przemyć i przygotować do cytometrii przepływowej zgodnie z sekcją 3.3. Pomiaru należy dokonać na kanale 525 nm lub podobnym, wykorzystując laser niebieski do wzbudzenia.
Uwaga: Wyższe stężenia doprowadzą do odrywania się komórek. - Aby zmierzyć fagocytozę bakterii, dodać biocząsteczki Escherichia coli znakowane Texas Red zgodnie z opisem w sekcji 3.2 do stężenia 1 x 10⁸ bakterii/mL na 1 h, a następnie przemyć i przygotować do cytometrii przepływowej zgodnie z sekcją 3.3. Pomiaru należy dokonać na kanale 610 nm lub podobnym, wykorzystując laser żółto-zielony do wzbudzenia.
- Aby zmierzyć fagocytozę kulek, dodać kulek znakowanych kolorem żółto-zielonym zgodnie z opisem w sekcji 3.2 do stężenia końcowego 5 x 10⁷ kulek/mL (dla 1,75 i 2 μm) lub 1 x 10⁸ kulek/mL (dla 1 i 1,5 μm) na 1 h, a następnie przemyć i przygotować do cytometrii przepływowej zgodnie z sekcją 3.3. Pomiaru należy dokonać na kanale 525 nm lub podobnym, wykorzystując laser niebieski do wzbudzenia.
Wyniki
Po wykonaniu techniki, gdy komórki są załadowane dekstranem i gotowe do analizy (Rycina 1), należy upewnić się, że cytometr przepływowy nie jest zablokowany, a następnie dostosować profil rozproszenia przedniego/bocznego (forward scatter/side scatter) tak, aby odpowiadał komórkom przedstawionym na Rycynie 2A. W przypadku blokady urządzenia obraz będzie przypominał ten pokazany na Rycynie 2B; przed kontynuacją należy usunąć blokadę. Należy zweryfikować, czy parametry wykazują, że kontrolne komórki akseniczne mają wysoką fluorescencję zinternalizowanego dekstranu w dłuższych punktach czasowych i niską fluorescencję zinternalizowaną w krótszych (Rycina 2C).
Podczas poszukiwania różnic między mutantami prawdopodobne jest wystąpienie jednego z trzech fenotypów. Mutanty mogą wykazywać prawidłowe pobieranie cieczy, defekt częściowy lub całkowity brak zdolności do pobierania cieczy. Rycina 2D przedstawia szczep o prawidłowym pobieraniu cieczy, w tym przypadku standardowy szczep laboratoryjny Ax2, mutant z około 50% spadkiem pobierania cieczy (Ax2 rasG-14) oraz mutant z całkowitym brakiem pobierania cieczy (Ax3 gefB-28). Wyznacz średnią medianę pobierania cieczy (sekcja 3.5) i wykorzystaj ją do obliczenia objętości wchłoniętej cieczy (jak na Rycynie 3B) lub do porównania danych z próbką kontrolną (jak na Rycynie 4B oraz 4C).
Podczas przeprowadzania analizy kinetyki pobierania płynów, jak pokazano na Rysunku 3A, fluorescencja wewnątrzkomórkowa powinna wzrastać przez 60–90 min, po czym dekstran zaczyna być wydzielany drogą egzocytozy i osiągany jest poziom plateau (Rysunek 3B). Wykorzystanie 60 min jako standardowego punktu czasowego przy porównywaniu makropinocytozy w różnych mutantach/warunkach pozwala zatem na uzyskanie dobrego sygnału, bez jego utraty w wyniku egzocytozy. W przypadku mutantów, u których egzocytoza jest znacznie utrudniona, osiągnięcie plateau może zająć więcej czasu29.
Podczas traktowania komórek inhibitorami skutecznymi przeciwko makropinocytozie w Dictyostelium (zgodnie z układem przedstawionym na Rysunku 4A), ilość zinternalizowanego w ciągu 1 h dekstranu w większości przypadków spadnie niemal do zera przy wyższych stężeniach inhibitora (Rysunek 4B). Niektóre inhibitory mogą nie być jednak w 100% skuteczne, np. nocodazol hamuje jedynie do 50% poboru płynu poprzez makropinocytozę po gwałtownym dodaniu (Rysunek 4C). Jeśli inhibitory nie będą skuteczne, komórki zinternalizują podobną ilość dekstranu co grupa kontrolna i nie zostanie zaobserwowany spadek fluorescencji. Technika ta pozwala na bardzo szybkie przesiewanie szerokiego zakresu różnych inhibitorów i ich stężeń pod kątem wpływu na pobór płynu drogą makropinocytozy, co skraca czas poświęcony na optymalizację traktowania inhibitorami.
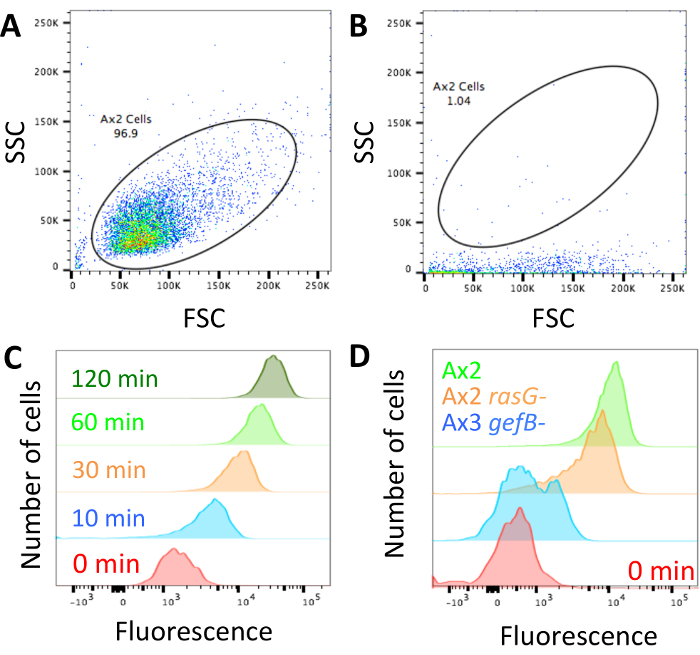
Rycina 2: Konfiguracja cytometru przepływowego i reprezentatywne dane. (A) Profile rozproszenia światła w przód (FSC) i w bok (SSC) komórek powinny być ustawione tak, aby można było je łatwo rozróżnić. Przedstawiono przykład wyglądu komórek Ax2. (B) W przypadku zablokowania cytometru przepływowego, jak w tym przykładzie, komórki wykazują bardzo niskie rozproszenie boczne. Laser nie będzie prawidłowo wzbudzać fluoroforów, dlatego przed kontynuacją należy odblokować urządzenie. Wszelkie dane uzyskane podczas blokady urządzenia powinny zostać odrzucone. (C) Fluorescencję należy ustawić tak, aby próbka z czasem pobierania 0 min miała niską fluorescencję, która wzrasta wraz z dłuższym czasem inkubacji komórek w medium fluorescencyjnym, co pokazano w tym przykładzie zaczerpniętym z Williams & Kay 201824. (D) Przykłady komórek inkubowanych z dekstranem TRITC przez 1 h z prawidłową makropinocytozą (Ax2, zielony), ograniczoną makropinocytozą (Ax2 rasG-, HM172614, pomarańczowy) oraz zniesioną makropinocytozą (Ax3 gefB-, HM177628, niebieski). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
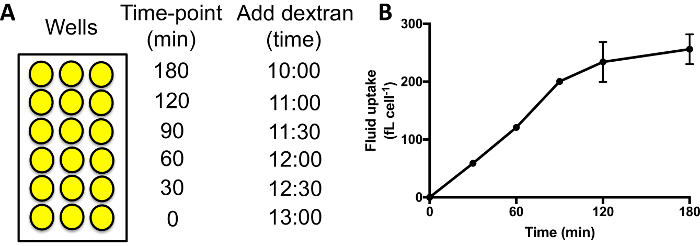
Rycina 3: Wykonywanie analizy kinetyki poboru płynu w płytkach 96-dołkowych. (A) Dekstran należy dodawać do każdego zestawu próbek sekwencyjnie, tak aby czas zakończenia inkubacji był taki sam. Następnie należy przemyć studzienki, ododerwać komórki i zmierzyć zinternalizowaną fluorescencję za pomocą cytometrii przepływowej. Przedstawiono tutaj przykładowe czasy dodawania dekstranu. (B) Kinetyka poboru płynu przez komórki Ax2 w płytkach 96-dołkowych. Dane pochodzą z pracy Williams & Kay 201824, słupki błędu przedstawiają błąd standardowy z trzech niezależnych eksperymentów. Aby zobaczyć powiększoną wersję tej ryciny, kliknij tutaj.
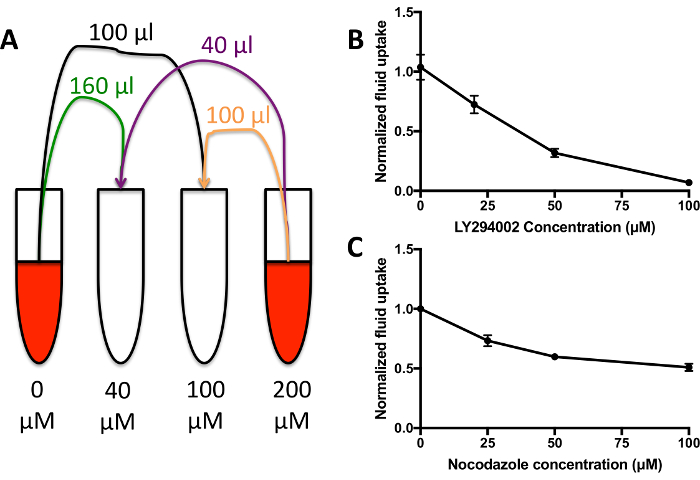
Rycina 4: Krzywe zależności odpowiedzi poboru płynu od dawki. (A) Należy dodać badany związek, w tym przypadku inhibitor PI3K LY294002, do pożywki HL5 zawierającej 1 mg/mL TRITC-dekstranu w podwójnym stężeniu w stosunku do pożądanego końcowego stężenia maksymalnego. Następnie wymieszać z pożywką wzrostową HL5 + 1 mg/mL dekstranu zawierającą sam nośnik w różnych proporcjach, aby przygotować serię rozcieńczeń o objętości 200 µL pożywki na każdą warunek. Dodać do dołków w sposób standardowy na 1 h przed przemyciem i pomiarem fluorescencji zinternalizowanej. (B) Krzywa zależności odpowiedzi poboru płynu od dawki dla komórek Ax2 inkubowanych w pożywce zawierającej LY294002 z punktu A. Adaptowano z Williams & Kay 201824. Pobór płynu został znormalizowany względem kontroli nieleczonej. Słupki błędów przedstawiają błąd standardowy trzech niezależnych eksperymentów. (C) Krzywa zależności odpowiedzi poboru płynu od dawki dla komórek Ax2 inkubowanych z nocodazolem. Adaptowano z Williams & Kay 201824. Pobór płynu został znormalizowany względem kontroli nieleczonej. Słupki błędów przedstawiają błąd standardowy trzech niezależnych eksperymentów. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Podczas gdy inne metody oceny wchłaniania płynów to niska przepustowość, mycie komórek in situ i użycie azydku sodu do odłączania komórek są krytycznymi etapami tej metody, które umożliwiają wysokoprzepustowy pomiar makropinocytozy, wychwytu błonowego lub fagocytozy przez Dictyostelium. Ponieważ komórki są przyczepione do powierzchni, a podłoże nie, można je pozostawić połączone, podczas gdy pożywka wokół nich jest najpierw odrzucana, a następnie zmieniana przez zanurzenie w buforze i ponownie odrzucana. Azydek sodu, który zubaża ATP komórkowe i depolaryzuje błonę30, jest następnie używany do odłączania komórek, a także zapobiega egzocytozie bez wpływu na żywotność komórek24.
Chociaż zastosowanie cytometrii przepływowej do pomiaru makropinocytozy za pomocą Dictyostelium daje bardzo dokładny pomiar wchłaniania płynów bardzo szybko, aby ustalić przyczynę, dla której dany szczep lub stan zmienił wchłanianie płynów, konieczne są dalsze badania przy użyciu mikroskopii24. Należy również zauważyć, że wcześniej opublikowane wyniki w niektórych przypadkach wykazały różnicę w wychwytywaniu płynów przez zmutowane szczepy wyhodowane na powierzchni (jak w tym przypadku) lub w zawiesinie wstrząsającej (jak w standardowym protokole)31. Stosowanie tej metody może oznaczać, że w rzadkich przypadkach pozorne defekty wchłaniania płynów zostaną pominięte. Dodatkowo przy pomiarze fagocytozy można stosować tylko niskie stężenia cząstek. Maksymalna szybkość fagocytozy, którą można określić za pomocą tej techniki, jest znacznie niższa od rzeczywistej maksymalnej, chociaż nadal możliwe jest zmierzenie istotnych różnic w fagocytozie między szczepami i warunkami24. Aby określić maksymalną szybkość fagocytozy, wychwyt musi być mierzony w zawiesinie wstrząsającej za pomocą alternatywnego protokołu27. Komórki, które mają fagocytozowane kulki, mają zwiększone rozproszenie boczne, więc należy to odpowiednio skorygować podczas ustawiania cytometru przepływowego.
Cytometria przepływowa może być stosowana do pomiaru wychwytu płynów w komórkach ssaków32, jednak problemem jest wyższy odsetek wychwytu fazy płynnej przez inne szlaki endocytarne niż obserwowany w Dictyostelium . Ponadto komórki są zwykle odłączane za pomocą trypsyny w temperaturze 37 °C, co pozwala na dalszą progresję endocytarną zinternalizowanego dekstranu. Lodowaty azydek sodu nie powoduje odrywania się makrofagów od powierzchni (Williams, niepublikowana obserwacja), co sprawia, że technika ta nie ma zastosowania do komórek ssaków bez dalszej optymalizacji.
Wysokoprzepustowy pomiar makropinocytozy może być wykorzystany do szybkich i tanich badań przesiewowych pod kątem wpływu inhibitorów, mutacji genetycznych lub knockdownu genów na komórki Dictyostelium . Mutanty powinny być zawsze porównywane tylko ze swoim bezpośrednim rodzicem. Jeśli czytelnik nie ma wcześniejszych preferencji dla szczepu Dictyostelium , szczepy nieakseniczne, takie jak DdB lub NC4, są bardziej "dzikie" niż akseniczne i mogą być manipulowane tak samo skutecznie jak szczepy akseniczne33. W przeciwnym razie szczepy Ax2 to szczepy akseniczne z najmniejszą liczbą duplikacji genomu34, podczas gdy wiele szczepów Ax4 to nokauty Talin A i należy ich unikać, jeśli to możliwe23. Większość wcześniej opublikowanych szczepów można zamówić w Dicty Stock Center35.
Technika ta daje większe niż wcześniej możliwości badawcze w zakresie wpływu różnych schorzeń, inhibitorów i mutacji na makropinocytozę przez Dictyostelium.
Oświadczenia
Autorzy nie mają do ujawnienia żadnych konfliktów interesów.
Podziękowania
Dziękujemy Brytyjskiej Radzie Badań Medycznych za podstawowe finansowanie (U105115237) dla RRK.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Cytometr przepływowy LSR_II | BD Biosciences-Other | Cytometry przepływowe mogą również pełnić tę rolę, np. LSRFortessa firmy BD | |
| TRITC-dekstran (155 kDa) | Sigma-Aldrich | T1287 | Inne niehartowane dektrans i inne rozmiary są również w porządku |
| HL5 medium | Formedium | HLGCFG | |
| 96-dołkowa płytka do hodowli tkankowych | Corning | 3596 | Sprawdzi się każda 96-dołkowa płytka poddana działaniu płaskodennej kultury tkankowej |
| Siarczan dihydrostreptomycyny | Sigma-Aldrich | PHR1517 | |
| Ampicylina sodowa | Formdium | AMP50 | |
| Monosiarczan kanamycyny | Sigma-Aldrich | 60615 | |
| Azydek sodu | VWR | 103694M | |
| Hydrat siarczanu magnezu | VWR | 25169.295 | |
| Chlorek wapnia dwuwodny | VWR | 1.02382.0250 | |
| Diwodoroffosforan potasu | VWR | 1.04877.1000 | |
| Wodorofosforan di-potasu | VWR | 1.05104.1000 | |
| Fluorymetr | Perkin-Elmer | LS 50 B | |
| FM1-43 | Thermofisher | T35356 | |
| Fluoresbrite YG-karboksyl mikrosfery 1,00 i mikro; m | Polysciences | 15702-10 | |
| Fluoresbrite YG-mikrosfery karboksylowe 1,50 i mikro; m | Polysciences | 09719-10 | |
| Fluoresbrite YG-mikrosfery karboksylowe 1,75 i mikro; m | Polysciences | 17687-5 | |
| Fluoresbrite YG-mikrosfery karboksylowe 2,00 i mikro; m | Polysciences | 09847-5 | |
| Texas Red E. coli bioparticles | Thermofisher | E2863 | |
| Flow-set Fluorospheres | Beckman Coulter | 6607007 | Koraliki kalibracyjne |
| SM agar | Formedium | SMACFG | |
| 0,22 i mikro; m filtr strzykawkowy | Elkay Laboratory Products | E25-PS22-50S | |
| Strzykawka 10 ml | Becton Dickinson | 302188 | |
| Rurki z polistyrenu okrągłodennego | Corning | 352058 | Użyj rurki, która będzie pasować do cytometru przepływowego. |
| 70 &mikro; m Sitko do komórek | Falcon | 352350 | |
| 50 ml probówka wirówkowa | Sarstedt | 62.547.004 | |
| Pipeta powtarzalna | Eppendorf | M4-SK | |
| 5 mL końcówki do pipet powtarzalnych | Eppendorf | 30089650 | |
| DMSO | Sigma-Aldrich | D2650-100ML | |
| LY294002 | Cayman Chemical Company | 70920 | |
| Nokodazol | Sigma-Aldrich | M1404-2MG |
Bibliografia
- Bloomfield, G., Kay, R. R. Uses and abuses of macropinocytosis. Journal of Cell Science. 129 (14), 2697-2705 (2016).
- Sallusto, F., Cella, M., Danieli, C., Lanzavecchia, A. Dendritic cells use macropinocytosis and the mannose receptor to concentrate macromolecules in the major histocompatibility complex class II compartment: downregulation by cytokines and bacterial products. Journal of Experimental Medicine. 182 (2), 389-400 (1995).
- Hardt, W. D., Chen, L. M., Schuebel, K. E., Bustelo, X. R., Galan, J. E. S. typhimurium encodes an activator of Rho GTPases that induces membrane ruffling and nuclear responses in host cells. Cell. 93 (5), 815-826 (1998).
- Commisso, C., et al. Macropinocytosis of protein is an amino acid supply route in Ras-transformed cells. Nature. 497 (7451), 633-637 (2013).
- Munch, C., O'Brien, J., Bertolotti, A. Prion-like propagation of mutant superoxide dismutase-1 misfolding in neuronal cells. Proceedings of the National Academy of Sciences of the United States of America. 108 (9), 3548-3553 (2011).
- Hacker, U., Albrecht, R., Maniak, M. Fluid-phase uptake by macropinocytosis in Dictyostelium. Journal of Cell Science. 110, 105-112 (1997).
- Dowrick, P., Kenworthy, P., McCann, B., Warn, R. Circular ruffle formation and closure lead to macropinocytosis in hepatocyte growth factor/scatter factor-treated cells. European Journal of Cell Biology. 61 (1), 44-53 (1993).
- Buczynski, G., et al. Inactivation of two Dictyostelium discoideum genes, DdPIK1 and DdPIK2, encoding proteins related to mammalian phosphatidylinositide 3-kinases, results in defects in endocytosis, lysosome to postlysosome transport, and actin cytoskeleton organization. Journal of Cell Biology. 136, 1271-1286 (1997).
- Araki, N., Johnson, M. T., Swanson, J. A. A role for phosphoinositide 3-kinase in the completion of macropinocytosis and phagocytosis by macrophages. Journal of Cell Biology. 135 (5), 1249-1260 (1996).
- Araki, N., Egami, Y., Watanabe, Y., Hatae, T. Phosphoinositide metabolism during membrane ruffling and macropinosome formation in EGF-stimulated A431 cells. Experimental Cell Research. 313 (7), 1496-1507 (2007).
- Clark, J., et al. Dictyostelium uses ether-linked inositol phospholipids for intracellular signalling. The EMBO Journal. 33 (19), 2188-2200 (2014).
- Hoeller, O., et al. Two distinct functions for PI3-kinases in macropinocytosis. Journal of Cell Science. 126, 4296-4307 (2013).
- Bar-Sagi, D., Feramisco, J. R. Induction of membrane ruffling and fluid-phase pinocytosis in quiescent fibroblasts by ras proteins. Science. 233 (4768), 1061-1068 (1986).
- Veltman, D. M., et al. A plasma membrane template for macropinocytic cups. Elife. 5, e20085(2016).
- West, M. A., Prescott, A. R., Eskelinen, E. L., Ridley, A. J., Watts, C. Rac is required for constitutive macropinocytosis by dendritic cells but does not control its downregulation. Current Biology. 10 (14), 839-848 (2000).
- West, M. A., Bretscher, M. S., Watts, C. Distinct endocytotic pathways in epidermal growth factor-stimulated human carcinoma A431 cells. Journal of Cell Biology. 109, 2731-2739 (1989).
- Canton, J., et al. Calcium-sensing receptors signal constitutive macropinocytosis and facilitate the uptake of NOD2 ligands in macrophages. Nature Communications. 7, 11284(2016).
- Commisso, C., Flinn, R. J., Bar-Sagi, D. Determining the macropinocytic index of cells through a quantitative image-based assay. Nature Protocols. 9 (1), 182-192 (2014).
- Clarke, M., Kohler, J., Heuser, J., Gerisch, G. Endosome fusion and microtubule-based dynamics in the early endocytic pathway of Dictyostelium. Traffic. 3, 791-800 (2002).
- Pacitto, R., Gaeta, I., Swanson, J. A., Yoshida, S. CXCL12-induced macropinocytosis modulates two distinct pathways to activate mTORC1 in macrophages. Journal of Leukocyte Biology. 101 (3), 683-692 (2017).
- Rivero, F., Maniak, M. Quantitative and microscopic methods for studying the endocytic pathway. Methods in Molecular Biology. , 423-438 (2006).
- Bacon, R. A., Cohen, C. J., Lewin, D. A., Mellman, I. Dictyostelium discoideum mutants with temperature-sensitive defects in endocytosis. Journal of Cell Biology. 127, 387-399 (1994).
- Basu, S., Fey, P., Jimenez-Morales, D., Dodson, R. J., Chisholm, R. L. dictyBase 2015: Expanding data and annotations in a new software environment. Genesis. 53 (8), 523-534 (2015).
- Williams, T. D., Kay, R. R. The physiological regulation of macropinocytosis during Dictyostelium growth and development. Journal of Cell Science. 131 (6), (2018).
- Tsujioka, M., et al. Overlapping functions of the two talin homologues in Dictyostelium. Eukaryotic Cell. 7 (5), 906-916 (2008).
- Aguado-Velasco, C., Bretscher, M. S. Circulation of the plasma membrane in Dictyostelium. Molecular Biology of the Cell. 10, 4419-4427 (1999).
- Sattler, N., Monroy, R., Soldati, T. Quantitative analysis of phagocytosis and phagosome maturation. Methods in Molecular Biology. 983, 383-402 (2013).
- Wilkins, A., Chubb, J., Insall, R. H. A novel Dictyostelium RasGEF is required for normal endocytosis, cell motility and multicellular development. Current Biology. 10, 1427-1437 (2000).
- Thomason, P. A., King, J. S., Insall, R. H. Mroh1, a lysosomal regulator localized by WASH-generated actin. Journal of Cell Science. 130 (10), 1785-1795 (2017).
- van Duijn, B., Vogelzang, S. A., Ypey, D. L., van der Molen, L. G., van Haastert, P. J. M. Normal chemotaxis in Dictyostelium discoideum cells with a depolarized plasma membrane potential. Journal of Cell Science. 95, 177-183 (1990).
- Novak, K. D., Peterson, M. D., Reedy, M. C., Titus, M. A. Dictyostelium myosin I double mutants exhibit conditional defects in pinocytosis. Journal of Cell Biology. 131, 1205-1221 (1995).
- Mercer, J., Helenius, A. Vaccinia virus uses macropinocytosis and apoptotic mimicry to enter host cells. Science. 320 (5875), 531-535 (2008).
- Paschke, P., et al. Rapid and efficient genetic engineering of both wild type and axenic strains of Dictyostelium discoideum. PLoS One. 13 (5), e0196809(2018).
- Bloomfield, G., Tanaka, Y., Skelton, J., Ivens, A., Kay, R. R. Widespread duplications in the genomes of laboratory stocks of Dictyostelium discoideum. Genome Biology. 9 (4), R75(2008).
- Fey, P., Dodson, R. J., Basu, S., Chisholm, R. L. One stop shop for everything Dictyostelium: dictyBase and the Dicty Stock Center in 2012. Methods in Molecular Biology. 983, 59-92 (2013).
Przedruki i uprawnienia
