Tutaj opisujemy izolację komórek kaletki pierwotnej kurcząt z kaletki Fabrycjusza, hodowlę i zakażenie komórek wirusem zakaźnej choroby kaletki oraz ilościowe określenie replikacji wirusa.
Artykuł metodologiczny
Model pierwotnej hodowli komórek kaletki maziowej kurczaków ex vivo do badania patogenezy wirusa zakaźnej choroby kaletki maziowej
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Wirus zakaźnej choroby kaletki maziowej (IBDV) jest birnawirusem o znaczeniu ekonomicznym dla przemysłu drobiarskiego. Wirus infekuje limfocyty B, powodując zachorowalność, śmiertelność i immunosupresję u zakażonych ptaków. W tym badaniu opisujemy izolację pierwotnych komórek kaletki maziowej kurczaka z kaletki Fabrycyusza, hodowlę i zakażenie komórek IBDV oraz ilościowe określenie replikacji wirusa. Dodanie ligandu CD40 kurczaka znacznie zwiększyło proliferację komórek czterokrotnie w ciągu sześciu dni hodowli i znacznie poprawiło żywotność komórek. Dwa szczepy IBDV, szczep przystosowany do hodowli komórkowych, D78 i bardzo zjadliwy szczep, UK661, dobrze się namnażały w hodowlach komórkowych ex vivo. Model ten będzie przydatny do określenia, w jaki sposób komórki reagują na zakażenie IBDV i pozwoli na zmniejszenie liczby zakażonych ptaków wykorzystywanych w badaniach patogenezy IBDV. Model może być również rozszerzony o inne wirusy i może być stosowany do różnych gatunków ptaków.
Wprowadzenie
Globalny przemysł drobiarski jest niezbędny, aby zapewnić wystarczającą ilość żywności dla rosnącej populacji ludzkiej. Immunosupresja stanowi jednak zagrożenie dla bezpieczeństwa żywnościowego i dobrostanu ptaków dotkniętych chorobą oraz stanowi kluczowe wyzwanie gospodarcze dla branży. Większość przypadków immunosupresji u kurcząt jest spowodowana zakażeniem wirusami immunosupresyjnymi, przy czym te najbardziej odpowiedzialne za osłabienie nabytej odporności mają tropizm dla limfocytów T i B1. U ptaków większość komórek B znajduje się w narządzie zwanym kaletką Fabrycjusza (BF). Limfocyty B są podatne na zakażenie kilkoma wirusami immunosupresyjnymi, w tym tymi, które powodują lizę, takimi jak IBDV i wirus choroby Mareka (MDV), oraz tymi, które powodują transformację, takimi jak wirus ptasiej białaczki (ALV) i wirus retikuloendoteliozy (REV).
Aby opracować lepsze strategie kontroli tych infekcji, konieczne jest scharakteryzowanie interakcji wirusów z komórkami B kurczaka. Jednakże, gdy limfocyty B są usuwane od ptaka, nie przeżywają dobrze w hodowli ex vivo2, co utrudnia przeprowadzenie dokładnej analizy interakcji IBDV z komórkami B kurczaka lub wczesnych zdarzeń po zakażeniu ALV lub REV. W związku z tym wiele interakcji komórka-wirus gospodarza zostało zbadanych in vivo3,4,5,6,7,8,9,10. Chociaż badania te mają charakter informacyjny, obejmują wykorzystanie zakażonych ptaków, które cierpią na choroby, które mogą być ciężkie.
Ligand CD40 to cząsteczka, która indukuje proliferację komórek B11. Po zidentyfikowaniu genu kodującego CD40L kurczaka (chCD40L) zmodyfikowano rozpuszczalne białko fuzyjne, które po dodaniu do pożywki hodowlanej indukowało proliferację pierwotnych komórek B kurczaka ex vivo12. W 2015 r. stwierdzono, że komórki B hodowane w ten sposób wspierają replikację MDV2, a w 2017 r. my i inni odkryliśmy, że pierwotne komórki kaletki stymulowane chCD40L mogą być wykorzystane jako model do badania replikacji IBDV13,14. W tym miejscu opisujemy izolację i hodowlę pierwotnych komórek kaletki maziowej kurczaka, zakażenie komórek IBDV oraz ilościowe określenie replikacji wirusa. Chociaż opisujemy tę metodę w kontekście BF, można ją zastosować do izolowania i hodowli komórek z różnych narządów limfatycznych.
Protokół
Wszystkie procedury ze zwierzętami muszą być wcześniej etycznie zatwierdzone. W naszej placówce wszystkie procedury są wykonywane zgodnie z brytyjską ustawą o zwierzętach (procedury naukowe) z 1986 r. na podstawie licencji Home Office Establishment, Personal i Project License, po zatwierdzeniu przez wewnętrzną Komisję ds. Dobrostanu Zwierząt i Oceny Etycznej (AWERB).
1. Przygotowanie chCD40L
- Hodowla komórek HEK 293-msCD8-CD40L, które stabilnie wyrażają rozpuszczalny konstrukt chCD40L w 1x pożywce Roswell Park Memorial Institute (RPMI) uzupełnionej 10% inaktywowaną termicznie (hi) płodową surowicą cielęcą (FCS) i 1 μg/ml puromycyny w temperaturze 37 °C w atmosferze zawierającej 5% CO2,
UWAGA: Ogniwa te są dostępne w Instytucie Pirbright po podpisaniu odpowiedniej umowy o transferze materiałów. - Podziel komórki w gęstości 1:5, gdy się zlewają. Zebrać supernatant (zawierający rozpuszczalny konstrukt chCD40L) za każdym razem, gdy komórki są dzielone, odwirować go przy 400 x g przez 5 minut w celu usunięcia resztek komórkowych i przechowywać w temperaturze 4 °C.
- Po zebraniu 500 ml supernatantu zebrać płyn i przefiltrować go przez filtr 0,2 μm.
- Zagęścić supernatant za pomocą odśrodkowych koncentratorów białek o masie cząsteczkowej 10 K zgodnie z instrukcjami producenta. Wyekstrahuj skoncentrowany supernatant z każdej kolumny, połącz go razem i wysterylizuj filtrująco-sterylizując, przepuszczając go przez filtr strzykawkowy 0,22 μm.
- Określić końcowe stężenie, które ma być użyte w eksperymentach, poprzez seryjne rozcieńczanie roztworu chCD40L w 1x zmodyfikowanym pożywce Dulbecco firmy Iscove (IMDM) (opisanym w kroku 2.4) i hodowlę pierwotnych komórek kaletki w obecności rozcieńczeń. Określ liczbę i procentową żywotność komórek codziennie przez okres do tygodnia.
UWAGA: Najniższym stężeniem, w przypadku którego proliferacja i żywotność komórek są odpowiednie, jest stężenie, które należy zastosować w teście. Prawdopodobnie będzie to od 1:20 do 1:50.
2. Przygotowanie roztworów do izolacji komórek kaletki maziowej u kurcząt
- Przygotuj 1x zbilansowany roztwór soli Hanksa (HBBS) z wapniem (Ca), dodając 10 ml 10x HBBS z Ca do 90 ml sterylnegoH2Oi 0,47 μl 7,5%NaHCO3.
- Przygotować roztwór podstawowy kolagenazy D o stężeniu 8 mg/ml w 1x HBBS z Ca. Przefiltrować-wysterylizować roztwór przez filtr 0,2 μM.
UWAGA: Zaleca się przygotowanie 5 ml porcji i zamrożenie ich w temperaturze -20 °C. - Przygotuj 1x pożywkę RPMI uzupełnioną 5% hi FCS. Przechowuj nośnik w temperaturze 4 °C.
- Przygotuj 1x 500 ml IMDM uzupełnionego 8% hi FCS, 2% hi surowicy kurczaka, 50 mM β-merkaptoetanolu, 50 μl seleninu insuliny-transferyny-sodu i 1% penicyliny/streptomycyny. Przechowuj nośniki w temperaturze 4 °C.
UWAGA: Przygotuj wszystkie wyżej wymienione rozwiązania z wyprzedzeniem. - Przygotuj 1x HBBS z Ca. Przechowuj roztwór na lodzie.
- Przygotować 1x HBBS bez Ca, dodając 10 ml 10x HBBS bez Ca do 90 ml sterylnegoH2O, 0,47 μL 7,5%NaHCO3 i EDTA w końcowym stężeniu 10 mM. Przechowywać roztwór na lodzie.
- Przygotuj 1x roztwór kolagenazy D, dodając 5 ml roztworu podstawowego kolagenazy D do 13 ml HBBS z Ca, co daje w sumie 18 ml. Przechowywać roztwór na ice.
UWAGA: Przygotuj roztwory wymienione w krokach 2.5–2.7 w dniu eksperymentu.
3. Usunięcie Bursy Fabrycjusza (BF)
- Kurczęta należy hodować i wylęgać w odpowiednim, zatwierdzonym obiekcie i humanitarnie zabijać je w wieku 2–3 tygodni.
UWAGA: Do uboju należy stosować metody zatwierdzone przez instytut. - Zbierz BF od każdego kurczaka przy użyciu technik aseptycznych.
UWAGA: Korzystaj z protokołów obowiązujących w instytucji.- Umieścić tuszę w pozycji leżącej grzbietowej i wysterylizować skórę i pióra pokrywające brzuch i klatkę piersiową roztworem 70% etanolu rozcieńczonym w wodzie.
- Wykonaj brzuszne nacięcie linii środkowej w dolnej części brzucha za pomocą wysterylizowanego skalpela lub nożyczek.
- Zlokalizuj kaletkę Fabrycjusza, która jest połączona z ogonową częścią okrężnicy, czaszkową z kloaką.
- Za pomocą wysterylizowanych kleszczy i nożyczek odetnij kaletkę Fabrycjusza od okrężnicy. Uważaj, aby nie przebić jelita.
- Umieść narząd w zimnym PBS i przenieś go do laboratorium na lodzie.
UWAGA: Komórki pierwotne należy wyizolować jak najszybciej po pobraniu narządów.
4. Izolacja komórek kaletki maziowej u kurcząt
- Pracując w komorze bezpieczeństwa mikrobiologicznego, umyj BF co najmniej 3 razy w 30 ml zimnego PBS.
- Przenieś tkankę na szalkę Petriego (92 mm średnicy, 21 mm wysokości) i dodaj 5 ml 1x roztworu kolagenazy D.
- Za pomocą sterylnych nożyczek lub ostrza skalpela pokrój BF na kawałki o średnicy mniejszej niż 5 mm.
- Inkubować tkankę w temperaturze 37 °C, okresowo delikatnie mieszając przez 30 min.
UWAGA: Roztwór kolagenazy zacznie trawić tkankę. - Za pomocą sterylnej pipety Pasteura kilkakrotnie odsysaj mieszaninę, aby pobudzić rozpad tkanki. W razie potrzeby pokrój tkankę na mniejsze kawałki.
- Dodać kolejne 5 ml 1x roztworu kolagenazy D do tkanki i inkubować w temperaturze 37 °C z okresowym delikatnym mieszaniem przez kolejne 30 minut.
- Powtarzać kroki 4.6 i 4.7 aż do całkowitego strawienia tkanki.
UWAGA: Będą małe granulki, które nie rozpuszczają się dalej. - Przepuścić zawiesinę komórkową przez sitko o wielkości 100 μm do 20 ml 1x HBBS bez Ca.
- Odwirować zawiesinę komórek o sile 400 x g przez 5 min.
- Wyrzuć supernatant i ponownie zawieś osad w 10 ml 1x RPMI z 5% FCS.
- Albo nałożyć 10 ml zawiesiny komórek na 5 ml pożywki o gradiencie gęstości zawierającej polisarozę i ditrizoinian sodu, albo nałożyć 5 ml pożywki o gradiencie gęstości pod zawiesinę komórek o objętości 10 ml. Upewnij się, że istnieje między nimi przejrzysty interfejs.
- Odwirować nakładkę przy 900 x g przez 20 minut w temperaturze 4 °C. Opuścić lub usunąć przerwę wirówki.
UWAGA: Komórki powinny tworzyć pasmo na granicy między nośnikiem komórkowym a nośnikiem gradientu gęstości. - Za pomocą sterylnej pipety Pasteura usuń komórki i umieść je w zimnym PBS. Umyj komórki 3x, odwirowując je przy 400 x g przez 5 minut i ponownie zawieszając w zimnym PBS.
5. Hodowla pierwotnych komórek kaletki maziowej kurcząt
- Odwirować zawiesinę komórek o sile 400 x g przez 5 minut i ponownie zawiesić je w 1x pełnym IMDM.
- Pobrać podwielokrotność zawiesiny komórek, dodać ją do roztworu błękitu trypanowego i policzyć liczbę żywotnych komórek, które wykluczają błękit trypanowy. Określ liczbę komórek i procentową żywotność.
- Odwirować zawiesinę komórkową o stężeniu 400 x g przez 5 minut i ponownie zawiesić w pełnym IMDM uzupełnionym rozcieńczeniem CD40L kurczaka w stosunku 1:20 o gęstości 1 x 10,7 komórek/ml. Miareczkować stężony supernatant zawierający chCD40L w celu określenia optymalnego rozcieńczenia, które prawdopodobnie mieści się w zakresie od 1:10 do 1:50.
- Hodować komórki na płytkach 96- lub 24-dołkowych w temperaturze 37 °C przez 48–72 godzin. Płytki 96-dołkowe z dnem w kształcie litery U są lepsze niż płytki płaskodenne.
UWAGA: Komórki można również hodować w temperaturze 40 °C
6. Zakażenie komórek kaletki pierwotnej kurcząt IBDV
- 48–72 godziny po izolacji rozmrozić porcję wirusa, zagłuszyć próbkę i przechowywać ją na lodzie.
- Zawiesić pierwotne komórki kaletki, pobrać 10 μl podwielokrotności zawiesiny komórek, dodać ją do 10 μl roztworu błękitu trypanowego i określić liczbę komórek oraz procentową żywotność.
- Rozcieńczyć wirusa w 1x pełnym IMDM do odpowiedniej wielokrotności infekcji (MOI), aby wirus stał się inokulum i wir.
- Odwirować zawiesinę komórek o sile 400 x g przez 5 min.
- Usunąć supernatant i ponownie zawiesić komórki w inokulum wirusa.
- Inkubować zawiesinę komórkową w temperaturze 37 °C przez 1 godzinę z okresowym mieszaniem.
- Odwirować zawiesinę komórkową przy 400 x g przez 5 minut, usunąć inokulum wirusa i umyć komórki w 1x kompletnej pożywce IMDM.
- Odwirować zawiesinę komórkową o stężeniu 400 x g przez 5 minut, usunąć supernatant i ponownie zawiesić komórki w kompletnej pożywce IMDM uzupełnionej CD40L kurczaka o gęstości 1 x 10,7 komórek na ml.
- Hodować komórki na płytkach 96- lub 24-dołkowych w temperaturze 37 °C.
UWAGA: Komórki można również hodować w temperaturze 40 °C
7. Kwantyfikacja replikacji IBDV w pierwotnych komórkach torebki maziowej kurcząt
- W pożądanym punkcie czasowym po zakażeniu ponownie zawiesić komórki, przenieść je do odpowiedniej probówki, odwirować je przy 400 x g przez 5 minut i zebrać supernatant do miareczkowania wirusa za pomocą testu płytkiowego lub testu TCID50 zgodnie z metodą Reeda-Muencha15.
- Umyć komórki w 1 ml PBS i przygotować je do barwienia immunologicznego przeciwciałem specyficznym dla IBDV lub wyekstrahować RNA za pomocą odpowiedniego zestawu (zgodnie z instrukcjami producenta) i przeprowadzić ilościową reakcję łańcuchową polimerazy z odwrotną transkrypcją (RT-qPCR) przy użyciu starterów specyficznych dla genu IBDV (Forward, GAGGTGGCCGACCTCAACT; Rewers, GCCCGGATTATGTCTTTGAAG). Pozorowane zakażone hodowle komórkowe powinny być stosowane jako kontrola.
Wyniki
Pierwotne komórki bursy kurczaka mogą być hodowane w obecności CD40L kurczaka
Gdy pierwotne komórki kaleki kurczaka hodowano w obecności rozpuszczalnego chCD40L, liczba komórek wzrosła czterokrotnie, z 9,02 x 10⁵ do 3,63 x 10⁶ na mL w ciągu 6 dni, w przeciwieństwie do warunków bez jego dodatku (p <0,05) (Rysunek 1A). Żywotność komórek również uległa znacznemu poprawieniu, na przykład z 25% w 3. dniu po rozpoczęciu hodowli w obecności chCD40L do 48% w obecności chCD40L (p <0,05) (Rysunek 1B)13.
Pierwotne komórki kalek kurczęt mogą wspierać replikację zarówno szczepów IBDV adaptowanych do hodowli komórkowych, jak i szczepów bardzo zjadliwych
Kultury komórek zainfekowanych oraz kontrolne (mock-infected) utrwalono 18 h po infekcji, oznakowano przeciwciałem monoklonalnym przeciwko IBDV VP2 oraz przeciwciałem wtórnym sprzężonym z Alexa Fluor 488, a następnie poddano barwieniu kontrastowemu DAPI. W zainfekowanych komórkach stwierdzono obecność zielonej fluorescencji wokół jądra (Rycyna 2A), co było zgodne z obecnością IBDV w cytoplazmie. Zjawisko to zaobserwowano dla dwóch szczepów IBDV: szczepu adaptowanego do hodowli komórkowej, D78, oraz szczepu bardzo zjadliwego, UK661 (Rycyna 2A). W odstępach 5, 18, 24 i 48 h po infekcji RNA wyekstrahowano z zainfekowanych kultur i poddano analizie RT-qPCR z użyciem starterów specyficznych dla konserwatywnego regionu genu IBDV VP4. Ekspresję VP4 najpierw znormalizowano względem genu referencyjnego TBP, a następnie wyrażono jako krotność zmiany (fold change) w stosunku do próbek kontrolnych w analizie ΔΔCt. Ekspresja IBDV VP4 wzrosła do 16 603 kopii w 48 h po infekcji szczepem D78 oraz do 38 632 kopii w 48 h po infekcji szczepem UK661. Wspólnie dane te wykazują, że pierwotne komórki kalek kurzych mogą wspierać replikację adaptowanych do hodowli komórkowej oraz bardzo zjadliwych szczepów IBDV13.
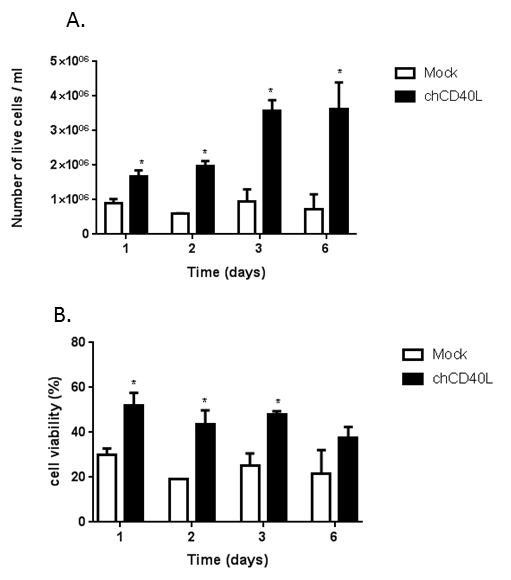
Rysunek 1: Pierwotne komórki kalek kurzych mogą być hodowane w obecności kurzego CD40L. Pierwotne komórki kalek kurczaka hodowano w obecności lub przy braku chCD40L (odpowiednio słupki czarne i białe).A) liczba żywych komórek oraz (B) procent żywych komórek określono w zaznaczonych punktach czasowych po infekcji. Przedstawione dane są reprezentatywne dla co najmniej trzech powtórzeń eksperymentu, słupki błędów reprezentują odchylenie standardowe średniej, a istotność statystyczną określono za pomocą parowego testu t Studenta t-test w każdym punkcie czasowym, * p <0,05. Rysunek zmodyfikowano za zgodą Dulwich i inni13.
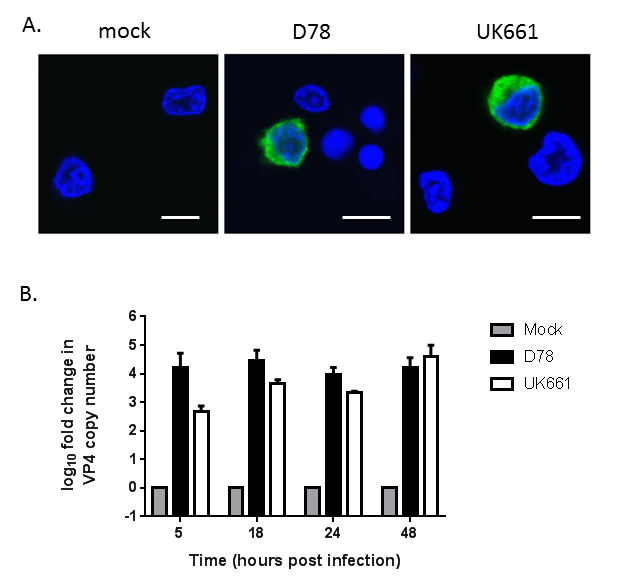
Rysunek 2: Pierwotne komórki kaleczkowe kurcząt mogą wspierać replikację zarówno szczepów IBDV adaptowanych do hodowli komórkowych, jak i szczepów wysoce zjadliwych. (A) Pierwotne komórki kaleczkowe kurcząt poddano infekcji pozorowanej (mock) lub zainfekowano szczepem D78 lub UK661, a następnie próbkę z każdej hodowli utrwalono, znakowano i obrazowano: IBDV VP2, kolor zielony; jądra komórkowe, kolor niebieski. Pasek skali = 7 µm. (B) RNA wyekstrahowano w określonych punktach czasowych po infekcji, poddano odwrotnej transkrypcji, a następnie za pomocą ilościowej PCR amplifikowano konserwatywny region genu VP4 IBDV. Log10-krotna zmiana liczby kopii VP4 została znormalizowana względem genu konstytutywnego TBP i wyrażona w stosunku do próbek z infekcją pozorowaną zgodnie z metodą 2-ΔΔCT. Przedstawione dane są reprezentatywne dla co najmniej trzech powtórzeń eksperymentu, a słupki błędów reprezentują odchylenie standardowe średniej. Rysunek został zmodyfikowany za zgodą Dulwich et al.13.
Dyskusja
W tym badaniu opisujemy udaną hodowlę pierwotnych komórek kaletki kurzej ex vivo w obecności rozpuszczalnego chCD40L i wykazujemy, że komórki te mogą wspierać replikację atenuowanego szczepu i bardzo zjadliwego szczepu IBDV. Ten model ex vivo może być wykorzystany do określenia, w jaki sposób komórki reagują na zakażenie IBDV13, co ma wyraźną przewagę nad badaniami in vivo i in vitro .
Podczas zbierania BF bardzo ważne jest, aby nie przekłuwać jelita, aby uniknąć zanieczyszczenia bakteryjnego izolowanych komórek kaletki. Ponadto ważne jest, aby wyizolować komórki pierwotne tak szybko, jak to możliwe po pobraniu narządów, aby ograniczyć śmierć komórki. Konieczność użycia chCD40L jest ograniczeniem techniki; jednak prace przeprowadzone przez Soubies i wsp. pokazują, że zastosowanie 12-mirystynianu 13-octanu forbolu (PMA) w celu przedłużenia żywotności komórek kaletki maziowej zamiast chCD40L14 może umożliwić przyjęcie modelu przez większą liczbę laboratoriów. Opisany powyżej protokół określa optymalne stężenie chCD40L empirycznie, poprzez hodowlę pierwotnych komórek B w seryjnie rozcieńczonych stężeniach cząsteczki i obserwację proliferacji i żywotności komórek. Jedną z potencjalnych modyfikacji protokołu może być oczyszczenie cząsteczki chCD40L i dodanie określonego stężenia do pożywki do hodowli komórkowej, aby uniknąć zmienności między partiami.
Badania in vivo wykazały, że po zakażeniu IBDV następuje wzrost ekspresji genów zaangażowanych w prozapalne odpowiedzi cytokinowe, odpowiedzi IFN typu I i apoptozę w BF 5,9,10. Jednak po zakażeniu następuje napływ komórek zapalnych i efektorowych limfocytów T do BF, które różnią się ekspresją genów w porównaniu z populacją zakażonych komórek B9. W związku z tym trudno jest zinterpretować, w jaki sposób zakażone komórki reagują na IBDV. Aby temu zaradzić, niektóre grupy badawcze scharakteryzowały odpowiedź transkrypcyjną komórek zakażonych IBDV w hodowli 16,17,18,19,20. Te badania in vitro mają tę zaletę, że po zakażeniu mają dobrze zdefiniowane MOI i punkty czasowe. Jednak badania in vitro zazwyczaj charakteryzowano w komórkach fibroblastów 16,17,20 lub komórkach dendrytycznych18. Chociaż dostarcza pewnych informacji na temat interakcji komórka gospodarza z IBDV, obecnie uważa się, że zakażenie komórek B ma kluczowe znaczenie dla patogenezy IBDV, a zatem nie można nadinterpretować znaczenia danych. Przed naszym modelem hodowli komórek kaletki ex vivo tylko jedno badanie charakteryzowało odpowiedź komórkową komórek B na zakażenie IBDV19; jednak w tym badaniu wykorzystano unieśmiertelnioną linię komórek B, która została przekształcona z powodu zakażenia ALV, co ograniczało wnioski, które można było wyciągnąć. W przeciwieństwie do tego, opisany tutaj model ex vivo zakażenia IBDV pozwala naukowcom zachować zalety badań in vitro, takie jak zdefiniowane MOI i punkty czasowe, jednocześnie badając interakcje wirusa z odpowiednią komórką gospodarza. Ponieważ pierwotne komórki kaletki są uzyskiwane z niezakażonej tkanki BF, nie ma komórek zapalnych ani limfocytów T, a my wykazaliśmy za pomocą cytometrii przepływowej (w standardowych warunkach), że po stymulacji chCD40L 97% populacji komórek jest dodatnich dla markera komórek B Bu-1 (dane nie pokazane). Biorąc pod uwagę, że 3% komórek jest Bu-1 ujemnych, interesujące będzie ustalenie, czy komórki te zostaną zakażone IBDV i zbadanie ich ekspresji genów i udziału w patogenezie.
Przewidujemy, że model hodowli pierwotnej komórek kaletki maziowej ex vivo kurczaków może zostać rozszerzony w celu zbadania interakcji komórka-wirus gospodarza innych wirusów tropikalnych komórek B infekujących kurczęta, takich jak ALV lub REV, a także może zostać rozszerzony na inne gatunki ptaków (np. kaczki lub indyki). Możliwość hodowli pierwotnych komórek kaletki kaletki ex vivo otwiera również możliwość badania aspektów patogenezy i immunosupresji wywoływanej przez te wirusy bez konieczności zakażania ptaków. Ponieważ badania in vivo powodują znaczną zachorowalność, będzie to miało znaczący wpływ na zastąpienie, udoskonalenie i ograniczenie wykorzystywania zwierząt w badaniach.
Podsumowując, opisany tutaj model hodowli pierwotnej komórek kaletki maziowej ex vivo może potencjalnie poszerzyć wiedzę na temat interakcji wirusów tropikalnych ptasich komórek B z komórkami gospodarza, jednocześnie zmniejszając liczbę ptaków wykorzystywanych w badaniach nad infekcjami in vivo . Techniki te mogą być stosowane do wielu narządów limfatycznych, wielu wirusów i potencjalnie wielu gatunków ptaków, co czyni je atrakcyjnym modelem, który może przyczynić się do rozwoju wirusologii i immunologii ptaków.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Autorzy chcieliby podziękować zespołowi ds. Opieki nad zwierzętami w Instytucie Pirbright za ich ekspertyzę w zakresie wylęgu, hodowli i uboju ptaków oraz ekspertyzę Caroline Holt w aseptycznym usuwaniu kaletki Fabriciusa. A.B. jest finansowany przez Radę ds. Badań Biotechnologii i Nauk Biologicznych (BBSRC) poprzez grant BBS/E/I/00001845, K.D. jest finansowany przez BBSRC poprzez stypendium BBS/E/I/00002115 i AA jest finansowane przez National Centre for the Replacement, Refinement & Reduction of Animals in Research (NC3Rs) poprzez grant NC/R001138/1.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| RPMI-1640 Średni | Merck | R8758-500ML | |
| FBS | gibco firmy Life Technologies | 10099-141 | inaktywacja termiczna w temperaturze 56 & stopni; C przez 1 h |
| Dwuchlorowodorek puromycyny | Thermo Fisher Scientific | A1113802 | |
| Nalgene Szybkoprzepływowy sterylny filtr jednorazowy z membraną PES | Thermo Fisher Scientific | 168-0045 | |
| Koncentrator białka Pierce PES (10K MWCO, 20 mL) | Thermo Fisher Scientific | 88528 | |
| 0,22 &mikro; m Filtr strzykawkowy Millex-GP Merck | F7648 | ||
| Zrównoważony roztwór soli Hanksa (HBBS) + CaCl2 + MgCl2 | gibco firmy Life Technologies | 14060-040 | |
| Zrównoważony roztwór soli Hanksa (HBBS) - CaCl22 - MgCl2 | gibco firmy Life Technologies | 14180-046 | |
| Etylenodiaminotetraoctowy roztwór kwasu (EDTA) | Merck | 03690-100ML | |
| Zmodyfikowany Ilbecco's Medium (IMDM) firmy Iscove (1 X) + GlutaMAX | gibco firmy Life Technologies | 31980-030 | |
| Surowica kurczaka | Merck | C5405-100ML | |
| 2-merkaptoetanol 50 mM | gibco firmy Life Technologies | 31350-010 | |
| Insulina-transferyna-sód-selenin | firmy Life Technologie | 41400-045 | |
| Collagenase D | Roche Diagnostics GmbH | 11088882001 | |
| 100 µ m Sitko do komórek | Corning | 431752 | |
| Histopaque-1083 | Merck | 10831-100ML | |
| Roztwór błękitu trypanowego | Merck | T8154-20ML | |
| Nunc96 Well-Polystyrenowe płytki mikrodołkowe z okrągłym dnem | Thermo Fisher Scientific | 163320 | |
| Falcon 24-dołkowa przezroczysta, wielodołkowa płytka do hodowli komórkowej z płaskim dnem i powłoką TC, z pokrywką, sterylna | Corning | ||
| Zestaw Rneasy Mini | Qiagen | 74104 |
Bibliografia
- Hoerr, F. J. Clinical aspects of immunosuppression in poultry. Avian Diseases. 54 (1), 2-15 (2010).
- Schermuly, J., et al. In vitro model for lytic replication, latency, and transformation of an oncogenic alphaherpesvirus. Proceedings of the National Academy of Sciences of the United States of America. 112 (23), 7279-7284 (2015).
- Farhanah, M. I., et al. Bursal immunopathology responses of specific-pathogen-free chickens and red jungle fowl infected with very virulent infectious bursal disease virus. Archives of Virology. , (2018).
- Farhanah, M. I., et al. Bursal transcriptome profiling of different inbred chicken lines reveals key differentially expressed genes at 3 days post-infection with very virulent infectious bursal disease virus. Journal of General Virology. 99 (1), 21-35 (2018).
- Guo, X., et al. Differential expression of the Toll-like receptor pathway and related genes of chicken bursa after experimental infection with infectious bursa disease virus. Archives of Virology. 157 (11), 2189-2199 (2012).
- He, X., et al. Differential Regulation of chTLR3 by Infectious Bursal Disease Viruses with Different Virulence. In Vitro and In Vivo. Viral Immunology. 30 (7), 490-499 (2017).
- Ou, C., et al. Transcription profiles of the responses of chicken bursae of Fabricius to IBDV in different timing phases. Virology Journal. 14 (1), 93(2017).
- Rasoli, M., et al. Differential modulation of immune response and cytokine profiles in the bursae and spleen of chickens infected with very virulent infectious bursal disease virus. BMC Veterinary Research. 11, 75(2015).
- Ruby, T., et al. Transcriptional profiling reveals a possible role for the timing of the inflammatory response in determining susceptibility to a viral infection. Journal of Virology. 80 (18), 9207-9216 (2006).
- Smith, J., et al. Analysis of the early immune response to infection by infectious bursal disease virus in chickens differing in their resistance to the disease. Journal of Virology. 89 (5), 2469-2482 (2015).
- Tregaskes, C. A., et al. Conservation of biological properties of the CD40 ligand, CD154 in a non-mammalian vertebrate. Developmental & Comparative Immunology. 29 (4), 361-374 (2005).
- Kothlow, S., et al. CD40 ligand supports the long-term maintenance and differentiation of chicken B cells in culture. Developmental & Comparative Immunology. 32 (9), 1015-1026 (2008).
- Dulwich, K. L., et al. Differential gene expression in chicken primary B cells infected ex vivo with attenuated and very virulent strains of infectious bursal disease virus (IBDV). Journal of General Virology. 98 (12), 2918-2930 (2017).
- Soubies, S. M., et al. Propagation and titration of infectious bursal disease virus, including non-cell-culture-adapted strains, using ex vivo-stimulated chicken bursal cells. Avian Pathology. 47 (2), 179-188 (2018).
- Reed, L., Muench, H. A simple method of estimating fifty percent endpoints. American Journal of Hygiene. 27, 494-497 (1938).
- Hui, R. K., Leung, F. C. Differential Expression Profile of Chicken Embryo Fibroblast DF-1 Cells Infected with Cell-Adapted Infectious Bursal Disease Virus. PLoS One. 10 (6), e0111771(2015).
- Li, Y. P., et al. Transcriptional profiles of chicken embryo cell cultures following infection with infectious bursal disease virus. Archives of Virology. 152 (3), 463-478 (2007).
- Lin, J., et al. Genome-wide profiling of chicken dendritic cell response to infectious bursal disease. BMC Genomics. 17 (1), 878(2016).
- Quan, R., et al. Transcriptional profiles in bursal B-lymphoid DT40 cells infected with very virulent infectious bursal disease virus. Virology Journal. 14 (1), 7(2017).
- Wong, R. T., et al. Screening of differentially expressed transcripts in infectious bursal disease virus-induced apoptotic chicken embryonic fibroblasts by using cDNA microarrays. Journal of General Virology. 88 (Pt 6), 1785-1796 (2007).
Przedruki i uprawnienia
