Ta metoda po raz pierwszy opisuje wiarygodne procedury eksperymentalne dla efektywnej produkcji indukowalnego, wolnego od metanolu rekombinowanego białka w Pichia pastoris (Komagataella phaffii), wykorzystując regulowane przez źródło węgla promotory PDCi PDF w eksperymentach na małą skalę, podczas gdy parametry uprawy mogą być monitorowane online, a stała dawka glicerolu jest stosowana.
Artykuł metodologiczny
Ekspresja niezależna od metanolu przez Pichia Pastoris wykorzystująca technologie derepresji
W tym artykule
Podsumowanie
Streszczenie
Metanol jest dobrze znanym źródłem węgla i induktorem do efektywnej produkcji białka, wykorzystując Pichia pastoris (P. pastoris) jako gospodarza na skalę mikro-, laboratoryjną i przemysłową. Jednak ze względu na jego toksyczność i palność istnieje chęć unikania metanolu przy jednoczesnym utrzymaniu wysokiej produktywności P. pastoris. Hodowle w bioreaktorach na małą skalę (objętość robocza 0,5-5 l) są powszechnie stosowane do oceny szczepu i jego charakterystyki produkcji białka, ponieważ hodowla na mikroskalę w płytkach głębinowych może być trudna do kontrolowania lub opiera się na drogim sprzęcie. Ponadto ustanowiono tradycyjne protokoły hodowli i indukcji P. pastoris dla ekspresji konstytutywnej lub indukcji metanolu i jak dotąd nie opisano żadnych wiarygodnych protokołów przesiewowych szczepów ekspresyjnych P. pastoris za pomocą deprepresyjnych promotorów w (kontrolowanych i monitorowanych) uprawach równoległych. Aby uprościć takie początkowe uprawy w celu scharakteryzowania i porównania nowych szczepów produkujących białka, opracowaliśmy prosty system hodowli w kolbach wstrząsowych do ekspresji bez metanolu, który symuluje warunki bioreaktora, w tym stałe powolne podawanie glicerolu i monitorowanie online, zbliżając się w ten sposób do rzeczywistych warunków w bioreaktorach w porównaniu z najczęściej stosowanymi uprawami wsadowymi na małą skalę. Aby zwiększyć ekspresję rekombinowanych białek u P. pastoris, zastosowano stłumione promotory PDC i PDF ze źródła węgla. Dyski polimerowe z wbudowanym źródłem węgla, uwalniające stałą ilość glicerolu, zapewniały szybkość podawania, dostarczając energię niezbędną do utrzymania aktywności promotorów przy jednoczesnym utrzymaniu niskiej produkcji biomasy.
Wprowadzenie
Poprawa plonów i niezawodnych warunków uprawy na dużą skalę dla produkcji białek rekombinowanych przez mikroorganizmy, takie jak bakterie czy drożdże, jest jedną z głównych potrzeb dzisiejszej biotechnologii1 i komercyjnym sukcesem zastosowań przemysłowych. Dzięki prostym procedurom uprawy i pożywkom, wysokim plonom i dobrze scharakteryzowanym narzędziom2 Pichia pastoris (Komagataella phaffii) jest szeroko stosowanymi niekonwencjonalnymi drożdżami do produkcji rekombinowanych białek. Dodatkowe innowacyjne narzędzia są stale opracowywane dla tego gatunku, takie jak nowe wektory ekspresji, w tym nowe promotory jako alternatywa dla szeroko stosowanego PAOX1, regionu promotora genu oksydazy alkoholowej 13,4,5. Sekwencja DNA o długości 500 pz przed genem CAT1 (CTA1) została zidentyfikowana jako region promotora, co umożliwia nową, wolną od metanolu i wszechstronną strategię ekspresji u P. pastoris. Gen CAT1 jest jedynym genem katalazy P. pastoris, a białko znajduje się w peroksysomach. Katalaza odgrywa ważną rolę w detoksykacji reaktywnych form tlenu, które powstają np. w wyniku utleniania metanolu w szlaku peroksysomalnego MUT lub podczas beta-utleniania kwasów tłuszczowych6,7. Ekspresja genu CAT1 jest tłumiona przez obecność glukozy lub glicerolu w pożywce hodowlanej i depresyjna po wyczerpaniu tych źródeł węgla8. Co więcej, ekspresja genu katalazy może być indukowana za pomocą metanolu i, co ciekawe, również za pomocą kwasu oleinowego, pozornie jest to jedyny gen szlaku P. pastoris MUT, który może być indukowany kwasem oleinowym, osiągając nawet podobne poziomy ekspresji jak w przypadku indukcji metanolu9.
Fragment o długości 500 pz tego promotora CAT1 P. pastoris, który nazywa się PDC (czasami również w skrócie PCAT1-500), został już przetestowany pod kątem produkcji białek o ekspresji i wydzielaniu wewnątrzkomórkowym i okazał się atrakcyjną alternatywą dla dwóch klasycznych promotorów P. pastoris - silnego konstytutywnego PGAP i indukowanego metanolem PAOX1, które zostały opracowane ponad 20 lat temu. PDC był w stanie osiągnąć 21% (CalB) i 35% (HRP) aktywności wolumetrycznej w porównaniu z PGAP w podłożu bogatym w cukier. Po indukcji metanolu, PDC nie tylko zareagował szybciej niż PAOX1, ale mógł również wyraźnie przewyższyć go o 2,8 razy wyższe miano końcowe CalB9.
Oprócz PDC, zidentyfikowano promotor ortologiczny (PDF) wykazujący podobny profil regulacji. Jest jednak znacznie silniejszy niż PDC zarówno w warunkach depresyjnych, jak i indukowanych metanolem (manuskrypt w przygotowaniu)3.
W przypadkach, gdy silny konstytutywny PGAP nie powiódł się z powodu fizjologicznie problematycznych lub cytotoksycznych białek10,11, PDC i PDF stanowią idealną alternatywę. W eksperymentach na mikroskalę ekspresja napędzana przez te promotory rozpoczyna się po wyczerpaniu początkowego źródła węgla (np. glukozy lub glicerolu), co ułatwia produkcję biomasy bez obciążania komórek nadekspresją rekombinowanego białka od samego początku. Podczas gdy oba te promotory są nadal indukowane przez metanol, aktywacja przez dedepresję dodatkowo wykorzystuje fazę preindukcji w porównaniu z wyrażeniami wykorzystującymi PAOX1. Co więcej, PDC i PDF mogą być wykorzystywane do produkcji białek wolnych od metanolu, co jest pożądanym celem dla dużych procesów przemysłowych12.
Dla rozwoju odpowiednich szczepów produkcyjnych i konstrukcji ekspresji, należy przejść kilka etapów rozwoju, aby zawęzić z dużej liczby transformantów do preferowanego kandydata do zwiększenia skali. Badania przesiewowe są zwykle wykonywane z dużą przepustowością na płytkach wielodołkowych (skala mikro: mniej niż 0,5 ml) w celu wychwycenia jak największej liczby klonów. Kolejnym krokiem jest ponowne badanie przesiewowe i ponowne przesiewanie, po którym następuje wstrząsanie kolbą (mała skala: 50-250 ml) lub (mikro)bioreaktorem12. Pożądane jest jednak posiadanie metody, która jest najbardziej podobna między różnymi skalami, od setek mikrolitrów w płytkach głębinowych, przez kilka mililitrów w kolbach do wstrząsów, aż do późniejszego zwiększenia produkcji bez metanolu w dobrze kontrolowanych bioreaktorach. Chociaż kolby do wytrząsania mogą już dostarczać podobne objętości jak małe bioreaktory, istnieje kilka ograniczeń, które są bardzo istotne dla produkcji białka na dużą skalę, takich jak ciągłe karmienie, napowietrzanie i monitorowanie online13 wzrostu i dostarczania tlenu. Monitorowanie optyczne z wykorzystaniem dostosowanych kolb do wytrząsania i urządzeń do wytrząsania stanowi opłacalną alternatywę dla bardziej wyrafinowanych urządzeń do uprawy równoległej, zapewniając jednocześnie stałe informacje online o głównych parametrach hodowli, takich jak biomasa i stężenie tlenu rozpuszczonego. Powolne uwalnianie źródła węgla z nośników polimerowych może być zastosowane w celu zapewnienia stałego i kontrolowanego zasilania bez polegania na skomplikowanych rozwiązaniach technicznych i urządzeniach, symulując bardziej podobne warunki bioreaktorów niż poprzednio stosowane proste pełne zubożenie źródła węgla9,10, gdzie energia dla trwającej ekspresji białka staje się ograniczeniem.
Poniższa metoda opisuje system ekspresji białek w P. pastoris na małą i średnią skalę, wolny od metanolu, oparty na nowych promotorach PDC iP DF. Indukcja przez derepresję obejmuje dwie fazy. Pierwsza krótka faza akumulacji biomasy bez produkcji białka będącego przedmiotem zainteresowania, przy użyciu źródła węgla, które tłumi promotory, oraz druga faza produkcji białka docelowego, w której źródło węgla jest dostarczane w małych, ale stałych stężeniach, utrzymując promotor w stanie depresji. Monitorowanie online najbardziej krytycznych parametrów uprawy jest stosowane przez cały okres uprawy. Celem było dostarczenie wolnego od metanolu, niezawodnego i skalowalnego systemu uprawy P. pastoris.
Protokół
1. Przygotowanie pożywek
- Przygotowanie buforowanej pożywki minimalnej (BMG z glicerolem, BMD z dekstrozą jako źródłem węgla) (1 L)
- Zautoklawować 650 mL wody destylowanej w szklanej butelce o pojemności 1 L z nakrętką. Po ochłodzeniu uzupełnić pożywkę, dodając 10 mL zautoklawowanego 10x YNB (134 g/L podłoże azotowe dla drożdży bez aminokwasów), 20 mL buforu fosforanowego potasu (1 M, pH 6), 30-10 mL 10% w/v glukozy lub glicerolu (w zależności od pożądanej ilości biomasy wytworzonej podczas procesu okresowego), 2 mL sterylnego 50x roztworu biotyny (10 mg/mL) i dopełnić do 1 L sterylną wodą destylowaną.
Uwaga: Wszystkie składniki muszą być autoklawowane w osobnych kolbach. Biotyna ulega zniszczeniu podczas autoklawowania, dlatego musi być sterylizowana przez filtrację za pomocą filtrów membranowych 0,2 µm.
- Zautoklawować 650 mL wody destylowanej w szklanej butelce o pojemności 1 L z nakrętką. Po ochłodzeniu uzupełnić pożywkę, dodając 10 mL zautoklawowanego 10x YNB (134 g/L podłoże azotowe dla drożdży bez aminokwasów), 20 mL buforu fosforanowego potasu (1 M, pH 6), 30-10 mL 10% w/v glukozy lub glicerolu (w zależności od pożądanej ilości biomasy wytworzonej podczas procesu okresowego), 2 mL sterylnego 50x roztworu biotyny (10 mg/mL) i dopełnić do 1 L sterylną wodą destylowaną.
- Buforowana pożywka bogata (BYPG) (1 L)
- Zautoklawować 70 mL wody destylowanej z 1% w/v ekstraktem drożdżowym i 2% w/v peptonem w butelce o pojemności 1 L z nakrętką. Po ochłodzeniu dodać 30-100 mL oddzielnie zautoklawowanego 10% w/v glicerolu, 20 mL buforu fosforanowego potasu (1 M, pH 6) i dopełnić do 1 L sterylną wodą destylowaną.
2. Przygotowanie kolb do inkubacji
- Do kolb z przegrodami o pojemności 250 mL wlać 5 mL wody destylowanej, przykryć dwiema warstwami tkaniny bawełnianej i przymocować gumkami recepturkami. Tkaninę przykryć kawałkiem folii aluminiowej.
- Autoklawować kolby w temperaturze 121 °C przez 20 min w celu pełnej sterylizacji.
- Usunąć pozostałą wodę z kolb i do każdej z nich wlać 50 mL wcześniej przygotowanej pożywki.
3. Nocne szczepienie hodowli
- Przygotuj nocną kulturę (ONC) z pojedynczej, świeżej kolonii pożądanego szczepu ekspresyjnego w 5 mL pożywki YPD (1% w/v ekstraktu drożdżowego, 2% w/v peptonu, 2% w/v glukozy) w probówce wirówkowej o pojemności 50 mL, pozostawiając wieczko lekko uchylone, aby zapewnić odpowiednie napowietrzanie.
- Inkubuj kulturę przez noc w temperaturze 28 °C i wilgotności 80% w inkubatorze wytrząsowym przy prędkości 10-130 rpm (średnica wytrząsania 2,5 cm).
4. Konfiguracja pomiaru i hodowla kultury głównej
- W celu skonfigurowania systemu monitorowania online należy postępować zgodnie z instrukcjami producenta dotyczącymi odpowiedniej kalibracji urządzeń.
- Umieść komputer z zainstalowanym odpowiednim oprogramowaniem monitorującym w zasięgu połączenia Bluetooth ze stacjami pomiarowymi. Uruchom oprogramowanie, aby połączyć urządzenia za pomocą Bluetooth.
- Włącz połączenie Bluetooth w urządzeniu do pomiaru biomasy, naciskając srebrny przycisk znajdujący się z przodu.
- W oprogramowaniu kliknij Urządzenia następnie Wyszukiwanie urządzeń.
Uwaga: Urządzenia powinny wyświetlić się w formie listy w oknie poniżej linii zadań. Jeśli tak się nie stanie, zaleca się sprawdzenie, czy baterie są naładowane oraz czy komputer znajduje się w zasięgu połączenia Bluetooth. - Przeciągnij i upuść znalezione urządzenia w kwadraty znajdujące się po prawej stronie ekranu Taca pomiarowa.
- Kliknij Połącz.
Uwaga: Po pomyślnym nawiązaniu połączenia pojawi się ekran sterowania. - Aby rozpocząć próbny bieg połączenia Bluetooth, kliknij Pomiar.
- Przygotuj eksperyment.
- Kliknij Rozpocznij pomiarnazwij eksperyment i włącz wszystkie parametry niezbędne do monitorowania.
Uwaga: Wymagane są licencje dla każdego z możliwych do zmierzenia parametrów. - Zestaw Interwał do 3 min.
Uwaga: Interwał określa częstotliwość pomiarów, a każdy punkt pomiarowy skutkuje uzyskaniem konkretnej wartości. Pomiary wykonywane w każdej minucie są bardzo dokładne, ale generują dużą ilość danych, co utrudnia ich późniejszą analizę. - Zestaw Średnie punkty pomiarowe do 1.
Uwaga: To ustawienie określa, ile punktów pomiarowych jest faktycznie pobieranych co 3 min. W związku z tym wynik jest wartością średnią z 1 punktów pomiarowych pobranych w ciągu 1 s. - Wprowadź nazwy próbek.
- Pomiń kolejny ekran, ponieważ kąt został już wcześniej skalibrowany (Krok 4.1).
Uwaga: Przed zaszczepieniem kultur głównych zaleca się wykonanie testowego połączenia Bluetooth, aby zapewnić stabilność sygnału oraz odpowiednie rozmieszczenie podłączonego komputera. Należy również upewnić się, że akumulatory są naładowane.
- Kliknij Rozpocznij pomiarnazwij eksperyment i włącz wszystkie parametry niezbędne do monitorowania.
- Zmierz gęstość komórek ONC (Krok 3.1) rozcieńczonych w pożywce hodowlanej (1:20) w spektrofotometrze przy długości fali 60 nm. Zaszczep 50 ml pożywki (zalecane stężenie źródła węgla 0,3–1%, możliwe zastosowanie różnych pożywek zgodnie z opisem w Kroku 1) za pomocą ONC do poziomu OD600 wynoszącej 0,05, stosując następujące obliczenia.
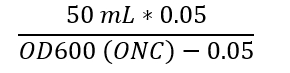
- Umieścić kolby w detektorach i wstrząsać z prędkością 28 °C, 130 obr./min i 80% wilgotności.
Uwaga: Bardzo ważne jest potrząsanie hodowlą przez 5 min przed rozpoczęciem pomiaru, aby zapobiec przywieraniu komórek do dna kolby, co mogłoby doprowadzić do uzyskania błędnych wyników. - Kliknij Rozpocznij pomiar w oprogramowaniu.
- Pobrać próbki o objętości 0,2 ml do pomiaru gęstości komórek w trzech powtórzeniach, odpowiednio 4 h po inokulacji oraz w momencie wyczerpania źródła węgla (sposób oznaczenia opisano w punkcie 4.7). Próbki należy odpowiednio rozcieńczyć w pożywce hodowlanej (pierwszy pomiar 1:5, drugi pomiar 1:20), a następnie zmierzyć absorbancję przy długości fali 60 nm za pomocą spektrofotometru. Przed wyjęciem kolb i przed zatrzymaniem inkubatora wytrząsowego należy zawsze wstrzymać pomiar w oprogramowaniu.
Uwaga: Detektory są skalibrowane do rejestrowania parametrów w określonych warunkach wytrząsania i w przypadku pomiarów kultur stacjonarnych będą podawać błędne wyniki. Należy również pamiętać, aby przed ponownym rozpoczęciem pomiaru zawsze odczekać 5 minut wytrząsania. Pomiary gęstości komórkowej są niezbędne, ponieważ detektor dostarcza jedynie wartości biomasy, a nie rzeczywistej gęstości komórek. Funkcja kalibracyjna między OD600 wartości (wartości x) oraz wartości uzyskane za pomocą systemu pomiaru online (wartości y) można wyznaczyć, wykonując pomiary spektrofotometryczne w kilku punktach czasowych. Wartości te nie pozostają w relacji liniowej, lecz logarytmicznej, zgodnie z następującą funkcją kalibracyjną:
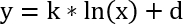
y: OD600 wartości uzyskane za pomocą spektrofotometru
x: wartości uzyskane za pomocą systemu pomiarów online
k: nachylenie
d: punkt przecięcia z osią
Nachylenie oraz punkt przecięcia z osią można następnie wykorzystać do przeliczenia dowolnej wartości na odpowiadającą jej gęstość optyczną (OD).600 wartość. W programie Excel można wykreślić otrzymaną spektrofotometrycznie gęstość optyczną (OD)600 wartości względem wartości z systemu online z tego samego punktu czasowego. Dodanie logarytmicznej linii trendu i odpowiadającego jej równania pozwoli uzyskać przedstawioną powyżej funkcję kalibracyjną. - Kultywować do momentu niemal całkowitego wyczerpania źródła węgla (ok. 12–20 h). W tym celu pozwolić kulturom rosnąć do czasu, aż na wykresach w oprogramowaniu będzie widoczne, że stężenie tlenu zbliża się do zera, a komórki znajdują się w fazie wzrostu wykładniczego.
Uwaga: Dotyczy to stężeń źródła węgla zastosowanych w niniejszym protokole. Moment wyczerpania źródła węgla można określić za pomocą systemu monitorowania online, co pokazano w przykładzie w Rysunek 1 w sekcji Reprezentatywne wyniki, gdy poziom tlenu zbliża się do zera, a komórki znajdują się w fazie wzrostu wykładniczego.
5. Ekspresja białka poprzez derepresję
- Po osiągnięciu punktu czasowego opisanego w kroku 4.6, rozpocząć dokarmianie kultur poprzez dodanie czterech dysków z pożywką do każdej kolby w warunkach sterylnych.
Uwaga: W opisanych warunkach cztery dyski z glicerolem uwalniają 2 mg/h glicerolu zgodnie z informacją producenta. - Kontynuować hodowlę przez 60-90 h, pobierając próbki co 24 h w celu monitorowania ekspresji białka za pomocą wybranej metody (np. metoda Bradforda15, SDS PAGE16 lub testy aktywności) oraz pomiarów gęstości komórek.
6. Zbiór hodowli
- Po 60–90 h hodowli przelać kultury do probówek wirówkowych o pojemności 50 mL w celu ich zebrania poprzez wirowanie przy 4,0 x g, 4 °C przez 10 min.
Uwaga: Nadnadkład (w przypadku białek wydzielanych) lub komórki (w przypadku ekspresji białek wewnątrzkomórkowych) można zebrać poprzez wirowanie przy 4,0 x g, 4 °C przez 10 min, a następnie przeprowadzić dalsze analizy. - Wyeksportować dane z pomiarów online z oprogramowania do pliku arkusza kalkulacyjnego w celu dalszej analizy.
- Do wszystkich kolb wlać 5–10 mL wody destylowanej i poddać autoklawowaniu, aby unieczynnić pozostałe komórki.
Wyniki
Jak opisano w sekcji protokołu, oprogramowanie rejestruje istotne parametry hodowli przez cały okres jej trwania. Rycina 1 przedstawia wizualizację rozwoju biomasy i stężenia tlenu podczas hodowli rozpoczętej z udziałem 0,5% (Rycina 1A) lub 0,3% (Rycina 1B) źródła węgla w fazie batch, a następnie po dodaniu dysków z pożywką glicerynową. System monitorowania online jest szczególnie użyteczny w przypadku hodowli derepresyjnych, ponieważ pozwala na dokładne określenie momentu wyczerpania źródła węgla po fazie batch. Jak widać na Rycynie 1, stężenie tlenu w medium gwałtownie spada i zbliża się do zera, szczególnie dla 0,5% gliceryny w fazie batch (Rycina 1A), podczas gdy biomasa w tym punkcie zwiększa się wykładniczo. W tym momencie komórki znajdują się w fazie wzrostu wykładniczego i w celu optymalnego wykorzystania uwalniania źródła węgla, krótko przed osiągnięciem przez kulturę fazy stacjonarnej, należy dodać dyski z pożywką zgodnie z opisem w protokole. Dodanie dysków z pożywką przed spadkiem stężenia tlenu do zera jest istotne dla derepresyjnej ekspresji białek, aby zapobiec ograniczeniu dostępności tlenu dla komórek. Niższe stężenia gliceryny zmniejszają efekt krótkotrwałych ograniczeń tlenowych, co widać na Rycynie 1B, dlatego są one zalecane dla derepresyjnej ekspresji białek.
Poniżej opisano wyniki dwóch różnych eksperymentów hodowlanych – z wykorzystaniem opisanego protokołu oraz systemu monitorowania przedstawionego na Rysunku 1. W pierwszym eksperymencie przedstawiono szczep P. pastoris produkujący oksydazę glukozową z Aspergillus niger (A. niger) pod kontrolą promotora PDC, a w drugim szczep P. pastoris produkujący ludzki hormon wzrostu pod kontrolą promotora PDF.
W tym doświadczeniu badano produkcję oksydazy glukozowej pod kontrolą promotora PDC . W związku z tym porównano różne strategie hodowli: pulsacyjne dodawanie glicerolu, stałe podawanie glicerolu poprzez dodanie dysków z pożywką oraz hodowlę bez żadnego zasilania lub pulsacji. Hodowlę prowadzono w 50 mL buforowanego minimalnego medium z 0,5% glukozy jako jedynego źródła węgla w kolbach z wytrząsaniem o pojemności 250 mL (Tabela 1).
Po 160 h hodowli uzyskano najwyższe stężenia biomasy, stosując strategię zasilania opartą na partii glukozy dla produkcji biomasy (38 h) oraz impulsowym dodawaniu glicerolu (0,25% w/v glicerolu po 38 h, 61 h i 86 h hodowli) (0,21 g/L całkowitego białka wydzielanego, 8,4 U/mL). Chociaż po dodaniu dysków zasilających po 38-godzinnej partii glukozy uzyskano 2-krotny spadek stężenia biomasy oraz całkowitej ilości wydzielonego białka, aktywność objętościowa była nawet o 1 U/mL wyższa w porównaniu do hodowli z impulsowym dodawaniem glicerolu. Wskazuje to, że znaczna ilość wydzielonego białka nie przyczynia się do aktywności objętościowej w supernatancie i może być wydzielana w formie nieaktywnej. Zatem wyższe stężenia glicerolu z impulsów zdają się sprzyjać tworzeniu biomasy zamiast produkcji białka docelowego, a stałe uwalnianie niskich ilości glicerolu doprowadziło do ponad dwukrotnie wyższej wydajności specyficznej.
Kolejny eksperyment z wykorzystaniem metody ekspresji derepresyjnej przeprowadzono poprzez ekspresję ludzkiego hormonu wzrostu (hGH) pod kontrolą PDF. Konstrukt został stabilnie zintegrowany z genomem szczepu BSYBG1 P. pastoris. Zastosowano 50 mL BYPG, buforowanej pożywki bogatej, w 250 mL kolbach z przegrodami, z dodatkiem 0,3% (w/v) glicerolu jako źródła węgla w procesie okresowym. Po wyczerpaniu glicerolu, ekspresję białka przy stałym dopływie glicerolu zapewniono poprzez dodanie 4 dysków podających na kolbę i porównano ją z wariantem bez dopływu glicerolu (Rysunek 2).
Rysunek 2 przedstawia porównanie ekspresji hGH i rozwoju biomasy tego samego szczepu hodowanego z stałym dopływem glicerolu oraz bez niego. Jako metoda analizy wykorzystano kanapkowy test ELISA z przeciwciałem wtórnym sprzężonym z HRP, a detekcję przeprowadzono z użyciem 3,3′,5,5′-tetrametylobenzoimidyny (TMB) jako substratu. W przypadku tego białka wydawało się, że bez doprowadzania pożywki komórki zaczynają degradować wyprodukowane białko po około 30 h (jasnoniebieskie kwadraty), podczas gdy dzięki dopływowi pożywki degradacji tej można było zapobiec (ciemnoniebieskie trójkąty), a stężenie białka na biomasę nadal wzrastało nawet po 150 h hodowli. Jak już zaobserwowano w przypadku Hansenula polymorpha14, wynik ten pokazuje, w jaki sposób przejście z trybu okresowego (batch), zazwyczaj stosowanego w skali kolb z wytrząsarką, na tryb z dopływem (fed-batch) może zoptymalizować hodowle P. pastoris .
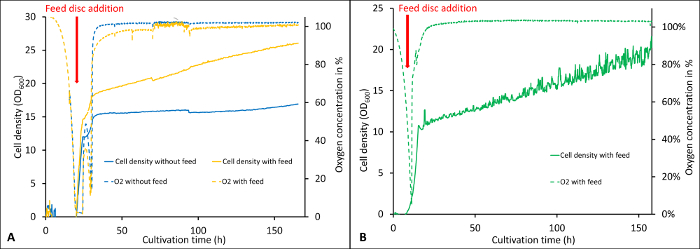
Rysunek 1: Wizualizacja parametrów rejestrowanych online podczas dwóch hodowli z różnymi stężeniami glicerolu w procesie okresowym. Kultury rozpoczęto przy stężeniu 0,5% w/v (A) i 0,3% m/v (B) glicerolu w partii, a następnie fazę derepresji, w której komórki były zasilane poprzez zastosowanie 4 dysków z pożywką na kolbę (szybkość uwalniania 0,5 mg/h/dysk zgodnie z informacją producenta). Linie przerywane przedstawiają stężenie tlenu w medium, natomiast linie ciągłe przedstawiają gęstość komórek (OD600). Słupki błędu przedstawiają odchylenie standardowe sześciu powtórzeń (dwóch biologicznych, z trzema technicznymi dla każdego z nich). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
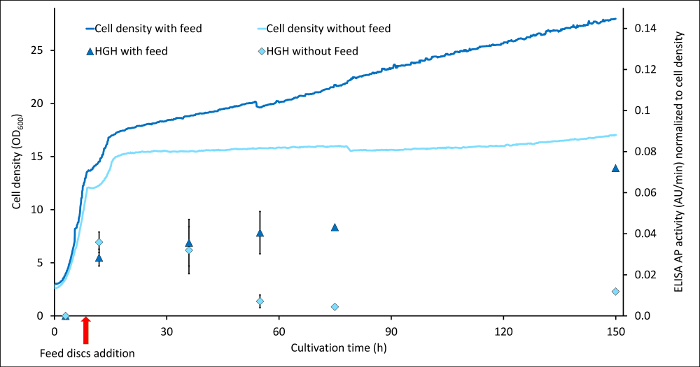
Rysunek 2: Porównanie ekspresji ludzkiego hormonu wzrostu (hGH) w trybie okresowym (batch) i okresowym z dopływem (fed-batch). zawartość hGH jest określana na podstawie wartości absorbancji przy 405 nm w teście ELISA, w którym 2nd przeciwciało stanowiło fuzję z HRP, a jako substrat do detekcji zastosowano TMB. Przedstawiono wyniki dla dwóch różnych kultur: jasnoniebieska linia i kwadraty obrazują gęstość komórek oraz stężenie hGH znormalizowane względem gęstości komórek w kulturze bez dopływu po fazie batch, w porównaniu do kultury, w której zastosowano dyski z dopływem glicerolu (ciemnoniebieskie linie i trójkąty). Słupki błędu przedstawiają odchylenie standardowe z sześciu powtórzeń (dwóch biologicznych, po trzy techniczne dla każdego). Aby wyświetlić powiększoną wersję tej figury, kliknij tutaj.
| PDC-GOX po 160 h czasu hodowli | OD600 | aktywność objętościowa [U/ml] | całkowita ilość wydzielonego białka [mg/ml] | aktywność objętościowa w przeliczeniu na gęstość komórek | |||
| Średnia | SD | Średnia | SD | Średnia | SD | Średnia | |
| partia BMD 1% + pulsowanie glicerolem | 74.6 | 2 | 8.4 | 2.4 | 0.21 | 0.01 | 0.11 |
| partia BMD 1% + stałe dozowanie glicerolu | 32.5 | 0.3 | 9.4 | 0.7 | 0.09 | 0.01 | 0.29 |
| partia BMD1% | 18.8 | 0.6 | 3.7 | 0.7 | 0.01 | 0 | 0.2 |
Tabela 1: Wyniki ekspresji GOX niezależnej od metanolu pod kontrolą odblokowanego promotora PDC.
Dyskusja
Metoda ta przedstawia niezawodny protokół wydajnej, niezależnej od metanolu indukowalnej ekspresji przez P. pastoris jako alternatywę dla klasycznej ekspresji białek indukowanych metanolem napędzanej przez PAOX112. Depreparowane promotory, takie jak PDC, PDF lub wcześniej opisane zmutowane warianty PAOX1 17, budują molekularną podstawę tej nowej koncepcji produkcji białek. Przedstawione reprezentatywne wyniki podkreślają przydatność i praktyczność rekombinowanej ekspresji białek u P. pastoris za pomocą detłumionych promotorów i badań przesiewowych na małą skalę z prostym monitorowaniem online. Z jednej strony szkodliwy i toksyczny metanol, który jest zwykle używany do indukcji promotora AOX1, może zostać wyeliminowany z uprawy. Z drugiej strony, faza wzrostu i produkcji białka jest niesprzężona9 w przeciwieństwie do konstytutywnej ekspresji białka, np. z powszechnie stosowanym P GAP. Jest to szczególnie korzystne, gdy komórki powinny wyrażać toksyczne lub szkodliwe białka, które stanowią dla nich obciążenie.
Możliwość rozpoczęcia upraw z różnymi stężeniami węgla umożliwia podjęcie decyzji o tym, ile biomasy chciałoby się pozyskać przed rozpoczęciem fazy produkcji białka. Wybierając źródło węgla o niższym stężeniu w partii, można zmniejszyć ograniczenia transferu tlenu spowodowane zbyt dużą gęstością komórek, podczas gdy z drugiej strony wyższe zagęszczenie komórek może również skutkować wyższymi mianami białek. Monitorując rozwój kultury pod kątem wytwarzania biomasy i stężeń tlenu, można łatwo określić optymalny punkt czasowy dla rozpoczęcia karmienia partiami, jak pokazano na rysunku 1.
Do monitorowania online tych parametrów uprawy należy zastosować odpowiedni system pomiarowy. Urządzenie do pomiaru biomasy (np. SFR Vario) to prosty i ekonomiczny system pomiarowy online do monitorowania kultur w kolbach wstrząsowych. Czytnik optoelektroniczny określa wzrost komórek w kolbie poprzez detekcję światła rozproszonego i odczytuje sygnał z czujnika tlenu zintegrowanego z kolbą. Optyka do pomiaru biomasy składa się z diody LED, która emituje sygnał świetlny, który jest rozpraszany przez cząstki (komórki) w bulionie hodowlanym i wykrywany za pomocą fotodiody. Czujniki optyczne emitują fluorescencję po wzbudzeniu światłem o określonej długości fali. W zależności od ilości obecnych cząsteczek analitu, ten sygnał fluorescencyjny zmienia się, co jest wykrywane przez optykę czytnika i przekładane na wartości stężenia. Jednak kalibracja pomiaru gęstości komórek musi być wcześniej wykonana, ponieważ system pomiarowy nie mierzy rzeczywistych wartości OD600 . Szybkość poboru tlenu można obliczyć na podstawie nachylenia krzywej tlenowej za pomocą oprogramowania czytnika, a temperatura i prędkość obrotowa są rejestrowane w sposób ciągły wraz z innymi parametrami. Aby umożliwić monitorowanie za pomocą tego systemu, kolby wstrząsające muszą być wcześniej wyposażone w odpowiednie czujniki dla żądanych parametrów.
Poprzez dodanie czterech dysków polimerowych o powolnym uwalnianiu, które dostarczają stałą ilość glicerolu do bulionu hodowlanego, akumulacja biomasy jest prawie zatrzymana, a produkcja rekombinowanego białka jest kontynuowana. Określenie punktu czasowego dodawania krążka zasilającego nie jest krytycznym krokiem w tym eksperymencie, ale należy wziąć pod uwagę, że przedwczesne rozpoczęcie karmienia przed fazą wzrostu wykładniczego może hamować aktywację promotora, ponieważ ekspresja rozpoczyna się po wyczerpaniu źródła węgla. Dodatkowo całkowity czas karmienia ze względu na ograniczenia pojemności polimerów może ulec skróceniu, natomiast opóźnienie karmienia po osiągnięciu przez komórki fazy stacjonarnej może prowadzić do głodu i degradacji już wyprodukowanego białka. Ilość krążków zasilających użytych w tym protokole została określona eksperymentalnie w celu optymalnego uwalniania źródła węgla, aby utrzymać promotor w stanie depresyjnym przy jednoczesnym utrzymaniu niskiej generacji biomasy (dane nie pokazane). W ten sposób uprawy można łatwo przeprowadzać przez 160-180 godzin bez żadnej interwencji.
Główne zastosowania tego nowego protokołu będą dotyczyły badań przesiewowych klonów ekspresji, ewolucji enzymów oraz odkrywania, charakteryzowania i inżynierii nowych promotorów wykorzystujących protokół uprawy bez metanolu w dobrze monitorowanych warunkach. Zasadniczo ten sam protokół powinien mieć zastosowanie do strategii mieszanych mieszanek paszowych wykorzystujących metanol i pasze o ograniczonym źródle węgla fermentacyjnego, takie jak opisane przez Panula-Perälä i wsp. w 2014 r.18.
Oświadczenia
Chociaż przedstawiony protokół ma ogólne zastosowanie do uprawy i indukcji w warunkach depresyjnych, bisy e.U. deklaruje, że jest zainteresowany komercjalizacją nowych depreparowanych promotorów stosowanych w tym badaniu.
Podziękowania
ROBOX otrzymał dofinansowanie z projektu Unii Europejskiej (UE) ROBOX (umowa o grant nr 635734) w ramach programu UE Horyzont 2020 Działania w zakresie badań naukowych i innowacji H2020-LEIT BIO-2014-1. Poglądy i opinie wyrażone w niniejszym dokumencie są wyłącznie poglądami i opiniami autora (autorów) i niekoniecznie odzwierciedlają poglądy i opinie Agencji Unii Europejskiej ds. Badań Naukowych. Unia Europejska nie ponosi odpowiedzialności za jakiekolwiek wykorzystanie informacji zawartych w niniejszym dokumencie.
Praca doktorska J. Fischera jest współfinansowana z grantu na "Industrienahe Dissertation" austriackiej agencji finansującej FFG.
Dziękujemy Gernotowi Johnowi (PreSens GmbH) za pomocne dyskusje i cenny wkład w projekt manuskryptu.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Ekstrakt z drożdży Bacto BD | Biosciences | 212720 | |
| Kolba z przegrodami 250 ml | DWK Nauki przyrodnicze | 212833655 | |
| BBL Fiton Pepton | BD Biosciences | 298147 | |
| BioPhotometer | Eppendorf AG | 5500-200-10 | |
| Certoclav-EL | CertoClav GmbH | 9.842 014 | |
| Difco Drożdże na bazie azotu w/ o aminokwasy | BD Biosciences | 291920 | |
| Krążki paszowe glicerol | Adolf Kuhner AG | 315060 | |
| Glukoza jednowodna | Carl Roth GmbH + Co. KG | 6887 | |
| Glicerol ≥ 98 % | Carl Roth GmbH + Co. KG | 3783 | |
| K2HPO4 | Carl Roth GmbH + Co. KG | 6875 | |
| KH2PO4 | Carl Roth GmbH + Co. KG | 3904 | |
| Multitron Standard | Infors AG | 444-4226 | |
| SFR Vario v2 | PreSens GmbH | 200001689 |
Bibliografia
- Bill, R. M. Playing catch-up with escherichia coli: Using yeast to increase success rates in recombinant protein production experiments. Frontiers in Microbiology. 5 (MAR), 1-5 (2005).
- Cregg, J. M., Cereghino, J. L., Shi, J., Higgins, D. R. Recombinant Protein Expression in Pichia pastoris). Molecular Biotechnology. 16, 23-52 (2000).
- Weinhandl, K., Winkler, M., Glieder, A., Camattari, A. Carbon source dependent promoters in yeasts. Microbial Cell Factories. 13, 5(2014).
- Vogl, T., Kickenweiz, T., Sturmberger, L., Glieder, A. Bidirectional Promoter. US patent. , 20150011407 (2005).
- Vogl, T., Glieder, A. Regulation of Pichia pastoris promoters and its consequences for protein production. New Biotechnology. 30 (4), 385-404 (2013).
- Rußmayer, H., et al. Systems-level organization of yeast methylotrophic lifestyle. BMC Biology. 13 (1), 80(2015).
- Sakai, Y., Yurimoto, H., Matsuo, H., Kato, N. Regulation of peroxisomal proteins and organelle proliferation by multiple carbon sources in the methylotrophic yeast, Candida boidinii. Yeast. 14 (13), 1175-1187 (1998).
- Hartner, F. S., Glieder, A. Regulation of methanol utilisation pathway genes in yeasts. Microbial Cell Factories. 5, 39(2006).
- Vogl, T., et al. A Toolbox of Diverse Promoters Related to Methanol Utilization: Functionally Verified Parts for Heterologous Pathway Expression in Pichia pastoris. ACS Synthetic Biology. 5 (2), 172-186 (2016).
- Mellitzer, A., Weis, R., Glieder, A., Flicker, K. Expression of lignocellulolytic enzymes in Pichia pastoris. Microbial Cell Factories. 11 (1), 61(2012).
- Macauley-Patrick, S., Fazenda, M. L., McNeil, B., Harvey, L. M. Heterologous protein production using the Pichia pastoris expression system. Yeast. 22 (4), 249-270 (2005).
- Weis, R., Luiten, R., Skranc, W., Schwab, H., Wubbolts, M., Glieder, A. Reliable high-throughput screening with Pichia pastoris by limiting yeast cell death phenomena. FEMS Yeast Research. 5 (2), 179-189 (2004).
- Ukkonen, K. Improvement of Recombinant Protein Production in Shaken Cultures. , Acta University Oulu C 480 (2014).
- Jeude, M., et al. Fed-batch mode in shake flasks by slow-release technique. Biotechnology and Bioengineering. 95, 433-445 (2006).
- Bradford, M. M. A rapid and sensitive method for the quantitation of microgram quantities of protein utilizing the principle of protein-dye binding. Analytical Biochemistry. 72, 248-254 (1976).
- Smith, B. J. SDS Polyacrylamide Gel Electrophoresis of Proteins. Methods in molecular biology. 1, 41-55 (1984).
- Hartner, F. S., et al. Promoter Library Designed for Fine-Tuned Gene Expression in Pichia Pastoris. Nucleic Acids Research. 36 (12), e76(2008).
- Panula-Perälä, J., Vasala, A., Karhunen, J., Ojamo, H., Neubauer, P., Mursula, A. Small-scale slow glucose feed cultivation of Pichia pastoris without repression of AOX1 promoter: towards high throughput cultivations. Bioprocess and Biosystems Engineering. 37 (7), 1261-1269 (2014).
Przedruki i uprawnienia
