Tutaj prezentujemy protokół jakościowego wykrywania ex vivo specyficznych dla antygenu limfocytów T CD8+. Analiza jest możliwa w przypadku zawiesin pojedynczych komórek z narządów lub z niewielkich ilości krwi. Szeroki zakres badań wymaga analizy odpowiedzi cytotoksycznych limfocytów T (badania nad szczepieniami i immunoterapią nowotworów).
Artykuł metodologiczny
Jednoczesna kwantyfikacja limfocytów T CD8 + specyficznych dla antywektorów i anty-transgenów za pomocą barwienia tetramerem MHC I po szczepieniu wektorem wirusowym
W tym artykule
Podsumowanie
Streszczenie
Po infekcji wirusowej powstają cytotoksyczne limfocyty T (CTL) specyficzne dla antygenu CD8+, które przyczyniają się do eliminacji zainfekowanych komórek, aby zapobiec rozprzestrzenianiu się patogenów. Dlatego częstość występowania CTL specyficznych dla antygenu wskazuje na siłę odpowiedzi limfocytów T na określony antygen. Taka analiza jest ważna w immunologii podstawowej, opracowywaniu szczepionek, immunobiologii nowotworów i immunologii adaptacyjnej. W dziedzinie szczepionek odpowiedź CTL skierowana przeciwko składnikom wektora wirusowego współdecyduje o tym, jak skuteczne jest generowanie komórek specyficznych dla antygenu przeciwko antygenowi będącemu przedmiotem zainteresowania (tj. transgenowi). CTL specyficzne dla antygenu można wykryć przez stymulację specyficznymi peptydami, a następnie barwienie cytokinami wewnątrzkomórkowymi lub przez bezpośrednie barwienie receptorów limfocytów T specyficznych dla antygenu (TCR) i analizę za pomocą cytometrii przepływowej. Pierwsza metoda jest dość czasochłonna, ponieważ wymaga poświęcenia zwierząt w celu wyizolowania komórek z narządów. Wymaga również izolacji krwi od małych zwierząt, co jest trudne do wykonania. Ta ostatnia metoda jest dość szybka, można ją łatwo wykonać przy niewielkich ilościach krwi i nie jest zależna od określonych funkcji efektorowych, takich jak aktywność cytolityczna. Tetramery MHC są idealnym narzędziem do wykrywania TCR specyficznych dla antygenu.
Tutaj opisujemy protokół jednoczesnego wykrywania specyficznych dla antygenu CTL dla immunodominujących peptydów wektora wirusowego VSV-GP (LCMV-GP, VSV-NP) i transgenów (OVA, HPV 16 E7, eGFP) za pomocą barwienia tetramerem MHC I i cytometrii przepływowej. Barwienie jest możliwe bezpośrednio z krwi lub z zawiesin jednokomórkowych narządów, takich jak śledziona. Zawiesiny krwi lub pojedynczych komórek narządów inkubuje się z tetramerami. Po barwieniu przeciwciałami przeciwko CD3 i CD8, CTL specyficzne dla antygenu są oznaczane ilościowo za pomocą cytometrii przepływowej. Opcjonalnie można włączyć przeciwciała przeciwko CD43, CD44, CD62L lub innym w celu określenia stanu aktywacji komórek T CD8 + specyficznych dla antygenu oraz rozróżnienia między komórkami naiwnymi a efektorowymi.
Wprowadzenie
Celem tej metody jest ocena częstości odpowiedzi cytotoksycznych limfocytów T (CTL) na (wiele) antygenów u myszy za pomocą analizy cytometrycznej przepływowej bez potrzeby czasochłonnej stymulacji peptydów. Metoda ta analizuje fenotyp i swoistość antygenową podzbiorów CTL w pojedynczym barwieniu. Zoptymalizowaliśmy protokół barwienia tetramerami Major Histocompatibility Complex I (MHC I), aby przeanalizować skuteczność nowych podejść do szczepionek, takich jak VSV-GP, nowy wariant wirusa pęcherzykowego zapalenia jamy ustnej (VSV), w którym glikoproteina G VSV została zastąpiona glikoproteiną GP wirusa limfocytarnego zapalenia opon mózgowo-rdzeniowych (LCMV)1,2. Oprócz odpowiedzi humoralnej, ważnym odczytem skuteczności szczepionki jest indukcja odpowiedzi CTL przeciwko jednemu lub kilku antygenom. Ponieważ spójność i trwałość odpowiedzi komórkowej są ważne w tym kontekście, korzystne jest monitorowanie kinetyki odpowiedzi CTL od tego samego zwierzęcia. Doprowadzi to również do zmniejszenia liczby zwierząt, co jest ważnym aspektem w odniesieniu do zasad "3Rs"3. W związku z tym optymalna do tego celu jest analiza już od 20 μl krwi.
Tetramery zostały opracowane pod koniec lat 90-tych4 i stały się ważnym narzędziem w dziedzinie immunologii limfocytów T. Tetramery to znakowane fluorescencyjnie kompleksy czterech cząsteczek MHC I/peptydu, które wiążą się z TCR, specyficznymi dla pojedynczego peptydu. Obecnie można je kupić w wersji ready-made5, zamówione bezpłatnie w NIH Tetramer Core Facility na Uniwersytecie Emory6 lub wyprodukowane w lab7. Dostępne są tetramery MHC I i II, tj. odpowiednio dla limfocytów T CD8+ i CD4+. Siła barwienia tetramerem polega na oszczędności czasu, raczej prostej i łatwej do standaryzacji8 protokołów oraz czułości9. Ponadto, jeśli pracuje się z krwią, zwierzęta nie muszą być uśmiercane i wymagane są minimalne ilości próbki. Jeden pomiar nie jest ograniczony do jednego antygenu, ale kilka antygenów można przeanalizować w jednym barwieniu podczas łączenia tetramerów sprzężonych z różnymi fluoroforami. Nowo odkryte antygeny, np. z badań przesiewowych peptydów, mogą być łatwo włączane do tetramerów i wykorzystywane do oznaczania ilościowego podzbioru limfocytów T.
Barwienie tetramerem nie dostarczy informacji o funkcjonalności CTL (tj. produkcji cytokin, funkcji efektorowych), a jedynie o specyficzności. Aby uzyskać informacje na temat funkcjonalności limfocytów T, należy przeprowadzić wewnątrzkomórkowe barwienie cytokiną (ICS) lub test immunopunktowy sprzężony z enzymem (ELISpot)8,10. Barwienie tetramerowe i ICS/ELISpot nie są jednak nadmiarowe, ale raczej wzajemnie się uzupełniają. Stymulacja in vitro w celu indukowania produkcji cytokin dla ICS/ELISpot zmieni oryginalny fenotyp limfocytów T. Natomiast barwienie tetramerem pozostawia limfocyt T nietknięty; Oryginalny fenotyp jest zachowany i może być analizowany. Kolejną dużą zaletą tetramerów jest to, że barwienie można połączyć z sortowaniem magnetycznym i wzbogacaniem komórek specyficznych dla antygenu11. Pozwala to na analizę rzadkich populacji, a także hodowlę posortowanych komórek o określonej swoistości antygenowej – cecha, która nie jest możliwa w przypadku innych metod.
Korzystając z opisanego tutaj protokołu, barwienie tetramerem, jak również ICS/ELISpot można przeprowadzić z jednego organu, ponieważ do barwienia tetramerów potrzeba tylko bardzo mało materiału (krew: 20 μL; śledziona: 1 x 10⁶ komórek). Jednak w zależności od częstości występowania komórek specyficznych dla antygenu, siły odpowiedniego TCR i kontekstu doświadczalnego, może być konieczne zwiększenie wymaganej liczby komórek lub zastosowanie wzbogacenia magnetycznego.
Tetramery są szeroko stosowane, na przykład do oceny skuteczności szczepionek (przeciwnowotworowych)12,13,14,15 lub immunoterapia16,17, analiza fenotypowa i lokalizacja przestrzenna podzbiorów limfocytów T specyficznych dla antygenu18,19,20,21,22,23. Opisana tutaj metoda nadaje się do badań, które mają na celu włączenie do swojej analizy ilościowej i fenotypowej limfocytów T CD8 + specyficznych dla antygenu mysiego w ich analizie.
Protokół
Wszystkie opisane metody zostały przeprowadzone zgodnie z austriackim Krajowym Prawem Doświadczeń na Zwierzętach ("Tierversuchsgesetz"), a austriackie władze krajowe udzieliły pozwolenia na próby na zwierzętach.
1. Przygotowanie buforu i pobieranie próbek
UWAGA: Użyty szczep myszy zależy od analizowanego epitopu. Wybierz odpowiedni tetramer, który wiąże się z typem MHC wyrażonym u myszy, np. H-2Kb dla myszy C57BL/6. Płeć i wiek zwierząt będą zależeć od pytania naukowego. W przypadku większości opisanych tutaj eksperymentów wykorzystuje się samice myszy w wieku 6–8 tygodni na początku eksperymentu, tj. pierwszego szczepienia.
- Przygotować bufor FACS (sól fizjologiczna buforowana fosforanami (PBS) + 1% płodowa surowica cielęca (FCS) + 0,1% azydek sodu + 2 mM kwas etylenodiaminotetraoctowy (EDTA) i bufor utrwalający FACS (1,5% (v/v) formaldehyd w PBS).
UWAGA: Zaleca się, aby oba były przygotowane wcześniej. Przechowywać w temperaturze 4 °C do czasu użycia. - Krew: Zbierz 20 μl krwi na mysz z żyły ogonowej myszy w probówkach pokrytych EDTA, jak opisano wcześniej24.
UWAGA: Krew może być również pobierana innymi drogami, np. żyłą twarzową lub zatoką zaoczodołową. Jednak metoda pobierania krwi musi być zgodna z krajowym prawem dotyczącym doświadczeń na zwierzętach i wnioskami o przeprowadzenie badań na zwierzętach. Pobieranie krwi z żyły ogonowej jest idealne do badań, w których wielokrotnie potrzebne są niewielkie ilości krwi. Do kontroli kompensacji i kontroli niepoplamionej wymagany jest dodatkowy materiał. - Śledziona: Wyizolować narząd i za pomocą tłoka strzykawki przecisnąć przez sitko do komórek o długości fali 70 nm i 40 μm. Wykonaj lizę erytrocytów, jak opisano w kroku 6 i policz. Dostosuj stężenie do 1 x 10⁷ komórek/ml w PBS. Na próbkę wymagane jest 1 x 10⁶ komórek.
UWAGA: Zawsze dołączaj niektóre udawane zwierzęta uodpornione lub uodpornione wektorem kontrolnym jako kontrolę negatywną. W przypadku tetrameru albuminy jaja kurzego (OVA) jako kontrolę pozytywną można użyć próbki od myszy OT-1. W obliczeniach nie zapomnij o niepoplamionych i kompensacyjnych kontrolkach. W razie potrzeby próbki pobrane od różnych zwierząt biorących udział w doświadczeniu mogą zostać w tym celu połączone. - Po pobraniu próbki bezpośrednio przystąp do barwienia.
2. Konfiguracja barwienia
- Przygotować jedną probówkę FACS dla każdej próbki. Prawidłowo oznaczyć probówki i przenieść 100 μl zawiesiny narządowej (1 x 10⁶ komórek) lub 20 μl krwi do każdej probówki.
- Śledziona: Wirować przez 5 minut przy 600 x g w temperaturze 4–8 °C i wyrzucić supernatant. Wir do ponownego zawieszenia osadu komórkowego.
UWAGA: Spowoduje to pozostałą objętość około 20 μl, podobną do objętości próbek krwi. - Dla każdego kanału, który ma być używany, należy również przygotować jedną rurkę FACS dla próbki kompensacyjnej. Przygotować jedną dodatkową próbkę jako niebarwioną próbę.
3. Barwienie tetramerowe
- Do każdej próbki należy użyć 50 μl rozcieńczenia tetrameru. Sugerowane tetramery i zoptymalizowane rozcieńczenia znajdują się w Tabeli 1.
UWAGA: Podczas pracy z tetramerami lub przeciwciałami należy wyłączyć światło w komorze bezpieczeństwa i chronić próbki przed światłem.- Przygotować probówkę z buforem FACS (objętość = 50 μl × liczba próbek plus dodatkowe 10% całkowitej objętości w celu skompensowania błędów pipetowania).
- Dodać tetramer(-y) w optymalnym rozcieńczeniu, jak podano w tabeli 1. Odwiruj roztwór.
UWAGA: W przypadku stosowania całego panelu przeciwciał (CD3, CD8, CD43, CD44, CD62L) z wymienionymi fluoroforami, można uwzględnić dwa tetramery (w PE i APC). Oba tetramery można połączyć w jednym barwieniu, tj. barwienie komórek obydwoma tetramerami można przeprowadzić jednocześnie.
| Tetramer | Sekwencja peptydowa | allel | Fluorofor | Rozcieńczeniu |
| MHC I/OVA | SIINFEKL SIINFEKL | H-2Kb | Apc | 1:25 |
| MHC I/VSV-NP | RGYVYQGL | H-2Kb | Pe | 1:25 |
| MHC I/EGFP | HYLSTQSAL | H-2Kd | Pe | 1:25 |
| MHC I/LCMV-GP | KAVYNFATC powiedział: | H-2Db | Apc | 1:25 |
| MHC I/HPV 16 E7 | RAHYNIVTF powiedział: | H-2Db | Apc | Godzina 1:10 |
Tabela 1: Sugerowane tetramery i optymalne rozcieńczenia. Zalecane tetramery dla niektórych immunodominujących peptydów modelowych antygenów (albuminy jaja kurzego (OVA) i wzmocnionego białka zielonej fluorescencji (eGFP)) lub składników patogennych (nukleoproteina (NP) wirusa pęcherzykowego zapalenia jamy ustnej (VSV), glikoproteina (GP) wirusa limfocytarnego zapalenia opon mózgowo-rdzeniowych (LCMV) i onkoproteina (E7) wirusa brodawczaka ludzkiego (HPV) (E7)). Dla każdego z nich wymieniona jest sekwencja peptydów i odpowiadający im allel, a także zalecany fluorofor i zoptymalizowane rozcieńczenie.
- Do każdej próbki dodać 50 μl rozcieńczenia tetrameru i delikatnie przetrząsnąć. Dodać tylko bufor FACS (bez tetrameru) do kontrol kompensacyjnych i do próbki niebarwionej.
- Próbki inkubować przez 20 minut w temperaturze 37 °C, chroniąc przed światłem. Aby zapewnić płynne przejście od barwienia tetrameru do barwienia przeciwciałami, należy przygotować mieszaninę przeciwciał zgodnie z opisem w kroku 4 w czasie inkubacji.
UWAGA: Dla każdego tetrameru z osobna należy dostosować optymalne warunki (rozcieńczenie, czas inkubacji i temperatura).
4. Przygotowanie przeciwciał
- Dla każdej próbki należy przygotować 50 μl mieszanki przeciwciał.
- Przygotować probówkę z buforem FACS (objętość = 50 μl × liczba próbek plus dodatkowe 10% całkowitej objętości w celu skompensowania błędów pipetowania).
- Dodać przeciwciała do rozcieńczeń, jak podano w tabeli 2.
UWAGA: W zależności od kwestii naukowej, mogą być stosowane inne kombinacje markerów oprócz opisanej tutaj. Upewnij się, że w panelu zawsze znajdują się przeciwciała przeciwko CD3 i CD8. - Wiruj roztwór.
| przeciwciało | Fluorofor | Rozcieńczeniu | μg/próbkę | marker |
| Płyta CD3 | PE-CY7 | 1:200 | 0,05 | CTL (CD3+CD8+) |
| CD8 | Błękit Pacyfiku | 1:750 | 0,013 | |
| Zobacz materiał V450 | 1:100 | 0,1 | ||
| Płyta CD43 | Międzynarodowa Federacja Piłki | 1:100 | 0,25 | Aktywacja (CD43+) |
| Płyta CD44 | PE-CY5 | 1:250 | 0,04 | Naiwny (CD44-CD62L+) i efektor (CD44+CD62L-) |
| Płyta CD62L | APC-CY7 | 1:500 | 0,02 |
Tabela 2: Przeciwciała stosowane w tym protokole i optymalne rozcieńczenia. Zalecane oznaczniki powierzchni (CD3, CD8, CD43, CD44 i CD62L) są wymienione w pierwszej kolumnie. Dla każdego z nich podano zalecany fluorofor, zoptymalizowane rozcieńczenie i ilość przeciwciała/próbki. W ostatniej kolumnie określony jest typ komórki identyfikowany z każdym znacznikiem.
- Przygotuj przeciwciała do kontroli kompensacyjnych. Do każdej kontroli kompensacyjnej należy użyć przeciwciała przeciwko CD8 w odpowiednim kolorze.
- Dla każdego kanału przygotować probówkę z 200 μl buforu FACS i dodać 1 μl przeciwciała przeciwko CD8 w rozcieńczeniu 1:200 w odpowiednim kolorze.
- Zwiruj rurki.
- Natychmiast przystąp do barwienia.
5. Barwienie próbek
- Próbki przemyć raz, dodając ~1 ml buforu FACS i odwirować przez 5 minut w temperaturze 600 x g w temperaturze 4–8 °C. Po odwirowaniu wyrzucić supernatant i odcedzić pozostały płyn na stosie ręczników papierowych.
UWAGA: Podczas pracy z krwią należy zachować ostrożność podczas spuszczania pozostałego płynu. Przed lizą erytrocytów krew nie przykleja się do dna probówki FACS. Alternatywnie odessać supernatant. - Dodać 50 μl mieszanki przeciwciał do każdej osadki komórkowej i delikatnie odwirować.
- Dodać 50 μl każdej mieszanki kompensacyjnej do osadu komórkowego odpowiedniej kontroli kompensacji i delikatnie odwirować.
- Dodać 50 μl buforu FACS do osadu komórkowego niebarwionej kontroli i delikatnie odwirować.
- Inkubować wszystkie próbki przez 30 minut w temperaturze 4 °C, chroniąc przed światłem.
- Podczas pracy z narządami: pomiń krok 6. Przemyć raz, dodając ~1–2 ml buforu FACS i odwirowywać przez 5 minut w temperaturze 600 x g w temperaturze 4–8 °C. Po odwirowaniu wyrzucić supernatant i odcedzić pozostałą ciecz na stosie ręczników papierowych.
- Podczas pracy z krwią: przejdź do kroku 6 (liza erytrocytów).
6. Liza erytrocytów
- Dodać 500 μl buforu ACK (Ammonium-Chloride-Potassium)25 do każdej próbki i delikatnie zawirować.
UWAGA: Bufor ACK doprowadzi do obrzęku osmotycznego i lizy, szczególnie erytrocytów. - Inkubować przez 5 minut w temperaturze pokojowej w ciemności.
- Dodać 1 ml buforu FACS i wirować przez 5 minut w temperaturze 600 x g w temperaturze 4–8 °C. Po odwirowaniu wyrzucić supernatant i odcedzić pozostałą ciecz na stosie ręczników papierowych.
Uwaga: Gdy osad jest raczej czerwony, powtórz lizę erytrocytów. - Przemyć raz, dodając ~1–2 ml buforu FACS i odwirować przez 5 minut w temperaturze 600 x g w temperaturze 4–8 °C. Po odwirowaniu wyrzucić supernatant i odcedzić pozostałą ciecz na stosie ręczników papierowych.
7. Pomiar i analiza cytometrii przepływowej
- Do każdej probówki dodać 150–300 μl buforu utrwalającego FACS i mieszać przez wirowanie. Na 20 μl krwi wystarczy 150 μl buforu.
UWAGA: Przed utrwaleniem upewnij się, że komórki są dobrze zawieszone, aby zapobiec tworzeniu się grudek. Kontynuuj pomiar cytometryczny przepływowy tak szybko, jak to możliwe. - Zmierz elementy sterujące kompensacją i skoryguj wszelkie nakładanie się widma.
- Ustaw bramki sekwencyjne, jak pokazano w Rysunek 1, aby wybrać komórki CD3+/CD8+.
- Bramka na limfocytach za pomocą rozpraszania do przodu i na boki (obszar) (skala nielogarytmiczna).
- W populacji limfocytów bramka na pojedynczych komórkach przy użyciu szerokości rozproszenia do przodu w funkcji obszaru (skala nielogarytmiczna).
- Wykreśl limfocyty jednokomórkowe za pomocą kanałów CD3 i CD8 (skala logarytmiczna). Zidentyfikuj limfocyty T CD8 + przez bramkowanie na komórkach CD3 + / CD8 +.
- Wykreśl komórki CD8 + i Tetramer+ i bramkę na komórkach Tetramer+ CD8 +, jak pokazano na Rysunek 2.
- Jeśli to możliwe, zapisz 20 000 komórek (co najmniej 5 000 komórek z krwi) w bramce CD3+/CD8+ dla każdej próbki i zapisz jako plik FCS.
UWAGA: Ilość komórek do zarejestrowania może być konieczna w celu dostosowania do częstotliwości komórek specyficznych dla antygenu, które są przedmiotem zainteresowania. - Analizuj pliki FCS za pomocą odpowiedniego oprogramowania analitycznego. Zastosować strategię bramkowania, jak opisano powyżej (sekcja 7.3) i określić ilościowo komórki tetrameru CD8 + .
Wyniki
Rycina 1 pokazuje, jak prawidłowo wyznaczyć bramkę dla komórek docelowych w tym protokole, a mianowicie CD3+/CD8+ komórki. Należy zauważyć, że komórki aktywowane często wykazują obniżenie ekspresji receptora limfocytów T26,27 i w związku z tym CD3niski komórki powinny zostać również uwzględnione w bramkowaniu. Po bramkowaniu CD3+/CD8+ komórek, można zidentyfikować komórki tetramer-dodatnie (Rysunek 2). Przedstawiono reprezentatywne analizy Western blot dla myszy w grupie kontrolnej ujemnej (naiwnej), a także dla zwierząt zaszczepionych albo adenowirusem typu 5 wydzielającym OVA (Adeno-OVA), albo VSV-GP wykazującym ekspresję OVA (VSV-GP-OVA). Jak widać na dolnych analizach, dwie różne tetramery można połączyć w jednej probówce do barwienia. Umożliwia to jednoczesną kwantyfikację dwóch różnych swoistości CTL: CTL swoistych dla wirusa (VSV N) oraz CTL swoistych dla transgenu (OVA). Potwierdzono, że barwienia pojedynczymi i podwójnymi tetramerami dają podobne wartości procentowe komórek dodatnich dla każdego tetrameru. Stosując ten protokół, inne swoiste dla wirusa (np.., LCMV GP, HPV 16 E7) lub specyficzne dla transgenu (np.., populacje limfocytów T (GFP) można analizować (Rycina uzupełniająca 1). W Tabela uzupełniająca 1, przedstawiono wyniki dla pięciu zwierząt po immunizacji VSV-GP-OVA — co wskazuje na powtarzalność barwienia tetramerami.
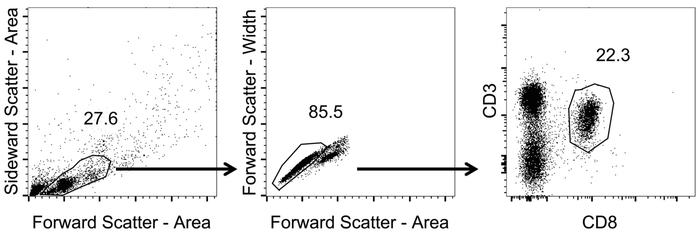
Rycina 1: Reprezentatywna strategia bramkowania do analizy limfocytów T CD8+ we krwi. Schematyczne przedstawienie strategii bramkowania zastosowanej w analizie cytometrycznej. Po barwieniu tetramerami i pomiarze cytometrycznym przeprowadzono analizę danych. Limfocyty zidentyfikowano na podstawie rozpraszania światła w przód i w bok (Area) (skala nielogarytmiczna). Z tej populacji wyselekcjonowano pojedyncze komórki, stosując szerokość względem pola rozpraszania w przód (skala nielogarytmiczna). Limfocyty T CD8+ zidentyfikowano poprzez bramkowanie komórek CD3+/CD8+ (skala logarytmiczna). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
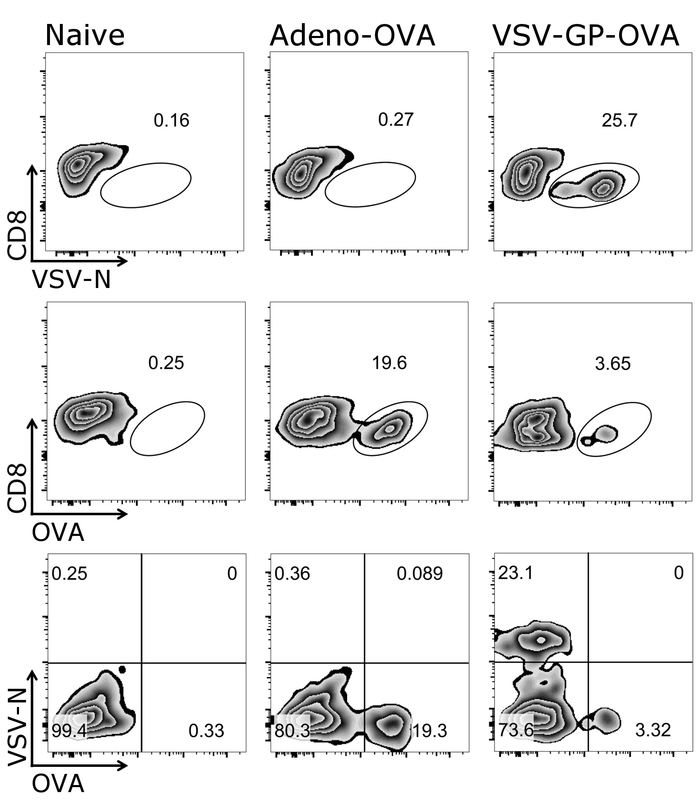
Rysunek 2: Reprezentatywna strategia bramkowania w celu ilościowego oznaczenia limfocytów T CD8+ specyficznych dla OVA i N we krwi. Schematyczne przedstawienie strategii bramkowania zastosowanej do ilościowego oznaczenia komórek tetramer+ metodą cytometrii przepływowej. Do analizy tetramerów wykorzystano komórki CD3+/CD8+. Panel górny i środkowy: marker CD8 naniesiono względem odpowiedniego tetrameru (skala logarytmiczna). Panel dolny: oba tetramery naniesiono względem siebie (skala logarytmiczna). Lewo: mysz kontrolna (naiwna); środek: mysz immunizowana wydzielającym OVA adenowirusem 5 (Adeno-OVA); prawo: mysz immunizowana VSV-GP wykazującym ekspresję owalbuminy (OVA) (VSV-GP-OVA). Krew pobrano z żyły ogonowej w 7. dniu po immunizacji. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rycina dodatkowa 1: Reprezentatywny wynik dla komórek CD3+/CD8+ tetramer+ po szczepieniu. Schematyczne przedstawienie ilościowego oznaczenia komórek tetramer+ metodą cytometrii przepływowej. Do analizy tetramerów wykorzystano komórki CD3+/CD8+, a marker CD8 naniesiono na oś przeciwko odpowiedniemu tetramerowi (skala logarytmiczna). Lewo: myszy naiwne, prawo: myszy immunizowane VSV-GP (panel górny), VSV-GP wykazującym ekspresję wzmocnionego zielonego białka fluorescencyjnego (eGFP) (panel środkowy) lub VSV-GP wykazującym ekspresję onkoproteiny E7 wirusa brodawczaka ludzkiego (HPV) (E7) (panel dolny). Krew pobrano z żyły ogonowej w 7. dniu po immunizacji i barwiono tetramerami (LCMV-GP, eGFP oraz HPV E7). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Istotną zaletą opisanego tutaj protokołu jest możliwość śledzenia odpowiedzi limfocytów T u tej samej myszy w czasie, ponieważ do każdego pomiaru wymagane są jedynie niewielkie ilości krwi. Rysunek 3 przedstawia przykładowe wyniki odpowiedzi limfocytów T w czasie. Oprócz ilości antygenowo swoistych CTL, za pomocą tego protokołu można przeanalizować również ich fenotyp (Rysunek 4).
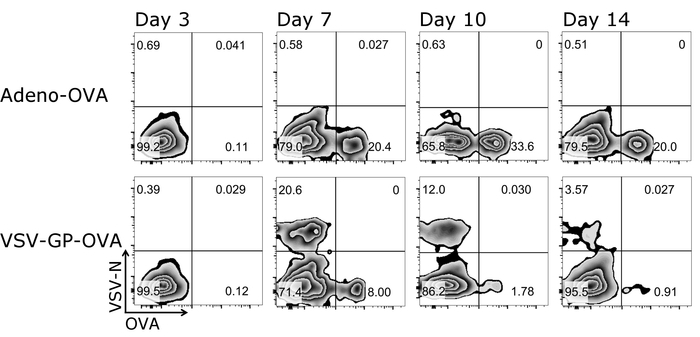
Rycina 3: Reprezentatywny wynik kinetyki limfocytów T CD8+ we krwi po szczepieniu. Schematyczna reprezentacja strategii bramkowania zastosowanej do ilościowego oznaczenia komórek tetramer+ za pomocą cytometrii przepływowej. Do analizy tetramerów wykorzystano komórki CD3+/CD8+ i oba tetramery naniesiono na przeciwległe osie (skala logarytmiczna). Panele górne: mysz została zaszczepiona Adenowirusem 5 wydzielającym OVA (Adeno-OVA); panele dolne: mysz została zaszczepiona VSV-GP wykazującym ekspresję owalbuminy (OVA) (VSV-GP-OVA). Krew pobierano z żyły ogonowej w 3, 7, 10 i 14 dniu po immunizacji. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 4: Reprezentatywny wynik aktywacji limfocytów T CD8+ i ich różnicowania w komórki naiwne oraz efektorowe po szczepieniu. Schematyczna prezentacja strategii bramkowania zastosowanej do ilościowego oznaczenia za pomocą cytometrii przepływowej komórek CD3+/CD8+ aktywowanych (CD43+), naiwnych (CD44-/CD62L+) i efektorowych (CD44+/CD62L-) (skala logarytmiczna). Lewo: mysz kontrolna (naiwna); środek: mysz immunizowana Adenowirusem 5 wydzielającym OVA (Adeno-OVA); prawo: mysz immunizowana VSV-GP wykazującym ekspresję owalbuminy (OVA) (VSV-GP-OVA). Krew pobrano z żyły ogonowej w 7. dniu po immunizacji. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
| Mysz nr | % CD43+ | % Tetramer VSV-N+ | % Tetramer OVA+ | |
| symulacja | 1 | 1.7 | 0.45 | 0.41 |
| 2 | 0.77 | 0.69 | 0.15 | |
| 3 | 1.34 | 0.35 | 0.31 | |
| 4 | 1.68 | 0.83 | 0.26 | |
| 5 | 0.84 | 0.47 | 0.23 | |
| VSV-GP-OVA | 1 | 23 | 13.2 | 3.69 |
| 2 | 32.6 | 15.9 | 3.54 | |
| 3 | 22.1 | 11.7 | 2.43 | |
| 4 | 15.1 | 8.89 | 1.79 | |
| 5 | 29.1 | 14.7 | 5.64 |
Tabela uzupełniająca 1: Procenty aktywowanych i swoistych dla antygenu komórek CD3+/CD8+ po szczepieniu. Myszy były naiwne lub immunizowane VSV-GP wykazującym ekspresję owalbuminy (OVA) (VSV-GP-OVA) (n = 5). Krew pobrano z żyły ogonowej w 7. dniu po immunizacji i barwiono tetramerami (VSV-N i OVA). Aktywowane (CD43+) i swoiste dla antygenu (tetramer+) komórki CD3+/CD8+ ilościowo określono za pomocą cytometrii przepływowej.
Dyskusja
Barwienie tetramerów jest dość prostym i nieskomplikowanym protokołem analizy fenotypu i swoistości peptydowej limfocytów T. Wykorzystanie krwi do analizy, jak opisano tutaj, jest minimalnie inwazyjne i pozwala na ciągłe monitorowanie, na przykład w badaniach nad szczepieniami. W dziedzinie szczepień interesujące jest ilościowe określenie odpowiedzi specyficznych dla wektorów i antygenów, ponieważ odpowiedzi specyficzne dla wektora mogą utrudniać skuteczną odpowiedź immunologiczną przeciwko antygenowi szczepionkowemu28. Warto zauważyć, że dzięki opisanemu tutaj protokołowi obie populacje mogą być oznaczane ilościowo jednocześnie w jednym barwieniu tetramerowym, zmniejszając w ten sposób zmienność barwienia i ilość próbek. Należy jednak wykonać kilka kroków ostrożnie, aby zapewnić prawidłowy pomiar i wiarygodne dane. Jeśli do analizy używa się krwi z żyły ogonowej, należy upewnić się, że zwierzęta zostały wstępnie ogrzane, aby wywołać rozszerzenie naczyń krwionośnych24. W ten sposób można w krótkim czasie zebrać wystarczającą ilość krwi, zmniejsza się stres u zwierząt, a analiza jest znacznie lepsza w porównaniu z powolnym pobieraniem krwi. Ponadto po pobraniu próbki (krwi lub narządów) zaleca się bezpośrednie barwienie, aby uniknąć fałszywie ujemnych wyników z powodu regulacji w dół TCR. To samo dotyczy wszystkich kolejnych kroków: procedura nie powinna być przerywana, a wszystkie etapy mycia ograniczone do minimalnej liczby (zgodnie z protokołem). Aby zapewnić prawidłowe barwienie, należy zadbać o wirowanie wszystkich roztworów i próbek przed i po inkubacji. Jest to szczególnie ważne przed utrwaleniem próbek, aby uniknąć zlepiania się komórek.
Jeśli chodzi o modyfikację protokołu, można zastosować inne markery powierzchniowe i tetramery, w zależności od celu analizy. Jednak wszystkie odczynniki muszą być wtedy miareczkowane, optymalnie w połączeniu z całym panelem barwiącym. Dla niektórych z wymienionych tutaj tetramerów optymalizacja wykazała, że możemy zwiększyć rozcieńczenie zalecane przez producenta (zalecane 1:10, zoptymalizowane 1:25) (Tabela 1). Aby skompensować nakładanie się widma, zamiast barwionych komórek można użyć koralików kompensacyjnych. Jeśli chodzi o wybór fluorochromu sprzężonego z tetramerami, należy rozważyć użycie jasnych fluorochromów, ponieważ ułatwia to wykrywanie - zwłaszcza gdy sygnał jest słaby. Jako Dolton i współpracownicy29 wolimy używać tetramerów sprzężonych z PE lub APC, które można doskonale połączyć w pojedynczym barwieniu, a limfocyty T CD8 + o pojedynczej specyficzności antygenowej mogą być ładnie wykryte (Figura 2). Jeśli chodzi o temperaturę i czas inkubacji, istnieją różne warunki barwienia tetramerów. W naszym procesie optymalizacji zajęliśmy się tym problemem i przeprowadziliśmy barwienie tetramerem w różnych warunkach (np. 4 °C, temperatura pokojowa lub 37 °C). Na podstawie uzyskanych wyników zalecamy barwienie przez 20 minut w temperaturze 37 °C, co jest zgodne z literaturą30,31. Należy unikać długotrwałej inkubacji, ponieważ może to prowadzić do internalizacji tetrameru30 i wyników fałszywie ujemnych.
Wybór odpowiedniego przeciwciała do wykrywania komórek CD8+ to kolejna ważna kwestia, która musi być dokładnie przemyślana (i potencjalnie dostosowana). Wynika to z faktu, że niektóre klony przeciwciał anty-CD8 blokują wiązanie tetramerów z TCR, zarówno w próbkach ludzkich32 , jak imysich 33 . Do naszego protokołu barwienia tetramerów wybraliśmy klon 53-6,7 do barwienia mysich komórek CD8 + - klon, który nie blokuje, ale raczej wzmacnia barwienie tetramerów.
Barwienie tetramerów jest raczej nieskomplikowane, gdy analizujemy na przykład wyraźne odpowiedzi immunologiczne w szczycie odpowiedzi limfocytów T. Mogą jednak istnieć populacje, które są nieco bardziej "problematyczne". Takimi przykładami są komórki specyficzne dla antygenów o niskim powinowactwie (nowotwór, jaźń), niedawno aktywowane komórki, które następnie obniżyły swoje receptory lub rzadkie podzbiory komórek (np. naiwne populacje komórek prekursorowych lub pamięciowych). W takich przypadkach klasyczny protokół barwienia tetramerów może wymagać ulepszenia lub połączenia z innymi metodami. Na przykład inhibitor kinazy białkowej (PKI) dazatynib hamuje internalizację TCR i może być włączony przed barwieniem tetramerów. Tetramery można również ustabilizować poprzez włączenie antyfluorochromowego niesprzężonego pierwotnego Abs po barwieniu tetramerem. Dodatkowo intensywność fluorescencji można zwiększyć przez dodanie drugiego Ab sprzężonego z fluorochromem anty-AbAb 29,34,35,36. Zoptymalizowaliśmy warunki selektywnie dla tetramerów określonych w tym protokole i nie uwzględniliśmy PKI ani dodatkowych Abs. Jednak w przypadku każdego innego tetrameru optymalne warunki muszą być dostosowane indywidualnie. W odniesieniu do rzadkich populacji, barwienie tetramerami może wymagać połączenia ze wzbogacaniem magnetycznym11.
Aby ułatwić i zwalidować analizę FACS barwienia tetramerów, należy uwzględnić kontrole ujemne i pozytywne. W ramach kontroli negatywnej zawsze barwimy komórki naiwnej myszy tego samego szczepu naszym interesującym nas tetramerem. Alternatywnie, próbki można barwić tetramerami z nieistotnymi peptydami, ale tym samym fluorochromem, co tetramer będący przedmiotem zainteresowania. Takie kontrole są niezbędne, aby wykluczyć sygnały fałszywie dodatnie, np. pochodzące z umierających komórek. Oprócz tego zaleca się dołączenie żywej/martwej plamy, takiej jak jodek propidyny (PI). Ma to szczególne znaczenie, jeśli komórki nie są barwione bezpośrednio po izolacji. Inną strategią usuwania tła autofluorescencji może być włączenie kilku markerów innych niż limfocyty T w jednym kanale. Wykluczając komórki dodatnie w tym kanale, można wykluczyć populacje komórek innych niż T. Jako kontrolę pozytywną próbkę od myszy OT-1 można wykorzystać na przykład do tetrameru OVA. W przypadku innych tetramerów należy to dobrać indywidualnie (np. próbka od myszy, która była kilkakrotnie uodparniana). Podobnie jak inne37, obserwujemy również regulację w dół receptora CD8 podczas aktywacji CTL w 7 dniu odpowiedzi efektorowych limfocytów T. Dlatego, aby uniknąć utraty aktywowanych efektorowych limfocytów T tetrameru + , zalecamy uwzględnienie w analizieniskich komórek CD8 (przynajmniej w przypadku pomiaru w fazie efektorowej).
Jakość i ilość informacji, które można uzyskać z tego protokołu, zależy od wiedzy na temat badanego antygenu, dostępności i swoistości tetrameru oraz jakości maszyny FACS (liczba dostępnych laserów i detektorów). W przypadku pracy z próbkami zwierzęcymi zmienność odpowiedzi immunologicznej jest naturalna i nieunikniona. Dlatego, aby uzyskać znaczące wyniki barwienia tetramerami, należy przeanalizować co najmniej 3-5 zwierząt. Jeśli tak się stanie, opisany tutaj protokół da wiarygodne i powtarzalne wyniki (przykładowy wynik z jednego eksperymentu można znaleźć w tabeli uzupełniającej 1). Jak wspomniano wcześniej, metoda ta doskonale nadaje się do ilościowego określania fenotypu i swoistości antygenowej limfocytów T CD8 + (Figura 3, 4; Rysunek uzupełniający 1), nie tylko u myszy, ale także u ludzi. Jednak, aby przeanalizować funkcje efektorowe limfocytów T CD8 + , takie jak śmierć komórki indukowana granzymem, należy wykonać ICS i / lub ELISpot. Należy jednak pamiętać, że funkcje limfocytów T, mierzone za pomocą stymulacji in vitro, mogą nie odzwierciedlać rzeczywistej sytuacji in vivo. In vivo środowisko supresyjne może zapobiegać funkcjom komórek T, które są mierzone in vitro.
Barwienie tetramerów samo w sobie nie dostarcza wszystkich informacji, ale ewoluowało, aby stać się niezbędną metodą charakteryzowania odpowiedzi limfocytów T i ilościowego określania podzbiorów limfocytów T in vitro w bardzo czuły sposób38. Tetramery nie mogą być używane tylko do ilościowego oznaczania pewnych podzbiorów, ale także do izolowania tych39, lokalizowania ich przez hybrydyzację in situ19,20 i badania antygenów o niskim powinowactwie, takich jak związane z nowotworem40,41. Od czasu odkrycia technologii tetramerów4 barwienie tetramerów stało się podstawowym narzędziem w analizie limfocytów T i zakresie zastosowań.
Oświadczenia
Dorothee von Laer jest wynalazcą VSV-GP i posiada mniejszościowe udziały w firmie biotechnologicznej ViraTherapeutics GmbH, która posiada prawa własności intelektualnej do VSV-GP. W przypadku pozostałych autorów nie istnieją konkurencyjne interesy finansowe.
Podziękowania
Ten projekt został sfinansowany przez Austriacki Fundusz Naukowy FWF (numer projektu P 25499-B13) oraz program Unii Europejskiej Horyzont 2020 w zakresie badań i innowacji na podstawie umowy o grant nr 681032. Za pośrednictwem NIH Tetramer Core Facility uzyskano następujący odczynnik: Tetramer MHC klasy I do nukleoproteiny wirusa pęcherzykowego zapalenia jamy ustnej (RGYVYQGL).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Szafa bezpieczeństwa klasy 2 | VWR | LBCP302411030 | |
| Cytometr przepływowy (np. FACSCanto II) | BD | 338962 | |
| Platforma analityczna do analizy metodą cytometrii przepływowej (np. FlowJo) | Fisher Scientific Co. L.L.C. | ||
| Mikroskopy dwuokularowe, VisiScope 100 | VWR | 630-1553 | |
| Mieszalnik wirowy | Phoenix Instrument | RS-VA 10 | |
| Wirówka przystosowana do probówek FACS (np. Rotanta 460R) | Hettich | 5660 | |
| Sterylne ostrza skalpela Nr 10 | Braun | BB510 | |
| Sitko do komórek 40 µ m | Sitko komórkowe Sigma | CLS431750 | |
| 70 µ m | Komora licząca Sigma | CLS431751 | |
| Neubauer | VWR | 630-1506 | |
| Pipety (20 μ L, 200 i mikro; L oraz 1000 μ L) | Eppendorf | 4924000037, 4924000061, 4924000088 | |
| Końcówki do pipet, sterylne (20 &mikro; L, 200 i mikro; L, 1,000 i mikro; L) | Biozym | 770050, 770200, 770400 | |
| Pipet Boy | Integra | 155 000 | |
| Sterylne pipety (5 mL, 10 mL, 25 mL) | Sarstedt | 86.1253.001, 86.1254.001, 86.1685.001 | |
| Pipeta wielostopniowa, HandyStep S | BRAND | 705110 | |
| 12,5 mL Końcówki Combi do pipet wieloetapowych | BrandTech Scientific | 702378 | |
| Microvette CB 300 K2E | Sarstedt | 16.444 | |
| Sterylne probówki reakcyjne (1,5 mL, 50 mL) | Probówki FACS Sarstedt | 72.692.005, 62.547.254 | |
| niesterylne) | Szabo Scandic | BDL352008 | |
| PBS | Lonza | LONBE17-516F | |
| Inaktywowany termicznie FCS | ThermoFisher Scientific | 10500064 | |
| Formaldehyd | Roth | 4979.1 | |
| Azydek sodu | Roth | K305.1 | |
| PE-Cy7 Szczurzy kompleks molekularny przeciw myszom CD3 | 560591 | klon 17A2; Część # 7235504 | |
| Pacific Blu Rat Anti-Mouse CD8a | BD | 558106 | klon 53-6.7; Część # 5058904 |
| V450 Szczur anty-Myszy CD8a | BD 560469 | Klon 53-6.7; Lot # 5205945 | |
| FITC anty-mysz CD43 | BioLegend | 121206 | Klon 1B11; Część # B233778 |
| PE-Cy5 Szczur Anty-Myszy CD44 | BD | 553135 | Klon IM7; Numer pojazdu # 85660 |
| APC-Cy7 Szczur Anty-Myszy CD62L | BD | 560514 | Klon MEL-14; Część # 7215801 |
| OVA-tetramer/APC | MBL | TB-5001-2 | SIINFEKL, H-2Kb; Część # T1702008 |
| VSV NP-tetramer/PE | MBL | TS-M529-1 | RGYVYQGL, H-2Kb; Numer pojazdu # 007 |
| EGFP-tetramer/PE | MBL | TS-M525-1 | HYLSTQSAL, H-2Kd; Numer pojazdu # 004 |
| LCMV-GP-tetramer/APC | MBL | TB-5002-2 | KAVYNFATC, H-2Db; Lot # T1412006 |
| HPV 16 E7-tetramer/APC | MBL | TB-5008-2 | RAHYNIVTF, H-2Db; Część # T1804003 |
Bibliografia
- Tober, R., et al. VSV-GP: a potent viral vaccine vector that boosts the immune response upon repeated applications. Journal of virology. 88 (9), 4897-4907 (2014).
- Muik, A., et al. Re-engineering vesicular stomatitis virus to abrogate neurotoxicity, circumvent humoral immunity, and enhance oncolytic potency. Cancer Reseaerch. 74 (13), 3567-3578 (2014).
- Eales, L. J., Farrant, J., Helbert, M., Pinching, A. J. Peripheral blood dendritic cells in persons with AIDS and AIDS related complex: loss of high intensity class II antigen expression and function. Clinical and Experimental Immunology. 71, 423-427 (1988).
- Altman, J. D., et al. Phenotypic analysis of antigen-specific T lymphocytes. Science. 274 (5284), 94-96 (1996).
- Tetramers and Monomers. , Available from: https://www.mblintl.com/products/research/monomer-tetramers/filter/product_type/monomer,peptide,tetramer (2016).
- NIH Tetramer Core Facility. , Available from: http://tetramer.yerkes.emory.edu/ (2010).
- Class I MHC Tetramer Preparation: Overview. , Available from: http://tetramer.yerkes.emory.edu/support/protocols (2010).
- Wolfl, M., et al. Quantitation of MHC tetramer-positive cells from whole blood: evaluation of a single-platform, six-parameter flow cytometric method. Cytometry A. 57 (2), 120-130 (2004).
- Burrows, S. R., et al. Peptide-MHC class I tetrameric complexes display exquisite ligand specificity. The Journal of Immunology. 165 (11), 6229-6234 (2000).
- Sims, S., Willberg, C., Klenerman, P. MHC-peptide tetramers for the analysis of antigen-specific T cells. Expert Review of Vaccines. 9 (7), 765-774 (2010).
- Legoux, F. P., Moon, J. J. Peptide:MHC tetramer-based enrichment of epitope-specific T cells. The Journal of Visualized Experiments. (68), (2012).
- Xie, Y., et al. A novel T cell-based vaccine capable of stimulating long-term functional CTL memory against B16 melanoma via CD40L signaling. Cellular & Molecular Immunology. 10 (1), 72-77 (2013).
- Nanjundappa, R. H., Wang, R., Xie, Y., Umeshappa, C. S., Xiang, J. Novel CD8+ T cell-based vaccine stimulates Gp120-specific CTL responses leading to therapeutic and long-term immunity in transgenic HLA-A2 mice. Vaccine. 30 (24), 3519-3525 (2012).
- Bowers, E. V., Horvath, J. J., Bond, J. E., Cianciolo, G. J., Pizzo, S. V. Antigen delivery by alpha(2)-macroglobulin enhances the cytotoxic T lymphocyte response. Journal of Leukocyte Biology. 86 (2), 1259-1268 (2009).
- Guo, H., Baker, S. F., Martinez-Sobrido, L., Topham, D. J. Induction of CD8 T cell heterologous protection by a single dose of single-cycle infectious influenza virus. The Journal of Immunology. 88 (20), 12006-12016 (2014).
- Sakai, K., et al. Dendritic cell-based immunotherapy targeting Wilms' tumor 1 in patients with recurrent malignant glioma. Journal of Neurosurgery. 123 (4), 989-997 (2015).
- Rosaely, C. G., et al. Immune responses to WT1 in patients with AML or MDS after chemotherapy and allogeneic stem cell transplantation. International Journal of Cancer. 138 (7), 1792-1801 (2016).
- Shane, H. L., Reagin, K. L., Klonowski, K. D. The Respiratory Environment Diverts the Development of Antiviral Memory CD8 T Cells. The Journal of Immunology. , (2018).
- Li, S., Mwakalundwa, G., Skinner, P. J. In Situ MHC-tetramer Staining and Quantitative Analysis to Determine the Location, Abundance, and Phenotype of Antigen-specific CD8 T Cells in Tissues. The Journal of Visualized Experiments. (127), e56130(2017).
- De Vries, I. J. M., et al. In situ detection of antigen-specific T cells in cryo-sections using MHC class I tetramers after dendritic cell vaccination of melanoma patients. Cancer Immunology Immunotherapy. 56 (10), 1667-1676 (2007).
- Tan, H. X., et al. Induction of vaginal-resident HIV-specific CD8 T cells with mucosal prime-boost immunization. Mucosal Immunology. , (2017).
- Huang, H., et al. CD8(+) T Cell Immune Response in Immunocompetent Mice during Zika Virus Infection. Journal of Virology. 91 (22), (2017).
- Hensel, M. T., et al. Selective Expression of CCR10 and CXCR3 by Circulating Human Herpes Simplex Virus-Specific CD8 T Cells. Journal of Virology. 91 (19), (2017).
- Diehl, K. H., et al. A good practice guide to the administration of substances and removal of blood, including routes and volumes. Journal of Applied Toxicology. 21 (1), 15-23 (2001).
- ACK Lysis Buffer. , Available from: http://www.cshprotocols.cshlp.org/content/2014/11/pdb.rec083295.short (2014).
- San Jose, E., Borroto, A., Niedergang, F., Alcover, A., Alarcon, B. Triggering the TCR complex causes the downregulation of nonengaged receptors by a signal transduction-dependent mechanism. Immunity. 12 (2), 161-170 (2000).
- Dietrich, J., Hou, X., Wegener, A. M., Geisler, C. CD3 gamma contains a phosphoserine-dependent di-leucine motif involved in down-regulation of the T cell receptor. EMBO Journal. 13 (9), 2156-2166 (1994).
- Schone, D., et al. Immunodominance of Adenovirus-Derived CD8(+) T Cell Epitopes Interferes with the Induction of Transgene-Specific Immunity in Adenovirus-Based Immunization. Journal of Virology. 91 (20), (2017).
- Dolton, G., et al. More tricks with tetramers: a practical guide to staining T cells with peptide–MHC multimers. Immunology. 146 (1), 11-22 (2015).
- Whelan, J. A., et al. Specificity of CTL Interactions with Peptide-MHC Class I Tetrameric Complexes Is Temperature Dependent. The Journal of Immunology. 163 (8), 4342-4348 (1999).
- Wooldridge, L., et al. Tricks with tetramers: how to get the most from multimeric peptide–MHC. Immunology. 126 (2), 147-164 (2009).
- Denkberg, G., Cohen, C. J., Reiter, Y. Critical role for CD8 in binding of MHC tetramers to TCR: CD8 antibodies block specific binding of human tumor-specific MHC-peptide tetramers to TCR. The Journal of Immunology. 167 (1), 270-276 (2001).
- Daniels, M. A., Jameson, S. C. Critical role for CD8 in T cell receptor binding and activation by peptide/major histocompatibility complex multimers. The Journal of Experimental Medicine. 191 (2), 335-346 (2000).
- Tungatt, K., et al. Antibody stabilization of peptide-MHC multimers reveals functional T cells bearing extremely low-affinity TCRs. The Journal of Immunology. 194 (1), 463-474 (2015).
- Lissina, A., et al. Protein kinase inhibitors substantially improve the physical detection of T-cells with peptide-MHC tetramers. Journal of Immunological Methods. 340 (1), 11-24 (2009).
- Rius, C., et al. Peptide-MHC Class I Tetramers Can Fail To Detect Relevant Functional T Cell Clonotypes and Underestimate Antigen-Reactive T Cell Populations. The Journal of Immunology. 200 (7), 2263-2279 (2018).
- Xiao, Z., Mescher, M. F., Jameson, S. C. Detuning CD8 T cells: down-regulation of CD8 expression, tetramer binding, and response during CTL activation. The Journal of Experimental Medicine. 204 (11), 2667-2677 (2007).
- McMichael, A. J., O'Callaghan, C. A. A New Look at T Cells. The Journal of Experimental Medicine. 187 (9), 1367-1371 (1998).
- Hunsucker, S. A., et al. Peptide/MHC tetramer-based sorting of CD8(+) T cells to a leukemia antigen yields clonotypes drawn nonspecifically from an underlying restricted repertoire. Cancer Immunology Research. 3 (3), 228-235 (2015).
- Pittet, M. J., et al. Ex vivo analysis of tumor antigen specific CD8+ T cell responses using MHC/peptide tetramers in cancer patients. International Immunopharmacology. 1 (7), 1235-1247 (2001).
- Cohen, C. J., et al. Isolation of neoantigen-specific T cells from tumor and peripheral lymphocytes. The Journal of Clinical Investigation. 125 (10), 3981-3991 (2015).
Przedruki i uprawnienia
