Wprowadzamy nowatorski przepływ pracy do badań tkanki mózgowej za pomocą mikroskopii elektronowej. Metoda pozwala użytkownikowi na bezstronne badanie cech neuronalnych. Do analizy elementarnej przedstawiamy również skrypt, który automatyzuje większość przepływu pracy dla losowego próbkowania.
Artykuł metodologiczny
Bezstronne podejście do pobierania próbek z odcinków TEM w neuronauce
W tym artykule
Podsumowanie
Streszczenie
Badania ultrastrukturalnych cech neuronów i ich synaps są możliwe tylko za pomocą mikroskopii elektronowej. Szczególnie w przypadku badań porównawczych zmian gęstości i rozkładu takich cech, bezstronny protokół pobierania próbek ma zasadnicze znaczenie dla uzyskania wiarygodnych wyników. W tym miejscu przedstawiamy przebieg procesu pozyskiwania obrazów próbek mózgu. Przepływ pracy umożliwia systematyczne, jednolite losowe pobieranie próbek w określonym obszarze mózgu, a obrazy mogą być analizowane za pomocą disektora. Technika ta jest znacznie szybsza niż obszerne badanie przekrojów seryjnych, ale nadal stanowi wykonalne podejście do szacowania gęstości i rozkładów cech ultrastruktury. Przed osadzeniem wykorzystano barwione skrawki wibratomu jako odniesienie do identyfikacji badanego obszaru mózgu, co pomogło przyspieszyć cały proces przygotowania próbki. Podejście to wykorzystano w badaniach porównawczych badających wpływ środowiska wzbogaconego mieszkania na kilka parametrów ultrastrukturalnych w mózgu myszy. Opierając się na udanym wykorzystaniu przepływu pracy, dostosowaliśmy go do celów analizy elementarnej próbek mózgu. Zoptymalizowaliśmy protokół pod kątem czasu interakcji użytkownika. Automatyzacja wszystkich czasochłonnych kroków poprzez kompilację skryptu dla oprogramowania open source SerialEM pomaga użytkownikowi skupić się na głównej pracy polegającej na pozyskiwaniu map elementarnych. Podobnie jak w pierwotnym przepływie pracy, zwróciliśmy uwagę na bezstronne podejście do pobierania próbek, aby zagwarantować wiarygodne wyniki.
Wprowadzenie
W mikroskopii elektronowej często trudno jest pobrać próbki reprezentatywnych obszarów w obrębie sekcji. My, jako obserwatorzy, często jesteśmy stronniczy, aby patrzeć na konkretne regiony, na które zwróciliśmy uwagę przez rzucające się w oczy cechy próbki, co uniemożliwia dobrze rozłożone, bezstronne pobieranie próbek. Błędu systematycznego próbkowania można uniknąć tylko wtedy, gdy każda część obszaru zainteresowania ma taką samą szansę na znalezienie się w mikrofotografii elektronowej1. Możliwe jest uniknięcie błędu systematycznego próbkowania bez rozwiązania programowego, na przykład poprzez ręczne przesuwanie trackballa mikroskopu bez patrzenia na obraz, tak aby wybrać obszary próbkowania w miejscu, w którym stolik się zatrzymuje. Ale ściśle mówiąc, nie jest to procedura przypadkowa, ponieważ świadomie lub podświadomie użytkownik może mieć wpływ na ruch sceny, a co więcej, nie jest to wyrafinowany sposób wyboru regionów próbkowania. Losowe pobieranie próbek staje się szczególnie ważne, jeśli pary sekcji są używane do oceny liczby struktur w określonej objętości, na przykład w przypadku stereology1, co wymaga par sekcji w znanej odległości od siebie. Możliwe byłoby również przyjrzenie się tylko pojedynczemu przekrojowi i oszacowanie liczby konkretnych struktur2, ale przy takim podejściu badacze mają tendencję do przeszacowywania gęstości liczbowej większych struktur, chyba że struktury są bardzo małe w porównaniu z grubością przekroju. Alternatywnym podejściem jest rekonstrukcja objętości tkanki z odcinków seryjnych i uzyskanie w ten sposób pożądanych danych3. Jest to jednak bardzo czasochłonne i niewykonalne podejście dla (większych) badań porównawczych.
Aby przezwyciężyć te problemy, opracowaliśmy procedurę, która pozwala badaczowi automatycznie wybierać próbki do uzyskania mikrofotografii elektronów w regularnych odstępach między ultracienkimi sekcjami. Położenie mikrofotografii elektronowych jest losowe, co pozwala na bezstronne pobieranie próbek. Podejście to jest odpowiednie zarówno do określania gęstości liczbowych struktur (na przykład synaps w określonej objętości neuropilu4,5), jak i wymiarów cech strukturalnych (na przykład szerokości szczeliny synaptycznej lub średnicy gęstości postsynaptycznej4,5).
Przepływ pracy wykorzystuje specjalnie wykonane oprogramowanie do losowego próbkowania punktów (RPS) (napisane w skrypcie Java przy użyciu oprogramowania do skryptów dostarczonego z naszym mikroskopem), które automatycznie oblicza pozycje siatki w predefiniowanym obszarze zainteresowania w ultracienkim przekroju. Oprogramowanie RPS przenosi stolik mikroskopu elektronowego do tych predefiniowanych punktów, dzięki czemu w każdym punkcie można wykonać mikrofotografię elektronową. Najpierw użytkownik definiuje obszar zainteresowania w cienkim przekroju. Następnie oprogramowanie RPS oblicza pozycje siatki w tym regionie. Współrzędne x/y pierwszej pozycji są tworzone losowo, a pozostałe pozycje są umieszczane w regularnych odstępach siatki w stosunku do pierwszej pozycji. Ponieważ każda część obszaru zainteresowania ma taką samą szansę na zbadanie, pozwala to na minimalne gromadzenie danych. Takie podejście do próbkowania jest również nazywane systematycznym jednolitym próbkowaniem losowym (więcej szczegółów można znaleźć w references6,7).
Aby określić gęstości liczbowe konstrukcji, pracujemy z parami sekcji, które są oddalone od siebie o znanej odległości. Po uzyskaniu mikrofotografii elektronowej z pierwszej sekcji w jednej z wcześniej ustalonych pozycji, oprogramowanie TEM Serial Section (część pakietu oprogramowania dostarczanego z naszym mikroskopem elektronowym) przemieszcza się do odpowiedniego punktu w drugiej sekcji, w celu uzyskania mikrofotografii elektronowej odpowiedniego miejsca. Jest to powtarzane dla każdej lokalizacji w ustalonej siatce. W naszym podejściu disekcja służy do zliczania liczby cząstek w każdej parze mikrografów elektronowych8,9. Disektor składa się z pary ramek zliczających, po jednej dla każdej sekcji8,9. Gęstość liczbowa obiektów jest określana przez zliczanie tylko obiektów widocznych w pierwszej sekcji (lub sekcji odniesienia), ale nie w drugiej sekcji (lub sekcji odnośnika). Pozwala to na szybkie i efektywne oszacowanie gęstości numerycznych obiektów8,9. Dodatkowo na pojedynczych przekrojach można mierzyć dwuwymiarowe cechy konstrukcyjne.
Z powodzeniem zastosowaliśmy ten proces roboczy do oceny różnic w liczbie synaps w hipokampie myszy narażonych na warunki pomieszczeń w środowisku wzbogaconym (EE) w porównaniu do warunków pomieszczenia w środowisku standardowym (SE)4,5, a także do oceny ultrastrukturalnych różnic między myszami typu dzikiego (WT) a myszami z neuropeptydem Y (NPY) ko trzymanymi w warunkach SE i EE5. Naszym celem było przyjrzenie się w szczególności cechom strukturalnym neuronów, takim jak numeryczna gęstość synaptyczna, długości strefy aktywnej w przekrojach poprzecznych i gęstość postsynaptyczna, szerokość szczeliny synaptycznej i liczba pęcherzyków synaptycznych, w celu oceny zmian w łączności neuronalnej i aktywacji między różnymi warunkami eksperymentalnymi. Dodatkowo interesowała nas gęstość liczbowa pęcherzyków o gęstym rdzeniu (DCV) w neuronach, aby określić ilość zmagazynowanych neuropeptydów w określonym obszarze mózgu.
Opierając się na sukcesie naszego podejścia do badań opisanych powyżej, w naszym następnym kroku dostosowaliśmy nasz przepływ pracy, aby wybrać obszary do bezstronnych analiz pierwiastkowych w próbkach ludzkiego mózgu. Dokonano tego w celu zobrazowania żelaza, które jest przechowywane w cząsteczkach ferrytyny zarówno w neuronach, jak i komórkach glejowych. W tym celu opracowaliśmy skrypt, który pozwolił nam zautomatyzować większość operacji związanych z losowym procesem przesiewowym sekcji mózgu w określonym obszarze.
Protokół
Wszystkie eksperymenty zostały zatwierdzone przez komisję etyczną w Federalnym Ministerstwie Nauki i Badań Republiki Austrii (BMWF-80.104/2-BrGT/2007 oraz BMWF-66.010/0037-II/3b/2013) lub komisję etyczną Uniwersytetu Medycznego w Grazie, numer 28-549 ex 15/16, i przeprowadzono zgodnie z dyrektywą Rady Wspólnot Europejskich z dnia 24 listopada 1986 r. (86/609/EWG) oraz dyrektywą Parlamentu Europejskiego i Rady z dnia 22 września 2010 r. (2010/63/UE). Eksperymenty na zwierzętach zostały zaprojektowane i przeprowadzone w taki sposób, aby zminimalizować liczbę wykorzystanych zwierząt.
1. Disekcja i utrwalanie tkanki
- Myszy (samice C57BL/6J i C57BL/6N w wieku 21 tygodni oraz samce WT i NPY KO na mieszanym tle genetycznym C57BL/6:129/SvJ (1:1) odpowiednio) uśmiercić poprzez dożylne wstrzyknięcie 150 mg/kg pentobarbitalu do jamy otrzewnej.
- Wyjąć mózgi z czaszki i natychmiast przekroić je na pół (oddzielając półkulę lewą od prawej) za pomocą skalpela.
- Połówki natychmiast umieścić w szklanych naczyniach z 2% formaldehydem i 2,5% glutaraldehydem w 0,1 M buforze kakodylowym ((CH3)2AsO2Na·3H2O, pH dostosowane do 7,4 za pomocą 1M NaCl), pH 7,4 w temperaturze 4 °C.
OSTRZEŻENIE: Utrwalacze są toksyczne i należy z nimi obchodzić się z najwyższą ostrożnością. Stosować wyłącznie w rękawicach ochronnych i pod wyciągiem z dygestorium. - Utrwalać połówki mózgu przez 2 dni w temperaturze 4 °C, a następnie płukać w tym samym buforze przez co najmniej 24 h, również w 4 °C. Objętość buforu powinna być około dziesięciokrotnie większa od objętości preparatu.
2. Identyfikacja obszaru zainteresowania w mózgu poprzez porównanie przekrojów wykonanych w wibrotomie z przekrojami referencyjnymi z atlasu mózgu myszy10
- Umieść próbkę mózgu w wibratomie. Upewnij się, że orientacja mózgu jest prawidłowa (w tym przypadku dla hipokampa wybrano orientację koronarną).
- Przycinaj tkankę, aż zostanie osiągnięty obszar zainteresowania (ROI). Wycinaj przekroje o dużej grubości (np. 100 µm), aż do momentu dotarcia do części mózgu z obszarem zainteresowania, a następnie odrzucaj każdy taki przekrój.
- Zacznij wycinać w wibratomie przekroje o grubości 20 µm na początku części mózgu zawierającej ROI i przenieś je na szkiełko przedmiotowe. Zabarw je (barwienie Nissla), umieszczając przekroje w 0,05% octanie tioniny w buforze octanu sodu, pH 4,2 przez 1 min (Rysunek 1Ai).
- Porównaj zabarwione przekroje z atlasem mózgu myszy za pomocą mikroskopu świetlnego i kontynuuj wycinanie oraz barwienie, aż do osiągnięcia pożądanych współrzędnych mózgu.
3. Pobieranie fragmentu próbki do zatopienia
- Po zidentyfikowaniu odpowiedniego obszaru, należy wykonać za pomocą wibratomu jeden przekrój o grubości 150 µm.
- Wykonaj mikrodysekcję tak przygotowanego przekroju za pomocą żyletki pod mikroskopem stereoskopowym. Wyciąć części wokół ROI. Przekrój powinien mieć odpowiedni rozmiar do kolejnych etapów przygotowania do transmisyjnej mikroskopii elektronowej (TEM) (nie większy niż 1 x 1 mm2).
4. Przygotowanie do TEM - zatapianie, ultra-cienkie krojenie i barwienie
- Zalewanie
- Post-fiksacja przez 2 h w 2% czworoortlenie osmu w temperaturze pokojowej (RT). Należy użyć objętości pokrywającej próbkę z co najmniej 10-krotną nadwyżką w stosunku do objętości próbki, unikając jednak nadmiernego zużycia utrwalacza, aby ograniczyć powstawanie toksycznych odpadów.
UWAGA: Czworoortlenie osmu jest wysoce toksyczne i wymaga zachowania szczególnej ostrożności. Należy go używać wyłącznie w rękawicach ochronnych i pod wyciągiem. - Odwodnienie przy użyciu alkoholi klasy EM w krokach 20-minutowych. Należy użyć większej objętości niż w poprzednim kroku (etanol 50%, 70%, 80%, 96% i 100%).
- Umieszczenie w tlenku propylenu na 40 min w RT. Następnie przeniesienie do mieszaniny tlenku propylenu z żywicą zalewową (1:2) na 2 h w RT oraz (1:3) przez noc w 4 °C.
UWAGA: Tlenek propylenu jest wysoce toksyczny i wymaga zachowania szczególnej ostrożności. Należy go używać wyłącznie w rękawicach ochronnych i pod wyciągiem. - Zalewanie próbek w 100% żywicy poprzez dwukrotną wymianę żywicy po 60 min oraz jednokrotną po 90 min (wszystkie etapy w 45 °C).
- Na koniec umieszczenie próbek w odpowiednich formach i polimeryzacja żywicy w 90 °C przez 3 dni (Rysunek 1Aii).
- Post-fiksacja przez 2 h w 2% czworoortlenie osmu w temperaturze pokojowej (RT). Należy użyć objętości pokrywającej próbkę z co najmniej 10-krotną nadwyżką w stosunku do objętości próbki, unikając jednak nadmiernego zużycia utrwalacza, aby ograniczyć powstawanie toksycznych odpadów.
- Przycinanie i sekcjonowanie na ultramikrotomie.
- Przycięcie bloku, dbając o to, aby boki były jak najgładsze, co zapewni odpowiednie przyleganie sekcji do siebie (Rysunek 1Aiii).
- Wykonanie seryjnych ultracienkich sekcji o grubości 55 nm (powinny mieć kolor srebrnoszary) przy użyciu ultramikrotomu. Należy użyć siatki szczelinowej (szerokość szczeliny 1 x 2 mm) powleczonej pioloformem (Rysunek 1Aiv).
- Kontrastowanie ultracienkich sekcji na siatkach szczelinowych przy użyciu 2% octanu uranylu przez 30 min oraz cytrynianu ołowia przez 30 s w RT (jest to standardowa metoda w mikroskopii elektronowej11).
UWAGA: Octan uranylu jest wysoce toksyczny i należy unikać z nim bezpośredniego kontaktu. Obsługiwać wyłącznie w rękawicach ochronnych. Azotan ołowiu jest toksyczny w przypadku połknięcia lub wdychania i wymaga zachowania szczególnej ostrożności.
5. Obrazowanie odpowiadających sobie obszarów zainteresowania (ROI) w sekcjach referencyjnej i wyszukiwawczej za pomocą TEM z wykorzystaniem pakietów oprogramowania
- Obejrzyj przekroje na siatce za pomocą TEM przy niskim powiększeniu (zależnie od wielkości przekrojów) w celu orientacji i oceny jakości przekrojów.
- Uruchom oprogramowanie (pakiet oprogramowania do analizy obrazów TEM, TIA, dostarczany z mikroskopem), aby wygenerować wirtualne obrazy przekrojów poprzez zapisanie punktów narożnych przekrojów. Pozwala to oprogramowaniu na znalezienie odpowiadających sobie pozycji ROI na każdym przekroju.
- Przejdź do sekcji Section i wybierz Insert, aby dodać punkty narożne dla przekroju referencyjnego i poszukiwanego. Postępuj zgodnie z instrukcjami w oknie pop-up. Zacznij od przekroju referencyjnego, a następnie przejdź do przekroju poszukiwanego. Upewnij się, że wprowadzono krawędzie przekroju równoległe do następnego przekroju jako punkty 1 i 2 (Figure 1Bi).
- Wizualizuj przekrój referencyjny przy niskim powiększeniu, aby zidentyfikować obszar zainteresowania (ROI) i przesuń stolik mikroskopu za pomocą TIA na przekroju referencyjnym do wielu punktów narożnych ROI, aby stworzyć obrys ROI.
- Zapisz współrzędne powstałego wielokąta za pomocą oprogramowania RPS. W tym celu naciskaj Add coordinates w oknie dialogowym oprogramowania RPS w każdym punkcie wielokąta niezbędnym do obrysowania ROI w przekroju (Figure 1Bii).
- Zdefiniuj i wprowadź do oprogramowania RPS odpowiednią wielkość obszarów próbkowania oraz odległości między obszarami (w przedstawionym badaniu wielkość obszarów próbkowania wynosi 7 µm, a odległość między nimi 20 µm, co daje co najmniej 20 obszarów próbkowania w obrębie ROI). Naciśnij Calculate Raster, po czym oprogramowanie wygeneruje współrzędne obszarów próbkowania w systematyczny, jednolity i losowy sposób dla pozycji mikrografii wewnątrz wielokąta (Figure 1Biii).
UWAGA: Dla lepszej orientacji wielokąt oraz obszary próbkowania wewnątrz wielokąta mogą zostać wyświetlone przez oprogramowanie RPS (Figure 1Biv).
- Zapisz punkty próbkowania na przekroju referencyjnym i poszukiwanym za pomocą oprogramowania RPS i oprogramowania TEM Serial Section. Są to współrzędne montaży, które zostaną zarejestrowane w dalszej kolejności11.
- W oprogramowaniu RPS naciśnij Go to next position, aby przenieść stolik mikroskopu do współrzędnych x/y każdego obszaru próbkowania w przekroju referencyjnym. Przejdź do Location i Insert, aby zaimportować te współrzędne do oprogramowania w przekroju referencyjnym. Powtórz to dla wszystkich współrzędnych.
- Aby przenieść współrzędne z przekroju referencyjnego na przekrój poszukiwany, przejdź do Section i naciśnij Go to Section. W oknie dialogowym wprowadź numer przekroju poszukiwanego (zazwyczaj „2”).
- W celu rejestracji montaży (patrz kolejny krok), przełączaj się między przekrojem referencyjnym a poszukiwanym w opisany wcześniej sposób i zmieniaj pozycję na przekroju referencyjnym za pomocą Location i Go to Number. Wybierz następną współrzędną w oknie dialogowym.
- Dla montaży SerialEM w każdej współrzędnej próbkowania przejdź do File i wybierz New Montage z menu rozwijanego. W oknie dialogowym wybierz odpowiednią liczbę kafelków i procent nakładania się obrazów. W niniejszym badaniu powiększenie 5000X było wystarczające do rozpoznania badanych cech synaptycznych, jednak ograniczone pole widzenia kamery CCD wymagało wykonania montaży z 2 x 2 obrazów. Montaże są wykonywane za pomocą SerialEM.
- Przed zarejestrowaniem każdego montażu ponownie ustaw ostrość (lub, jeśli to możliwe, aktywuj opcję autofokusa w oprogramowaniu do rejestracji). Wybierz folder do zapisu pliku montażu i rozpocznij rejestrację montażu, naciskając Start w podmenu montażu po lewej stronie w SerialEM.
6. Analiza obrazów TEM za pomocą programu ImageJ w celu udokumentowania cech ultrastrukturalnych.
UWAGA: W tym celu ważne jest utworzenie wyrównanego stosu obrazów z sekcji referencyjnej i wyszukiwawczej.
- Konwertuj pary obrazów za pomocą ImageJ Stosowanie obrazów do pliku stosu i wyrównać obrazy za pomocą StackReg (musi zostać zainstalowany z BIG-EPFL http://sites.imagej.net/BIG-EPFL/; w niniejszym przypadku algorytm Afiniczny zastosowano). W celu wyznaczenia gęstości liczbowej cech strukturalnych komórek wykorzystano stworzone na zamówienie makro programu ImageJ Disektor generuje siatkę zliczającą o rozmiarze 5,5 x 5.5 µm rozmieszczone losowo na obrazie pod losowym kątem.
- Uruchom makro Sonda do preparowania (disektor) (lokalizacja w ImageJ menu zależy od katalogu, w którym został zapisany) i zdefiniuj parametry (rozmiar ramki liczenia, liczba segmentów) zgodnie z potrzebami (Rycina 1Cii).
- Policz liczbę synaps/µm2 przy użyciu metody diselektora. Należy policzyć każdą synapsę w obrębie ramki liczbowej, która jest widoczna w sekcji referencyjnej, ale niewidoczna w sekcji sprawdzającej. Należy pominąć synapsy, które przecinają dwielinie zabronionesekcji preparatora; ale należy policzyć synapsy po przeciwnej stronielinie akceptacjiW tym celu należy użyć Narzędzie wielopunktowe znajdujące się w Pasek narzędzi w ImageJ (Rysunek 2A, Rysunek 2B).
- W celu pomiaru parametrów synaps należy wybrać wyłącznie te synapsy, których szczelina synaptyczna jest zorientowana w przekroju poprzecznym (na przekroju referencyjnym; w obrębie tych samych ramek obrazu, które wykorzystano do dysektora).
- Uruchom wtyczkę ObiektJ w programie ImageJ z menu rozwijanego (Rycina 2A) poprzez Wtyczki | Analizuj. Otwórz nowy projekt z rozwijanego menu ObjectJ. Spowoduje to otwarcie okna, które umożliwia użytkownikowi obrysowanie i oznakowanie struktur za pomocą Narzędzie do znakowania (Rysunek 2B, czerwone koło). Parametry synaptyczne wykorzystane w przedstawionych tutaj eksperymentach opisano w następujących krokach.
- Zmierz długość błony presynaptycznej oraz długość gęstości postsynaptycznej, rysując linię wzdłuż struktury za pomocą Narzędzie do znakowania (Rycina 2B, czerwone koło).
- Wyznacz średnią szerokość szczeliny synaptycznej, rysując wielokąt obejmujący zarówno błonę presynaptyczną, jak i postsynaptyczną, z prostymi równoległymi bokami oraz linią segmentową przebiegającą przez środek, w równej odległości od obu błon.
- Aby wyznaczyć liczbę przycumowanych pęcherzyków, należy policzyć wszystkie pęcherzyki, których maksymalna odległość od błony presynaptycznej wynosi jedną średnicę pęcherzyka lub mniej.
- Aby określić liczbę pęcherzyków niedokowanych, należy policzyć pęcherzyki, których maksymalna odległość od pęcherzyków dokowanych lub innych pęcherzyków niedokowanych w tej samej synapsie nie przekracza średnicy jednego pęcherzyka.
7. Przygotowanie półcienkich skrawków do mikroskopii świetlnej w celu udokumentowania cech makroskopowych (w tym przypadku liczby komórek) w tym samym ROI, które wybrano do badania TEM.
- Bezpośrednio po wycięciu ultra-cienkich przekrojów do TEM, wyciąć dwa przekroje półcienkie o grubości 0,5 µm, znajdujące się bezpośrednio obok siebie. Umieścić je na szkiełku przedmiotowym i zabarwić 0,5% roztworem błękitu toluidyny. Na przekroje nałożyć szkiełko nakrywkowe (z użyciem medium montażowego DPX, składającego się z distyrenu, plastyfikatora (fosforanu trikresylowego) i ksylenu). Te dwa przekroje służą do zliczenia liczby komórek.
- Wykonać zdjęcia przekrojów półcienkich przy niskim powiększeniu za pomocą mikroskopu świetlnego.
UWAGA: Badane struktury muszą być identyfikowalne na zdjęciach. W niniejszym badaniu do identyfikacji ciał komórkowych zastosowano powiększenie 20X. W razie potrzeby można połączyć wiele obrazów za pomocą oprogramowania do przetwarzania obrazów. - Wyrównać pary dwóch następujących po sobie przekrojów półcienkich za pomocą oprogramowania do przetwarzania obrazów (np. ImageJ).
UWAGA: Należy skorygować różnice w obrocie i rozmiarze (które mogą wystąpić z powodu artefaktów kompresji wprowadzonych podczas procesu krojenia), aby uzyskać idealne nałożenie obu przekrojów. - Zaznaczyć granicę ROI na obrazie z mikroskopii świetlnej. ROI musi odpowiadać ROI użytemu dla obrazów TEM. W tym celu należy załadować obrazy do programu ImageJ i wybrać narzędzie zaznaczania wielokąta z paska narzędzi Toolsbar (Rysunek 2A).
- Wygenerować siatkę na całym obrazie w programie ImageJ, otwierając Analyze | Tools | Grid i ustawiając parametry zgodnie z potrzebami.
- Obliczyć pole i objętość wielokąta na podstawie liczby punktów siatki w obszarze zainteresowania oraz grubości przekroju (Volume = NCS * AGS * hST ; NCS = liczba policzonych przekrojów poprzecznych; AGS = rozmiar siatki; hST = grubość przekroju).
- Policzyć liczbę jąder z ciał komórek neuronalnych w obrębie ROI, jeśli występują one tylko na jednym przekroju. Wybrać narzędzie Multipoint Tool w programie ImageJ z paska Toolsbar i zaznaczyć komórki. Po zliczeniu komórek na każdym przekroju obliczyć liczbę komórek na jednostkę objętości (
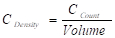 ; CDensity = gęstość komórek; CCount = liczba komórek).
- Zarejestrować wszystkie pomiary w oknie ObjectJ Results (Rysunek 2C). Wyeksportować i zapisać je do dalszego wykorzystania.
8. Wykorzystanie skryptu SerialEM do optymalizacji analizy pierwiastkowej próbek mózgu w połączeniu z programem DigitalMicrograph (DM, dostarczanym z filtrem obrazującym).
- Strojenie filtra obrazowania (GIF).
- Wprowadź próbkę do TEM i za pomocą trackballa lub dżojstika mikroskopu przejdź do otworu w próbce w celu strojenia GIF.
- Przełącz na Energy Filtered TEM (EFTEM) w oprogramowaniu DM / lub DM i wybierz kamerę CCD w DM.
- Wybierz powiększenie do analizy pierwiastkowej (powiększenie zależy od struktury/obszaru zainteresowania; w niniejszym przypadku powiększenie ustawiono od 76 k do 125 k). Ustaw czas ekspozycji na 0,001 s i uruchom VIEW.
- Starannie ustaw ostrość wiązki, aż krawędzie staną się widoczne, i wycentruj wiązkę na obrazie. Zmniejsz C2/aperturę obiektywu, aż krawędzie apertury będą widoczne, a następnie wycentruj wiązkę za pomocą trackballa do wiązki.
- Rozostrz wiązkę (około C2 46,2%, czas ekspozycji do strojenia powinien wynosić około 0,05 s) i znajdź pik zerowej straty (ZLP), naciskając przycisk ZLP. Rozpocznij procedurę strojenia, naciskając przycisk Full tune.
- Wyznaczanie losowych punktów akwizycji.
- Przełącz z powrotem do trybu obrazowania TEM, wybierz Camera i sprawdź ostrość przy powiększeniu 10 k (wyreguluj oś z i ustaw defokus na zero).
- Wybierz powiększenie LM 75X i sprawdź, czy kamera nie jest włożona (w przeciwnym razie nie można nią sterować za pomocą oprogramowania SerialEM).
- Uruchom SerialEM i otwórz nowy projekt.
- Otwórz nawigator. Sprawdź ustawienia kamery w Camera & Script Controls (dla VIEW i RECORD) i uruchom VIEW (kamera jest wkładana automatycznie).
- Aby stworzyć mapę narożną ultracienkiego przekroju, wybierz Add points w oknie nawigatora.
- Wyznacz punkty narożne na krawędziach ultracienkiego przekroju. Przesuń stolik do punktu narożnego, przytrzymując prawy przycisk myszy. Po dotarciu do narożnika przekroju dodaj punkt narożny lewym przyciskiem myszy. Powtórz procedurę, aby dodać kolejne 3 punkty narożne. Upewnij się, że w oknie nawigatora dla zapisanych punktów zaznaczone jest pole C dla punktów narożnych.
- Aby rozpocząć montaż narożny (preferowane przy powiększeniu LM 75), przejdź do Navigator w pasku menu SerialEM, wybierz Montaging & Grids, a następnie z menu rozwijanego wybierz Setup Corner Montage.
UWAGA: Wyświetlone zostaną najlepiej dopasowane ustawienia dla wybranych parametrów zapisu. Zmień je w razie potrzeby. W niniejszym przypadku zmieniono jedynie procent nakładania na 20%.
- Obrysuj przekrój/ROI na obrazie montażowym. Wybierz Add Polygon w oknie nawigatora i obrysuj przekrój wielokrotnymi kliknięciami prawym przyciskiem myszy. Wybierz Add grid of points w menu rozwijanym nawigatora i zdefiniuj odległość między punktami (odległość zależy od celu eksperymentu; np. 10 µm, Rysunek 3).
- Postępuj zgodnie z poleceniami skryptu. Wprowadź liczbę punktów siatki zgodnie z informacją w nawigatorze oraz wprowadz liczbę punktów akwizycji (np. 20).
- Ustaw próg iluminacji, aby skrypt mógł unikać prętów siatki. Postępuj zgodnie z poleceniami skryptu i przesuń stolik ręcznie tak, aby pręt siatki pokrywał jedną czwartą pola widzenia. Na podstawie wyświetlanej wartości wprowadź progową wartość iluminacji (powinna być ona wyższa od wartości wyświetlanej).
- Odczekaj, aż punkty do akwizycji zostaną wybrane, a rutyna „gotowania” (cooking routine) zostanie zakończona.
UWAGA: Proces ten trwa długo i może być przeprowadzony w nocy; po zakończeniu rutyny gotowania skrypt wprowadza mikroskop w tryb czuwania; rutyna gotowania jest ważna dla stabilizacji przekrojów w wiązce elektronów.
- Analiza pierwiastkowa TEM z filtrowaniem energii (EFTEM)
- Wybierz tryb EFTEM w TIA/DM i wybierz CCD camera w DM.
- Wycentruj wiązkę i postępuj zgodnie z poleceniami skryptu, który przesunie stolik do każdej współrzędnej próbkowania.
UWAGA: Użytkownik zostanie zapytany, czy stolik ma zostać przesunięty do następnej współrzędnej. - Ustaw pik zerowej straty (ZLP) i ustaw C2 na ~46,2%.
- Ustaw energię na 60 eV (w tym przypadku wartość ustawiono dla detekcji krawędzi M żelaza Fe), szczelinę na 10 eV i czas ekspozycji na 0,4 s. Wsuń szczelinę i ustaw C2 na ~43,9%.
- Uruchom podgląd (view) i ustaw ostrość obrazu.
- Ustaw C2 na 46,2%, wyrównaj ZLP i ustaw C2 z powrotem na 43,9%.
- Wykonaj mapę pierwiastkową z ustawieniami specyficznymi dla danego pierwiastka.
UWAGA: W dialogu akwizycji można użyć ustawień domyślnych, ale zaleca się ich wcześniejsze przetestowanie, jeśli jest to możliwe; przykładowe obrazy filtrowane przedstawiono na Rysunku 4. - Ustaw C2 na 46,2% i wykonaj mapę grubości.
- Powtórz dla wszystkich wyznaczonych punktów akwizycji (Krok 8.3.2-8.3.12).
- Postępuj zgodnie z instrukcjami skryptu i uzyskaj pojedyncze mikrografie elektronowe lub montaż punkty akwizycji. Wybierz powiększenie tak, aby wszystkie informacje (ultra-)strukturalne były widoczne/identyfikowalne.
- Zapisz plik LOG, nawigator oraz okno wyników i wysuń szczelinę.
- Zamknij zawór, wyjmij próbkę i wyłącz TEM.
Wyniki
W niniejszej pracy opisujemy schemat postępowania umożliwiający automatyczny i nieobiektywny wybór obszarów do analizy za pomocą TEM. Użytkownik wybiera interesujący go obszar w obrębie ultraprzesieki pod mikroskopem TEM, a następnie wykorzystuje kilka rozwiązań programistycznych, w tym nasze oprogramowanie RPS, które automatycznie oblicza współrzędne 20 obszarów próbkowania w obrębie wybranego obszaru. Następnie stolik TEM zostaje przesunięty do każdego obszaru próbkowania w celu wykonania fotografii. Jest to możliwe zarówno w przypadku analizy pojedynczych przesiek, jak i par przesiek oddalonych od siebie o znaną odległość, co pozwala na wybór obszarów do obrazowania bez wprowadzania stronniczości badacza.
Ten schemat postępowania okazał się wartościowy podczas dokumentowania cech ultrastrukturalnych w przekrojach mózgu myszy4,5. W badaniach tych jako obszar zainteresowania analizowano warstwę komórek ziarnistych zakrętu zębatego (DGpl). Nasza metoda okazała się odpowiednia do badania DG, ponieważ przekrój czołowy grzbietowej części DG (Bregma −1.3) mieści się w ultra-cienkim skrawku, a jego kontury są łatwo rozpoznawalne przy niskim powiększeniu. W przypadku badania innych obszarów mózgu istotne byłoby sprawdzenie ich wielkości oraz cech charakterystycznych przed zaplanowaniem eksperymentów.
Zastosowanie opisanego tutaj schematu pracy wykazało, że wzbogacenie środowiskowe (EE) znacząco zwiększa szerokość szczeliny synaptycznej w DGpl4 w porównaniu do standardowych warunków utrzymania. Ponadto liczba pęcherzyków o gęstym rdzeniu była znacząco zmniejszona u zwierząt w warunkach EE4, co wskazuje na zmiany w gospodarce neuropeptydów. W przypadku myszy WT oraz z nokautem NPY utrzymywanych w warunkach EE, liczba neuronów/µm³ w DGpl wzrosła, podczas gdy gęstość DCV spadła w stosunku do standardowego utrzymania (SE)5. Z kolei nokaut NPY spowodował znaczący wzrost liczby pęcherzyków synaptycznych w puli rezerwowej (niedopasowane pęcherzyki synaptyczne) niezależnie od warunków utrzymania5. Efekt EE na szerokość szczeliny synaptycznej został odwrócony w grupie NPY KO, co doprowadziło do znaczącej różnicy między myszami WT i NPY KO utrzymywanymi w warunkach EE5. W połączeniu z badaniami behawioralnymi zwierząt WT i z nokautem NPY utrzymywanych w obu typach warunków, wskazuje to na kluczową rolę NPY w neurobiologicznych efektach EE5.
W celu wizualizacji żelaza zgromadzonego w ludzkim mózgu opracowano skrypt dla oprogramowania SerialEM, służący do losowego wyboru punktów akwizycji z całego ultracienkiego przekroju, w celu uzyskania mikrografii elektronowej z filtrowaniem energii w każdym z tych punktów. Po wprowadzeniu przekroju do mikroskopu elektronowego skrypt przeprowadził stabilizację przekroju (t. j.., rutyny „gotowania preparatów” specimen-cooking) przez noc. Następnie skrypt losowo wybierał z tych oznaczonych siatką określoną przez użytkownika liczbę punktów w Rycina 3Poprzez generowanie mikrofotografii testowej i sprawdzanie poziomów szarości, skrypt weryfikował, czy wybrane punkty znajdują się na widocznej części przekroju, odrzucając punkty położone na prętach siatki. Większość procesu była realizowana przez skrypt przy minimalnej interakcji użytkownika. Niemniej jednak, przy tej konfiguracji nie było możliwe automatyczne rejestrowanie mikrofotografii filtrowanych energetycznie, ponieważ ilość światła była niewystarczająca dla procedury autofokusa programu SerialEM. W związku z tym, gdy tylko skrypt przesunął stolik do każdego z punktów, przełączaliśmy się na oprogramowanie DM, po czym ręcznie regulowaliśmy ostrość i wykonywaliśmy obraz EFTEM żelaza. Przykład obrazu EFTEM żelaza z ludzkiego mózgu post-mortem przedstawiono w Rycina 4.
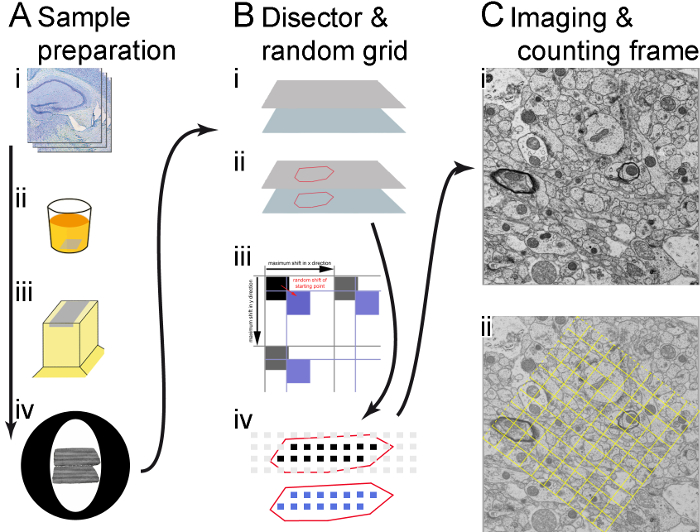
Rysunek 1. Ilustracja schematu postępowania. (A) Przedstawiono główne etapy przygotowania próbek (zgodnie z kierunkiem strzałek): sekcje wykonane w wibrotomie (i), zatapianie (ii), wycinanie sekcji półcienkich i ultracienkich (iii) oraz zbieranie par sekcji ultracienkich na siatkach miedzianych (iv). (B) Wykorzystanie zarówno oprogramowania dostarczonego przez producenta mikroskopu, jak i autorskiego oprogramowania RPS do tworzenia współrzędnych obszarów próbkowania, które wyznaczają miejsca rejestracji. Punkty narożne sekcji są zapisywane w oprogramowaniu mikroskopowym, a ROI zostaje obrysowany (zidentyfikowany przy pomocy sekcji półcienkich) (i); nad ROI generowana jest siatka obszarów próbkowania, wprowadzając losne przesunięcie (czerwona strzałka) w osiach x i y. Przesunięcie jest mniejsze niż odległość między obszarami próbkowania (czarne strzałki), tak aby zamiast czarnych kwadratów, które nie mają przesunięcia, wykorzystano niebieskie kwadraty, przesunięte losowo, do wyznaczenia miejsc rejestracji (ii); do rejestracji wykorzystuje się wyłącznie obszary próbkowania znajdujące się w granicach ROI (narysowane jako czarne i niebieskie kwadraty). Mikrografie wykonuje się zarówno w sekcji referencyjnej (czarne kwadraty), jak i w odpowiadających im miejscach w sekcji poszukiwawczej (niebieskie kwadraty) (iii). (C) W każdym obszarze próbkowania wykonuje się mikrograf przy odpowiednim powiększeniu; w razie potrzeby tworzy się montaż składający się z kilku połączonych obrazów (w tym przypadku połączono obrazy 2 x 2) (i); generowana jest ramka liczbowa wyświetlana jako nakładka na obrazie; liczone będą struktury wewnątrz ramki oraz na „liniach akceptacji” (przerywane linie ramki), ale nie te na „liniach zakazanych” (ciągłe linie ramki) (ii). Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
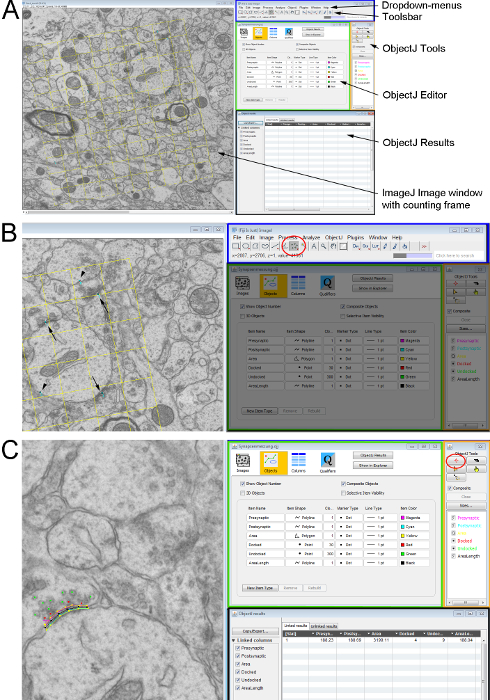
Rysunek 2. Pomiar parametrów ultrastrukturalnych na parze ultrascienkich przekrojów z wykorzystaniem nieobciążonej ramki zliczającej. (A) Przegląd okien programu ImageJ wykorzystywanych do zliczania i analizowania struktur komórkowych. Po lewej stronie widoczna jest mikrografia elektronowa z nałożoną ramką zliczającą. Po prawej stronie: interfejs użytkownika ImageJ (niebieski prostokąt) z menu rozwijanym (u góry) i paskiem narzędzi Toolbar (poniżej); edytor obiektów ObjectJ (zielony prostokąt); okno ObjectJ Tools (pomarańczowy prostokąt), w którym można wybrać narzędzia do pomiarów, oraz okno ObjectJ results (czarny prostokąt), w którym dokumentowane są wszystkie pomiary. (B) Szczegół z A przedstawiający zaznaczone synapsy na mikrografii elektronowej (synapsy na obu przekrojach – strzałki; synapsa tylko na przekroju referencyjnym – groty strzałek). Są one zaznaczane przy użyciu narzędzia Multipoint-Tool (czerwone koło) z paska narzędzi Toolbar w programie ImageJ. (C) Nazwy i parametry pomiarowe cech synaptycznych są definiowane za pomocą ObjectJ Tools. Wybierane są Marker-Tool oraz interesująca cecha, a następnie obrys struktury jest rysowany na obrazie poprzez kliknięcia lewym przyciskiem myszy wzdłuż struktury. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
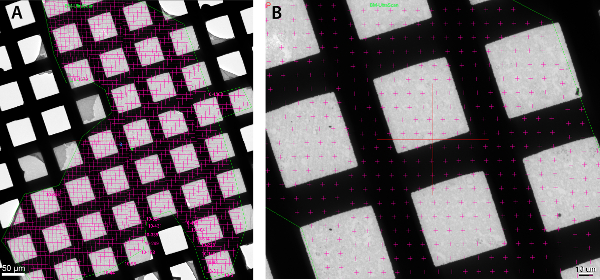
Rycina 3. Wybór obszarów próbkowania dla mapowania pierwiastkowego w obrębie ROI dla transmisyjnej mikroskopii elektronowej z filtrowaniem energii. Program SerialEM służy do wyboru obszaru zainteresowania (ROI) oraz sugerowania licznych obszarów próbkowania w regularnych odstępach (różowe krzyżyki na obrazach A i B). Następnie skrypt losowo wybiera obszary próbkowania (z tych zdefiniowanych wcześniej współrzędnych) do akwizycji. Obszary próbkowania ze słabym oświetleniem są odrzucane, aby uniknąć prętów siatki, a skrypt zatrzymuje się natychmiast po wybraniu 20 dobrze oświetlonych obszarów próbkowania w obrębie ROI. (A) Przegląd całego obszaru zainteresowania, obrysowanego wielokątem, z zaznaczonymi znakami X licznymi potencjalnymi obszarami próbkowania. (B) Szczegół obrazu A przedstawiający obszary próbkowania przed losowym wyborem. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
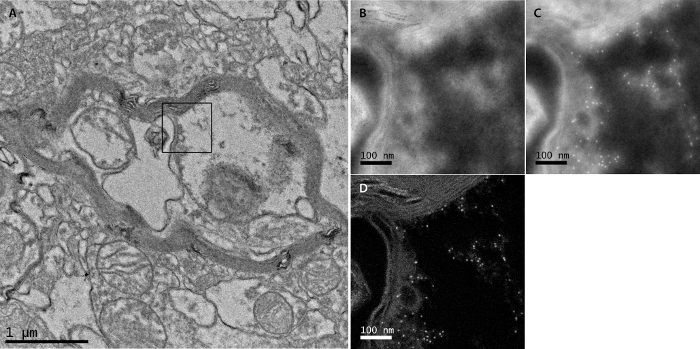
Rycina 4. Przykład pozyskiwania mapy pierwiastkowej (EFTEM). (A) Mikrograf TEM w jasnym polu obszaru wokół punktu akwizycji. Do uzyskania mapy pierwiastkowej wykorzystano losowo wybrany obszar, zaznaczony czarnym prostokątem. (B) Obraz okna przedkrawędziowego EFTEM wykonany w losowo wybranym obszarze. (C) Obraz okna pozakrawędziowego EFTEM wykonany w tym samym obszarze. (D) Mapa pierwiastkowa żelaza tego samego obszaru (krawędź M). Kliknij tutaj, aby zobaczyć powiększoną wersję tej ryciny.
Dyskusja
Przedstawiony tutaj przepływ pracy pozwala badaczowi uzyskać dane na temat cech ultrastrukturalnych w bezstronny sposób. Jest to znacznie mniej czasochłonne niż badania objętościowe z sekcji seryjnych. Aby osiągnąć ten cel, wykorzystuje się kilka różnych aplikacji. Na początku nasze niestandardowe oprogramowanie RPS (w celu uzyskania szczegółowych informacji na temat dostępności prosimy o kontakt z autorem korespondencyjnym) służy do wprowadzenia losowego przesunięcia etapu w celu wybrania współrzędnych obszaru próbkowania. Pozwala to na systematyczne, jednolite, losowe próbkowanie zwrotu z inwestycji. Następnie, do zliczania określonych struktur, dostosowaliśmy metodę disektora, w której porównuje się 2 kolejne sekcje o znanej odległości, w nowatorski sposób w porównaniu z poprzednimi badaniami 13,14,15, ponieważ użyliśmy naszego niestandardowego oprogramowania RPS do systematycznego jednolitego próbkowania losowego. Oszczędza to czas w porównaniu z rekonstrukcją 3D całych woluminów z sekcji seryjnych. Dostosowane do potrzeb klienta oprogramowanie RPS zostało opracowane specjalnie dla jednego typu mikroskopu, który jest czynnikiem ograniczającym odtwarzanie przepływu pracy. Alternatywą dla tego konkretnego oprogramowania byłaby aplikacja, która umożliwia tworzenie skryptów i jest kompatybilna z innymi modelami mikroskopów.
Podejście to z powodzeniem zastosowaliśmy w naszych badaniach porównawczych 4,5. Na ultracienkich odcinkach tkanki neuronalnej nakreślono obszar zainteresowania, a obrazy wykonano poprzez systematyczne, jednolite, losowe pobieranie próbek w tym obszarze. Należy zauważyć, że obszar zainteresowania, warstwa polimorficzna zakrętu zębatego, jest raczej małym obszarem do zbadania, co może być korzystne dla naszego podejścia. W losowo umieszczonej disekcji oceniliśmy liczbę DCV i kilka cech ultrastrukturalnych synaps w DGpl dorosłych myszy trzymanych w SE i EE, a także dorosłych myszy WT w porównaniu z dorosłymi myszami z nokautem NPY. Korzystając z naszego podejścia, zebrane dane wykazały zmiany w niektórych badanych parametrach. Wyniki te potwierdziły wyniki innych podobnych badań na młodych zwierzętach2.
Wadą eksperymentalnego wykorzystania tego przepływu pracy może być to, że to podejście oparte na wielu aplikacjach nie jest idealne pod względem przyjazności dla użytkownika, ponieważ użytkownicy muszą przyzwyczaić się do różnych interfejsów użytkownika (w naszym przypadku interfejsu użytkownika, sekcji szeregowej TEM, oprogramowania RPS i oprogramowania SerialEM). Nauczenie się sprawnego obsługi wszystkich aplikacji jest czasochłonne i powinno być brane pod uwagę. Jednak zainwestowanie czasu w naukę korzystania z tego przepływu pracy jest nadal wyraźnie korzystne w stosunku do czasu potrzebnego na analizę całych tomów z sekcją seryjną TEM. Metoda wykorzystania disektora umieszczonego poprzez systematyczne, jednolite losowe pobieranie próbek w obszarze zainteresowania jest wystarczająca do przedstawienia wiarygodnych danych1 bez konieczności badania dużej liczby odcinków/objętości.
Aby zmaksymalizować wyniki naszych badań, konieczne było zachowanie ostrożności podczas przygotowywania próbki, ponieważ zachowanie tkanki i struktur ma kluczowe znaczenie nie tylko dla oceny cech strukturalnych, ale także dla jednoznacznej identyfikacji obszaru zainteresowania. Kluczowym czynnikiem, a być może kolejną wadą tej metody, jest to, że wymagana jest wysoka jakość par ultracienkich przekrojów: w żadnym z odcinków nie może być żadnych ani zmarszczek pokrywających badany obszar, a grubość przekroju musi być zachowana jednorodna. Badacz musi być dobrze przeszkolony w zakresie ultramikrotomii. Należy również zachować ostrożność podczas obrazowania odcinków w TEM, ponieważ są one wrażliwe na uszkodzenia wiązką elektronów i mogą łatwo się rozerwać na strzępy. Ponadto ważne jest, aby wybrać odpowiednią liczbę obszarów pobierania próbek w ROI. W zależności od celu doświadczalnego, powiększenie mikrofotografii elektronowych musi być starannie ustawione. Dla naszych eksperymentów, w szczególności zliczania synaps w ośrodkowym układzie nerwowym, optymalnych jest 20 obszarów zainteresowania na jednej sekcji o powierzchni 30,25μm2. Zaleca się dobre przeszkolenie personelu w rozpoznawaniu danych cech (w naszym przypadku synaps, cech synaptycznych i DCV), aby uzyskać wiarygodne wyniki. Aby zidentyfikować synapsy, pęcherzyki synaptyczne muszą być możliwe do zidentyfikowania, a to wymaga rozdzielczości co najmniej 10 nm. W tym celu optymalne było powiększenie 5000X, ale należy zauważyć, że powiększenie zależy od parametrów sprzętowych, takich jak typ i położenie kamer, i musiałoby być dostosowane do innych typów mikroskopów i/lub kamer. Należy również zauważyć, że protokół korzysta z aplikacji specyficznych dla jednego TEM i że użytkownicy innych modeli muszą wziąć pod uwagę różnice w konfiguracji.
Wierzymy, że nasz przepływ pracy można dostosować do wielu innych zastosowań, nie tylko w neurobiologii, ale w szerokiej dziedzinie nauk biologicznych, a także materiałoznawstwa (gdy potrzebna jest wysoka rozdzielczość TEM), gdy pytanie badawcze wymaga systematycznego, jednolitego losowego pobierania próbek, a liczba próbek do zbadania wymaga efektywnego czasowo sposobu analizy. Na przykład obecnie interesuje nas lokalizacja zapasów żelaza w ludzkim mózgu. W tym celu niedawno dostosowaliśmy nasz przepływ pracy, aby umożliwić analizę elementarną na ultracienkich przekrojach w losowo wybranych obszarach. Aby zminimalizować liczbę aplikacji, które są potrzebne do przepływu pracy, staraliśmy się aplikować tylko za pomocą oprogramowania SerialEM, ponieważ można je zaprogramować tak, aby przesuwało stolik do wstępnie ustawionych punktów, które można wybrać w sposób losowy. Stworzyliśmy niestandardowe skrypty do sterowania TEM, w celu całkowitej automatyzacji przepływu pracy. Okazało się to wykonalne, z wyjątkiem autofokusa w trybie obrazowania z filtrem, który nie przyniósł satysfakcjonujących rezultatów. W związku z tym użyliśmy oprogramowania DM do ustawiania ostrości i uzyskiwania obrazów z filtrem energetycznym.
Podsumowując, przedstawiamy rozwiązania programowe, które pomagają w uzyskaniu mikrofotografii elektronowych w bezstronny sposób.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Finansowane przez Austriacki Fundusz Naukowy, FWF, numer projektu P 29370 B27
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Pentobarbital | SigmaAldrich | P3761 | |
| Formaldehyd | Merck | 1040051000 | 1kg |
| Diahyd glutarowy | Science | Services E 16210 | 25%; 100ml; |
| Bufor kakodylowy | Merck | C4945 | 250g; Kwas dimetyloarsynowy sodu trójwodny |
| Octan tioniny/Ceristain | Merck | 861340 | |
| Kwas octowy | Merck | 1000631000 | 1 L |
| Wodorotlenek sodu | Merck | 1064951000 | 1 kg, granulki |
| Tetratlenek osmu | Science Services | E 19110 | 10x1g |
| Żywica do zatapiania TAAB Science | Services | TAT001 | 500g |
| DMP-30 | Usługi Naukowe | TAD024 | 100g |
| DDSA | Usługi Naukowe | TAD025 | 500g |
| Octan uranylu dwuwodny | Plano GmbH | 19481 | zubożony, 25g |
| Ultrastain 2 | Leica | 16707235 | Cytrynian ołowiu |
| Niebieski roztwór toluidyny | Agar Scientific | AGR1727 | 10g |
| Pioloform | Plano GmbH | R1275 | 10g Proylenoxide |
| w proszku SigmaAldrich | 82320-1L | 1L | |
| DPX medium do zatapiania | Plano GmbH R1320 | do półcienkich przekrojów na szkiełku szkiełkowym, 50 ml | |
| Vibratome, Leica VT 1000 | Leica Microsystems, Wiedeń, Austria | ||
| Leica Ultracut UCT, ultramikrotom | Leica Microsystems, Wetzlar, Niemcy | ||
| Tecnai G2 20 | FEI,Eindhoven, Holandia | ||
| Kamera szerokokątna Megaview | Olympus Soft Imaging Solution, Mü nster, Niemcy | ||
| Aparat cyfrowy US 1000 | Gatan, Pleasanton, Stany Zjednoczone | ||
| Oprogramowanie do analizy obrazowania TEM | FEI, Eindhoven, Holandia | ||
| Oprogramowanie sekcji szeregowej FEI | FEI, Eindhoven, Holandia | ||
| Fidżi, ImageJ 1.52e | Narodowy Instytut Zdrowia, USA | ||
| SPSS 20.0 | SPSS Inc., Chicago, IL, USA | ||
| SerialEM | Regents of the University of Colorado | ||
| RPS (losowe próbkowanie punktowe) oprogramowanie 0.9a | na zamówienie | ||
| Disektor v1.0.2 (makro ImageJ) | na | ||
| EFTEMSerialEM (skrypt SerialEM) | na zamówienie |
Bibliografia
- Howard, V., Reed, M. Unbiased Stereology: Three-Dimensional Measurement in Microscopy. , BIOS Scientific Publishers. Oxford. (1998).
- Nakamura, H., Kobayashi, S., Ohashi, Y., Ando, S. Age-changes of brain synapses and synaptic plasticity in response to an enriched environment. Journal of Neuroscience Research. 56 (3), 307-315 (1999).
- Landers, M. S., Knott, G. W., Lipp, H. P., Poletaeva, I., Welker, E. Synapse formation in adult barrel cortex following naturalistic environmental enrichment. Neuroscience. 199, 143-152 (2011).
- Reichmann, F., et al. A novel unbiased counting method for the quantification of synapses in the mouse brain. Journal of Neuroscience Methods. 240, 13-21 (2015).
- Reichmann, F., et al. Environmental enrichment induces behavioural disturbances in neuropeptide Y knockout mice. Scientific Report. 6, 28182(2016).
- Mayhew, T. M. Taking Tissue Samples from the Placenta: An Illustration of Principles and Strategies. Placenta. 29, 1-14 (2008).
- Ferguson, S., Steyer, A. M., Mayhew, T. M., Schwab, Y., Lucocq, J. M. Quantifying Golgi structure using EM: combing volume-SEM and stereology for higher throughput. Histochemistry and Cell Biology. 147, 653-669 (2017).
- Sterio, D. C. The unbiased estimation of number and sizes of arbitrary particles using the disector. Journal of Microscopy. 134 (2), 127-136 (1984).
- Gundersen, H. J., et al. The new stereological tools: disector, fractionator, nucleator and point sampled intercepts and their use in pathological research and diagnosis. APMIS. 96 (10), 857-881 (1988).
- Franklin, K. B. J., Paxinos, G. The Mouse Brain in Stereotaxic Coordinates. , Elsevier/Academic Press. (2008).
- Lewis, P. R., Knight, D. P. Staining Methods for Sectioned Material. , Elsevier/North-Holland Biomedical Press. (1988).
- Mastronarde, D. N. Automated electron microscope tomography using robust prediction of specimen movements. J Struct Biol. 152 (1), can be downloaded from http://bio3d.colorado.edu/SerialEM 36-51 (2005).
- Rampon, C., Tang, Y. P., Goodhouse, J., Shimizu, E., Kyin, M., Tsien, J. Z. Enrichment induces structural changes and recovery from nonspatial memory deficits in CA1 NMDAR1-knockout mice. Nature Neuroscience. 3 (3), 238-244 (2000).
- Xu, X., Ye, L., Ruan, Q. Environmental enrichment induces synaptic structural modification after transient focal cerebral ischemia in rats. Experimental Biology and Medicine. 234 (3), 296-305 (2009).
- Lonetti, G., et al. Early environmental enrichment moderates the behavioral and synaptic phenotype of MeCP2 null mice. Biological Psychiatry. 67 (7), 657-665 (2010).
Przedruki i uprawnienia
