Ten protokół jest używany do izolowania pojedynczych kardiomiocytów przedsionkowych z serca dorosłej myszy za pomocą metody trawienia fragmentów. Podejście to stosuje się do izolacji miocytów prawego lub lewego przedsionka, które można wykorzystać do scharakteryzowania elektrofizjologii miocytów przedsionków w badaniach typu patch-clamp.
Artykuł metodologiczny
Izolacja miocytów przedsionkowych od dorosłych myszy
W tym artykule
Podsumowanie
Streszczenie
Właściwości elektrofizjologiczne miocytów przedsionkowych mają istotny wpływ na ogólną czynność serca. Zmiany w leżących u podstaw prądach jonowych odpowiedzialnych za potencjał czynnościowy mogą powodować proarytmiczne substraty, które leżą u podstaw arytmii, takich jak migotanie przedsionków, które są bardzo rozpowszechnione w wielu stanach i stanach chorobowych. Wyizolowanie dorosłych kardiomiocytów przedsionkowych myszy do wykorzystania w eksperymentach z klamrą znacznie poszerzyło naszą wiedzę i zrozumienie elektrofizjologii komórkowej w zdrowym mięśniu sercowym przedsionka oraz w warunkach patofizjologii przedsionków. Ponadto badania z wykorzystaniem mysich modeli genetycznych wyjaśniły rolę szerokiego wachlarza białek w regulacji elektrofizjologii przedsionków. Tutaj przedstawiamy szczegółowy protokół izolacji kardiomiocytów z przydatków przedsionkowych dorosłych myszy przy użyciu kombinacji trawienia enzymatycznego i mechanicznej dysocjacji tych tkanek. Podejście to konsekwentnie i niezawodnie pozwala uzyskać izolowane kardiomiocyty przedsionkowe, które można następnie wykorzystać do scharakteryzowania elektrofizjologii komórkowej poprzez pomiar potencjałów czynnościowych i prądów jonowych w eksperymentach typu patch-clamp w wielu warunkach eksperymentalnych.
Wprowadzenie
Przedsionki, które są cienkościennymi, niskociśnieniowymi komorami serca, które otrzymują krew z żyły głównej górnej i dolnej, a także z żył płucnych, są integralną częścią normalnej fizjologii serca. Podobnie jak inne obszary serca, przedsionki zawierają wiele typów komórek, w tym kardiomiocyty, fibroblasty, komórki śródbłonka, komórki mięśni gładkich naczyń krwionośnych i inne. Miocyty przedsionkowe to elektrycznie pobudliwe komórki, które odgrywają zasadniczą rolę w przewodzeniu sygnałów elektrycznych przez serce, zapewniając w ten sposób prawidłowy skurcz przedsionków podczas każdego uderzenia serca1. Dysfunkcja elektryczna w przedsionkach może prowadzić do wielu arytmii specyficznych dla przedsionków, takich jak trzepotanie przedsionków i migotanie przedsionków2,3. Są to bardzo rozpowszechnione, ale słabo poznane zaburzenia rytmu serca, które prowadzą do znacznej zachorowalności i śmiertelności. Migotanie przedsionków może wystąpić w związku z mutacjami genetycznymi, w związku ze starzeniem się lub w otoczeniu nabytych postaci chorób serca, w tym nadciśnienia, niewydolności serca i cukrzycy2,4,5,6. Warunki te mogą zmieniać właściwości elektryczne miocytów przedsionków, które mogą tworzyć substrat zwiększający częstość występowania arytmogenezy1,2.
Na normalne funkcje elektryczne w przedsionkach, jak również arytmogenezę przedsionków, istotny wpływ ma morfologia potencjału czynnościowego (AP) wytwarzanego w miocytach przedsionkowych. Przedsionkowe AP jest generowane w wyniku działania wielu prądów jonowych, w tym prądu sodowego (INa, przenoszonego przez kanały NaV1,5), prądu wapniowego typu L (ICa,L, przenoszonego przez kanały Cav1,2 i CaV1,3) oraz kilku prądów potasowych, w tym ultraszybkiego prądu potasowego prostownika opóźnionego (IKur, przenoszony przez kanały KV1,5), przejściowy wychodzący prąd potasowy (Ito, przenoszony przez kanały KV4,2 i KV4,3), prąd potasowy w stanie ustalonym (IKss, przenoszony przez kanały KV2,1) i prąd potasowy prostownika wewnętrznego (IK1, przenoszony przez kanały Kir2,1)1,7,8. Chociaż nie odgrywają one większej roli w przedsionkach myszy, szybkie i wolne składowe opóźnionego prądu prostownika K+ (I, Kr i I,Ks) również przyczyniają się do repolaryzacji AP u niektórych gatunków7. Zmiany w jednym lub więcej z tych prądów jonowych mogą znacząco zmienić właściwości elektryczne miocytów przedsionkowych, co może prowadzić do arytmii przedsionkowych. Na przykład zmniejszenie INa może spowolnić prędkość przewodzenia w przedsionkach poprzez zmniejszenie prędkości skoku w górę AP. Z drugiej strony, zmniejszenie repolaryzujących prądów potasowych lub wzrost ICa,L lub późnego INa może spowodować rozwój powtórnych depolaryzacji, które mogą wywołać spontaniczną aktywność w przedsionkach 1,2,9.
Ważne jest, aby rozpoznać, że istnieją różnice w morfologii AP w różnych częściach mięśnia sercowego przedsionka, które prawdopodobnie wynikają z różnic w ekspresji lub regulacji tych podstawowych kanałów jonowych. Na przykład, różnice w czasie trwania AP między prawym i lewym przedsionkiem w połączeniu z różnicami w Ido obecnej gęstości zostały dobrze opisane10,11,12,13. Ostatnio wykazaliśmy również, że istnieją wyraźne wzorce przebudowy elektrycznej w prawym i lewym przedsionku myszy z przewlekłym nadciśnieniem6,14. Prawa tylna ściana przedsionka zawiera również węzeł zatokowo-przedsionkowy, który ma swoje własne wyraźne wzorce morfologii AP i wzorce odpalania15. Odrębne właściwości miocytów w każdej z tych różnych części przedsionków można szczegółowo zbadać przy użyciu izolowanych miocytów z każdego z tych regionów.
Istnieją różne podejścia, które można wykorzystać do izolacji miocytów przedsionków do badań elektrofizjologicznych typu patch-clamp16. Jedną z możliwości jest zastosowanie podejścia perfuzji wstecznej, w którym serce jest kaniulowane przez aortę w celu dostarczenia enzymów. Chociaż jest to opłacalne podejście, może powodować zmienność jakości miocytów przedsionków z powodu niespójności w perfuzji przedsionków. Przyjęliśmy podejście "chunkowe" do izolacji miocytów przedsionkowych, które eliminuje potrzebę wstecznej perfuzji serca. Nasze podejście wykorzystuje połączenie trawienia enzymatycznego i mechanicznej dysocjacji tkanki przedsionkowej, które konsekwentnie i niezawodnie daje dużą liczbę izolowanych miocytów przedsionków, które nadają się do badań typu patch-clamp. Chociaż opisujemy tutaj nasze podejście za pomocą tkanki uszka przedsionka, podejście to można zastosować do dowolnego obszaru mięśnia sercowego przedsionka (tj. Prawych lub lewych przydatków przedsionka, wolnych ścian, ścian tylnych), który wybierze badacz. Podejście to jest idealne do badań elektrofizjologii mięśni przedsionków u genetycznie zmodyfikowanych myszy, w mysich modelach chorób sercowo-naczyniowych lub do badania wpływu związków farmakologicznych 5,6,17,18,19.
Protokół
Wszystkie procedury na zwierzętach zostały zatwierdzone przez Komitet ds. Opieki nad Zwierzętami Uniwersytetu w Calgary i zostały przeprowadzone zgodnie z wytycznymi Kanadyjskiej Rady ds. Opieki nad Zwierzętami. Izolację miocytów przedsionkowych, obrazy i reprezentatywne wyniki opisane poniżej uzyskano od 15-tygodniowego samca myszy C57Bl/6 typu dzikiego. Rutynowo używamy tego protokołu do izolowania miocytów przedsionków od myszy typu dzikiego17,18, myszy z mutacjami genetycznymi19,20 i mysich modeli chorób, takich jak przewlekłe nadciśnienie6,14. Protokół może być stosowany podobnie w przypadku samców lub samic myszy. Wykorzystaliśmy również podobną wersję tej procedury izolacji, aby wyizolować miocyty węzła zatokowo-przedsionkowego z serca myszy 17,21,22,23. Schemat blokowy tego eksperymentalnego protokołu znajduje się w Rysunek 1.
1. Przygotowanie roztworów podstawowych i sprzętu
- Przygotuj 1 naczynie preparacyjne, dodając elastomer silikonowy zgodnie z instrukcjami producenta. Dodaj tyle elastomeru silikonowego, aby pokryć dno 10-centymetrowej szalki Petriego na głębokość 1 cm. Pozostawić do wyschnięcia, a następnie włożyć 6 szpilek do owadów do naczynia.
nuta: To silikonowe naczynie preparacyjne może być ponownie używane przez wiele miesięcy i przechowywane w temperaturze pokojowej. - Przygotuj 3 polerowane ogniowo pipety Pasteura z otworem o średnicy 1 mm (mały otwór), 3 mm (średni otwór) lub 5 mm (duży otwór), jak pokazano na Rysunek 2A. Aby wykonać te pipety, naciąć pipetę Pasteura, a następnie zatrzasnąć wzdłuż znacznika nacięcia, aby uzyskać otwór nieco większy niż pożądany rozmiar otworu. Użyj metalowego pilnika, aby wygładzić powierzchnię, a następnie wypoleruj ten otwór ogniowo za pomocą otwartego ognia.
nuta: W ten sposób uzyskasz gładką, wypolerowaną na ogniowo krawędź z otworem o pożądanej średnicy. Ważne jest, aby otwór był wolny od pęknięć i szorstkich powierzchni. Te polerowane ogniowo pipety mogą być przechowywane w temperaturze pokojowej i ponownie używane przez wiele miesięcy. - Przygotować roztwory podstawowe dla roztworu Tyrode'a o pH 6,9 i roztworu o pH 7,4 Tyrode'a, jak podano w Tabeli 1. Przygotuj również po 10 ml 1 M MgCl2, 1 M CaCl2 i 100 mM CaCl2. Do wszystkich roztworów należy używać ultraczystej wody i przechowywać w temperaturze 4 °C przez okres do 2 miesięcy.
- Przygotować 1 l zmodyfikowanego roztworu Krafta-Brühe'a (KB) zgodnie ze wskazaniami w Tabeli 2. Używaj ultraczystej wody. Podzielić roztwór na 20 ml porcji i przechowywać w temperaturze -20 °C przez okres do 2 miesięcy.
2. Przygotowanie roztworów i konfiguracja izolacji do izolacji miocytów przedsionkowych
- Przygotować 50 ml zmodyfikowanego roztworu Tyrode'a o pH 7,4, jak opisano w Tabeli 3, w kolbie Erlenmeyera o pojemności 125 ml, używając roztworów podstawowych 1 M CaCl2 i 1 M MgCl2. Umieścić kolbę Erlenmeyera w łaźni wodnej o temperaturze 35 °C do czasu użycia, jak pokazano na rysunku Rysunek 2B.
- Przygotować zmodyfikowany roztwór Tyrode'a o pH 6,9 zgodnie z opisem w Tabeli 4 w probówce o pojemności 50 ml, używając 100 mM roztworu podstawowego CaCl2. Porcjować 2,5 ml tego roztworu do każdej z trzech probówek okrągłodennych o pojemności 5 ml. Umieść te rurki na ruszcie umieszczonym w łaźni wodnej o temperaturze 35 °C do czasu użycia, jak pokazano na Rysunek 2B.
- Przygotować roztwór enzymu zgodnie z opisem w tabeli 5 w probówce o okrągłym dnie o pojemności 14 ml. Aby przygotować roztwór proteazy, dodaj 1 mg proteazy na 100 μl ultraczystej wody. Umieścić probówkę zawierającą ten roztwór enzymu w ruszcie i inkubować w łaźni wodnej o temperaturze 35 °C aż do użycia.
- Rozmrozić jedną porcję zmodyfikowanego roztworu KB w łaźni wodnej o temperaturze 35 °C. Porcję 2,5 ml roztworu KB do każdej z trzech probówek okrągłodennych o pojemności 5 ml i 2,5 ml do probówki o okrągłym dnie o pojemności 14 ml. Umieść te probówki na ruszcie i inkubuj w łaźni wodnej o temperaturze 35 °C aż do użycia, jak pokazano na Rysunek 2B.
- Rozłóż płytkę preparacyjną, narzędzia do preparacji, pipetę Pasteura i pipety polerowane ogniowo, jak pokazano na rysunku Rysunek 2B.
3. Sekcja wyrostka przedsionkowego myszy
- Wstrzyknąć myszu 0,2 ml heparyny (10 000 USP U/10 ml) we wstrzyknięciu dootrzewnowym i odczekać 5 minut na wchłonięcie.
- Umieść mysz w komorze indukcyjnej i znieczulenie przez inhalację izofluranu (3-4%). Izofluran i tlen są dostarczane za pomocą urządzenia znieczulającego, a odpadowy gaz znieczulający jest usuwany. Gdy mysz zostanie znieczulona i nie będzie wykazywać odruchu szczypania palców u stóp, należy ją poddać eutanazji przez szybkie zwichnięcie szyjki macicy. Umieść mysz na ręczniku papierowym lub tablicy korkowej i przyklej łapy taśmą, aby utrzymać mysz na miejscu.
- Zwilż klatkę piersiową myszy 70% etanolem. Usuń futro i skórę pokrywającą klatkę piersiową za pomocą zakrzywionych nożyczek. Następnie użyj kleszczyków do zębów szczura, aby podnieść mostek, a następnie przeciąć przeponę wzdłuż krawędzi żeber. Usuń całą klatkę piersiową za pomocą zakrzywionych nożyczek, aby odsłonić serce.
- Aby usunąć przydatek przedsionkowy (prawy lub lewy), delikatnie unieś wyrostek za pomocą drobnych kleszczy preparacyjnych i wytnij go nożyczkami sprężynowymi. Natychmiast przenieść wyrostek przedsionkowy do pokrytego silikonem naczynia preparacyjnego zawierającego 20 ml podgrzanego, zmodyfikowanego roztworu Tyrode'a o pH 7,4 opisanego w kroku 2.1.
- Umieść jedną szpilkę preparacyjną u góry i jedną szpilkę u dołu otworu uszka przedsionkowego. Za pomocą pipety pastwiskowej przepłucz przedsionki podgrzanym zmodyfikowanym roztworem Tyrode'a o pH 7,4, aby usunąć krew. Otwórz przyuszek przedsionka, przecinając go wzdłuż górnej i dolnej krawędzi wyrostka przedsionkowego. Następnie przypnij rogi wyrostka przedsionkowego w dół, aby utworzyć płaski, prostokątny kawałek tkanki, jak pokazano na Rysunek 3A.
4. Izolacja miocytów przedsionkowych
UWAGA: Wszystkie kroki w tej sekcji są wykonywane w temperaturze 35 °C, z rurkami zanurzonymi w kąpieli wodnej o temperaturze 35 °C. Zachowaj ostrożność podczas przenoszenia pasków tkanek między probówkami z okrągłym dnem, aby upewnić się, że tylko tkanka (a nie roztwór) jest przenoszona między probówkami.
- Pokrój przyrostek przedsionka na około 8-10 równych pasków (około 0,7 mm szerokości) za pomocą nożyczek sprężynowych i drobnych kleszczyków. Przykład pasków tkanki przedsionkowej pokazano w Rysunek 3B. Zwróć uwagę, że paski kurczą się po odcięciu od głównego kawałka tkanki. Za pomocą pipety o małym otworze, polerowanej ogniowo, przenieś paski tkanek do pierwszej probówki zawierającej podgrzany, zmodyfikowany roztwór Tyrode'a o pH 6,9 opisany w kroku 2.2. Odczekaj 5 min.
- Umyj paski chusteczek, przenosząc je do drugiej, a następnie trzeciej okrągłej dolnej probówki zawierającej zmodyfikowany roztwór Tyrode'a o pH 6,9 przygotowany w kroku 2.2 za pomocą pipety o średnim otworze, polerowanej ogniowo.
- Aby umyć paski chusteczek, zakryj probówkę z okrągłym dnem o pojemności 5 ml i delikatnie odwróć probówkę 3 razy. Pozwól paskom tkanek osiąść na dnie probówki przed przeniesieniem pasków tkanki do następnej probówki za pomocą pipety polerowanej ogniowo o średnim otworze.
- Przenieść paski tkanek do roztworu enzymatycznego opisanego w kroku 2.3 za pomocą pipety o średnim otworze i inkubować przez 30 minut. Obracać probówkę co 3-5 minut, aby zapobiec przyleganiu pasków tkanek do siebie.
nuta: Na początku trawienia enzymatycznego paski tkanek szybko osiadają po zawirowaniu. Po około 20 minutach trawienia paski tkanek zaczynają unosić się w roztworze enzymatycznym po zawirowaniu. W tym czasie paski tkanki przedsionkowej również zmieniają swój wygląd z bladoróżowego na biały podczas trawienia. - Po mineralizacji enzymatycznej wykonać trzy płukania, używając 2,5 ml roztworu KB w 5 ml probówek okrągłodennych przygotowanych w kroku 2.4. Przy każdym myciu delikatnie odwróć probówkę 3 razy przed przeniesieniem chusteczki do następnej probówki za pomocą pipety polerowanej ogniowo o średnim otworze. Po ostatnim umyciu przenieś paski do 14 ml okrągłej probówki zawierającej 2,5 ml roztworu KB. Odczekaj 5 min.
- Delikatnie rozcieraj tkankę przez 7,5 minuty za pomocą pipety o szerokim otworze, polerowanej ogniowo. Spowoduje to mechaniczną dysocjację pasków tkanek i uzyskanie mętnego roztworu wypełnionego pojedynczymi miocytami przedsionków.
nuta: Podczas rozcierania tkanka staje się biała, a roztwór staje się mętny. Siła rozcierania, osiągana poprzez zmianę zarówno częstotliwości, jak i prędkości wypychania pasków tkankowych z polerowanej ogniowo pipety o szerokim otworze, powinna być dostosowana do indywidualnej izolacji. Jeśli rozcieranie jest zbyt delikatne, wydajność komórek będzie niska, podczas gdy zbyt ostre rozcieranie spowoduje powstanie wielu martwych komórek. Unikaj bąbelków podczas trytuacji. - Napełnij 14 ml okrągłodenną probówkę zawierającą rozdrobnione paski tkankowe roztworem KB do końcowej objętości 7-10 ml, w zależności od pożądanej gęstości komórek do użytku doświadczalnego. Umieść tę probówkę w temperaturze pokojowej na 1 godzinę. Po tym okresie inkubacji komórki mogą być wykorzystywane do różnych eksperymentów przez okres do 7 godzin. Komórki mogą być również przechowywane w temperaturze 4 °C do 7 godzin.
Wyniki
Miocyty przedsionkowe wyizolowane zgodnie z tym protokołem mogą być wykorzystane do charakteryzacji właściwości elektrofizjologicznych tych komórek przy użyciu techniki patch-clamp. Alikwoty miocytów przedsionkowych w roztworze KB można przenieść do komory rejestracyjnej standardowego aparatu do patch-clamp i poddać superfuzji roztworami odpowiednimi dla rodzaju rejestracji, którą zamierza przeprowadzić badacz. Miocyty przedsionkowe wyizolowane zgodnie z tym protokołem najlepiej wykorzystać do badań elektrofizjologicznych w ciągu 6-7 h od izolacji. Poniżej przedstawiono reprezentatywne dane z rejestracji patch-clamp uzyskane w naszym laboratorium.
Rysunek 4 przedstawia przykłady wyizolowanych miocytów przedsionkowych od prawidłowych myszy, przygotowanych zgodnie z powyższym protokołem. Wyizolowane miocyty przedsionkowe mają zazwyczaj około 100 µm długości i 10 µm szerokości z wyraźnymi prążkami. Pojemność wyizolowanych miocytów przedsionkowych wynosi zazwyczaj 40-70 pF.
Rysunek 5A przedstawia przykład potencjału czynnościowego (AP) miocyta przedsionkowego zarejestrowanego przy użyciu techniki perforated patch-clamp w trybie pomiaru prądu (current clamp), zgodnie z naszymi wcześniejszymi opisami6,19,20. Dane zbiorcze obrazujące typowe parametry AP miocytów przedsionkowych podano w Tabeli 6. W szczególności przedstawiamy dane zbiorcze dla pomiarów spoczynkowego potencjału błonowego (RMP), maksymalnej prędkości narastania (Vmax), overshootu (OS) oraz czasu trwania AP przy 50% (APD50), 70% (APD70) i 90% (APD90) repolaryzacji (Tabela 6). AP można rejestrować również w konfiguracji whole cell14. Składy roztworów do superfuzji i do pipety stosowane przy rejestracji AP znajdują się w Tabeli 7 oraz Tabeli 8.
Rysunek 5B przedstawia reprezentatywną rodzinę prądów Na+ (INa) zarejestrowanych w konfiguracji whole-cell techniki patch-clamp. Prądy te rejestrowano przy użyciu 50 ms skoków napięcia (voltage clamp) w zakresie od -100 do +10 mV z potencjału spoczynkowego -120 mV. Podejścia i protokoły rejestracji INa zostały przez nas opisane wcześniej6,14,20. Podsumowanie zależności INa IV przedstawiono również na Rysunku 5B. Roztwory użyte do rejestracji INa przedstawiono w Tabeli 7 i Tabeli 8.
Rysunek 5C przedstawia reprezentatywną rodzinę prądów Ca2+ (ICa,L) zarejestrowanych w konfiguracji whole-cell techniki patch-clamp. Prądy te rejestrowano za pomocą 250 ms skoków potencjału w zakresie od -60 do +80 mV z potencjałem spoczynkowym -70 mV. Warunki eksperymentalne, które można zastosować do pomiaru ICa,L, zostały opisane wcześniej17,18,20. Podsumowanie zależności ICa,L IV przedstawiono również na Rysunku 5C. Roztwory użyte do rejestracji ICa,L znajdują się w Tabeli 7 i Tabeli 8.
Rysunek 5D przedstawia reprezentatywną rodzinę prądów K+ (IK) zarejestrowanych w konfiguracji whole-cell techniki patch-clamp. Prądy te rejestrowano z potencjału spoczynkowego -80 mV, stosując 500 ms skoki potencjału w zakresie od -120 mV do +80 mV, zgodnie z naszymi wcześniejszymi opisami6,14. Podsumowanie zależności IV dla całkowitego IK przedstawiono również na Rysunku 5D. Roztwory użyte do rejestracji IK znajdują się w Tabeli 7 i Tabeli 8.
Zastosowanie tych podejść do zapisu potencjałów czynnościowych (APs) oraz głównych rodzin prądów jonowych, w tym prądów Na+, Ca2+ i K+ (jak zilustrowano powyżej), pozwala badaczowi na rygorystyczną analizę elektrofizjologii miocytów przedsionkowych w wielu warunkach eksperymentalnych. W naszym laboratorium rutynowo stosujemy te techniki do badania elektrofizjologii miocytów przedsionkowych u zdrowych myszy, w mysich modelach chorób serca oraz u myszy modyfikowanych genetycznie6,14,17,18,19,20.
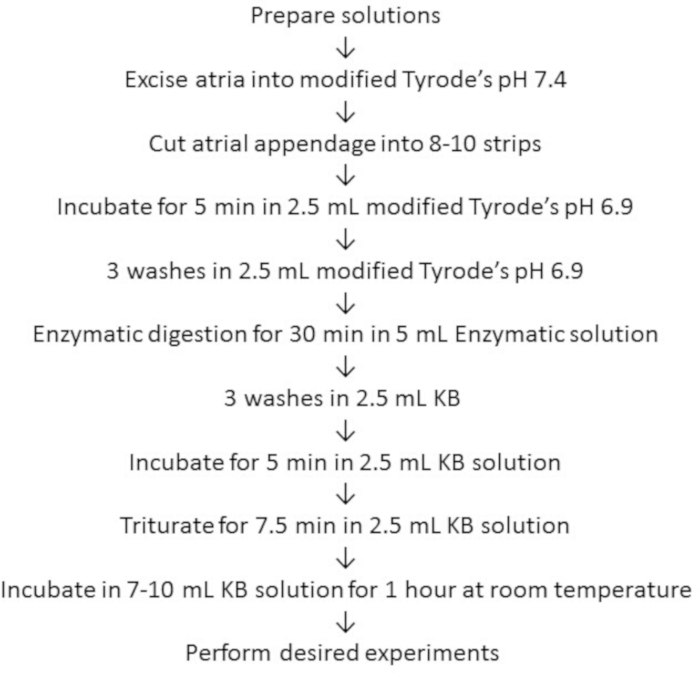
Rysunek 1: Schemat protokołu izolacji miocytów przedsionkowych. Podsumowanie kroków wykorzystanych do izolacji miocytów przedsionkowych zgodnie z niniejszym protokołem. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rycina 2: Układ eksperymentalny i narzędzia do sekcji stosowane przy izolacji miocytów przedsionkowych. (A). Pipeta wąska, wypalana nad ogniem, o średnicy otworu 1 mm (po lewej) służy do przenoszenia tkanki po sekcji; pipeta średnia, wypalana nad ogniem, o średnicy otworu 3 mm (środek) służy do przenoszenia pasków tkanki podczas izolacji, a pipeta szeroka, wypalana nad ogniem, o średnicy otworu 5 mm (po prawej) służy do tryturacji trawionej tkanki przedsionka. (B). Układ eksperymentalny do izolacji miocytów przedsionkowych. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
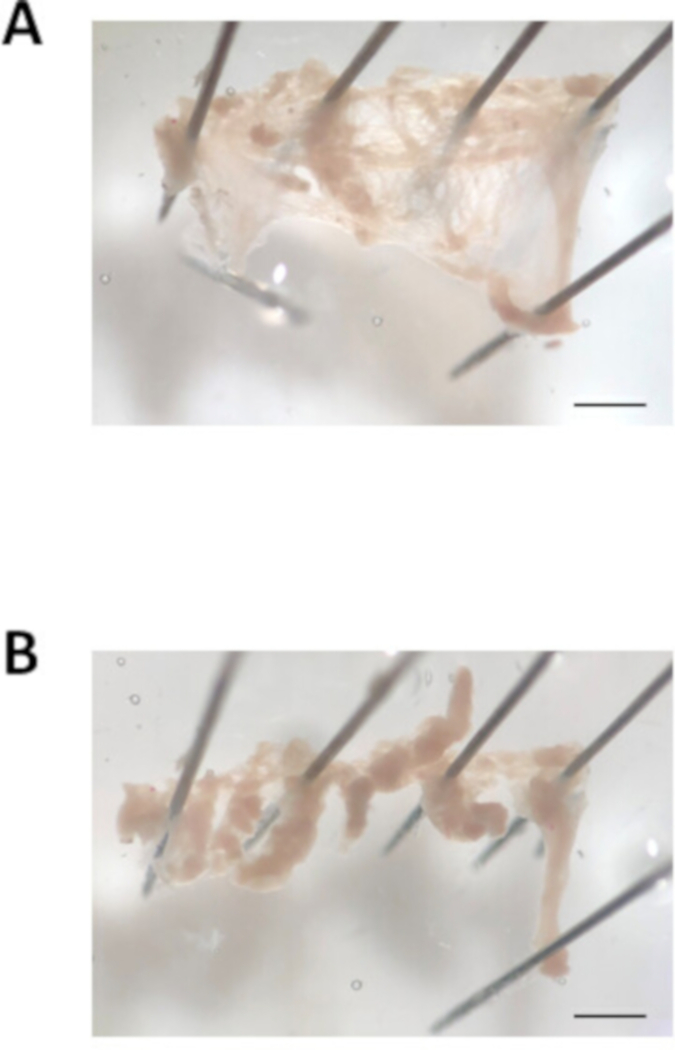
Rysunek 3: Obraz preparatu wyciętego wyrostka przedsionka. (A). Reprezentatywny obraz w świetle przechodzącym wyciętego wyrostka przedsionka, rozcięcia i rozpiętego szpilkami. (B). Reprezentatywny obraz w świetle przechodzącym wyrostka przedsionka pociętego na paski tkanki o szerokości około 0,7 mm. Pasek skali = 1 mm. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
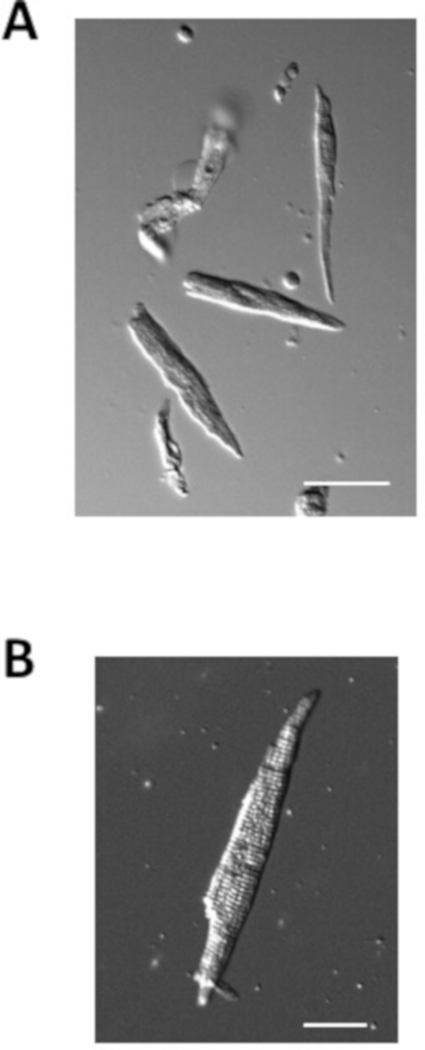
Rysunek 4: Obrazy izolowanych miocytów przedsionkowych. (A). Obraz w polu jasnym izolowanych miocytów przedsionkowych bezpośrednio po izolacji. Pasek skali = 50 μm. (B). Obraz w polu jasnym pojedynczego izolowanego miocytu przedsionkowego. Pasek skali = 100 μm. Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.

Rycina 5: Reprezentatywne dane z techniki patch-clamp uzyskane z izolowanych miocytów przedsionkowych. (A). Reprezentatywny zapis stymulowanego AP z izolowanego miocytu przedsionkowego. Podsumowanie parametrów AP przedstawiono w Tabeli 6. Do roztworu w pipecie dodano amfoterycynę B (200 μg/mL) w celu permeabilizacji błony komórkowej. (B). Reprezentatywne zapisy INa (po lewej) i zbiorcza krzywa IV dla INa (po prawej) z izolowanego miocytu przedsionkowego. Do zmodyfikowanego roztworu Tyrode'a dodano nifedypinę (10 μM) w celu zablokowania ICa,L podczas rejestracji INa. C. Reprezentatywne zapisy ICa,L (po lewej) i zbiorcza krzywa IV dla ICa,L (po prawej) z izolowanego miocytu przedsionkowego. (D). Reprezentatywne zapisy IK (po lewej) i zbiorcza krzywa IV dla IK (po prawej) z izolowanego miocytu przedsionkowego. Roztwory użyte do rejestracji każdego z tych prądów wymieniono w Tabeli 7 i Tabeli 8. Zbiorcze krzywe IV stanowią średnie pomiary z 10 miocytów przedsionkowych izolowanych od 15-tygodniowej samca myszy szczepu C57Bl/6 typu dzikiego. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
| Roztwór zapasowy Tyrode’a pH 6.9 | Roztwór zapasowy Tyrode’a pH 7.4 | |
| Odczynnik | w mM | w mM |
| NaCl | 140 | 140 |
| KCl | 5.4 | 5.4 |
| KH2PO4 | 1.2 | 1.2 |
| HEPES | 5 | 5 |
| Objętość końcowa | 500 mL | 1 L |
| Końcowe pH z NaOH | 6.9 | 7.4 |
Tabela 1: Roztwory zapasowe Tyrode’a o pH 7,4 i pH 6,9.Skład roztworów zapasowych Tyrode’a (pH 7,4 i pH 6,9), które można przygotować z wyprzedzeniem i przechowywać w temperaturze 4 °C do 2 miesięcy.
| Chemiczny | w mM |
| K-glutaminian | 100 |
| K-aspar긴ian | 10 |
| KCl | 25 |
| KH2PO4 | 10 |
| MgSO4 | 2 |
| Tauryna | 20 |
| Kreatyna | 5 |
| EGTA | 0.5 |
| Glukoza | 20 |
| HEPES | 5 |
| BSA | 0.10% |
| Objętość końcowa | 1 L |
| Końcowe pH z użyciem KOH | 7.2 |
Tabela 2: Modyfikowany roztwór KB. Receptura modyfikowanego roztworu KB, który można przygotować wcześniej, podzielić na alykwoy i przechowywać w temperaturze -20 °C do 2 miesięcy.
| Chemiczny | Ilość |
| Glukoza | 5,55 mM |
| MgCl22 | 1 mM |
| CaCl22 | 1,8 mM |
| Roztwór zapasowy Tyrode'a pH 7,4 | 50 mL |
| Heparyna | 250 μL |
Tabela 3: Modyfikowany roztwór Tyrode'a o pH 7,4 z glukozą, magnezem, wapniem i heparyną.Skład modyfikowanego roztworu Tyrode'a o pH 7,4 stosowanego do sekcji tkanki przedsionkowej. Roztwór ten należy przygotować bezpośrednio przed użyciem i przechowywać w łaźni wodnej o temperaturze 35 °C do momentu zastosowania.
| Chemiczny | Ilość |
| Glukoza | 18,5 mM |
| Tauryna | 49,96 mM |
| BSA | 15 mg |
| CaCl22 | 0,066 mM |
| Roztwór stokowy Tyrode'a pH 6,9 | 15 mL |
Tabela 4: Modyfikowany roztwór Tyrode'a o pH 6,9 zawierający glukozę, taurynę, BSA i niskie stężenie wapnia.Skład modyfikowanego roztworu Tyrode'a o pH 6,9 stosowanego do izolacji miocytów przedsionkowych. Roztwór ten należy przygotować bezpośrednio przed użyciem i przechowywać w kąpieli wodnej o temperaturze 35 °C do momentu zastosowania.
| Chemiczny | Ilość |
| Kolagenaza | 1,064 j |
| Elastaza | 9 U |
| Roztwór proteazy | 65.2 μL |
| Modyfikowany roztwór Tyroego o pH 6,9 | 5 ml |
Tabela 5: Roztwór enzymatyczny. Skład roztworu enzymatycznego używanego do trawienia enzymatycznego pasków tkanki przedsionkowej. Roztwór ten należy przygotować bezpośrednio przed użyciem i przechowywać w kąpieli wodnej o temperaturze 35 °C do momentu zastosowania.
| Parametr | Średnia |
| RMP (mV) | -74.2 ± 0.7 |
| Vmax (V/s) | 144.6 ± 5.8 |
| OS (mV) | 71.9 ± 3.0 |
| APD50 (ms) | 11.1 ± 1.7 |
| APD70 (ms) | 23.0 ± 4.6 |
| APD90 (ms) | 54.7 ± 7.8 |
Tabela 6: Podsumowanie parametrów AP z izolowanych miocytów przedsionkowych. Dane przedstawiono jako średnia ± SEM, n = 10 miocytów przedsionkowych izolowanych od 15-tygodniowego samca myszy typu dzikiego C57Bl/6.
| Prądy potasowe i potencjały czynnościowe | Prądy sodowe | Prądy wapniowe | |
| Chemiczny | w mM | w mM | w mM |
| NaCl | 140 | 5 | |
| KCl | 5.4 | ||
| MgCl2 | 1 | 1 | 1 |
| CaCl2 | 1 | 1 | 2 |
| HEPES | 10 | 10 | 10 |
| Glukoza | 5.5 | 5.5 | 5.5 |
| CsCl | 130 | ||
| TEA-Cl | 5.4 | 145.5 | |
| pH | 7,4 z NaOH | 7,4 z CsOH | 7,4 z CsOH |
Tabela 7: Skład roztworów Tyrode'a używanych podczas eksperymentów patch-clamp.Skład roztworów Tyrode'a używanych do rejestracji AP, INa, ICa,L oraz IK z izolowanych miocytów przedsionkowych.
| Prądy potasowe i potencjały czynnościowe | Prądy sodowe | Prądy wapniowe | |
| Chemiczny | w mM | w mM | w mM |
| NaCl | 5 | 5 | 5 |
| KCl | 140 | ||
| MgCl2 | 1 | 1 | 1 |
| CaCl2 | 0.2 | 0.2 | 0.2 |
| HEPES | 10 | 10 | 10 |
| EGTA | 5 | 5 | |
| Mg-ATP | 4 | 5 | 4 |
| Na-GTP | 0.3 | 0.3 | 0.3 |
| fosfokreatyna sodowa | 6.6 | 6.6 | |
| CsCl | 130 | 135 | |
| BAPTA | 5 | ||
| pH | 7,2 z KOH | 7,2 z CsOH | 7,2 z CsOH |
Tabela 8: Skład wewnętrznego roztworu pipety stosowanego podczas eksperymentów patch-clamp. Skład roztworów wypełniających pipety stosowanych do rejestracji AP, INa, ICa,L oraz IK z izolowanych miocytów przedsionków.
Dyskusja
Nasze laboratorium rutynowo wykorzystuje ten protokół do izolowania mysich miocytów przedsionkowych do wykorzystania w eksperymentach z klamrą w celu zbadania wpływu różnych postaci chorób sercowo-naczyniowych, mutacji genetycznych lub związków farmakologicznych na elektrofizjologię miocytów przedsionków. Chociaż jest wysoce odtwarzalna, jakość danych uzyskanych z izolowanych miocytów przedsionkowych zależy od jakości izolacji. Ponadto ponowne wprowadzenie wapnia po izolacji miocytów przedsionkowych spowoduje śmierć komórki w populacji izolowanych miocytów z powodu paradoksu wapnia16. W związku z tym izolowanie żywotnych, wysokiej jakości miocytów przedsionkowych przy użyciu tego podejścia wymaga praktyki i optymalizacji w wielu punktach izolacji. Szacuje się, że po optymalizacji od 70 do 90% wszystkich miocytów przedsionków wyizolowanych przy użyciu tego podejścia będzie zarówno tolerancyjnych na wapń, jak i w kształcie pręcików. Kroki wymagające najwięcej praktyki i optymalizacji omówiono poniżej.
Szybkość i skuteczność preparacji będzie miała dalszy wpływ na jakość wyizolowanych komórek. Ważne jest, aby poświęcić trochę czasu, aby upewnić się, że cała krew została usunięta z tkanki przedsionkowej i że paski tkanek zostały przycięte do podobnego rozmiaru. Usunięcie przyuszka przedsionkowego, pocięcie tkanki na paski i przeniesienie pasków tkanki do pierwszej probówki ze zmodyfikowanym roztworem Tyrode o pH 6,9 powinno zająć około 5 minut. Jeśli jednak ten krok trwa zbyt długo, jakość tkanki może być zagrożona.
Ważne jest również, aby paski tkanek były przycinane do jednolitego rozmiaru w obrębie izolacji i między sercami. Jeśli paski tkanek są zbyt duże lub zbyt małe lub jeśli nie są jednolite w izolacji, może to powodować problemy zarówno podczas trawienia enzymatycznego, jak i rozcierania. Dzieje się tak, ponieważ małe paski będą dokładniej trawione, a duże paski będą trawione niedostatecznie. Równie ważne jest uwzględnienie badanego genotypu i ustawienia choroby, ponieważ wielkość uszka przedsionkowego może się różnić u różnych zwierząt. Na przykład serca przerostowe mają większe przydatki przedsionkowe w porównaniu ze zdrowymi sercami, dlatego eksperymentator może wyciąć więcej pasków w sercach przerostowych w porównaniu z sercami o normalnej wielkości. W związku z tym optymalizacja rozmiaru wyciętych pasków tkankowych i zastosowanie tych wymiarów do każdego pojedynczego przydatka przedsionka znacznie poprawi odtwarzalność izolacji miocytów między warunkami eksperymentalnymi.
Delikatna równowaga między trawieniem enzymatycznym a dysocjacją mechaniczną jest kluczem do udanej izolacji miocytów przedsionkowych przy użyciu tego protokołu. Jeśli tkanka nie zostanie odpowiednio zawirowana podczas trawienia enzymatycznego, poszczególne paski tkanek będą miały tendencję do zbijania się i sklejania ze sobą, co ograniczy skuteczność trawienia enzymatycznego. Jeśli jest zbyt często lub energicznie mieszany, może uszkodzić tkankę przedsionkową, co spowoduje izolację komórek niezdolnych do życia. Mechaniczna dysocjacja izolowanych miocytów przedsionków od pasków tkankowych podczas trituracji jest najbardziej krytycznym krokiem do przećwiczenia i optymalizacji przy użyciu tego podejścia do izolacji miocytów przedsionkowych. Jeśli rozcieranie jest zbyt delikatne, wydajność komórek będzie niska. Z drugiej strony, jeśli trituration jest zbyt ostry, wówczas duża ilość niezdolnych do życia miocytów zostanie wyizolowana, a jakość danych uzyskanych podczas eksperymentów z patch-clamp będzie zagrożona. Ponadto skład przedsionków może wpływać na izolację. Na przykład, jeśli tkanka jest zwłókniona, może być konieczna modyfikacja trawienia enzymatycznego i etapów rozcierania. Dlatego ważne jest, aby poświęcić czas na rozwinięcie umiejętności wymaganych do uzyskania wysokiej jakości komórek podczas rozcierania, które można wykorzystać do eksperymentów typu patch-clamp.
Podobnie jak w przypadku wszystkich technik eksperymentalnych, istnieją ograniczenia. Technika ta wymaga praktyki w celu powtarzalnego wyizolowania żywotnych, wysokiej jakości miocytów, co z kolei wpłynie na wykonalność wszelkich eksperymentów, które można przeprowadzić przy użyciu tych miocytów. Podejście to polega również na tym, że miocyty terminalne i przedsionkowe wyizolowane przy użyciu tego podejścia mogą być stosowane tylko w dniu izolacji. Nasze laboratorium wykorzystuje komórki w ciągu 6-7 godzin od izolacji.
To podejście polegające na izolowaniu kardiomiocytów przedsionkowych ma kilka zastosowań. Na przykład podejście to można zmodyfikować w celu wyizolowania miocytów przedsionków (a także fibroblastów serca) z innych gatunków, w tym biopsji tkanek ludzkich przedsionków. Ponadto zaletą stosowania tej metody fragmentów do izolacji miocytów przedsionkowych (w przeciwieństwie do wstecznej perfuzji serca) jest to, że można ją zmodyfikować tak, aby izolować kardiomiocyty z innych regionów serca, takich jak węzeł zatokowo-przedsionkowy lub inne określone regiony mięśnia sercowego przedsionków, lub obejmować cały obszar nadkomorowy serca. Nasze laboratorium wykorzystuje kardiomiocyty przedsionkowe do eksperymentów z klamrą krosową do pomiaru potencjałów czynnościowych i prądów jonowych, chociaż to podejście nie musi ograniczać się do tej techniki. Na przykład izolowane miocyty mogą być wykorzystywane do badania zmian w stanach przejściowych wapnia i kurczliwości w różnych warunkach eksperymentalnych. Kardiomiocyty przedsionkowe mogą być również wykorzystywane w badaniach immunofluorescencyjnych w celu zbadania lokalizacji białek lub struktur będących przedmiotem zainteresowania. W związku z tym podejście to jest bardzo wszechstronne i ma wiele możliwych zastosowań.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca jest wspierana przez granty operacyjne z Kanadyjskich Instytutów Badań nad Zdrowiem (MOP 93718, 142486) oraz Heart and Stroke Foundation of Canada dla R.A. Rose. H.J. Jansen jest laureatem stypendium podoktorskiego Killam.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Kwas 1,2-bis(2-aminofenoksy)etano-N, N, N', N'-tetraoctowy 98% | Sigma | A4926-1G | |
| Sól disodowa adenozyno-5'-trifosforanu hydrat BioXtra, > 99%, z mikrobiologicznego | Sigma | A7699-1G | |
| Sól magnezowa adenozyno-5'-trifosforanu > 95%, bakteryjna | Sigma | A9187-1G | |
| Amfoceterycyna B ze Streptomyces sp. ~80% (HPLC), proszek | Sigma | A4888-500 MG | |
| Albumina surowicy bydlęcej | Sigma | A3059-50G | |
| Chlorek wapnia dwuwodny | Sigma | 223506-500G | |
| Odczynnik chlorku cezu Plus, 99,9% | Sigma | 289329-100G | |
| Wodorotlenek cezu jednowodny > 99,5% na bazie metali śladowych | Sigma | 562505-1KG | |
| Kolagenaza typu 2 | Worthington Biochemical Corporation | LS004176 | |
| Kreatyna bezwodna | Sigma | C0780 | |
| D-(+)-Glukoza | Sigma | G7021-1KG | |
| DL-Sól potasowa kwasu asparaginowego | Sigma | A2025-100G | |
| Zawiesina elastazy | Worthington Biochemical Corporation | ||
| Kwas glikolu etylenowego-bis(2-amino-etyloeter)-N,N,N',N'-tetraoctowego >97,0% | Sigma | E4378-25G | |
| Sól sodowa 5'-trifosforanu guanozyny > 95% (HPLC), proszek | Sigma | G8877-250MG | |
| Heparyna 10 000 USP U/10 mL | SANDOZ | 10750 | |
| HEPES > 99,5% (miareczkowanie) | Sigma | H3375-500G | |
| Jednowodny roztwór soli potasowej kwasu L-glutaminowego > 99% (HPLC), proszek | Sigma | G1501-500G | |
| Siarczan magnezu | Sigma | M2643-500G | |
| Nifedypina > 98% (HPLC), proszek | Sigma | N7634-1G | |
| Sól disodowa fosfokreatyny hydrat enzymatyczny, ok. 98% | Sigma | P7936-5G | |
| Odczynnik ACS do chlorku potasu, 99,0-100,5% | Sigma | P3911-500G | |
| Wodorotlenek potasu | EM Science | PX1480-1 | |
| Fosforan potasu jednozasadowy | EMD | PX1565-1 | |
| Proteaza ze Streptomyces griseus, typ XIV, >3,5 jednostek/mg ciała stałego, proszek | Sigma | P5147-1G | |
| Odczynnik ACS do chlorku sodu, > 99.0% | Sigma | S9888-2.5KG | |
| Wodorotlenek sodu, granulki, odczynnik 97+%, A.C.S. | Sigma | 221465-500G | |
| Sylgard 184 zestaw elastomerów silikonowych | World Precision Instruments Inc | SYLG184 | |
| Tauryna | Sigma | T0625-100G | |
| Chlorek tetraetyloamonu > 98% (miareczkowanie) | Sigma | T2265-100G |
Bibliografia
- Bartos, D. C., Grandi, E., Ripplinger, C. M. Ion Channels in the Heart. Comprehensive Physiology. 5 (3), 1423-1464 (2015).
- Heijman, J., Voigt, N., Nattel, S., Dobrev, D. Cellular and molecular electrophysiology of atrial fibrillation initiation, maintenance, and progression. Circulation Research. 114 (9), 1483-1499 (2014).
- Jalife, J. Mechanisms of persistent atrial fibrillation. Current Opinion in Cardiology. 29 (1), 20-27 (2014).
- Nattel, S., Maguy, A., Le Bouter, S., Yeh, Y. H. Arrhythmogenic ion-channel remodeling in the heart: heart failure, myocardial infarction, and atrial fibrillation. Physiological Reviews. 87 (2), 425-456 (2007).
- Jansen, H. J., et al. Atrial structure, function and arrhythmogenesis in aged and frail mice. Scientific Reports. 7, 44336(2017).
- Jansen, H. J., et al. Distinct patterns of atrial electrical and structural remodeling in angiotensin II mediated atrial fibrillation. Journal of Molecular and Cellular Cardiology. 124, 12-25 (2018).
- Nerbonne, J. M., Kass, R. S. Molecular physiology of cardiac repolarization. Physiological Reviews. 85 (4), 1205-1253 (2005).
- Grant, A. O. Cardiac ion channels. Circulalation: Arrhythmia and Electrophysiology. 2 (2), 185-194 (2009).
- Schmitt, N., Grunnet, M., Olesen, S. P. Cardiac potassium channel subtypes: new roles in repolarization and arrhythmia. Physiological Reviews. 94 (2), 609-653 (2014).
- Lomax, A. E., Kondo, C. S., Giles, W. R. Comparison of time- and voltage-dependent K+ currents in myocytes from left and right atria of adult mice. American Journal of Physiology Heart and Circulatory Physiology. 285 (5), H1837-H1848 (2003).
- Li, D., Zhang, L., Kneller, J., Nattel, S. Potential ionic mechanism for repolarization differences between canine right and left atrium. Circ Res. 88 (11), 1168-1175 (2001).
- Wirth, K. J., Knobloch, K. Differential effects of dofetilide, amiodarone, and class lc drugs on left and right atrial refractoriness and left atrial vulnerability in pigs. Naunyn Schmiedebergs Archives of Pharmacology. 363 (2), 166-174 (2001).
- Qi, A., Yeung-Lai-Wah, J. A., Xiao, J., Kerr, C. R. Regional differences in rabbit atrial repolarization: importance of transient outward current. American Journal of Physiology. 266 (2 Pt 2), H643-H649 (1994).
- Jansen, H. J., et al. NPR-C (Natriuretic Peptide Receptor-C) Modulates the Progression of Angiotensin II-Mediated Atrial Fibrillation and Atrial Remodeling in Mice. Circulation: Arrhythmia and Electrophysiology. 12 (1), e006863(2019).
- Mangoni, M. E., Nargeot, J. Genesis and regulation of the heart automaticity. Physiological Reviews. 88 (3), 919-982 (2008).
- Voigt, N., Pearman, C. M., Dobrev, D., Dibb, K. M. Methods for isolating atrial cells from large mammals and humans. Journal of Molecular and Cellular Cardiology. 86, 187-198 (2015).
- Springer, J., et al. The natriuretic peptides BNP and CNP increase heart rate and electrical conduction by stimulating ionic currents in the sinoatrial node and atrial myocardium following activation of guanylyl cyclase-linked natriuretic peptide receptors. Journal of Molecular and Cellular Cardiology. 52 (5), 1122-1134 (2012).
- Hua, R., Adamczyk, A., Robbins, C., Ray, G., Rose, R. A. Distinct patterns of constitutive phosphodiesterase activity in mouse sinoatrial node and atrial myocardium. PLoS One. 7 (10), e47652(2012).
- Egom, E. E., et al. Impaired sinoatrial node function and increased susceptibility to atrial fibrillation in mice lacking natriuretic peptide receptor C. Journal of Physiology. 593 (5), 1127-1146 (2015).
- Hua, R., et al. Effects of Wild-Type and Mutant Forms of Atrial Natriuretic Peptide on Atrial Electrophysiology and Arrhythmogenesis. Circulation: Arrhythmia and Electrophysiology. 8 (5), 1240-1254 (2015).
- Krishnaswamy, P. S., et al. Altered parasympathetic nervous system regulation of the sinoatrial node in Akita diabetic mice. Journal of Molecular and Cellular Cardiology. 82, 125-135 (2015).
- Mackasey, M., et al. Natriuretic peptide receptor C (NPR-C) protects against angiotensin II mediated sinoatrial disease in mice. JACC Basic to Translational Science. , (2018).
- Azer, J., Hua, R., Vella, K., Rose, R. A. Natriuretic peptides regulate heart rate and sinoatrial node function by activating multiple natriuretic peptide receptors. Journal of Molecular and Cellular Cardiology. 53 (5), 715-724 (2012).
Przedruki i uprawnienia
