Przedstawiamy protokół do wykonywania dynamicznych pomiarów pH cieczy na powierzchni dróg oddechowych w warunkach cienkich warstw za pomocą czytnika płytek.
Artykuł metodologiczny
Półautomatyczny pomiar fluorescencyjny pH cieczy na powierzchni dróg oddechowych w czasie rzeczywistym pierwotnych komórek nabłonka dróg oddechowych człowieka
W tym artykule
Podsumowanie
Streszczenie
W ostatnich latach podkreślono znaczenie pH powierzchni błony śluzowej w drogach oddechowych poprzez jej zdolność do regulowania nawodnienia płynów powierzchniowych dróg oddechowych (ASL), lepkości śluzu i aktywności peptydów przeciwbakteryjnych, kluczowych parametrów związanych z wrodzoną obroną płuc. Ma to zasadnicze znaczenie w dziedzinie przewlekłych chorób układu oddechowego, takich jak mukowiscydoza (CF), gdzie parametry te są rozregulowane. Podczas gdy różne grupy badały pH ASL zarówno in vivo, jak i in vitro, ich metody wskazują na stosunkowo szeroki zakres wartości pH ASL, a nawet sprzeczne wyniki dotyczące wszelkich różnic pH między komórkami bez mukowiscydozy i mukowiscydozą. Co więcej, ich protokoły nie zawsze zawierają wystarczająco dużo szczegółów, aby zapewnić odtwarzalność, większość z nich ma niską przepustowość i wymaga drogiego sprzętu lub specjalistycznej wiedzy do wdrożenia, co utrudnia ich ustalenie w większości laboratoriów. W tym miejscu opisujemy półautomatyczny test czytnika płytek fluorescencyjnych, który umożliwia pomiar pH ASL w czasie rzeczywistym w warunkach cienkowarstwowych, które bardziej przypominają sytuację in vivo. Technika ta pozwala na stabilne pomiary przez wiele godzin z wielu kultur dróg oddechowych jednocześnie i, co ważne, można monitorować dynamiczne zmiany pH ASL w odpowiedzi na agonistów i inhibitory. Aby to osiągnąć, ASL w pełni zróżnicowanych pierwotnych komórek nabłonka ludzkich dróg oddechowych (hAEC) jest barwiony przez noc barwnikiem wrażliwym na pH, aby umożliwić reabsorpcję nadmiaru płynu w celu zapewnienia warunków cienkiej warstwy. Po monitorowaniu fluorescencji w obecności lub braku agonistów, przeprowadza się kalibrację pH in situ w celu skorygowania objętości i stężenia barwnika. Opisana metoda zapewnia wymagane kontrole w celu wykonania stabilnych i powtarzalnych pomiarów pH ASL, które ostatecznie mogą być wykorzystane jako platforma odkrywania leków dla medycyny spersonalizowanej, a także dostosowane do innych tkanek nabłonkowych i warunków eksperymentalnych, takich jak modele zapalne i/lub modele gospodarz-patogen.
Wprowadzenie
Nabłonek dróg oddechowych pokryty jest cienką (~10 μm) warstwą płynu zwaną cieczą powierzchniową dróg oddechowych (ASL). Skład i głębokość (nawodnienie) tego ASL są ściśle regulowane i kontrolują skuteczność oczyszczania dróg oddechowych przez schody ruchome śluzowo-rzęskowe1,2,3,4. W ostatnich latach różne grupy wykazały znaczenie zawartości ASL H+/HCO3- ze względu na jej zdolność do regulowania nawodnienia ASL5, zapalenie dróg oddechowych6 i infekcja7,8 oraz lepkość śluzu8,9. Co ważne, chociaż istnieją pewne kontrowersje, wiele badań wykazało rozregulowanie pH dróg oddechowych w przewlekłych chorobach dróg oddechowych, takich jak astma10,11,12, POChP11, rozstrzenie oskrzeli11, przewlekłe zapalenie zatok przynosowych13,14 i mukowiscydoza (CF)5, 9,15,16,17, co sugeruje, że terapie przywracające pH ASL mogą być przydatne w leczeniu wielu rodzajów przewlekłych chorób dróg oddechowych. Mukowiscydoza jest najczęstszą chorobą genetyczną dziedziczoną autosomalnie recesywnie w populacjach kaukaskich i jest spowodowana mutacjami w genie transbłonowego regulatora przewodnictwa mukowiscydozy (CFTR). Gen ten koduje kanał anionowy (HCO,3- i Cl-), który odgrywa kluczową rolę w transporcie jonów i płynów oraz homeostazie przez nabłonek18. Chociaż mukowiscydoza jest chorobą wielonarządową, patologia płuc jest główną przyczyną zachorowalności i śmiertelności19,20 i biorąc pod uwagę, że główną wadą mukowiscydozy jest upośledzony transport Cl- i HCO3-, można postawić hipotezę, że pH płynu zewnątrzkomórkowego u osób z mukowiscydozą będzie rozregulowane w porównaniu z osobami, które nie mają mukowiscydozy. pomiar pH ASL jest aktualnym obszarem badań nad mukowiscydozą, a różne grupy opracowały techniki pomiaru pH ASL w drogach oddechowych z mukowiscydozą.
In vivo, pH dróg oddechowych zostało zmierzone przy użyciu różnych technik, od mikrosond (światłowodowych, złotych lub mobidowych)5,21,22,23,24 do pomiarów pH odkrztuszanego materiału lub kondensatu wydychanego powietrza (EBC)10,11,12,25,26,27. W dziedzinie badań nad mukowiscydozą pH jest szeroko badane ze względu na jego potencjalne implikacje kliniczne. Teoretycznie zwiększenie zasadowości dróg oddechowych może zwiększyć zabijanie bakterii i poprawić klirens śluzowo-rzęskowy oraz homeostazę dróg oddechowych jako całości. Jednak badania in vivo/ex vivo wskazują na szeroki zakres wartości pH, a dotychczasowe wyniki nie są jednoznaczne co do istnienia różnicy w pH między drogami oddechowymi bez mukowiscydozy i mukowiscydozy. Na początku 2000 roku różne grupy zgłaszały pH EBC. W grupach zdrowych wartości pH wahały się od 4,6 do 8,5, ale co ciekawe, pH EBC okazało się bardziej kwaśne podczas zaostrzeń u osób z CF12,27. Niedawne pomiary in vivo ASL w ludzkich i zwierzęcych modelach mukowiscydozy wykazały sprzeczne wyniki16,17,21,22,23,24 i nadal nie jest jasne, czy drogi oddechowe CF są bardziej kwaśne niż drogi oddechowe bez CF.
Ponieważ pomiar in vivo niższego pH ASL okazał się trudny ze względu na bardzo małą ilość płynu wyściełającego drogi oddechowe i potencjalną obecność czopów śluzowych w chorobie, wiele grup zwróciło się ku eksperymentom in vitro, aby zmierzyć pH ASL, głównie przy użyciu trzech różnych metodologii. Pierwsze podejście wykorzystuje barwniki fluorescencyjne wrażliwe na pH i niezwiązane z komórkami dektranem, które są dodawane w postaci suchego proszku, bezpośrednio do ASL lub przy użyciu obojętnego płynu zwanego perfluorowęglowodorem (PFC)5,8,16,17,28,29,30,31,32. Jednak technika ta zapewnia niewielką kontrolę nad dokładną ilością barwnika, który jest dodawany do kultur i stwarza ryzyko zagregowania barwnika i dużych różnic w stężeniu między próbkami i/lub eksperymentami, a nawet w obrębie tej samej próbki. Na ogół przeprowadza się go również za pomocą mikroskopu konfokalnego, co ogranicza jego zastosowanie, a w wielu przypadkach uniemożliwia szczegółowe monitorowanie wielu próbek i zmiany warunków rejestracji. Drugą metodą stosowaną do pomiaru pH ASL jest użycie mikroelektrod wrażliwych na pH5,15. Pomiary pH ASL nie są zatem zależne od stężenia barwnika fluorescencyjnego i powinny dać bardziej wiarygodne i powtarzalne wyniki. Metoda ta nie pozwala jednak na dynamiczne pomiary pH ASL w czasie rzeczywistym, ani nie jest łatwo dokonać wielokrotnych odczytów w różnych warunkach. Jest to również pracochłonny, złożony proces, który wymaga specjalistycznego sprzętu (produkcja mikroelektrod/elektrofizjologiczne urządzenia rejestrujące) oraz szkolenia w zakresie pobierania próbek do późniejszego pomiaru i kalibracji pH. Co więcej, te dwie techniki wykazały również pewne niespójności w zdolności do uzyskania powtarzalnych wyników: stosując metodę barwnika fluorescencyjnego wrażliwego na pH, Tang i in. podali wartości 7,35 dla ASL bez CF i 7,0 dla CF ASL8, podczas gdy w nowszej pracy z tej samej grupy pH ASL wynosiło 6,9 i 6,4 dla nie-CF i CF, odpowiednio17. W podobny sposób pomiary mikroelektrod dały wartości 6,4 dla ASL bez CF i 6,1 dla CF ASL w badaniu z 2003 roku15, podczas gdy ta sama grupa podała wartości 6,7 dla ASL bez CF i 6,45 dla CF ASL w badaniu z 2013 roku5. Wreszcie, w trzecim podejściu, naukowcy dodają stosunkowo dużą objętość słabo buforowanego roztworu na wierzchołkową (śluzową) powierzchnię kultur, niszcząc w ten sposób warunki cienkiej warstwy i zmieniając skład ASL, a potencjalnie także jego regulację. pH jest następnie mierzone za pomocą barwników fluorescencyjnych wrażliwych na pH33, metodą miareczkowania pH-stat w komorze Ussinga13,14, lub wymaga usunięcia rozcieńczonego ASL z kultur i zmierzenia pH za pomocą elektrody pH, analizatora lub pasków lakmusowych34. Kolejną trudnością w dokładnym pomiarze pH ASL jest ustalenie krzywej standardowej, która jest tak precyzyjna, jak to tylko możliwe. Rzeczywiście, niezależnie od tego, czy odczyty są wykonywane za pomocą elektrody, która będzie mierzyć różnicę potencjału elektrycznego za pomocą żywicy, czy przy użyciu barwników fluorescencyjnych wrażliwych na pH, na oba te podejścia będzie miało wpływ lokalne mikrośrodowisko mierzonych próbek. Mówiąc dokładniej, stała dysocjacji (Kd) barwników może się znacznie różnić w zależności od temperatury, siły jonowej, lepkości, a także potencjalnych interakcji barwnika ze składnikami komórkowymi, takimi jak białka i potencjalnie śluz.
Aby spróbować przezwyciężyć wiele z tych problemów technicznych, a także opracować bardziej dynamiczną, prostszą i bardziej przepustową metodę, stworzyliśmy technikę in vitro, która rejestruje pH ASL w pierwotnych kulturach hAEC za pomocą barwnika fluorescencyjnego wrażliwego na pH w standardowym, komercyjnym czytniku płytek. Metoda ta pozwala na uzyskanie powtarzalnych, dynamicznych, półautomatycznych pomiarów pH ASL w czasie rzeczywistym w pełni zróżnicowanych hodowli komórkowych 3D w warunkach cienkiej warstwy. Dzięki zastosowaniu wielodołkowego czytnika płytek, ten półautomatyczny test może wykonywać niemal równoczesne pomiary pH przez maksymalnie 24 warunki w ciągu 12 godzin i może monitorować efekt dodawania różnych agonistów lub inhibitorów. W niniejszym artykule szczegółowo opisujemy metodologię i przedstawiamy reprezentatywne wyniki w warunkach kontroli dodatniej i ujemnej, które potwierdzają zastosowaną technikę.
Protokół
Primary non-CF (n = 3 dawców, wiek 34, 27 i 23 lata) i CF (n = 3 dawców, wszyscy F580del/F508del; wiek 40, 41, nieznany) hAEC były miłym prezentem od Dr. Scotta H. Randella (Marsico Lung Institute, The University of North Carolina at Chapel Hill, Stany Zjednoczone) i zostały uzyskane na mocy protokołu #03-1396 zatwierdzonego przez University of North Carolina w Chapel Hill Biomedical Institutional Review Board. Komórki hodowano zgodnie z wcześniej opublikowanymi metodami z wykorzystaniem pożywki wzrostu i różnicowania opisanej przez Fulchera i Randella35,36.
1. Przygotowanie próbki
- Hoduj pierwotne hAEC na półprzepuszczalnych podporach o średnicy 6,5 mm (tabela materiałów) na granicy powietrze-ciecz przez co najmniej 28 dni, jak opisano wcześniej35,36.
- Przygotować 50 ml sterylnego roztworu buforowego Krebsa zawierającego HCO3 (HCO3- KRB, stężenia podane są w mM NaHCO3 (25) NaCl (115), KCl (5), CaCl2 (1), MgCl2 (1), D-glukoza (5)) i wysterylizować filtrem za pomocą filtra strzykawkowego 0,2 μm.
- Zmień podłoże podstawno-boczne na świeże podłoże różnicujące zgodnie z opisem w 1.135,36.
UWAGA: Wykazano, że podstawno-boczne stężenie glukozy wpływa na pH ASL33. Na tym etapie zawartość glukozy w kompartmencie podstawno-bocznym można kontrolować, zastępując pożywkę roztworami buforowymi o znanych stężeniach glukozy. - Przemyć wierzchołkową powierzchnię komórek, dodając 150 μl HCO 3-KRB i inkubować przez 20 minut w temperaturze 37 °C, 5% CO 2 .
- Usunąć płyn wierzchołkowy bez naruszania nabłonka, zasysając go ostrożnie za pomocą sterylnej szklanej pipety Pasteura i sterylnej końcówki pipety P200 połączonej z pompą aspiracyjną, która wytwarza podciśnienie w butelce zbiorczej. Na tym etapie na powierzchni wierzchołkowej powinno pozostać jak najmniej płynu, aby przywrócić granicę faz powietrze-ciecz.
- Inkubować komórki przez kolejne 30 minut w temperaturze 37 °C, 5% CO2 .
2. Pomiar tła
- Włącz czytnik płytek i komputer.
- Otwórz pulpit nawigacyjny.
- Kliknij Spark 10M, otwórz regulator temperatury i ustaw na 37 °C. Otwórz regulator gazu i ustaw CO2 na 5%.
- Poczekaj, aż temperatura i CO2 osiągną swoje cele.
- Otwórz szufladę czytnika płytek, włóż kasetę wilgotności wypełnioną 6 ml dH2O z każdej strony. Upewnij się, że pokrywka i spód płytki są czyste – jeśli nie, wyczyść 70% etanolem na kawałku chusteczki – i umieść płytkę w kasecie wilgotności.
UWAGA: Przez cały czas trwania eksperymentu pokrywka płytki do hodowli tkankowej jest trzymana na płytce i usuwana tylko podczas dodawania leków lub zmiany podłoża podstawno-bocznego, które są wykonywane w kapturze z przepływem laminarnym do hodowli tkankowych, aby utrzymać kultury w sterylnym środowisku. - Otwórz edytor metody Spark i skonfiguruj parametry w oprogramowaniu w następujący sposób:
- Wybierz odpowiedni szablon płytki (w przypadku podpór półprzepuszczalnych o średnicy 6,5 mm wybierz płytkę 24-dołkową) oraz studzienki, które będą monitorowane podczas tego eksperymentu.
- Dodaj panel sterowania temperaturą i CO2 i ustaw je odpowiednio na 37 °C i 5%. Zaznacz pola oczekiwania na temperaturę/gaz.
- Dodaj panel pętli kinetycznej i wybierz Czas trwania jako typ pętli i ustaw go na 5-10 min. Wybierz opcję Niezdefiniowany jako typ interwału, aby włączyć ciągłe czytanie.
UWAGA: Czas ciągłego odczytu zależy od liczby studni/warunków. 5 minut jest wystarczająco długie na 6-12 dołków, podczas gdy pełna płytka zawierająca 24 warunki będzie wymagała 10 minut ciągłych pomiarów. - W pętli kinetycznej dodaj dwa panele "Intensywność fluorescencji", korzystając z funkcji przeciągnij i upuść, które zostaną skonfigurowane odpowiednio dla barwników fluorescencyjnych wrażliwych na pH i niewrażliwych na pH. Ustaw długości fal wzbudzenia i emisji odpowiednio na 560 i 590 nm dla barwnika wrażliwego na pH oraz odpowiednio 495 i 520 nm dla barwnika niewrażliwego na pH.
- Ustaw liczbę błysków na 30, a pozycję z na 33200 dla każdego fluoroforu.
UWAGA: Ustawienia pozycji Z i wzmocnienia są zależne od charakterystyki czytnika płytek. Ustaw wzmocnienie ręcznie na wartość, która da wystarczająco wysokie liczby, aby różnice między próbkami zostały wychwycone, ale wystarczająco niskie, aby dodanie agonisty nie wygenerowało wartości poza zakresem wykrywania. - Ustaw wielokrotny odczyt na studzienkę dla użytkownika zdefiniowanego jako okrąg o rozmiarze 3 × 3 z obramowaniem 4750 μm.
- Kliknij przycisk Start, aby wykonać pomiar tła i OK, aby potwierdzić, że pokrywa kasety wilgotności jest na swoim miejscu.
- Po zakończeniu pomiaru otwórz szufladę czytnika płytek, wyjmij płytkę i umieść komórki z powrotem w inkubatorze, przygotowując roztwór mieszanki barwników fluorescencyjnych.
- Przygotować roztwór mieszaniny barwników fluorescencyjnych, dodając 2 μl barwnika fluorescencyjnego wrażliwego na pH (pHsens) sprzężonego z dekstranem o stężeniu 1 mg/ml do 0,2 μl barwnika fluorescencyjnego niewrażliwego na pH (pHins) sprzężonego z dekstranem i 0,8 μl sterylnego HCO 3-KRB, aby uzyskać końcową objętość 3 μl na warunek.
UWAGA: Całkowitą objętość roztworu mieszaniny barwników należy przygotować dla n studzienek + 1, jeśli jest od 1 do 10 próbek, lub n studzienek + 2, jeśli jest od 11 do 24 próbek. Barwniki sprzężone z dekstranem są rozpuszczane w przefiltrowanym, sterylnym roztworze HCO 3-KRB, porcjowanym i przechowywanym w temperaturze -20 °C. Na tym etapie można dodać dowolną substancję chemiczną przez 16-24 godzinny okres inkubacji37 na powierzchni wierzchołkowej. Chemikalia należy przygotować jako 0,1x, ponieważ końcowa objętość, po wchłonięciu nadmiaru płynu przez hodowlę, wyniesie około 0,3 μl dla półprzepuszczalnego podłoża o średnicy 6,5 mm. - Ostrożnie dodać 3 μl mieszanki barwników (patrz 2.8) na wierzchołkową powierzchnię komórek i inkubować przez noc w temperaturze 37 °C, 5% CO2 .
3. Pomiar kinetyczny
- Powtórz kroki od 2.1 do 2.4, aby przygotować czytnik płytek.
- Kliknij ikonę Otwórz i wybierz metodę file używany do pomiarów tła
- W panelu pętli kinetycznej zachowaj typ pętli jako Czas trwania i ustaw go na 08 godzin. Zmień Typ interwału na Stały i ustaw go na 5 minut. Panele intensywności fluorescencji powinny być takie same, jak w przypadku pomiarów tła
UWAGA: Typ interwału dla pomiarów tła jest ustawiony na "niezdefiniowany", aby umożliwić ciągły odczyt. Również w przypadku eksperymentów kinetycznych i kalibracyjnych typ interwału jest ustawiony na "stały" z interwałem 5 minut. Można to dostosować w zależności od projektu eksperymentu i liczby warunków. - Otwórz szufladę czytnika płytek, z każdej strony włóż kasetę na wilgoć wypełnioną 6 ml dH2O. Upewnij się, że pokrywka i spód płytki są czyste – jeśli nie, wyczyść 70% etanolem na kawałku chusteczki – i umieść płytkę w kasecie wilgotności wraz z pokrywą.
- Rozpocznij odczyty fluorescencji, klikając Start. Kliknij OK po upewnieniu się, że pokrywa kasety wilgotności jest na swoim miejscu.
- Po n cyklach, zwykle od 12 do 24, co odpowiada 1 do 2 godzinom, kliknij przycisk Wstrzymaj, aby przerwać eksperyment. Wyjąć płytkę i nanieść wszelkie leki/agonistów zasadniczo-bocznie na różne próbki.
UWAGA: Po wyjęciu komórek z czytnika płytek CO2 ulatnia się, co spowoduje wzrost pH ASL, na co wskazuje spadek fluorescencji barwnika wrażliwej na pH. Ta zmiana pH wywołana przez CO2 odwraca się w ciągu 10-15 minut po ponownym umieszczeniu kultur w czytniku płytek. - Umieść płytkę z powrotem w kasecie wilgotności na tacy, zmień położenie pokrywy kasety wilgotności i kliknij przycisk Kontynuuj, aby dalej rejestrować pH ASL i monitorować wpływ leków/agonistów na pH ASL.
4. Kalibracja pH in situ
- Wyjąć płytkę z czytnika płytek.
- Zassać podłoże podstawno-boczne/roztwór.
- Dodać 750 μl i 1 μl wysoce buforowanych roztworów krzywej wzorcowej odpowiednio do przedziału podstawno-bocznego i powierzchni wierzchołkowej.
UWAGA: Wysoce buforowane roztwory krzywych wzorcowych zawierają (w mM) NaCl (86), KCl (5), CaCl2 (1,2), MgCl2 (1,2), NaHEPES lub MES lub Tris (100 mM). MES służy do buforowania roztworów o pH niższym niż 7, NaHEPES do roztworów o pH 7-7,5 i Tris do roztworu o pH 8. Doprowadzić pH do żądanej wartości za pomocą HCl. - Wyłącz CO2 na czytniku płytek lub ustaw go na 0.1% i umieść płytkę z powrotem w kasecie wilgotności.
- Ustawić czytnik płytek z tymi samymi parametrami, jak opisano wcześniej, ale bez emisji CO2 jak w kroku 3.2.
- Rozpocznij odczyty fluorescencji, co 5 minut przez 1-1,5 h.
5. Ocena wpływu stężenia barwnika i objętości zawiesiny na dane kalibracyjne
- Przygotuj wystarczającą ilość mieszanki barwników wrażliwych i niewrażliwych na pH, aby zarejestrować fluorescencję przy co najmniej 4 różnych wartościach pH w 3 różnych objętościach.
UWAGA: Tutaj mieszaninę 1 przygotowano z 26 μl wrażliwych na pH (1 mg/ml) i 2,6 μl niewrażliwych na pH (10 mg/ml) i zmieszano 2 z 13 μl wrażliwych na pH (1 mg/mL) i 1,3 μl niewrażliwych na pH (10 mg/mL). - Rozprowadzić odpowiednio 2,2 μl lub 1,1 μl mieszanki 1 lub mieszanki 2 do 12 dołków płytki 96-dołkowej i dodać wystarczającą ilość roztworów kalibracyjnych, aby uzyskać końcowe objętości 50, 100 lub 200 μl i dobrze wymieszać.
UWAGA: W tym zestawie liczba fluorescencji będzie rejestrowana dla stężeń barwników 5 μg/ml (w 200 μl), 10 μg/ml (w 100 lub 200 μl), 20 μg/ml (w 50 lub 100 μl) lub 40 μg/ml (w 50 μl). - Włączyć czytnik płytek, ustawić temperaturę na 37 °C i włożyć płytkę do czytnika płytek. Nie włączaj regulatora CO2 .
UWAGA: Ponieważ jest to krótki eksperyment i wymaga tylko wystarczająco dużo czasu, aby zrównoważyć temperaturę, kaseta wilgotności nie jest wymagana. - Dostosuj pozycję z i wzmocnienie dla płytki 96-dołkowej i użyj tych samych parametrów, co w eksperymencie przeprowadzonym na podporach półprzepuszczalnych.
6. Analiza danych
- Zapisz wszystkie dane w arkuszach kalkulacyjnych i utwórz nowy plik.
- W pliku w tle wybierz wszystkie średnie dane dla każdej próbki/warunku dla obu długości fal, skopiuj i wklej do nowego pliku. Oblicz średnie tło dla każdej studzienki i każdej długości fali.
- Powtórz to z danymi kalibracyjnymi i kinetycznymi i odejmij tło od każdego punktu danych dla każdej długości fali.
- Dla każdego punktu czasowego i każdej próbki należy obliczyć stosunek fluorescencji wrażliwej na pH i niewrażliwej na pH
- Jeżeli wszystkie próbki zostały pobrane od indywidualnego dawcy, należy obliczyć średnią stosunków w każdym punkcie czasowym krzywej wzorcowej
UWAGA: Ważne jest, aby wygenerować tyle krzywych kalibracyjnych, ile donorów lub roztworów podstawno-bocznych. Rzeczywiście, parametry te mogą wpływać na odczyty tła lub szybkość wchłaniania płynu, co z kolei wpłynie na stężenie barwnika, a tym samym na obliczone pH. - Dla każdego punktu czasowego wygeneruj krzywą standardową ze stosunków, wykreślając znane wartości pH na osi x i współczynniki na osi y.
- Określ punkt czasowy, w którym proporcje są stabilne, dopasuj linię regresji liniowej i uzyskaj równanie dla tej linii.
- Na podstawie danych kinetycznych oblicz pH dla każdego punktu czasowego i wykreśl pH na osi y oraz czas na osi x
UWAGA: Spoczynkowe/podstawowe pH można obliczyć, uśredniając punkty danych w stosunku do stabilnego pomiaru pH przed dodaniem jakiegokolwiek agonisty lub jakiejkolwiek innej interwencji. Działanie agonisty można scharakteryzować poprzez obliczenie różnicy pH przed i po (pewien czas) leczeniu lub poprzez dopasowanie krzywej nieliniowej do punktów danych bezpośrednio po interwencji. To da dodatkowe informacje o t1/2 i wartości maksymalnej. Wreszcie, tempo zakwaszenia lub alkalizacji można również uzyskać na podstawie nachylenia linii prostej dopasowanej do pierwszych punktów po interwencji.
Wyniki
Opisana powyżej technika umożliwia dynamiczny pomiar pH ASL w maksymalnie 24 oddzielnych kulturach pierwotnych hAECs. Rysunek 1 przedstawia schemat głównych etapów oraz konfigurację sprzętu. Komórki, które były inkubowane przez noc, umieszcza się w czytniku płytek z kontrolą temperatury i stężenia CO2, w którym co 5 min rejestrowana jest fluorescencja barwników wrażliwych i niewrażliwych na pH sprzężonych z dekstranem.
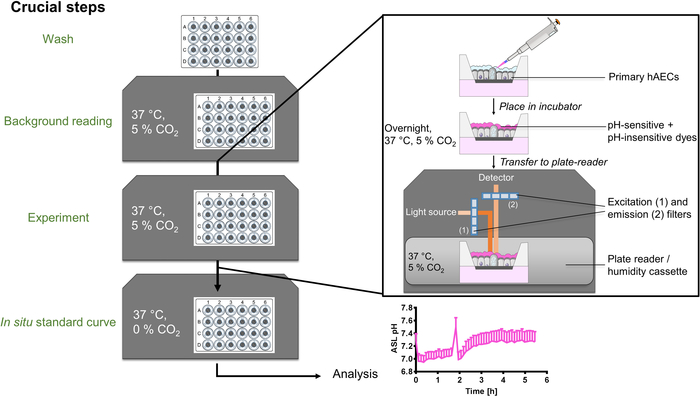
Rycina 1: Schemat metody pomiaru pH ASL. Po wypłukaniu kultur i wykonaniu pomiaru tła, do ASL pierwotnych ludzkich komórek nabłonka dróg oddechowych (hAECs) wprowadza się mieszaninę barwników wrażliwych i niewrażliwych na pH sprzężonych z dekstranem i inkubuje przez noc w temperaturze 37 °C, 5% CO2. Następnego dnia płytkę przenosi się do czytnika płytek z kontrolą temperatury i stężenia CO2, a następnie rejestruje fluorescencję obu barwników w czasie. Po zakończeniu eksperymentu przeprowadza się kalibrację in situ, a uzyskane dane analizuje się i przedstawia jako pH ASL w funkcji czasu. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
W pierwszej kolejności zbadaliśmy wpływ różnych objętości i stężeń barwników na liczbę zliczeń fluorescencji, a tym samym na stosunek 560/495. Rzeczywiście, celem dodania barwnika niewrażliwego na pH do barwnika wrażliwego na pH jest skorygowanie zmienności w ładowaniu ASL. Należało jednak sprawdzić to założenie i ocenić, czy we wszystkich eksperymentach i dla wszystkich typów komórek możemy zastosować standardową krzywą kalibracyjną wykonaną w 96-dołkowej płytce w nieobecności komórek. Monitorowaliśmy zliczenia fluorescencji przez 1 h w 50, 100 lub 200 µl roztworów kalibracyjnych (przy pH 5.5, 6.5, 7 lub 8) zawierających 5, 10, 20 lub 40 µg/mL barwników. Wyniki przedstawiono na Rysunku 2A-C; wskazują one, że dla tego samego pH i tego samego stężenia barwników raportowany stosunek emisji pHsens/pHins (560/495 na osi y) różnił się w zależności od objętości (Rysunek 2A). Ponadto, przy tym samym pH i tej samej objętości, różne stężenia barwników dają różne wartości stosunku (Rysunek 2B). Zatem zmiany objętości lub stężenia barwnika wpłyną na bezwzględną wartość pH obliczoną ze stosunku emisji. Rysunek 2C pokazuje, że czas wymagany do wyrównania temperatury wynosi około 15-20 min. Aby potwierdzić wpływ stężenia barwnika i objętości na stosunki emisji, zarejestrowaliśmy fluorescencję barwników wprowadzonych do ASL pierwotnych hAEC od dawców zdrowych (non-CF) i z mukowiscydozą (CF) in situ. Następnie przeprowadziliśmy kalibrację i przeanalizowaliśmy wyniki poprzez (1) wygenerowanie jednej globalnej krzywej standardowej ze wszystkich próbek lub (2) wygenerowanie dwóch niezależnych krzywych standardowych dla każdego typu komórek (non-CF i CF). pH ASL dla obu typów komórek wykreślono następnie w funkcji czasu (Rysunek 3A,B) i obliczono średnią (Rysunek 3C). Wartości pH ASL uzyskane z jednej globalnej krzywej standardowej wykazały istotną różnicę między kulturami non-CF a CF (Rysunek 3A,C), natomiast pH ASL nie różniło się istotnie między hAEC CF a non-CF, gdy pH obliczano z niezależnych krzywych standardowych (Rysunek 3B,C). Wyniki te wykazują znaczenie generowania niezależnych krzywych kalibracyjnych dla każdego eksperymentu, a w obrębie eksperymentu dla każdej próbki od dawcy, ponieważ gdy krzywe kalibracyjne zostały uśrednione, w kulturach CF stwierdzono wyższe wartości stosunku pHsens/pHins, co wskazywało na bardziej kwasowe pH (Rysunek 3C).
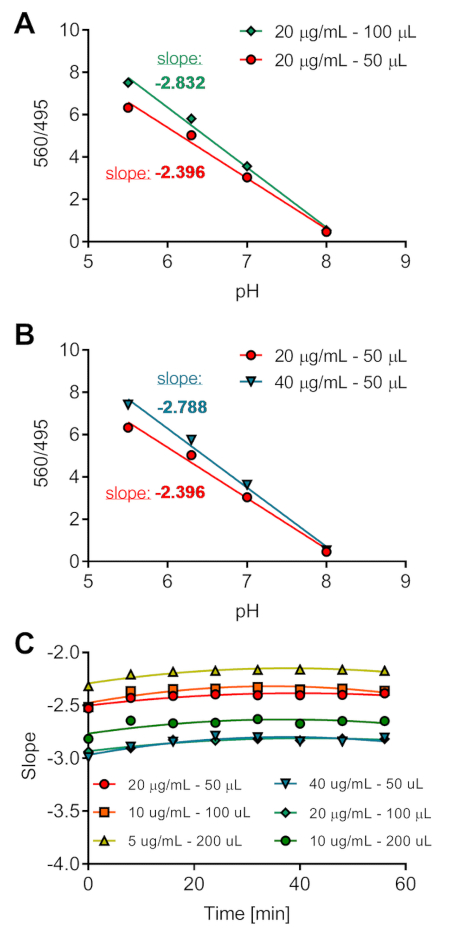
Rysunek 2: Optymalizacja kalibracji pH in vitro. Różne objętości roztworów o znanym pH i zawierające różne stężenia barwnika naniesiono na płytkę 96-dołkową, a fluorescencję rejestrowano przez 1 h. Wpływ objętości (A) i stężenia barwnika (B) na stosunki fluorescencji. Stosunki naniesiono na wykres w funkcji pH dla punktu czasowego 24 min. (C) Nachylenie zmiany fluorescencji obliczono dla każdego roztworu i przedstawiono jako funkcję czasu (w min). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
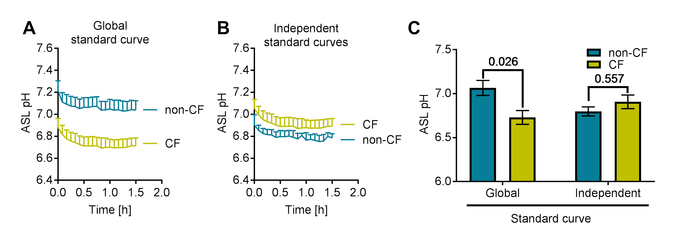
Rycina 3: Optymalizacja analizy kalibracji pH na pierwotnych hAECs in situ. (A) Reprezentatywne przebiegi pH ASL uzyskane z jednej krzywej wzorcowej uśredniającej dane z kultur non-CF i CF. (B) Reprezentatywne przebiegi pH ASL uzyskane z niezależnych krzywych wzorcowych wykonanych na kulturach non-CF lub CF. Każdy zestaw danych został obliczony na podstawie własnej krzywej kalibracyjnej. (C) Ocena różnic w pH ASL między kulturami non-CF a CF w zależności od sposobu przeprowadzenia kalibracji. Dane przedstawiają średnią ± SEM z n=3 eksperymentów, 2-way ANOVA, test wielokrotnych porównań Sidaka). Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.
Aby dalej zwalidować naszą technikę, wymagaliśmy następnie kontroli pozytywnej, która wykazałaby, że metoda ta jest w stanie wykryć „oczekiwaną” zmianę pH ASL. Ponieważ kwestia obecności bardziej kwasowego ASL w komórkach CF jest wciąż kontrowersyjna, w celu stymulacji HCO3 wykorzystaliśmy agonistę cAMP, forskolinę, jako warunek kontroli pozytywnej.3- sekrecja przez CFTR. Oczekiwane wyniki powinny wykazać indukowane forskoliną alkalinizację ASL w komórkach bez CF, która byłaby w znacznym stopniu zmniejszona lub zniesiona w komórkach z CF, w zależności od ciężkości mutacji. Rycina 4A przedstawia reprezentatywne przebiegi zmian pH ASL w komórkach od osób zdrowych oraz chorych na CF w czasie oraz Rycina 4B przedstawia średnie dane dotyczące pH ASL przed i po zastosowaniu forskoliny w obu typach komórek. Z tych wyników możemy wyciągnąć różne wnioski. Po pierwsze, jak już wykazano w Rysunek 3B,Cspoczynkowe pH ASL nie różniło się między nabłonkami osób zdrowych a osobami z CF. Po drugie, pierwsze 3-4 punkty czasowe po przerwie w eksperymencie w celu potraktowania komórek forskoliną wykazały znaczny wzrost pH, który ustąpił w ciągu ok. 15 min. Było to spowodowane spadkiem CO2 stężenie między czytnikiem płytek (5%) a komorą z laminarnym przepływem powietrza (~0%). Zgodnie z równaniem Hendersona-Hasselbalcha, pH wynoszące 7 przy 5% CO2 środowisko odpowiada stężeniu HCO3-3- wynoszącej ok. 9,3 mM. Po wyjęciu komórek z czytnika płytek następuje spadek poziomu CO2 stężenie do 0% teoretycznie doprowadzi do wzrostu pH o >8. Rysunek 4A wykazuje, że pH ASL wzrosło do ok. 7,8, co można wyjaśnić upływem czasu podczas ponownego umieszczania płytki w czytniku płytek (tj., w 5% CO22 środowiska). W końcu, zgodnie z przewidywaniami, dodanie do strony podstawznej 10 µM forskolina (Fsk) znacząco podniosła pH ASL wyłącznie w kulturach non-CF. Ponieważ różne grupy badawcze wykazały istnienie różnic w pH ASL w stanie stacjonarnym pomiędzy nabłonkami CF a non-CF, chcieliśmy dalej zbadać przyczynę pozornego braku różnic w pH w naszych eksperymentach oraz rolę CFTR. W tym celu inkubowaliśmy uprzednio kultury non-CF ze swoistym inhibitorem CFTR, CFTRinh172 (172). Zgodnie z opisem w sekcji 2.8 protokołu, mieszaninę barwników przygotowano w sposób opisany powyżej, a inhibitor dodano w stężeniu 0,1X = 2 µMZgodnie z literaturą, wysokość ASL w komórkach non-CF wynosi około 10 µmW podporze półprzepuszczalnej o średnicy 6,5 mm teoretyczna objętość ASL wynosi zatem π × 3.252 = 0.3 µLPoprzez dodanie 3 µL barwnika + 172 przy 2 µMstężenie inhibitora, po wchłonięciu nadmiaru cieczy, teoretycznie wyniesie 20 µM (1x, pożągane stężenie). Reprezentatywne przebiegi w Rycina 4C or średnie podsumowanie w Rycina 4D wykazano, że związek 172 nie obniżył spoczynkowego pH ASL, lecz zapobiegł indukowanemu forskoliną wzrostowi pH ASL, co potwierdziło nasze wyniki uzyskane w przypadku osób bez CF kontra Hodowle CF oraz dalsza walidacja naszej techniki.
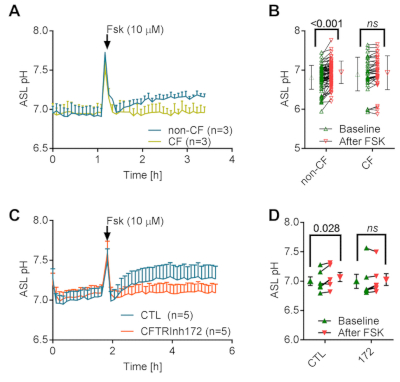
Rycina 4: Dynamiczny pomiar pH ASL w odpowiedzi na aktywację CFTR przez forskolinę. (A) Reprezentatywne przebiegi efektu forskoliny (Fsk, 10 µM) na kinetykę pH ASL w czasie w hAEC od dawców zdrowych (non-CF) i z mukowiscydozą (CF). Dane reprezentują średnią ± SEM z n=3 eksperymentów. (B) Podsumowanie efektu Fsk na pH ASL w kulturach non-CF i CF. Dane reprezentują średnią ± SD z n=69 kultur non-CF i 35 kultur CF (2-way ANOVA, test wielokrotnych porównań Sidaka). (C) Reprezentatywne przebiegi efektu CFTRinh172 (172, 20 µM) na indukowany przez Fsk wzrost pH ASL w hAEC non-CF. Dane reprezentują średnią ± SEM z n=5 eksperymentów. (D) Podsumowanie efektu 172 na indukowaną przez Fsk alkalinizację ASL w kulturach non-CF. Dane reprezentują średnią ± SEM z n=5 eksperymentów (2-way ANOVA, test wielokrotnych porównań Sidaka). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Wreszcie, zgodnie z sekcją 6.8 protokołu, tempo zakwaszenia/alkalizacji można obliczyć poprzez dopasowanie regresji liniowej do początkowych punktów czasowych po interwencji. Rycina 5A pokazuje, że usunięcie roztworu zawierającego HCO3- z drugiej strony błony podstawnej (HCO3- KRB) i zastąpienie go roztworem buforowanym HEPES w obecności CO2 wywołało wyraźne zakwaszenie ASL. Jest to zgodne z faktem, że brak HCO3- hamuje transepitelialną sekrecję HCO3-, co pozwala konstytutywnej sekrecji protonów przez te komórki dróg oddechowych na stałe obniżanie pH ASL15,17. Co ciekawe, początkowe tempo zakwaszenia komórek non-CF było znacznie wolniejsze niż w kulturach CF (Rycina 5B).
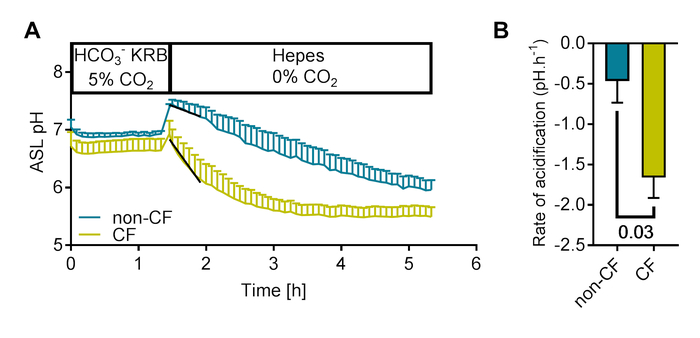
Rycina 5: Dynamiczne zmiany pH ASL w odpowiedzi na usunięcie HCO3-. (A) Reprezentatywne przebiegi pokazujące wpływ usunięcia HCO3- na kinetykę pH ASL w czasie w hAEC od osób zdrowych (non-CF) i z mukowiscydozą (CF). Początkowe szybkości zakwaszania obliczono na podstawie nachylenia linii prostej dopasowanej do 7 punktów czasowych po usunięciu HCO3-. Dane przedstawiają średnie ± SEM z odpowiednio n=6 i 7 eksperymentów na kulturach non-CF i CF. (B) Podsumowanie początkowych szybkości zakwaszania po usunięciu HCO3-. Dane przedstawiają średnie ± SEM z odpowiednio n=6 i 7 eksperymentów na kulturach non-CF i CF (test Mann-Whitneya). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Tutaj przedstawiamy szczegółowy protokół dynamicznego pomiaru pH ASL w pierwotnych komórkach nabłonka ludzkich dróg oddechowych. Krytyczne kroki obejmują zmywanie śluzu z wierzchołkowej powierzchni komórek, pomiar i odejmowanie tła przy użyciu tych samych parametrów, co w eksperymencie, optymalizację pozycji z i wzmocnienia oraz przeprowadzenie kalibracji pH in situ.
Pierwszy etap mycia komórek ma kluczowe znaczenie, ponieważ gruba warstwa śluzu może (i) zapobiec przedostawaniu się barwników do warstwy okołorzęskowej (PCL) oraz (ii) opóźnić lub uniemożliwić wykrycie zmian we fluorescencji w odpowiedzi na agonistów/inhibitory. Nasza metoda została opracowana w celu zbadania, w jaki sposób pierwotne hAEC modulują aktywność transporterów HCO3 i H+ w odpowiedzi na agonistów. Chociaż interesujące będzie zbadanie, w jaki sposób zmiany pH PCL odnoszą się do zmian pH śluzu, potrzebny jest dalszy rozwój tego protokołu, w tym zastosowanie dektransu o różnej masie cząsteczkowej do zróżnicowanego celowania w 2 warstwy i skany z przez cały ASL.
Pomiar tła jest kolejnym ważnym krokiem tego protokołu. Powierzchnia wierzchołkowa w pełni zróżnicowanego pierwotnego nabłonka dróg oddechowych rzadko jest całkowicie płaska, co wpływa na ścieżkę światła, a tym samym na tło. Zapewnienie, że odczyty tła są wykonywane w tych samych lokalnych punktach studzienek, co podczas eksperymentu, ma kluczowe znaczenie dla odtwarzalności i stabilności zapisów.
Optymalizacja pozycji Z i wzmocnienia to niezbędne kroki, które należy skonfigurować dla każdego innego stężenia barwnika fluorescencyjnego, który zostanie użyty. Zapobiegnie to dużej zmienności między eksperymentami. Po skonfigurowaniu nasz test zapewnia stabilne i powtarzalne wyniki. Jednym z powodów takiego stanu rzeczy jest to, że barwniki są dodawane na powierzchni wierzchołkowej komórek w niewielkiej objętości płynu, który jest łatwo wchłaniany przez nabłonek, pozostawiając jednorodnie znakowany ASL. Inną metodą barwienia ASL, która może być równie skuteczna, jest użycie suchego proszku lub "zawiesiny" w PFC. Chociaż może to zaoszczędzić czas (ponieważ eksperymenty są zwykle przeprowadzane w ciągu 2 godzin), jest mało prawdopodobne, aby suche barwniki w pełni rozpuściły się w ASL, a tym samym mogły tworzyć grudki. W ten sposób na powierzchni komórek nabłonka można znaleźć różne stężenia barwnika wrażliwego na pH.
Kalibracja pH in situ jest ważnym krokiem w celu uzyskania dokładnych, powtarzalnych wyników. Jak pokazano i wyjaśniono w sekcji wyników, różnice w objętościach ASL będą miały wpływ na liczbę fluorescencji, a tym samym na interpolowane wartości pH (Rysunek 2 i Rysunek 3). Podczas gdy różne grupy publikowały wcześniej pomiary pH ASL, uzyskano szeroki zakres wartości nawet między różnymi badaniami opublikowanymi przez tę samą grupę 8,17. Wierzymy, że dzięki przeprowadzaniu kalibracji in situ wyniki staną się bardziej powtarzalne. W porównaniu z innymi technikami kalibracji pH, które wykorzystują metodę wysokiego K+/nigerycyny (lub wielu jonoforów) do wygenerowania krzywej wzorcowej 28,29,30, przedstawiony tutaj test ma tę zaletę, że tak długo, jak każdy krok jest wykonywany w komorze bezpieczeństwa, komórki używane do pomiaru pH ASL mogą być myte, przechowywane i ponownie wykorzystywane do innych eksperymentów, pod warunkiem, że przeprowadzone zabiegi nie wpływają nieodwracalnie na komórki nabłonka.
Opracowanie i optymalizacja tego testu zapewniły powtarzalne wyniki i wierzymy, że ta metoda pomoże innym grupom w pomiarze pH ASL. Jednak ta technika ma również pewne ograniczenia ze względu na konfigurację i rodzaj używanych komórek. Monitorowanie pH ASL przez dłuższy okres czasu niż przedstawiony tutaj (>8-10 godzin) może okazać się trudne, ponieważ długotrwałe środowisko o wysokiej wilgotności może uszkodzić sprzęt, a większość czytników płytek oferuje opcję rejestrowania odczytów kinetycznych tylko przez określony czas (zwykle 24 godziny). Zastosowanie w pełni zróżnicowanych pierwotnych hAEC ma kluczowe znaczenie dla sposobu, w jaki różne etapy różnicowania będą wpływać na ekspresję transporterów HCO3 i H+. Nie ma jednak praktycznie możliwości precyzyjnego kontrolowania objętości ASL w komórkach hodowanych w warunkach cienkiej warstwy. Jak stwierdzono w sekcjach protokołu i wyników, zmiany objętości będą miały wpływ na współczynnik fluorescencji i niestety należy założyć, że w komórkach wyhodowanych z jednego osobnika, wysianych tego samego dnia na różnych półprzepuszczalnych podłożach, objętości ASL będą takie same. Wynikający z tego ograniczenia, każdy agonista lub inhibitor, który będzie wpływał na wydzielanie lub wchłanianie płynów, będzie wpływał na objętość ASL i przypuszczalnie na współczynniki fluorescencji. Jednak w naszym teście krzywa kalibracyjna jest wykonywana na końcu eksperymentu, więc możemy założyć, że te zmiany objętości wpłyną na proporcje kalibracji w taki sam sposób, jak podczas eksperymentu kinetycznego. Z tego powodu zalecamy grupom, które byłyby zainteresowane opracowaniem tego testu, użycie co najmniej 2-3 powtórzeń na badany warunek, ponieważ pozwoli to na ustalenie krzywej standardowej dla każdego stanu.
Poniżej przedstawiamy prosty, półautomatyczny test, który umożliwia pomiar pH powierzchni błony śluzowej w czasie rzeczywistym w warunkach cienkowarstwowych. Ma zdolność badania dynamicznych reakcji pH w wielu kulturach w sposób niemal jednoczesny, co pozwala na porównania między dawcami i wewnątrz dawców. Przeskalowanie tej metody do formatu płytki 96-dołkowej przy użyciu systemu spolaryzowanego (płytki HTS 96 dołków)38 zapewniłoby jeszcze wyższą przepustowość jako test odkrywania leków. Co więcej, pokazaliśmy, w jaki sposób technika ta może być wykorzystana do badania ostrego wpływu agonistów na pH ASL i już opublikowaliśmy, że metoda ta może być wykorzystana do badania długoterminowego wpływu inhibitora wierzchołkowej pompy protonowej na CF hAEC ASL39. Ponieważ wykazano, że pH reguluje infekcje, stany zapalne, lepkość śluzu i transport jonów, identyfikacja celów molekularnych, które mogą zwiększyć pH, będzie cenna w dziedzinach badań nad przewlekłymi chorobami płuc, a technika ta potencjalnie ułatwi rozwój badań przesiewowych leków w medycynie spersonalizowanej. Wreszcie, ponieważ rozregulowanie homeostazy kwasowo-zasadowej odgrywa główną rolę w innych chorobach, protokół ten można dostosować, z krokami optymalizacji, do różnych urządzeń (czytników płytek) i typów komórek, takich jak inne komórki nabłonkowe. Kwasowość zewnątrzkomórkowa jest cechą charakterystyczną raka 40,41,42, a ten test może pomóc w ustaleniu, w jaki sposób guzy lite wytwarzają niskie pH e lub może być stosowany jako niskoprzepustowy test przesiewowy leków w celu przywrócenia homeostazy pH. Podobnie, jeśli chodzi o przewlekłe choroby dróg oddechowych, może on również stanowić platformę do rozwoju podejścia do medycyny spersonalizowanej.
Oświadczenia
MB: Niezwiązane z tą pracą: Granty badawcze prowadzone przez badaczy z firm Pfizer i Roche Diagnostics; Honoraria prelegentów uiszczane na rzecz Uniwersytetu w Newcastle przez Novartis, Roche Diagnostics i TEVA. Koszty podróży na spotkania edukacyjne firm Boehringer Ingelheim i Vertex Pharmaceuticals.
Podziękowania
Ta praca była wspierana przez dwa granty CF Trust Strategic Research Centre (SRC003 i SRC013) oraz grant Rady Badań Medycznych (MRC) Confidence in Concept (MC_PC_15030). JG otrzymało wsparcie z grantu Fundacji Badań Medycznych (MRF-091-0001-RG-GARNE). MB był wspierany przez Medical Research Council Clinician Scientist Fellowship (MR/M008797/1). IH był wspierany przez Wellcome Trust Clinical Training Fellowship (203520/Z/16/Z). Badania były wspierane przez National Institute for Health Research Newcastle Biomedical Research Centre z siedzibą w Newcastle Hospitals, NHS Foundation Trust i Newcastle University. Wyrażone poglądy są poglądami autora (autorów), a niekoniecznie poglądami NHS, NIHR lub Departamentu Zdrowia. Pierwotne komórki od dr Randella były wspierane przez grant Fundacji Mukowiscydozy (BOUCHE15R0) i grant NIH (P30DK065988).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 0,2 &mikro; m filtr strzykawkowy | Starlab | E4780-1226 | |
| 6,5 mm Transwell z 0,4 i mikro; m Wkład membrany poliestrowej porów | Corning | 3470 | |
| CaCl2 | Sigma Aldrich | 21115 | |
| CFTRInh172 | RnD Systems (Tocris) | 3430 | Stężenie magazynowe: 50 mM; Stężenie końcowe: 20 i mikro; M |
| Costar 24-dołkowe przezroczyste płytki wielodołkowe z powłoką TC | Corning | 3524 | |
| barwnik fluorescencyjny niewrażliwy na pH sprzężony z dekstranem: AlexaFluor488-dekstran | ThermoFisher | D22910 | Stężenie podstawowe: 1 mg / ml; Stężenie końcowe: 0,67 mg / ml |
| barwnik fluorescencyjny wrażliwy na pH sprzężony z dstatem: pHrodo-dekstran | ThermoFisher | P10361 | Stężenie podstawowe: 1 mg / ml; Stężenie końcowe: 0,67 mg / ml |
| D-glukoza | Sigma Aldrich | G5767 | |
| Forskolin | RnD Systems (Tocris) | 1099 | Stężenie zapasów: 50 mM; Stężenie końcowe: 10 i mikro; M |
| Greiner CELLSTAR 96 płytki dołkowe | Cellstar | 655180 | |
| Kaseta wilgotnościowa | TECAN | 30090495 | |
| KCl | Sigma Aldrich | P9541 | |
| MES | Sigma Aldrich | M3885 | |
| MgCl2 | Sigma | Aldrich M1028 | |
| NaCl | Sigma Aldrich | S9888 | |
| NaHCO3 | Sigma Aldrich | S5761 | |
| NaHepes | Sigma Aldrich | H3784 | |
| Czytnik płytek: TECAN SPARK 10M | TECAN | 30086375 | |
| Tris | Sigma Aldrich | T1503 | |
| Uniwersalne elektrody pH DJ 113 | VWR | 662-1385 |
Bibliografia
- Boucher, R. C. Human airway ion transport. Part one. American Journal of Respiratory and Critical Care Medicine. 150 (1), 271-281 (1994).
- Roomans, G. M., et al. Measurements of airway surface liquid height and mucus transport by fluorescence microscopy, and of ion composition by X-ray microanalysis. Journal of Cystic Fibrosis. 3, Suppl 2. 135-139 (2004).
- Haq, I. J., Gray, M. A., Garnett, J. P., Ward, C., Brodlie, M. Airway surface liquid homeostasis in cystic fibrosis: pathophysiology and therapeutic targets. Thorax. 71 (3), 284-287 (2016).
- Martin, S. L., Saint-Criq, V., Hwang, T. C., Csanady, L. Ion channels as targets to treat cystic fibrosis lung disease. Journal of Cystic Fibrosis. 17 (2S), S22-S27 (2018).
- Garland, A. L., et al. Molecular basis for pH-dependent mucosal dehydration in cystic fibrosis airways. Proceedings of the National Academy of Sciences of the United States of America. 110 (40), 15973-15978 (2013).
- Torres, I. M., Patankar, Y. R., Berwin, B. Acidosis exacerbates in vivo IL-1-dependent inflammatory responses and neutrophil recruitment during pulmonary Pseudomonas aeruginosa infection. American Journal of Physiology-Lung Cellular and Molecular Physiology. 314 (2), L225-L235 (2018).
- Berkebile, A. R., McCray, P. B. Effects of airway surface liquid pH on host defense in cystic fibrosis. The International Journal of Biochemistry & Cell Biology. 52, 124-129 (2014).
- Tang, X. X., et al. Acidic pH increases airway surface liquid viscosity in cystic fibrosis. Journal of Clinical Investigation. 126 (3), 879-891 (2016).
- Quinton, P. M. Cystic fibrosis: impaired bicarbonate secretion and mucoviscidosis. Lancet. 372 (9636), 415-417 (2008).
- Hunt, J. F., et al. Endogenous airway acidification. Implications for asthma pathophysiology. American Journal of Respiratory and Critical Care Medicine. 161, 694-699 (2000).
- Kostikas, K., et al. pH in expired breath condensate of patients with inflammatory airway diseases. American Journal of Respiratory and Critical Care Medicine. 165 (10), 1364-1370 (2002).
- Ojoo, J. C., Mulrennan, S. A., Kastelik, J. A., Morice, A. H., Redington, A. E. Exhaled breath condensate pH and exhaled nitric oxide in allergic asthma and in cystic fibrosis. Thorax. 60 (1), 22-26 (2005).
- Cho, D. Y., Hajighasemi, M., Hwang, P. H., Illek, B., Fischer, H. Proton secretion in freshly excised sinonasal mucosa from asthma and sinusitis patients. American Journal of Rhinology & Allergy. 23 (6), e10-e13 (2009).
- Cho, D. Y., Hwang, P. H., Illek, B., Fischer, H. Acid and base secretion in freshly excised nasal tissue from cystic fibrosis patients with DeltaF508 mutation. International Forum of Allergy & Rhinology. 1 (2), 123-127 (2011).
- Coakley, R. D., et al. Abnormal surface liquid pH regulation by cultured cystic fibrosis bronchial epithelium. Proceedings of the National Academy of Sciences of the United States of America. 100 (26), 16083-16088 (2003).
- Pezzulo, A. A., et al. Reduced airway surface pH impairs bacterial killing in the porcine cystic fibrosis lung. Nature. 487 (7405), 109-113 (2012).
- Shah, V. S., et al. Airway acidification initiates host defense abnormalities in cystic fibrosis mice. Science. 351 (6272), 503-507 (2016).
- Saint-Criq, V., Gray, M. A. Role of CFTR in epithelial physiology. Cellular and Molecular Life Sciences. 74 (1), 93-115 (2017).
- ECFS Patient Registry Annual Data Report. , Available from: https://www.ecfs.eu/sites/default/files/general-content-images/working-groups/ecfs-patient-registry/ECFSPR_Report2016_06062018.pdf (2016).
- Cystic Fibrosis Foundation Patient Registry Annual Data Report 2017. , Available from: https://www.cff.org/Research/Researcher-Resources/Patient-Registry/2017-Patient-Registry-Annual-Data-Report.pdf (2017).
- Abou Alaiwa, M. H., et al. Neonates with cystic fibrosis have a reduced nasal liquid pH; a small pilot study. Journal of Cystic Fibrosis. 13 (4), 373-377 (2014).
- Abou Alaiwa, M. H., et al. Ivacaftor-induced sweat chloride reductions correlate with increases in airway surface liquid pH in cystic fibrosis. JCI Insight. 3 (15), (2018).
- McShane, D., et al. Airway surface pH in subjects with cystic fibrosis. European Respiratory Journal. 21 (1), 37-42 (2003).
- Schultz, A., et al. Airway surface liquid pH is not acidic in children with cystic fibrosis. Nature Communications. 8 (1), 1409(2017).
- Abou Alaiwa, M. H., et al. Repurposing tromethamine as inhaled therapy to treat CF airway disease. JCI Insight. 1 (8), (2016).
- Ngamtrakulpanit, L., et al. Identification of Intrinsic Airway Acidification in Pulmonary Tuberculosis. Global Journal of Health Science. 2 (1), 106-110 (2010).
- Tate, S., MacGregor, G., Davis, M., Innes, J. A., Greening, A. P. Airways in cystic fibrosis are acidified: detection by exhaled breath condensate. Thorax. 57 (11), 926-929 (2002).
- Jayaraman, S., Song, Y. Airway surface liquid pH in well-differentiated airway epithelial cell cultures and mouse trachea. American Journal of Physiology-Cell Physiology. 281 (5), C1504-C1511 (2001).
- Jayaraman, S., Song, Y., Vetrivel, L., Shankar, L., Verkman, A. S. Noninvasive in vivo fluorescence measurement of airway-surface liquid depth, salt concentration, and pH. Journal of Clinical Investigation. 107 (3), 317-324 (2001).
- Lennox, A. T., et al. ATP12A promotes mucus dysfunction during Type 2 airway inflammation. Scientific Reports. 8 (1), 2109(2018).
- Song, Y., Thiagarajah, J., Verkman, A. S. Sodium and chloride concentrations, pH, and depth of airway surface liquid in distal airways. The Journal of General Physiology. 122 (5), 511-519 (2003).
- Thiagarajah, J. R., Song, Y., Haggie, P. M., Verkman, A. S. A small molecule CFTR inhibitor produces cystic fibrosis-like submucosal gland fluid secretions in normal airways. FASEB Journal. 18 (7), 875-877 (2004).
- Garnett, J. P., et al. Hyperglycaemia and Pseudomonas aeruginosa acidify cystic fibrosis airway surface liquid by elevating epithelial monocarboxylate transporter 2 dependent lactate-H(+) secretion. Scientific Reports. 6, 37955(2016).
- Gorrieri, G., et al. Goblet Cell Hyperplasia Requires High Bicarbonate Transport To Support Mucin Release. Scientific Reports. 6, 36016(2016).
- Randell, S. H., Fulcher, M. L., O'Neal, W., Olsen, J. C. Primary epithelial cell models for cystic fibrosis research. Methods in Molecular Biology. 742, 285-310 (2011).
- Fulcher, M. L., Randell, S. H. Human nasal and tracheo-bronchial respiratory epithelial cell culture. Methods in Molecular Biology. , 109-121 (2013).
- Matsui, H., et al. Evidence for periciliary liquid layer depletion, not abnormal ion composition, in the pathogenesis of cystic fibrosis airways disease. Cell. 95 (7), 1005-1015 (1998).
- Ahmadi, S., et al. Phenotypic profiling of CFTR modulators in patient-derived respiratory epithelia. npj Genomic Medicine. 2, 12(2017).
- Delpiano, L., et al. Esomeprazole Increases Airway Surface Liquid pH in Primary Cystic Fibrosis Epithelial Cells. Frontiers in Pharmacology. 9, 1462(2018).
- Gillies, R. J., Liu, Z., Bhujwalla, Z. 31P-MRS measurements of extracellular pH of tumors using 3-aminopropylphosphonate. American Journal of Physiology. 267 (1 Pt 1), C195-C203 (1994).
- Tannock, I. F., Rotin, D. Acid pH in tumors and its potential for therapeutic exploitation. Cancer Research. 49 (16), 4373-4384 (1989).
- Wike-Hooley, J. L., Haveman, J., Reinhold, H. S. The relevance of tumour pH to the treatment of malignant disease. Radiotherapy and Oncology. 2 (4), 343-366 (1984).
Przedruki i uprawnienia
