Wirusy grypy A (IAV) są zakaźnymi patogenami układu oddechowego, które powodują coroczne epidemie i sporadyczne pandemie. W tym miejscu opisujemy protokół śledzenia infekcji wirusowych in vivo przy użyciu nowej rekombinowanej lucyferazy i bi-reporterowego IAV z ekspresją fluorescencji (BIRFLU). Takie podejście zapewnia naukowcom doskonałe narzędzie do badania IAV in vivo.
Artykuł metodologiczny
Lucyferazy-fluorescencyjny wirus reporterowy grypy do obrazowania na żywo i ilościowego oznaczania infekcji wirusowej
W tym artykule
Podsumowanie
Streszczenie
Wirusy grypy A (IAV) powodują choroby układu oddechowego u ludzi, które mają poważne konsekwencje zdrowotne i ekonomiczne. Podobnie jak w przypadku innych wirusów, badanie IAV wymaga zastosowania pracochłonnych podejść wtórnych w celu wykrycia obecności wirusa w zakażonych komórkach i/lub w zwierzęcych modelach infekcji. Ograniczenie to zostało ostatnio ominięte dzięki generowaniu rekombinowanych IAV wykazujących ekspresję łatwych do wyśledzenia białek reporterowych fluorescencyjnych lub bioluminescencyjnych (lucyferazy). Jednak naukowcy zostali zmuszeni do wybrania genów reporterowych fluorescencyjnych lub lucyferazy ze względu na ograniczoną zdolność genomu IAV do włączania obcych sekwencji. Aby przezwyciężyć to ograniczenie, wygenerowaliśmy rekombinowany, kompetentny do replikacji bi-reporterowy IAV (BIRFLU) stabilnie eksprymujący zarówno gen reporterowy fluorescencyjny, jak i reporterowy lucyferazy, aby łatwo śledzić infekcje IAV in vitro i in vivo. W tym celu wirusowe segmenty wirusa niestrukturalnego (NS) i hemaglutyniny (HA) wirusa grypy A/Puerto Rico/8/34 H1N1 (PR8) zmodyfikowano tak, aby kodowały odpowiednio fluorescencyjne białka Wenus i bioluminescencyjne białka lucyferazy Nanoluc. W tym miejscu opisujemy zastosowanie BIRFLU w mysim modelu zakażenia IAV i wykrywanie obu genów reporterowych za pomocą systemu obrazowania in vivo. Warto zauważyć, że zaobserwowaliśmy dobrą korelację między ekspresją obu reporterów a replikacją wirusa. Połączenie najnowocześniejszych technik biologii molekularnej, badań na zwierzętach i technologii obrazowania daje naukowcom wyjątkową możliwość wykorzystania tego narzędzia do badań nad grypą, w tym do badania interakcji wirus-gospodarz i dynamiki infekcji wirusowych. Co ważne, możliwość genetycznej modyfikacji genomu wirusa w celu ekspresji dwóch obcych genów z różnych segmentów wirusa otwiera możliwości wykorzystania tego podejścia do: (i) opracowania nowych szczepionek przeciwko IAV, (ii) generowania rekombinowanych wirusów IAV, które mogą być stosowane jako wektory szczepionkowe w leczeniu innych zakażeń patogenami ludzkimi.
Wprowadzenie
Wirus grypy A (IAV) jest jednoniciowym, segmentowanym wirusem RNA o ujemnym znaczeniu z rodziny Orthomyxoviridae1,2,3. Światowa Organizacja Zdrowia (WHO) szacuje, że na całym świecie odnotowuje się od 3 do 5 milionów przypadków grypy rocznie i ponad 250 000 zgonów z powodu grypy4,5,6. Grupy, które są szczególnie narażone na grypę, to osoby starsze, osoby z obniżoną odpornością i dzieci7,8,9,10,11. Chociaż szczepionki są dostępne i stanowią najpowszechniejszą i najskuteczniejszą interwencję przeciwko infekcji wirusowej, IAV jest w stanie szybko ewoluować i uciec przed istniejącą wcześniej odpornością3,12,13,14,15. Ponowne pojawienie się pandemicznego szczepu H1N1 w 2009 r. i pojawienie się patogennego wirusa IAV potwierdza ciągłe zagrożenie dla zdrowia publicznego ludzi na całym świecie4,16.
Podczas epidemii lub pandemii kluczowe jest szybkie określenie chorobotwórczości i zdolności przenoszenia nowo wyizolowanych wirusów. Obecnie dostępne techniki wykrywania wirusa są czasochłonne i czasami wymagają zastosowania pracochłonnych metod, co może opóźnić zakończenie tych analiz17,18,19,20. Co więcej, obecne testy na obecność wirusa są trudne do zwiększenia skali, co może być konieczne w przypadku wybuchu epidemii. Wreszcie, stosowanie zwalidowanych zwierzęcych modeli infekcji, takich jak myszy, świnki morskie i fretki, jest rutynowo stosowane i ma zasadnicze znaczenie w badaniu zakażeń grypą, odpowiedzi immunologicznych i skuteczności nowych szczepionek i/lub leków przeciwwirusowych. Modele te są jednak restrykcyjne ze względu na brak możliwości obserwowania dynamiki wirusa w czasie rzeczywistym; Ogranicza to badania do statycznego obrazowania infekcji wirusowych 21,< klasa SUP = "xref" > 22 < klasa SUP = "xref">23,< klasa SUP = "xref">24,< klasa SUP = "XREF">25. Zwierzęta wykorzystywane w tych testach są również poddawane eutanazji w celu określenia wiremii, zwiększając w ten sposób liczbę zwierząt wymaganych do ukończenia tych badań26. Aby obejść wszystkie te ograniczenia, wielu badaczy polega na użyciu rekombinowanych, kompetentnych do replikacji, wykazujących ekspresję reporterową, IAV, które są w stanie przyspieszyć testy wirusologiczne oraz wykrywać miano wirusa i rozprzestrzenianie się in vivo w czasie rzeczywistym26,27,28,29,30,31,32,33,34,35,36,37,38,39,40,41. Co ważne, te IAV wykazujące ekspresję reporterową są w stanie replikować się podobnie do IAV typu dzikiego (WT) w hodowli komórkowej i w zwierzęcych modelach infekcji33,42.
Białka fluorescencyjne i bioluminescencyjne to dwa systemy reporterowe powszechnie używane przez badaczy ze względu na ich czułość, stabilność i łatwość użycia. Ponadto istnieje ogromne wsparcie i postęp w technologiach wykrywania białek fluorescencyjnych i bioluminescencyjnych43,44,45,46,47,48. Białka fluorescencyjne i lucyferazy mają różne właściwości, które pozwalają im świecić, w szczególności różnią się sposobem generowania stanów wzbudzonych i wykrywaniem emisji43,44,45,46,47,48. Białka fluorescencyjne są najpierw wzbudzane przez pochłanianie energii, która jest następnie uwalniana jako światło o innej długości fali, gdy cząsteczki spadają do niższego stanu energetycznego43. Z drugiej strony, bioluminescencja wywodzi się z chemicznej reakcji egzotermicznej, która obejmuje substrat, tlen, a czasem ATP w celu wytworzenia światła45. Ze względu na różne właściwości tych dwóch typów białek reporterowych, jedno może być bardziej korzystne od drugiego, w zależności od interesującego badania. Podczas gdy białka fluorescencyjne są szeroko stosowane do obserwacji lokalizacji komórkowej28,41, ich sygnały in vivo mają nieodpowiednią intensywność i często są przesłonięte przez autofluorescencję w żywych tkankach49. Dlatego naukowcy polegają na lucyferazach do oceny dynamiki wirusa w żywych organizmach, chociaż białka fluorescencyjne mogą być preferowane w badaniach ex vivo50,51,52,53. W przeciwieństwie do białek fluorescencyjnych, lucyferazy są wygodniejsze w badaniach in vivo i mają większe zastosowanie w podejściach nieinwazyjnych26,27,28,29,30,31,32,33,34, 35,36,37,38,39,40,41,54. Ostatecznie, w zależności od rodzaju badania, naukowcy muszą wybrać między użyciem białka reporterowego fluorescencyjnego lub lucyferazy jako odczytu, co poddaje ich badanie kompromisowi między funkcjonalnościami i czułością oraz poważnie ogranicza użyteczność rekombinowanych wirusów reporterowych. Ponadto istnieją obawy dotyczące korelacji między ekspresją różnych genów reporterowych za pomocą systemów fluorescencyjnych lub lucyferazy a replikacją lub rozprzestrzenianiem się wirusa, co może zagrozić interpretacji danych uzyskanych za pomocą IAV wykazujących ekspresję reportera.
Pokonaliśmy to ograniczenie, generując rekombinowany, kompetentny do replikacji bi-reporterowy IAV (BIRFLU), który koduje zarówno białko fluorescencyjne, jak i lucyferazy w tym samym genomie wirusa55 (Rysunek 1). W tym przypadku lucyferazy NanoLuc (Nluc), małe i jasne białko bioluminescencyjne48, zostało wprowadzone przed sekwencją hemaglutyniny (HA) w wirusowym segmencie HA grypy A/Puerto Rico/08/1934 H1N1 (PR8)24,33,40,55,56,57. Ponadto Venus, często używane monomeryczne białko fluorescencyjne, zostało wstawione do niestrukturalnego <(NS) segmentu wirusa sup class="xref">32,33,36,41,55. Ponieważ BIRFLU koduje zarówno geny reporterowe fluorescencyjne, jak i lucyferazy, każdy sygnał białka reporterowego może być wykorzystany jako odczyt do określenia replikacji i rozprzestrzeniania się wirusa in vitro lub in vivo55. Dodatkowe informacje na temat wytwarzania i charakterystyki in vitro lub in vivo BIRFLU można znaleźć w naszej najnowszej publikacji55. BIRFLU może być stosowany do testowania skuteczności leków przeciwwirusowych lub przeciwciał neutralizujących za pomocą nowatorskiego testu mikroneutralizacji opartego na fluorescencji i bioluminescencji55. Co więcej, BIRFLU może być również wykorzystany do oceny dynamiki wirusa w mysim modelu infekcji55. W tym manuskrypcie opisujemy procedury charakteryzujące BIRFLU55 in vitro oraz sposób badania zakażenia BIRFLU u myszy przy użyciu systemów obrazowania luminescencyjnego in vivo do wykrywania Nluc in vivo lub Venus ex vivo.
Połączenie najnowocześniejszych technik w biologii molekularnej, badaniach na zwierzętach i technologiach obrazowania, daje naukowcom unikalną możliwość wykorzystania BIRFLU do badań nad IAV, w tym do badania interakcji wirus-gospodarz, dynamiki infekcji wirusowych; rozwoju nowych podejść do szczepionek do terapeutycznego leczenia zakażeń IAV lub potencjalnego wykorzystania IAV jako wektora szczepionki do leczenia innych infekcji patogennych.
Protokół
Wszystkie protokoły z udziałem myszy zostały zatwierdzone przez Instytucjonalny Komitet ds. Opieki nad Zwierzętami i Użytkowania (IACUC) oraz Instytucjonalny Komitet Bezpieczeństwa Biologicznego (IBC) na Uniwersytecie w Rochester, Szkole Medycyny i Stomatologii. Wszystkie eksperymenty przeprowadzane na zwierzętach są zgodne z zaleceniami zawartymi w Przewodniku dotyczącym opieki i użytkowania zwierząt laboratoryjnych Narodowej Rady ds. Badań Naukowych58. Wiwarium i Oddział Medycyny Zwierząt Laboratoryjnych w Szkole Medycyny i Stomatologii Uniwersytetu w Rochester są akredytowane przez Association for the Assessment and Accreditation of Laboratory Animal Care (AALAC) International i spełniają wymagania prawa federalnego i stanowego oraz polityki National Institutes of Health (NIH). Podczas pracy z myszami wymagane są odpowiednie środki ochrony osobistej (PPE). Podobne zasady i wymagania powinny być wdrażane podczas przeprowadzania eksperymentów opisanych w tym manuskrypcie w każdej instytucji.
1. Wykorzystanie małych kręgowców
- Kup od pięciu do siedmiu tygodni samic myszy BALB/c i trzymaj je w placówce opieki nad zwierzętami w określonych warunkach wolnych od patogenów. Po przybyciu myszy do wyznaczonych obiektów należy odczekać 4–5 dni, aby zwierzęta mogły zaaklimatyzować się w nowym środowisku.
- Zgodnie z protokołami IACUC umieść maksymalnie 5 myszy w klatce.
nuta: Na zakończenie eksperymentu, w celu upewnienia się, że zwierzę jest martwe, myszy poddano eutanazji przy użyciu dwóch zatwierdzonych procedur, biorąc pod uwagę, że druga musi być metodą fizyczną. W tym badaniu, po zakażeniu myszy wirusem BIRFLU i obrazowaniu in vivo, zwierzęta są poddawane eutanazji za pomocą śmiertelnej dawki 2,2,2-tribromoetanolu (TBE) oraz przez przecięcie żyły wątrobowej jako fizyczną metodę wtórną, jak wcześniej pokazaliśmy23.
2. Bezpieczeństwo biologiczne
UWAGA: W tym manuskrypcie BIRFLU został wygenerowany w szkielecie grypy A/Puerto Rico/08/34 H1N1 (PR8), która jest powszechnym laboratoryjnym szczepem IAV przystosowanym do myszy23,32,33,56. Wirus został wygenerowany przy użyciu wcześniej opisanych podejść genetyki odwrotnej opartej na plazmidach, a pełny opis generacji oraz charakterystykę in vitro i in vivo BIRFLU można znaleźć w naszej najnowszej publikacji55. Wszystkie procedury, które wiążą się z zakażeniami IAV (in vitro lub in vivo) przeprowadzono w komorze bezpieczeństwa biologicznego w warunkach poziomu bezpieczeństwa biologicznego (BSL)-2.
UWAGA: Odpowiedni poziom bezpieczeństwa biologicznego powinien być określony zgodnie z oceną ryzyka bezpieczeństwa biologicznego. Dodatkowe informacje na temat przeprowadzania ocen ryzyka w zakresie bezpieczeństwa biologicznego i ustanawiania skutecznych środków ograniczających bezpieczeństwo biologiczne należy skonsultować z instytucją, w której będą przeprowadzane doświadczenia.
- Wyczyść komory bezpieczeństwa biologicznego 70% etanolem lub środkiem dezynfekującym z dwutlenku chloru przed i po wykonaniu wszystkich procedur eksperymentalnych. W przypadku myszy należy wysterylizować cały materiał preparacyjny (nożyczki, kleszcze preparacyjne itp.) oraz homogenizator Dounce przed i po ich użyciu.
- Odrzuć cały materiał biologiczny wytworzony podczas zabiegów zgodnie z odpowiednimi wytycznymi IBC i IACUC.
3. Charakterystyka in vitro BIRFLU (Rysunek 2)
UWAGA: Patrz Tabela 1 dla wszystkich kompozycji i nośników.
- Analizuj ekspresję białek przez fluorescencję ( Rysunek 2A) i pośrednią immunofluorescencję (Figura 2B)
- Na dzień przed zakażeniem wysiać 24-dołkowe płytki komórkami nabłonkowymi Madin-Darby Canine Kidney (MDCK) (1 x 10⁵ komórek/dołek, trzykrotnie) w pożywkach do hodowli tkankowych i utrzymywać płytki w inkubatorze o temperaturze 37 °C z 5% CO2 . Przygotuj wystarczającą liczbę studzienek, aby ocenić wszystkie wybrane przeciwciała zarówno w komórkach zakażonych pozorowano, jak i zakażonych wirusem BIRFLU.
nuta: Zalecamy wizualizację komórek pod mikroskopem świetlnym w celu potwierdzenia monowarstwy przed rozpoczęciem infekcji wirusowej. Zalecana jest 90% konfluencyjna monowarstwa komórek MDCK do czasu infekcji. - Przygotować rozcieńczenia IVV WT lub BIRFLU w pożywce infekcyjnej i zainfekować wysiane komórki MDCK wielokrotnością infekcji (MOI) 0,1 jednostki tworzącej płytkę (PFU) na komórkę w końcowej objętości 0,25 ml / studzienkę pożywki infekcyjnej.
- Usunąć pożywkę do hodowli tkankowej z kroku 3.1.1 i dwukrotnie przemyć komórki MDCK 1x solą fizjologiczną buforowaną fosforanami (PBS). Dodać rozcieńczenia wirusa z 3.1.2 do komórek MDCK i umieścić płytki na platformie kołyszącej na 1 godzinę w temperaturze pokojowej, aby umożliwić adsorpcję wirusa.
nuta: Fałszywe zakażone komórki są inkubowane tylko z pożywką infekcyjną pod nieobecność wirusa. - Po adsorpcji wirusa (krok 3.1.3) usunąć inokulum wirusa przez aspirację i dodać 1 ml pożywki poinfekcyjnej zawierającej 1 μg/ml trypsyny poddanej działaniu TPCK do każdej studzienki. Inkubować komórki przez 18 godzin w inkubatorze z wilgotnością 5% CO2 w temperaturze 33 °C.
- Po 18 godzinach od zakażenia usunąć supernatant z kultur tkankowych z płytek 24-dołkowych (3.1.4). Utrwalić i przepuszczalnić komórki za pomocą 0,25 ml / studzienkę roztworu utrwalającego/przepuszczalnego przez 20 minut w temperaturze pokojowej.
nuta: Przygotuj roztwór utrwalający/przepuszczalny w dygestorium, aby zapobiec narażeniu na formaldehyd. - Usunąć roztwór utrwalający/przepuszczalny z kroku 3.1.5, przemyć komórki dwukrotnie 1x PBS i inkubować komórki z 0,25 ml/studzienkę roztworu blokującego przez 1 godzinę w temperaturze pokojowej.
nuta: Przejść do następnego kroku lub przechowywać komórki w roztworze blokującym w temperaturze 4 °C przez noc. - Usunąć roztwór blokujący (krok 3.1.6) i dodać 0,25 ml/basenik (1 μg/ml) mysiego przeciwciała monoklonalnego (MAb) przeciwko nukleoproteinie IAV, NP (HB-65) lub rozcieńczenia 1:1 000 króliczego przeciwciała poliklonalnego (pAb) przeciwko NLuc (patrz tabela materiałów), oba rozcieńczone w roztworze rozcieńczającym przeciwciała (1x PBS, 2,5% BSA) i inkubować komórki przez 1 godzinę w temperaturze 37 °C.
- Usunąć przeciwciało pierwszorzędowe z kroku 3.1.7, przemyć komórki trzykrotnie 1x PBS i inkubować je z 0,25 ml / studzienkę drugorzędowych przeciwciał anty-mysich lub anty-króliczych sprzężonych z Texas Red (patrz tabela materiałów) rozcieńczonych w stosunku 1:200 w roztworze rozcieńczającym przeciwciała.
nuta: Jądra komórkowe można barwić w tym samym czasie, dodając 0,5 μg/ml 4',6'-diamidino-2-fenyloindolu (DAPI) do tego samego roztworu przeciwciała drugorzędowego. Inkubować komórki przez 1 godzinę w temperaturze 37 °C w ciemności. Można stosować inne przeciwciała drugorzędowe sprzężone z innymi fluoroforami. - Usuń przeciwciało drugorzędowe i DAPI z kroku 3.1.8, umyj komórki trzykrotnie 1x PBS. Po umyciu pozostaw komórki w 0,25 ml / studzienkę 1x PBS.
- Umieść płytkę na stoliku mikroskopu fluorescencyjnego, aby wykryć ekspresję reporterową Wenus i Nluca oraz NP z zainfekowanych komórek za pomocą odpowiednich filtrów fluorescencyjnych. Uchwyć obrazy za pomocą mikroskopu fluorescencyjnego (20-krotne powiększenie) i połącz je za pomocą oprogramowania do edycji obrazu ( Rysunek 2A,B).
- Na dzień przed zakażeniem wysiać 24-dołkowe płytki komórkami nabłonkowymi Madin-Darby Canine Kidney (MDCK) (1 x 10⁵ komórek/dołek, trzykrotnie) w pożywkach do hodowli tkankowych i utrzymywać płytki w inkubatorze o temperaturze 37 °C z 5% CO2 . Przygotuj wystarczającą liczbę studzienek, aby ocenić wszystkie wybrane przeciwciała zarówno w komórkach zakażonych pozorowano, jak i zakażonych wirusem BIRFLU.
- Przeanalizuj aktywność Nluc (Rysunek 2C) i replikację wirusa (Rysunek 2D).
- Na dzień przed zakażeniem wysiewać 12-dołkowe płytki komórkami MDCK (2 x 10⁵komórek/basenik, trzykrotnie) przy użyciu pożywki do hodowli tkankowych w inkubatorze o temperaturze 37 °C z 5% CO2 w celu osiągnięcia około 90% zbieżności do czasu zakażenia.
nuta: Przed infekcją sprawdź komórki pod mikroskopem, aby zweryfikować monowarstwę komórek MDCK. - W dniu zakażenia należy przygotować rozcieńczenia wirusów WT i BIRFLU w pożywce infekcyjnej w celu zakażenia komórek MDCK (krok 3.2.1.) w trzech powtórzeniach z MOI 0,001 PFU w 0,5 ml / studzienkę. Usunąć pożywkę do hodowli tkankowych i dwukrotnie przemyć komórki MDCK 1x PBS.
- Dodać rozcieńczenia wirusa do monowarstw MDCK i pozostawić na adsorpcję wirusa w temperaturze pokojowej przez 1 godzinę na platformie bujanej. Po adsorpcji wirusa usunąć inokulum wirusa i dodać 1,5 ml pożywki poinfekcyjnej zawierającej 1 μg/ml trypsyny poddanej działaniu TPCK do każdej studzienki. Inkubować zakażone komórki w inkubatorze z wilgotnością 5% CO2 w temperaturze 33 °C i zbierać supernatanty we wskazanych punktach czasowych wskazanych w kroku 3.2.4.
- Po 24, 48, 72 i 96 godzinach po zakażeniu (PI) należy zebrać 150 μl supernatantu do hodowli tkankowej z każdej studzienki i przechowywać próbki w probówce mikrowirówkowej w temperaturze -80 °C w celu przeprowadzenia testów Nluc i miareczkowania wirusa.
- Aby wykonać test aktywności Nluc, postępuj zgodnie ze wskazaniami producenta. Najpierw rozmrozić supernatant do hodowli tkankowych przechowywany w temperaturze -80 °C (etap 3.2.4) na lodzie.
nuta: Zapoznaj się z zaleceniami producenta i w razie potrzeby zoptymalizuj test. - Przygotować roztwór do oznaczania lucyferazy (patrz tabela materiałów), rozcieńczając substrat Nluca w stosunku 1:50 buforem rozcieńczającym. Na białej, płaskodennej 96-dołkowej mikropłytce do oznaczania lucyferazy wymieszać 25 μl roztworu testowego lucyferazy z 10 do 25 μl zebranych próbek supernatantu z kultur tkankowych. Inkubuj mieszaninę przez 2–3 minuty przed pomiarem luminescencji za pomocą luminometru (Rysunek 2C).
nuta: Obecność zakaźnych cząstek wirusa w supernatantach hodowli tkankowej określa się za pomocą testu fluorescencyjnego immunofokusa (Venus) lub immunofluorescencji pośredniej (barwienie antygenem wirusowym), jak opisano wcześniej23,32,33,56. - Dzień przed miareczkowaniem wirusa wysiewa się komórki MDCK na 96-dołkowej płytce (2 x 10⁴ komórki/dołek, trzykrotnie) pożywką do hodowli tkankowej i pozwól komórkom osiągnąć 90% konfluencji do czasu infekcji w inkubatorze ustawionym na 37 °C z 5% CO2 .
- Użyć próbek supernatantu do hodowli tkankowych, które rozmrożono na lodzie (etap 3.2.4). Dodać 90 μl pożywki infekcyjnej do każdej z pożywek w nowej 96-dołkowej płytce, a następnie dodać 10 μl rozmrożonego supernatantu do hodowli tkankowych (etap 3.2.4) do pierwszego dołka (rząd A). Za pomocą pipety wielokanałowej wymieszaj i przenieś 10 μl z rzędu A do rzędu B. Zmieniaj końcówki między rozcieńczeniami i dobrze wymieszaj.
nuta: Procedurę tę należy powtarzać do ostatniego rzędu (H). Zalecamy wykonanie miareczkowania wirusa w trzech egzemplarzach w celu dokładnego pomiaru miana wirusa. - Usunąć pożywkę do hodowli tkankowych z komórek MDCK na płytkach 96-dołkowych (etap 3.2.7) i przemyć dwukrotnie 1x PBS. Dodać 50 μl rozcieńczeń sklarowanego nad osadem z repliki płytki 96-dołkowej zawierającej rozcieńczenia wirusa (etap 3.2.8) do każdej studzienki w 96-dołkowej płytce zawierającej komórki MDCK.
- Inkubować 96-dołkową płytkę na platformie kołyszącej przez 1 godzinę w temperaturze pokojowej, aby umożliwić adsorpcję wirusa. Po adsorpcji wirusa usunąć inokulum i dodać 100 μl/studzienkę pożywki poinfekcyjnej zawierającej 1 μg/ml trypsyny poddanej działaniu TPCK. Inkubować zakażone komórki przez 12 godzin w inkubatorze o temperaturze 33 °C z 5% CO2 .
- Ponieważ BIRFLU wykazuje ekspresję Wenus, liczbę zakażonych komórek można bezpośrednio policzyć za pomocą mikroskopu fluorescencyjnego. Alternatywnie, miana wirusa można określić za pomocą immunofluorescencji pośredniej, jak opisano wcześniej, przy użyciu przeciwciała przeciwko białku wirusowemu23,56,57,59. W tym drugim przypadku należy przystąpić do utrwalania/przepuszczalności komórek i barwienia za pomocą anty-NP mAb HB-65, jak opisano w punkcie 4.4.
- Określ miana wirusa, licząc liczbę jednostek tworzących fluorescencje (FFU)/ml za pomocą wzoru: ((liczba FFU) x 20 x 1/rozcieńczenie (Rysunek 2D).
- Na dzień przed zakażeniem wysiewać 12-dołkowe płytki komórkami MDCK (2 x 10⁵komórek/basenik, trzykrotnie) przy użyciu pożywki do hodowli tkankowych w inkubatorze o temperaturze 37 °C z 5% CO2 w celu osiągnięcia około 90% zbieżności do czasu zakażenia.
4. Charakterystyka BIRFLU in vivo (Rysunek 3 i Rysunek 4)
- Zakażenie myszy
UWAGA: Infekcja donosowa myszy została przeprowadzona zgodnie z wcześniejszym opisem23. Aby uzyskać bardziej szczegółowy protokół infekcji IAV in vivo przy użyciu mysiego modelu infekcji, zalecamy obejrzenie filmu powiązanego z poprzednią publikacją23. W tej sekcji podsumowano jedynie kroki wymagane do zakażenia myszy wirusem BIRFLU.- Sprawdź myszy, aby ocenić ich stan zdrowia i ogólny wygląd fizyczny. Przygotować rozcieńczenie BIRFLU w 1x PBS, aby zaszczepić myszy 1 x 10⁶ PFU BIRFLU w całkowitej objętości 30 μL/mysz. Utrzymuj wirusa na lodzie do momentu zaszczepienia myszy.
nuta: Myszy zakażone pozorem (1x PBS) będą potrzebne jako wewnętrzna kontrola obrazowania. Umieść pozorowane myszy zakażone w innej klatce niż zwierzęta zakażone BIRFLU. - Znieczulenie pięcio- do siedmiotygodniowych samic myszy BALB/c dootrzewnowo za pomocą 240–250 mg/kg tribromoetanolu (KZM) poprzez włożenie igły w ogonową 2/3 prawej strony brzucha. Następnie umieść mysz z powrotem w klatce i odczekaj około 5 minut. Sprawdź, czy mysz jest znieczulona przed inokulacją wirusa przy braku odruchu szczypania palców.
nuta: Środki uspokajające do wstrzykiwań są zalecane zamiast wziewnych środków uspokajających w przypadku zakażeń grypą in vivo, ponieważ te ostatnie mogą modyfikować zachowanie i wchłanianie wirusa przez nabłonek dróg oddechowych. Co więcej, mogą również wpływać na miejscową odpowiedź immunologiczną płuc i zakłócać obrazowanie in vivo zakażonych myszy. Wreszcie, wziewne środki uspokajające mają skrócony czas działania, co stanowiłoby problem w przypadku obrazowania in vivo zakażonych zwierząt. - Zaszczepić myszy donosowo 30 μl przygotowanego rozcieńczenia BIRFLU. Sprawdź, czy myszy oddychają prawidłowo, zanim włożysz je z powrotem do klatki.
- Sprawdź myszy, aby ocenić ich stan zdrowia i ogólny wygląd fizyczny. Przygotować rozcieńczenie BIRFLU w 1x PBS, aby zaszczepić myszy 1 x 10⁶ PFU BIRFLU w całkowitej objętości 30 μL/mysz. Utrzymuj wirusa na lodzie do momentu zaszczepienia myszy.
- Monitorowanie bioluminescencji myszy zakażonych wirusem BIRFLU (Rysunek 4A)
UWAGA: W tym manuskrypcie reporterowa ekspresja Nluc lub Venus i replikacja wirusa w płucach myszy zakażonych BIRFLU są określane po 3 dniach od zakażenia. Jednak charakter obrazowania bioluminescencyjnego pozwala na wielokrotne monitorowanie ekspresji Nluca u poszczególnych zwierząt zakażonych BIRFLU bez konieczności ich eutanazji dla każdego eksperymentalnego punktu czasowego. Do wykonania opisanych procedur eksperymentalnych wymagany jest system obrazowania in vivo z kolektorem znieczulającym izofluranem. Szczegółowe informacje na temat instrumentu do obrazowania i oprogramowania do obrazowania używanego do pozyskiwania obrazów i analizy danych można znaleźć w tabeli materiałów.- Ogol klatkę piersiową myszy, aby poprawić sygnał bioluminescencji. Otwórz oprogramowanie do obrazowania i naciśnij przycisk Inicjuj. Następnie ustaw parametry, które będą używane, w tym ustawienie trybu obrazowania na bioluminescencję, automatyczne zapisywanie, czas ekspozycji na automatyczny, otwarty filtr itp.
- Po pełnej inicjalizacji urządzenia włącz system znieczulenia izofluranem. Umieść zwierzęta w komorze anestezjologicznej. Myszy są jednocześnie i lekko znieczulane mieszaniną gazowego tlenu i odparowanego 1-2% izofluranu.
- Po znieczuleniu myszy należy podać substrat Nluc (patrz Tabela materiałów) rozcieńczony w stosunku 1:10 w 1x PBS (końcowa objętość 100 μl / mysz) drogą zadoczodołową za pomocą strzykawki z igłą 22 G.
- Natychmiast po podaniu odczynnika Nluc umieść zwierzęta w przyrządzie do obrazowania klatką piersiową skierowaną do góry i pyskiem wewnątrz stożka kolektora, aby utrzymać znieczulenie zwierzęcia podczas obrazowania. Natychmiast po zamknięciu drzwiczek imagera kliknij Acquire w oprogramowaniu (Rysunek 4A, góra).
- Po obrazowaniu umieść myszy z powrotem w klatkach, monitorując je, aż w pełni wyzdrowieją i wyłącz parownik izofluranu. Następnie należy przystąpić do obrazowania ex vivo płuc myszy w celu oceny ekspresji genu reporterowego Wenus (sekcja 4.3).
- Użyj narzędzi oprogramowania do obrazowania, aby przeanalizować uzyskane dane bioluminescencyjne. Wykorzystaj narzędzie ROI (region zainteresowania), aby wyznaczyć konkretny sygnał i wykonać pomiary strumienia w obszarze zainteresowania (zwykle wokół klatki piersiowej) (Rysunek 4A, na dole). Chociaż kształt ROI nie ma znaczenia, większe ROI są generalnie preferowane, aby uchwycić cały obszar dyfuzji sygnału.
- Kliknij przycisk Zmierz. Oceń bioluminescencję fotonów, ponieważ zapewnia ona bezwzględny pomiar emisji fotonów, który jest porównywalny z pomiarami wyjściowymi dostarczanymi przez różne parametry lub instrumenty do obrazowania.
- Analiza fluorescencji u myszy zakażonych BIRFLU ( Rysunek 3 i Rysunek 4B)
- Zbierz płuca myszy po obrazowaniu in vivo, jak opisano wcześniej23.
- Krótko mówiąc, poddać myszy eutanazji śmiertelną dawką KZM (500 mg/kg). Zdezynfekuj miejsce nacięcia 70% etanolem. Za pomocą skalpela wykonaj nacięcie od mostka do podstawy brzucha, a następnie przeciąć nożyczkami od dołu nacięcia do boków. Następnie przeciąć żyłę wątrobową (druga metoda eutanazji fizycznej), aby wykrwawić zwierzę.
nuta: Aby uniknąć wysokiego sygnału tła podczas obrazowania, ważne jest, aby zminimalizować ilość krwi w płucach (patrz poniżej).
- Krótko mówiąc, poddać myszy eutanazji śmiertelną dawką KZM (500 mg/kg). Zdezynfekuj miejsce nacięcia 70% etanolem. Za pomocą skalpela wykonaj nacięcie od mostka do podstawy brzucha, a następnie przeciąć nożyczkami od dołu nacięcia do boków. Następnie przeciąć żyłę wątrobową (druga metoda eutanazji fizycznej), aby wykrwawić zwierzę.
- Umieść mysz w pozycji leżącej grzbietowej i użyj nożyczek, aby przeciąć opłucną i otworzyć klatkę piersiową. Następnie usuń płuca, odcinając koniec tchawicy nożyczkami, delikatnie przytrzymując płuca kleszczami.
- Umieścić płuca w sześciodołkowej płytce z 2 ml 1x PBS i przemyć płuca trzykrotnie 1x PBS.
nuta: Aby uniknąć zanieczyszczenia między próbkami, należy oczyścić i zdezynfekować narzędzia preparacyjne między każdym zwierzęciem.
- Umieścić płuca w sześciodołkowej płytce z 2 ml 1x PBS i przemyć płuca trzykrotnie 1x PBS.
- Uruchom oprogramowanie do akwizycji obrazu, klikając inicjalizację i ustaw parametry obrazowania, w tym ustawienie trybu obrazowania na fluorescencję, automatyczne zapisywanie, czas ekspozycji na automatyczny, filtry wzbudzenia (500 nm) i emisji (540 nm).
- Po zainicjowaniu urządzenia umieść płuca w czarnej tacce na tle, upewniając się, że tkanki są oddzielone od siebie, wprowadź tacę do wywoływarki i kliknij przycisk Acquire w programie systemu obrazowania po zamknięciu drzwiczek imagera (Rysunek 4B, góra).
- Po zobrazowaniu należy natychmiast usunąć tkanki i przechowywać je na lodzie (4 °C), jeśli próbki są przetwarzane tego samego dnia; lub na probówce i suchym lodzie w celu ich szybkiego zamrożenia, przed przechowywaniem w temperaturze -80 °C, jeżeli próbki będą przetwarzane później tego samego dnia.
- W celu przetworzenia obrazu wybierz narzędzie ROI i narysuj ROI wokół każdego z poszczególnych płuc. Kliknij przycisk Zmierz. Następnie, korzystając z uzyskanych średnich pomiarów wydajności promieniowania, odejmij wartości od pozorowanych zainfekowanych myszy (Rysunek 4B, na dole).
UWAGA: W przypadku BIRFLU istnieje dobra korelacja między poziomami ekspresji Nluc i Wenus oraz dystrybucją sygnału. Dlatego ważne jest, aby przeanalizować ekspresję Nluc (cała mysz) i Wenus (wycięte płuca) u tego samego zwierzęcia i utrzymać tę samą orientację.
- Zbierz płuca myszy po obrazowaniu in vivo, jak opisano wcześniej23.
- Ocena replikacji BIRFLU w płucach myszy (Rysunek 3 i Rysunek 4C)
- Homogenizuj płuca myszy w celu miareczkowania wirusa za pomocą testu płytki nazębnej, jak opisano wcześniej23.
- Umieść płuca w homogenizatorze Dounce z 1 ml schłodzonego podłoża infekcyjnego. Homogenizować płuca tłuczkiem przez 1 minutę w temperaturze pokojowej, aż do całkowitego rozpadu, a następnie przechowywać próbki w sterylnej probówce o temperaturze 4 °C.
- Odwirować próbki o masie 300 x g przez 10 minut i zebrać supernatant do sterylnej probówki. Próbki należy przechowywać na lodzie, jeśli będą używane tego samego dnia, lub zamrozić je w temperaturze -80 °C w celu oceny miana wirusa w późniejszym czasie.
nuta: Do każdej próbki płuc należy użyć nowego homogenizatora Dounce. - Aby wykonać test płytki nazębnej, dzień przed wykonaniem miareczkowania wirusa, wysiewa się sześciodołkowe płytki komórkami MDCK (5 x 10⁵ komórek/dołek) w pożywce do hodowli tkankowych. Inkubować komórki przez noc w temperaturze 37 °C z 5% CO2 , aby następnego dnia osiągnąć 90% konfluencji. Przed infekcją upewnij się, że komórki tworzą monowarstwę pod mikroskopem świetlnym.
- Przygotować seryjne rozcieńczenia supernatantu w stosunku 1:10 z homogenizowanych próbek (etap 4.4.1) w pożywce infekcyjnej. Przygotować probówki do mikrowirówek z 540 μl pożywki infekcyjnej, dodać 60 μl z homogenizowanej próbki płuc do pierwszej probówki, wymieszać pipetując w górę iw dół, a następnie za pomocą nowej końcówki przenieść 60 μl do następnej probówki. Powtarzać ten proces seryjnego rozcieńczania aż do ostatniego rozcieńczenia.
nuta: Z naszego doświadczenia wynika, że 7 rozcieńczeń wystarcza do określenia miana wirusa za pomocą testu płytki nazębnej z płuc zakażonych myszy. - Przemyć komórki MDCK (etap 4.4.3) dwukrotnie 1x PBS i przenieść 500 μl seryjnie rozcieńczonych próbek do każdego dołka na płytce sześciodołkowej. Umieść płytki na platformie bujanej i pozwól na wchłanianie wirusa przez 1 godzinę w temperaturze pokojowej.
- Po 1 godzinie wchłaniania wirusa usunąć inokulum wirusa, dodać 2 ml/studzienkę pożywki zawierającej 1 μg/ml trypsyny poddanej działaniu TPCK, a następnie inkubować komórki w temperaturze 33 °C w temperaturze poniżej 5% CO2 przez 3 dni.
- Utrwalić zainfekowane komórki (krok 4.4.6) za pomocą 1 ml / studzienkę 4% formaldehydu rozcieńczonego w 1x PBS w temperaturze pokojowej przez 2 godziny, a następnie ostrożnie usunąć pożywkę nakładkową i dodać 1 ml 1x PBS do każdej studzienki. Aby zobrazować Wenus, zobrazuj sześciodołkowe płytki za pomocą systemu obrazowania do wykrywania fluorescencji.
nuta: Blaszki wirusowe można pokolorować za pomocą oprogramowania do edycji obrazu (patrz tabela materiałów). - Aby ocenić ekspresję Nluc, uwidocznij blaszki wirusowe poprzez barwienie immunologiczne za pomocą anty-Nluc pAb. W tym celu usuń 1x PBS, przepuszczaj komórki za pomocą 0,5 ml / studzienkę roztworu do przepuszczalności przez 15 minut w temperaturze pokojowej.
- Usunąć roztwór permeabilizacyjny, przemyć komórki trzykrotnie 1x PBS i zablokować 0,5 ml / studzienkę roztworu blokującego przez 1 godzinę w temperaturze pokojowej.
- Usunąć roztwór blokujący z kroku 4.4.9 i inkubować komórki z 0,5 ml/basenik anty-Nluc pAb rozcieńczonego w stosunku 1:1000 w roztworze rozcieńczonym przez 1 godzinę w temperaturze 37 °C.
- Użyj zestawu fosfatazy alkalicznej ABC i zestawu substratu peroksydazy DAB zgodnie z zaleceniami producenta w celu wizualizacji blaszek wykazujących ekspresję Nluc.
- Krótko mówiąc, przemyć komórki z 4.4.10 trzykrotnie 1x PBS i inkubować je z 0,5 ml/studzienkę biotynylowanego anty-króliczego przeciwciała drugorzędowego przez 1 godzinę w temperaturze 37 °C.
- Usunąć przeciwciało drugorzędowe, przemyć komórki trzykrotnie 1x PBS i inkubować z roztworem ABC przez 1 godzinę w temperaturze 37 °C. Przemyć komórki trzykrotnie za pomocą 1x PBS i uwidocznić blaszki wirusowe za pomocą zestawu substratu DAB HRP. Zeskanuj blaszki barwione immunologicznie za pomocą konwencjonalnego skanera.
nuta: Można zastosować inne podobne zestawy do barwienia immunologicznego.
- Zabarwić blaszki wirusowe roztworem fioletu krystalicznego przez 1 godzinę w temperaturze pokojowej. Wyrzuć fiolet krystaliczny, umyj płytki trzy razy wodą, pozostaw płytki do wyschnięcia i ponownie zeskanuj płytki.
- Aby określić miana wirusów, policz blaszki odsłonięte po barwieniu fioletem krystalicznym. Zeskanuj płytki za pomocą konwencjonalnego skanera. Obliczyć miano wirusa jako jednostki tworzące płytkę nazębną (PFU) na ml (PFU/ml).
- Aby ocenić stabilność BIRFLU in vivo, należy obliczyć odsetek wirusów wykazujących ekspresję reporterową, licząc liczbę blaszek barwionych fioletem krystalicznym (liczba zakaźnych wirusów, krok 4.4.12) i porównać z liczbą blaszek wykazujących ekspresję Wenus i Nluc (odpowiednio krok 4.4.7 i etap 4.4.11).
- Odwirować próbki o masie 300 x g przez 10 minut i zebrać supernatant do sterylnej probówki. Próbki należy przechowywać na lodzie, jeśli będą używane tego samego dnia, lub zamrozić je w temperaturze -80 °C w celu oceny miana wirusa w późniejszym czasie.
Wyniki
Generowanie i charakterystyka BIRFLU in vitro (Rysunek 1 i Rysunek 2)
Rekombinowany, zdolny do replikacji wirus IAV wykazujący ekspresję dwóch różnych genów reporterowych (BIRFLU) został skonstruowany przy użyciu nowoczesnych technik biologii molekularnej i odwrotnej genetyki opartej na plazmidach (Rysunek 1). W tym przypadku zdecydowano się na użycie Nluc ze względu na szereg zalet w porównaniu z innymi lucyferazami, w tym niewielki rozmiar, niezależność od ATP, większą intensywność oraz zoptymalizowany substrat48,60. Nluc sklonowano do segmentu HA IAV PR8, po czym dodano miejsce cięcia teschowirusa świńskiego (PTV) 2A (2A) przed otwartą ramką odczytu (ORF) HA (Rysunek 1). ORF HA zawierała mutacje ciche w celu usunięcia oryginalnych sygnałów upakowania i uniknięcia ewentualnej rekombinacji. Przed Nluc dodano kompletny sygnał upakowania HA, aby umożliwić prawidłową inkorporację zmodyfikowanego segmentu HA do wirionu oraz ekspresję Nluc i HA z tego samego wirusowego segmentu RNA (Rysunek 1). Dodatkowo białko fluorescencyjne Venus sklonowano do zmodyfikowanego segmentu NS IAV PR8, który koduje dwa białka wirusowe NS1 i NEP z jednego transkryptu32,36,41,54,57. W tym celu Venus połączono z końcem C-terminalnym NS1, a całą ORF NEP sklonowano w kierunku 3' od miejsca cięcia PTV 2A, które zostało umieszczone pomiędzy sekwencjami NS1-Venus a NEP (Rysunek 1). Ostatecznie te dwie zmodyfikowane konstrukcje plazmidowe wirusowe HA i NS wykorzystano w połączeniu z pozostałymi plazmidami do odwrotnej genetyki IAV PR8 w celu wygenerowania BIRFLU (Rysunek 1). Charakterystyka BIRFLU in vitro i in vivo została opisana wcześniej55.
Na Ryc. 2 scharakteryzowano in vitro BIRFLU poprzez oznaczenie poziomów ekspresji Venus, Nluc i NP z wykorzystaniem fluorescencji oraz pośredniej immunofluorescencji (Ryc. 2A,B). Konfluentne monowarstwy komórek MDCK poddano infekcji pozorowanej (mock) lub zainfekowano (MOI 0,1) wirusami WT lub BIRFLU PR8, a po 18 h od infekcji bezpośrednio oceniono ekspresję Venus za pomocą mikroskopii fluorescencyjnej (Ryc. 2A,B). Ekspresję Nluc (Ryc. 2A) i NP (Ryc. 2B) zwizualizowano metodą pośredniej immunofluorescencji z użyciem przeciwciał specyficznych dla każdego z białek. Zgodnie z przewidywaniami, ekspresję Venus i Nluc wykryto wyłącznie w komórkach zainfekowanych BIRFLU, a nie w komórkach zainfekowanych wirusem WT PR8. Ponadto mikroskopia immunofluorescencyjna pośrednia wykazała ekspresję NP zarówno w komórkach zainfekowanych WT, jak i BIRFLU PR8. Jak oczekiwano, w komórkach poddanych infekcji pozorowanej nie stwierdzono ekspresji Venus, Nluc ani NP (Ryc. A,B).
Aby ocenić poziomy ekspresji Nluc in vitro, komórki MDCK zainfekowano (MOI 0,001) wirusami WT lub BIRFLU PR8, a następnie oceniono aktywność Nluc w nadsączach hodowli tkankowych w 24, 48, 72 i 96 h po infekcji (Rysunek 2C). Aktywność Nluc wykryto wyłącznie w nadsączach hodowli tkankowych komórek MDCK zainfekowanych BIRFLU (Rysunek 2C). Aktywność Nluc w nadsączach hodowli tkankowej wykryto już w 24 h po infekcji, przy czym wyższe poziomy ekspresji odnotowano w 96 h po infekcji, co najprawdopodobniej wynika z faktu, że efekt cytopatyczny (CPE) indukowany podczas infekcji wirusowej uwalnia białko Nluc zatrzymane w komórce. Aby ocenić sprawność BIRFLU w hodowlach komórkowych, oceniono również kinetykę wzrostu wirusów WT i BIRFLU PR8 (Rysunek 2D), a obecność zakaźnego wirusa w nadsączach hodowli tkankowych określono za pomocą testu immune-focus (Rysunek 2D). Warto zauważyć, że kinetyka replikacji BIRFLU była porównywalna do kinetyki wirusa WT PR8, choć replikacja BIRFLU była nieco opóźniona i nie osiągnęła tak wysokich mian wirusa jak WT PR8. Niemniej jednak BIRFLU był w stanie osiągnąć miano 5 x 10⁷ PFU/mL (Rysunek 2D), co wskazuje, że ekspresja dwóch genów reporterowych w genomie wirusa nie zakłóca znacząco replikacji BIRFLU w komórkach MDCK.
Śledzenie infekcji BIRFLU u myszy (Rycina 3 i Rycina 4)
Rysunek 3 przedstawia schematycz questiu przepływu oceny dynamiki BIRFLU w mysim modelu zakażenia IAV. Samice myszy BALB/C w wieku od pięciu do siedmiu tygodni zostały poddane pozorowanemu zakażeniu 1x PBS lub zakażone donosowo dawką 1 x 10⁶ PFU BIRFLU. W 3. dobie po zakażeniu myszy znieczulono izofluranem, a następnie wstrzyknięto im retroskrabialnie substrat Nluc. Wszystkie myszy natychmiast umieszczono w urządzeniu IVIS i oceniono sygnał Nluc in vivo za pomocą IVIS. Następnie myszy uśpiono i pobrano płuca. Wycięte płuca przeanalizowano ex vivo za pomocą obrazera in vivo w celu określenia intensywności fluorescencji poprzez ekspresję Venus. Na koniec płuca myszy zhomogenizowano, a miano i stabilność wirusa określono za pomocą metody plackowej. Plaki oceniano poprzez bezpośrednią fluorescencję Venus, immunobarwienie z wykorzystaniem przeciwciał specyficznych dla Nluc oraz barwienie fioletem krystalicznym.
Opisane wcześniej zdolne do replikacji wirusy IAV wykazujące ekspresję genów raportowych zawierają pojedynczy gen raportowy, najczęściej białko fluorescencyjne lub bioluminescencyjne, który służy jako wskaźnik infekcji i replikacji wirusa. Jednak BIRFLU jest w stanie wyekspresować oba typy genów raportowych po infekcji wirusowej. Aby ocenić korelację między bioluminescencją (obrazowanie in vivo) a fluorescencją (obrazowanie ex vivo) po infekcji BIRFLU, samice myszy BALB/c w wieku od pięciu do siedmiu tygodni poddano infekcji pozorowanej z użyciem 1x PBS lub inokulowano BIRFLU (106 PFU) donosowo. Aktywność Nluc (Rycina 4A) oceniono poprzez podanie substratu Nluc w zastrzyku zaoczodołowym w 3. dobie po zakażeniu z wykorzystaniem urządzenia do obrazowania in vivo. Zdecydowano się na ocenę bioluminescencji w 3. dobie, ponieważ wcześniejsze badania wykazały, że replikacja IAV, w tym szczepu PR8, osiąga szczyt między 2. a 4. dobą po zakażeniu24,54Monitorowano bioluminescencję (Rycina 4A, góra) i wykorzystano go do obliczenia średniego całkowitego strumienia (Strumień (log10 p/s) (Rycina 4A, dół). Zgodnie z przewidywaniami, u myszy inokulowanych BIRFLU odnotowano wysoką aktywność bioluminescencyjną, natomiast u myszy w grupie kontrolnej (mock) nie wykryto żadnego sygnału. Następnie pobrano płuca z zainfekowanych myszy i oceniono ekspresję białka Venus za pomocą obrazowania ex vivo (Rycina 4B, góra). Ponadto obliczono średnią wydajność promienistą fluorescencji (Rysunek 4B, dół). Wycięte płuca myszy poddano również homogenizacji w celu oznaczenia mian wirusa oraz stabilności genetycznej BIRFLU in vivo (Rysunek 4C,D). Stabilność genetyczną BIRFLU analizowano za pomocą testu plackowego z wykorzystaniem wirusów wyizolowanych z płuc myszy oraz mikroskopii fluorescencyjnej (Venus, góra), immunobarwienia (Nluc, środek) i barwienia fioletem krystalicznym (dół). BIRFLU odzyskane z płuc myszy były zdolne do tworzenia placków i stabilnie wyrażały oba geny reporterowe (Rycina 4CWarto zauważyć, że zaobserwowano dobrą korelację sygnałów bioluminescencyjnych i fluorescencyjnych z replikacją wirusa.
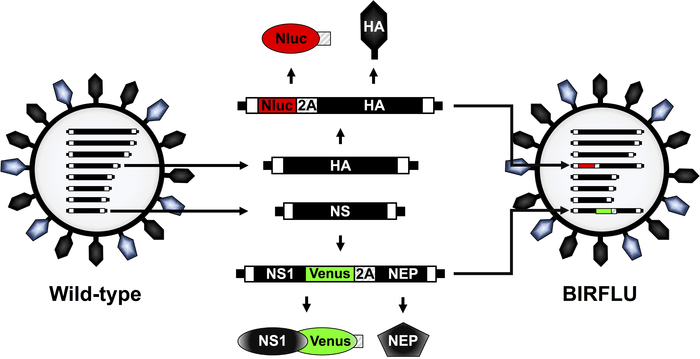
Rysunek 1: Schematyczna reprezentacja struktury wirionu i segmentów genomu IAV PR8 WT oraz BIRFLU. Wirusy IAV są otoczone dwuwarstwą lipidową zawierającą dwie główne glikoproteiny wirusowe: hemaglutyninę (HA; kolor czarny) i neuraminidazę (NA; kolor niebieski). IAV zawierają osiem jednoniciowych, ujemnych segmentów RNA (PB2, PB1, PA, HA, NP, NA, M oraz NS). Każdy segment wirusowy zawiera regiony niekodujące (NCR) na końcach 3’ i 5’ (czarne prostokąty). Ponadto na końcach 3’ i 5’ wirusowego RNA (vRNA) znajdują się sygnały upakowania, odpowiedzialne za efektywną enkapsydację vRNA do powstających wirionów (białe prostokąty). Segmenty wirusowe i produkty HA oraz NS IAV PR8 zaznaczono na czarno. Sekwencje Nluc, Venus i PTV 2A zaznaczono odpowiednio czerwonymi, zielonymi i prążkowanymi prostokątami. Przedstawiono również schematyczną reprezentację zmodyfikowanych segmentów HA i NS w BIRFLU, które ekspresują odpowiednio Nluc i Venus. Rysunek został zaadaptowany z pracy Nogales et al.55. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.

Rysunek 2: Charakterystyka in vitro BIRFLU. (A, B) Analiza ekspresji białek metodą bezpośredniej fluorescencji i immunofluorescencji. Komórki MDCK poddano infekcji pozornej lub zainfekowano (MOI 0,1) wirusami PR8 WT lub BIRFLU. Zainfekowane komórki utrwalono 18 h po infekcji w celu bezpośredniej wizualizacji ekspresji Venus za pomocą mikroskopii fluorescencyjnej oraz wizualizacji ekspresji Nluc (A) i wirusowego NP (B) z zastosowaniem swoistych przeciwciał i pośredniej immunofluorescencji. Jądra komórkowe barwiono DAPI. Przedstawiono reprezentatywne obrazy (powiększenie 20x). Paski skali = 100 μm. (C, D) Kinetyka wzrostu PR8 WT i BIRFLU. Aktywność Nluc (C) oraz miana wirusa (D) w nadsączach z kultur komórek MDCK zainfekowanych (MOI 0,001) wirusami PR8 WT i BIRFLU oceniano w określonych punktach czasowych po infekcji. Dane przedstawiają średnie ± SD z trzech powtórzeń. Miana wirusa określono za pomocą testu ognisk immunologicznych (FFU/mL). Linia przerywana oznacza granicę wykrywalności (200 FFU/ml). Rysunek został zaadaptowany z pracy Nogales et al.55. Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
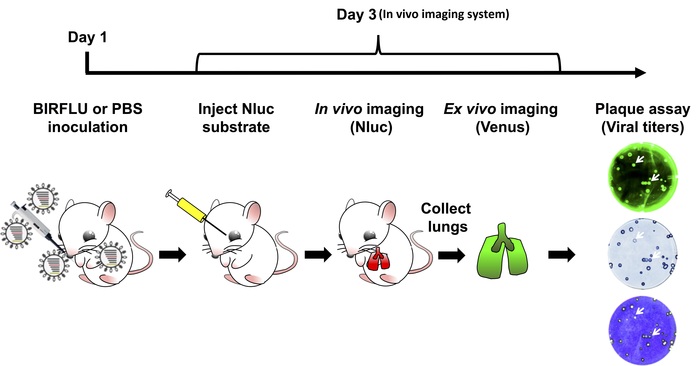
Rysunek 3: Schematyczne przedstawienie badania BIRFLU u myszy. Ekspresję genów reporterowych Nluc i Venus oceniano u myszy zainfekowanych 1 x 10⁶ PFU BIRFLU za pomocą obrazowania in vivo lub ex vivo. W skrócie, w dniu 1. samice myszy BALB/c w wieku od 5 do 7 tygodni poddano infekcji pozorowanej (1x PBS) lub inokulowano donosowo 1 x 10⁶ PFU BIRFLU. W 3. dniu po infekcji myszy poddano lekkiej anestezji izofluranem, a substrat Nluc wstrzyknięto drogą retroorbitalną. Sygnał Nluc oceniano bezpośrednio za pomocą obrazowania in vivo. Bezpośrednio po obrazowaniu myszy uśpiono, a ekspresję Venus w całych wyciętych płucach analizowano za pomocą obrazowania ex vivo. Odzyskane płuca myszy poddano homogenizacji w celu oceny replikacji i stabilności wirusa za pomocą testu plackowego. Strzałki wskazują korelację między fluorescencją (Venus), immunobarwieniem (Nluc) a barwieniem fioletem krystalicznym. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
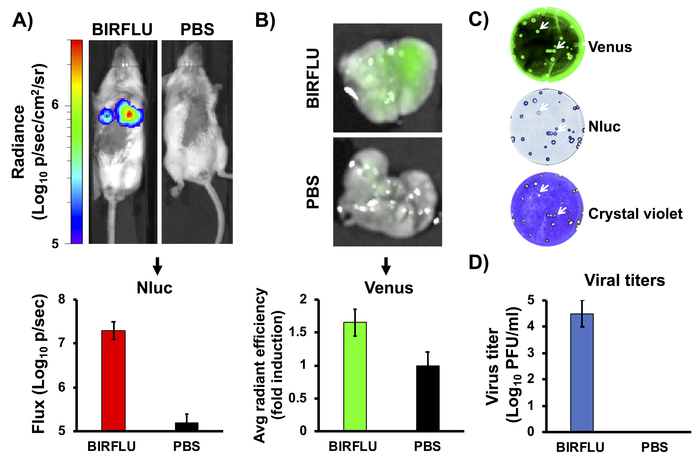
Rysunek 4: Ekspresja bioluminescencji i fluorescencji in vivo. Samice myszy BALB/c w wieku od pięciu do siedmiu tygodni poddano infekcji pozorowanej (1x PBS) lub zaszczepiono dawką 1 x 10⁶ PFU BIRFLU donosowo. W 3. dobie po zakażeniu aktywność Nluc (A) określono w całym organizmie myszy. Reprezentatywne obrazy pojedynczej myszy przedstawiające skalę radiancji (p/sek/cm2Wartości promieniowania bioluminescencyjnego zostały ilościowo określone i przedstawiono średni całkowity strumień (Strumień (Log10 p/s). Po obrazowaniu Nluc pobrano płuca do obrazowania ex vivo (B). Przedstawiono reprezentatywne zdjęcia całych płuc. W celu ilościowego określenia ekspresji białka Venus znormalizowano średnie wartości z obszarów zainteresowania (ROI) względem autofluorescencji płuc myszy z grupy kontrolnej (mock-infected) i obliczono krotność zmian. Aby przeanalizować stabilność genetyczną BIRFLU in vivo, wirusy wyizolowane z płuc myszy poddano analizie metodą testu płytek przy użyciu mikroskopii fluorescencyjnej (Venus, góra), immunobarwienia (Nluc, środek) oraz barwienia fioletem krystalicznym (dół) (C). Przedstawiono reprezentatywne obrazy od jednej myszy. W celu oceny replikacji wirusa, całe płuca poddano homogenizacji po wykonaniu obrazowania, a następnie wykorzystano je do zakażenia komórek MDCK i oznaczenia mian wirusa za pomocą testu plackowego (PFU/ml) (D). Strzałki wskazują korelację między fluorescencją (Venus), barwieniem immunologicznym (Nluc) a barwieniem fioletem krystalicznym. Słupki reprezentują średnią ± SD mian wirusa w płucach. Rysunek został zaadaptowany z pracy Logales i wsp.55. Aby wyświetlić powiększoną wersję tej figury, kliknij tutaj.
| Pożywki i roztwory do hodowli tkankowych | Skład | Przechowywanie | Zastosowanie |
| Pożywki do hodowli tkankowych: podłoże DMEM (Dulbecco’s modified Eagle’s medium), 10% płodowa surowica bydlęca (FBS), 1% penicylina-streptomycyna-L-glutamina (PSG) (DMEM z 10% FBS i 1% PSG). | 445 ml DMEM, 50 ml FBS oraz 5 ml 100x PSG. | 4 °C | Utrzymanie hodowli komórek MDCK |
| Pożywka poinfekcyjnaDMEM 0,3% albuminy bydlęcej (BA), 1% PSG (DMEM 0,3% BA 1% PSG). | 491 ml DMEM, 4,2 ml 35% BA oraz 5 ml 100x PSG | 4 °C | Utrzymanie komórek MDCK po infekcji wirusowej |
| 10x roztwór soli fosforowo-buforowanej (PBS) | 80 g NaCl, 2 g KCl, 11,5 g Na2HPO4.7H2O, 2 g KH2PO4Dodać ddH2O2do 1 L. Dostosować pH do 7,3 | Temperatura pokojowa | Aby przygotować 1x PBS |
| 1x PBS | Rozcieńczyć 10x PBS w ddH2O2O | Temperatura pokojowa | Przemycie komórek |
| Pożywki do zakażania: 1x PBS, 0,3% BA, 1% penicyliny-streptomycyny (PS) (PBS/BA/PS). | 487 ml sterylnego 1x PBS, 4,2 ml 35% BA oraz 5 ml 100x 1% PS (100 J/ml) | 4 °C | Infekcje wirusowe |
| Roztwór do fiksacji/permeabilizacji: 4% formaldehyd, 0,5% Triton X-100 rozcieńczone w 1x PBS. | 400 ml 10% neutralnego buforowanego formaliny, 5 ml Tritonu X-100 oraz 595 ml 1x PBS | Temperatura pokojowa | Fiksacja i permeabilizacja komórek MDCK. |
| Roztwór blokujący: 2,5% albuminy surowicy bydlęcej (BSA) w 1x PBS. | 2,5 g BSA w 97,5 ml 1x PBS | 4 °C | Roztwór blokujący do immunofluorescencji i testów plackowych. |
| Roztwór do rozcieńczania przeciwciał (1% BSA w 1x PBS) | 1 g BSA w 99 ml 1x PBS | 4 °C | Rozcieńczanie przeciwciał pierwszorzędowych i drugorzędowych. |
| 0,1% roztwór fioletowego krystalicznego | 1 g fioletowego kryształu w 400 ml metanolu. Dodać 600 ml wodyy dddH2O2O | Temperatura pokojowa | Barwienie komórek MDCK w testach plackowych. |
| trypsyna traktowana tosylosulfonylowo-fenyloalanilochlorometyloketonem (TPCK) | Przygotować 1000-krotny roztwór zapasowy o stężeniu 1 mg/ml w ddH2O2O | -20 °C | W przypadku infekcji wirusowych. |
Tabela 1: Pożywki i roztwory do hodowli tkankowych.
Dyskusja
Naukowcy oparli się na rekombinowanych wirusach wykazujących ekspresję reporterową jako kluczowych narzędziach molekularnych, aby zrozumieć i poszerzyć obecną wiedzę na temat replikacji i patogenezy wirusa 26,27,28,29,30,31,32,33,34,35,36,37,38,39,40,41,54. Najczęściej preferowanymi genami reporterowymi są lucyferazy i białka fluorescencyjne, głównie ze względu na postęp technologiczny w ich identyfikacji, rozwój ulepszonych wariantów i wykrywanie za pomocą technologii obrazowania 43,44,45,46,47,48. Rekombinowane wirusy reporterowe są często wykorzystywane do przyspieszania testów wirusologicznych, badania dynamiki wirusów in vitro i in vivo oraz do testowania skuteczności obecnie zatwierdzonych lub nowych podejść szczepionkowych i terapeutycznych 26,27,28,29,30,31,32,33,34,35,36,37,38,39,40,41,54. Niestety, w przypadku IAV wcześniejsze badania ograniczały się do ekspresji pojedynczego genu reporterowego, co utrudnia przeprowadzenie tego typu badań 26,27,28,29,30,31,32,33,34,35,36,37,38,39,40,41,54. Aby uniknąć tego ograniczenia, wygenerowaliśmy dwureporterowy IAV z kompetencjami replikacyjnymi, który wyraża lucyferazy Nluc i białko fluorescencyjne Wenus (BIRFLU).
W niniejszym raporcie opisano charakterystykę in vitro BIRFLU oraz eksperymentalne podejścia do wykorzystania BIRFLU do śledzenia infekcji wirusowej in vivo przy użyciu mysiego modelu zakażenia IAV. Ekspresja BIRFLU Nluc i Wenus korelowała z mianami wirusa. Ponadto BIRFLU pozostał stabilny i kontynuował ekspresję obu genów reporterowych po wydostaniu się z płuc zakażonych myszy. Takie podejście daje naukowcom doskonałą okazję do zbadania IAV w hodowanych komórkach i modelach zwierzęcych, w tym identyfikacji i opracowania nowych alternatyw terapeutycznych w leczeniu zakażeń IAV.
Chociaż BIRFLU został wygenerowany przy użyciu szkieletu PR8, inne rekombinowane IAV wykorzystujące różne typy, podtypy lub szczepy wirusa mogą być generowane przy użyciu tego samego podejścia eksperymentalnego. Podobnie, w niniejszym raporcie opisaliśmy procedury eksperymentalne dotyczące stosowania BIRFLU w mysim modelu IAV. Jednak projekt BIRFLU może być cenną technologią do oceny zakażeń IAV w innych modelach zwierzęcych.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Badania nad wirusem grypy w laboratorium LM-S są częściowo finansowane przez The New York Influenza Center of Excellence (NYICE) (NIH 272201400005C), członka NIAID Centers of Excellence for Influenza Research and Surveillance (CEIRS) kontrakt nr. HHSN272201400005C (NYICE) oraz przez Departament Obrony (DoD) Peer Reviewed Medical Research Program (PRMRP) grant W81XWH-18-1-0460.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 12-dołkowa płytka do hodowli komórkowej | Greiner Bio-one | 665102 | |
| 24-dołkowa płytka do hodowli komórkowej | Greiner Bio-one | 662160 | |
| 6-dołkowa płytka do hodowli komórkowej | Greiner Bio-one | 657160 | |
| 96-dołkowa płytka do hodowli komórkowej | Greiner Bio-one | 655-180 | |
| Adobe Photoshop CS4 | Adobe | To oprogramowanie jest używane w wersji 3.1.10 i 4.4.7 | |
| Roztwór albuminy Bovina (BA) | Sigma-Aldrich | A7409 | Przechowywać w temperaturze 4 & stopni; C |
| Albumina surowicy Bovin (BSA) | Sigma-Aldrich | A9647 | Przechowywać w 4 & stopni; C |
| Naczynia do hodowli komórkowych 100 mm | Greiner Bio-one | 664-160 | |
| System obrazowania ChemiDoc MP | BioRad | Ten instrument jest używany w 4.4.7 | |
| Crystal Violet | Thermo Fisher Scientific | C581-100 | Przechowywać w temperaturze pokojowej |
| Młynki do tkanek Dounce | Thomas Scientific | 7722-7 | |
| Dulbecco' s zmodyfikowany Orzeł" s medium (DMEM) | Corning Cellgro | 15-013-CV | Przechowywać w 4 & stopni; C |
| Płodowa surowica bydlęca (FBS) | Seradigm | 1500-050 | Przechowywać w temperaturze -20 stopni; C |
| 5 do 7 tygodniowe samice myszy BALB/c | National Cancer Institute (NCI) | 555 | |
| Isoflurane | Baxter | 1001936040 | Przechowywać w temperaturze pokojowej |
| IVIS Spectrum | PerkinElmer | 124262 | Ten instrument służy do obrazowania in vivo (4.2 i 4.3) |
| IX81 Zmotoryzowany mikroskop odwrócony | Olympus | Olympus IX81 | |
| Żywy obraz 4.7.2 oprogramowanie | PerkinElmer | Ten instrument służy do obrazowania in vivo (4.2 i 4.3) | |
| Lumicount | Packard | Ten instrument służy do ilościowego określania aktywności lucyferazy (3.2.6) | |
| Komórki nabłonkowe nerki psów Madin-Darby (MDCK) | ATCC | CCL-34 | |
| Przeciwciało monoklonalne anty-NP Wirus grypy A HB-65 | ATCC | H16-L10-4R5 | Przechowywać w temperaturze -20 ° C |
| Odczynnik do oznaczania lucyferazy Nano-Glo | Promega | N1110 | Ten odczynnik służy do pomiaru aktywności Nluc. Przechowywać w temperaturze -20 stopni; C |
| Neutralna buforowana formalina 10% | EMD | 65346-85 | Przechowywać w RT |
| Nunc MicroWell 96-dołkowe mikropłytki | Thermo Fisher Scientific | 269620 | |
| Penicylina/Streptomycyna (PS) 100x | Corning | 30-00-CI | Przechowywać w temperaturze -20 ° C |
| Penicylina/Streptomycyna/L-Glutamina (PSG) 100x | Corning | 30-009-CI | Przechowywać w temperaturze -20 stopni; C |
| Retiga 20000R Fast1394 Kamera | Qimaging Skaner | Retiga 2000R | |
| HP | |||
| Texas Czerwono-sprzężone przeciwciała wtórne anty-myszy -królika | Jackson | 715-075-150 | Przechowywać w temperaturze -20 ° C |
| Trypsyna traktowana tosylsulfonylem fenyloalanylem chlorometylowym (TPCK) | Sigma-Aldrich | T8802 | Przechowywać w temperaturze -20 &; C |
| Triton X-100 | J.T.Baker | X198-07 | Przechowywać w RT |
| Vmax Czytnik płytek kinetycznych | Urządzenia molekularne |
Bibliografia
- Palese, P., Shaw, M. L. Orthomyxoviridae: The Viruses and Their Replication. Fields Virology. Knipe, D. M., Howley, P. M., Griffin, D. E., Lamb, R. A., Martin, M. A. , 5th edition, Lippincott Williams and WIlkins. (2007).
- Martinez-Sobrido, L., Peersen, O., Nogales, A. Temperature Sensitive Mutations in Influenza A Viral Ribonucleoprotein Complex Responsible for the Attenuation of the Live Attenuated Influenza Vaccine. Viruses. 10 (10), (2018).
- Nogales, A., Martinez-Sobrido, L. Reverse Genetics Approaches for the Development of Influenza Vaccines. International Journal of Molecular Sciences. 18 (1), (2016).
- Neumann, G., Noda, T., Kawaoka, Y. Emergence and pandemic potential of swine-origin H1N1 influenza virus. Nature. 459 (7249), 931-939 (2009).
- Louie, J. K., et al. A review of adult mortality due to 2009 pandemic (H1N1) influenza A in California. PLoS One. 6 (4), e18221(2011).
- Barr, I. G., et al. Epidemiological, antigenic and genetic characteristics of seasonal influenza A(H1N1), A(H3N2) and B influenza viruses: basis for the WHO recommendation on the composition of influenza vaccines for use in the 2009-2010 Northern Hemisphere season. Vaccine. 28 (5), 1156-1167 (2010).
- Simonsen, L., et al. Impact of influenza vaccination on seasonal mortality in the US elderly population. A.M.A. archives of internal medicine. 165 (3), 265-272 (2005).
- McLean, H. Q., Peterson, S. H., King, J. P., Meece, J. K., Belongia, E. A. School absenteeism among school-aged children with medically attended acute viral respiratory illness during three influenza seasons, 2012-2013 through 2014-2015. Influenza and Other Respiratory Viruses. 11 (3), 220-229 (2017).
- Principi, N., Esposito, S. Protection of children against influenza: Emerging problems. Human Vaccines and Immunotherapeutics. , 1-8 (2017).
- Falsey, A. R., Treanor, J. J., Tornieporth, N., Capellan, J., Randomized Gorse, G. J. double-blind controlled phase 3 trial comparing the immunogenicity of high-dose and standard-dose influenza vaccine in adults 65 years of age and older. Journal of Infectious Diseases. 200 (2), 172-180 (2009).
- Fuller, J. D., et al. Influenza vaccination of human immunodeficiency virus (HIV)-infected adults: impact on plasma levels of HIV type 1 RNA and determinants of antibody response. Clinical Infectious Diseases. 28 (3), 541-547 (1999).
- Carrat, F., Flahault, A. Influenza vaccine: the challenge of antigenic drift. Vaccine. 25 (39-40), 6852-6862 (2007).
- Doherty, P. C., Kelso, A. Toward a broadly protective influenza vaccine. Journal of Clinical Investigation. 118 (10), 3273-3275 (2008).
- Fiore, A. E., et al. Prevention and control of influenza with vaccines: recommendations of the Advisory Committee on Immunization Practices (ACIP), 2010. MMWR Recommendations and Reports. 59 (RR-8), 1-62 (2010).
- Pica, N., Palese, P. Toward a universal influenza virus vaccine: prospects and challenges. Annual Review of Medicine. 64, 189-202 (2013).
- To, K. K., Chan, J. F., Chen, H., Li, L., Yuen, K. Y. The emergence of influenza A H7N9 in human beings 16 years after influenza A H5N1: a tale of two cities. Lancet Infectious Diseases. 13 (9), 809-821 (2013).
- Baker, S. F., Nogales, A., Santiago, F. W., Topham, D. J., Martinez-Sobrido, L. Competitive detection of influenza neutralizing antibodies using a novel bivalent fluorescence-based microneutralization assay (BiFMA). Vaccine. 33 (30), 3562-3570 (2015).
- He, W., Mullarkey, C. E., Miller, M. S. Measuring the neutralization potency of influenza A virus hemagglutinin stalk/stem-binding antibodies in polyclonal preparations by microneutralization assay. Methods. , (2015).
- Kayali, G., et al. Testing human sera for antibodies against avian influenza viruses: horse RBC hemagglutination inhibition vs. microneutralization assays. Journal of Clinical Virology. 43 (1), 73-78 (2008).
- Stephenson, I., et al. Reproducibility of serologic assays for influenza virus A (H5N1). Emerging Infectious Diseases. 15 (8), 1252-1259 (2009).
- Maher, J. A., DeStefano, J. The ferret: an animal model to study influenza virus. Lab Animal (NY). 33 (9), 50-53 (2004).
- Webster, R. G., Cox, N., Stoehr, K. WHO/CDS/CSR/NCS/2002.5 Rev. 1. , (2002).
- Rodriguez, L., Nogales, A., Martínez-Sobrido, L. Influenza A Virus Studies in a Mouse Model of Infection. Journal of Visualized Experiments. (127), (2017).
- Cox, A., Baker, S. F., Nogales, A., Martínez-Sobrido, L., Dewhurst, S. Development of a mouse-adapted live attenuated influenza virus that permits in vivo analysis of enhancements to the safety of live attenuated influenza virus vaccine. Journal of Virology. 89 (6), 3421-3426 (2015).
- Steel, J., Lowen, A. C., Mubareka, S., Palese, P. Transmission of influenza virus in a mammalian host is increased by PB2 amino acids 627K or 627E/701N. PLoS Pathogens. 5 (1), e1000252(2009).
- Tran, V., Moser, L. A., Poole, D. S., Mehle, A. Highly sensitive real-time in vivo imaging of an influenza reporter virus reveals dynamics of replication and spread. Journal of Virology. 87 (24), 13321-13329 (2013).
- Fukuyama, S., et al. Multi-spectral fluorescent reporter influenza viruses (Color-flu) as powerful tools for in vivo studies. Nature Communications. 6, 6600(2015).
- Manicassamy, B., et al. Analysis of in vivo dynamics of influenza virus infection in mice using a GFP reporter virus. Proceedings of the National Academy of Sciences U S A. 107 (25), 11531-11536 (2010).
- Perez, J. T., Garcia-Sastre, A., Manicassamy, B. Insertion of a GFP reporter gene in influenza virus. Current Protocols in Microbiology. , Chapter 15 Unit 15G 14 (2013).
- Reuther, P., et al. Generation of a variety of stable Influenza A reporter viruses by genetic engineering of the NS gene segment. Scientific Reports. 5, 11346(2015).
- Tran, V., et al. Multi-Modal Imaging with a Toolbox of Influenza A Reporter Viruses. Viruses. 7 (10), 5319-5327 (2015).
- Breen, M., Nogales, A., Baker, S. F., Perez, D. R., Martinez-Sobrido, L. Replication-Competent Influenza A and B Viruses Expressing a Fluorescent Dynamic Timer Protein for In Vitro and In Vivo Studies. PLoS One. 11 (1), e0147723(2016).
- Nogales, A., Baker, S. F., Martinez-Sobrido, L. Replication-competent influenza A viruses expressing a red fluorescent protein. Virology. , 206-216 (2014).
- Nogales, A., et al. Replication-competent fluorescent-expressing influenza B virus. Virus Research. 213, 69-81 (2015).
- Avilov, S. V., et al. Replication-competent influenza A virus that encodes a split-green fluorescent protein-tagged PB2 polymerase subunit allows live-cell imaging of the virus life cycle. Journal of Virology. 86 (3), 1433-1448 (2012).
- Breen, M., Nogales, A., Baker, S. F., Martínez-Sobrido, L. Replication-Competent Influenza A Viruses Expressing Reporter Genes. Viruses. 8 (7), (2016).
- Eckert, N., et al. Influenza A virus encoding secreted Gaussia luciferase as useful tool to analyze viral replication and its inhibition by antiviral compounds and cellular proteins. PLoS One. 9 (5), e97695(2014).
- Karlsson, E. A., et al. Visualizing real-time influenza virus infection, transmission and protection in ferrets. Nature Communications. 6, 6378(2015).
- Czako, R., et al. In Vivo Imaging of Influenza Virus Infection in Immunized Mice. MBio. 8 (3), (2017).
- Harding, A. T., Heaton, B. E., Dumm, R. E., Heaton, N. S. Rationally Designed Influenza Virus Vaccines That Are Antigenically Stable during Growth in Eggs. MBio. 8 (3), (2017).
- DiPiazza, A., et al. Pandemic 2009 H1N1 Influenza Venus reporter virus reveals broad diversity of MHC class II-positive antigen-bearing cells following infection in vivo. Scientific Reports. 7 (1), 10857(2017).
- Yan, D., et al. Replication-Competent Influenza Virus and Respiratory Syncytial Virus Luciferase Reporter Strains Engineered for Co-Infections Identify Antiviral Compounds in Combination Screens. Biochemistry. 54 (36), 5589-5604 (2015).
- Shaner, N. C., Patterson, G. H., Davidson, M. W. Advances in fluorescent protein technology. Journal of Cell Science. 120 (Pt 24), 4247-4260 (2007).
- Shaner, N. C., Steinbach, P. A., Tsien, R. Y. A guide to choosing fluorescent proteins. Nature Methods. 2 (12), 905-909 (2005).
- Kelkar, M., De, A. Bioluminescence based in vivo screening technologies. Current Opinion in Pharmacology. 12 (5), 592-600 (2012).
- Welsh, D. K., Noguchi, T. Cellular bioluminescence imaging. Cold Spring Harbor Protocols. 2012 (8), (2012).
- Zhao, H., et al. Emission spectra of bioluminescent reporters and interaction with mammalian tissue determine the sensitivity of detection in vivo. Journal of Biomedical Optics. 10 (4), 41210(2005).
- Stacer, A. C., et al. NanoLuc reporter for dual luciferase imaging in living animals. Molecular Imaging. 12 (7), 1-13 (2013).
- Vintersten, K., et al. Mouse in red: red fluorescent protein expression in mouse ES cells, embryos, and adult animals. Genesis. 40 (4), 241-246 (2004).
- Stacer, A. C., et al. NanoLuc reporter for dual luciferase imaging in living animals. Mol Imaging. 12 (7), 1-13 (2013).
- Schoggins, J. W., et al. Dengue reporter viruses reveal viral dynamics in interferon receptor-deficient mice and sensitivity to interferon effectors in vitro. Proc Natl Acad Sci U S A. 109 (36), 14610-14615 (2012).
- Pan, W., et al. Visualizing influenza virus infection in living mice. Nat Commun. 4, 2369(2013).
- Heaton, N. S., et al. In vivo bioluminescent imaging of influenza a virus infection and characterization of novel cross-protective monoclonal antibodies. J Virol. 87 (15), 8272-8281 (2013).
- Nogales, A., Baker, S. F., Martínez-Sobrido, L. Replication-competent influenza A viruses expressing a red fluorescent protein. Virology. 476, 206-216 (2015).
- Nogales, A., et al. A novel fluorescent and bioluminescent Bi-Reporter influenza A virus (BIRFLU) to evaluate viral infections. Journal of Virology. , (2019).
- Nogales, A., et al. Influenza A Virus Attenuation by Codon Deoptimization of the NS Gene for Vaccine Development. Journal of Virology. 88 (18), 10525-10540 (2014).
- Nogales, A., DeDiego, M. L., Topham, D. J., Martinez-Sobrido, L. Rearrangement of Influenza Virus Spliced Segments for the Development of Live-Attenuated Vaccines. Journal of Virology. 90 (14), 6291-6302 (2016).
- National Research Council (U.S.). Committee for the Update of the Guide for the Care and Use of Laboratory Animals., Institute for Laboratory Animal Research (U.S.) & National Academies Press (U.S.). Guide for the care and use of laboratory animals. , 8th edn, National Academies Press. (2011).
- Nogales, A., Martinez-Sobrido, L., Chiem, K., Topham, D. J., DeDiego, M. L. Functional Evolution of the 2009 Pandemic H1N1 Influenza Virus NS1 and PA in Humans. Journal of Virology. 92 (19), (2018).
- Hall, M. P., et al. Engineered luciferase reporter from a deep sea shrimp utilizing a novel imidazopyrazinone substrate. ACS Chemical Biology. 7 (11), 1848-1857 (2012).
Przedruki i uprawnienia
