Przedstawiamy zarys protokołu klinicznego do nieinwazyjnej oceny dojrzałości ludzkiego jaja za pomocą mikroskopii światła spolaryzowanego.
Artykuł metodologiczny
Ocena dojrzałości ludzkich komórek jajowych i jej zastosowanie kliniczne
W tym artykule
Podsumowanie
Streszczenie
Optymalny czas docytoplazmatycznego wstrzykiwania plemnika (ICSI) jest poważnym problemem dla programów płodności, ponieważ przedwczesne wprowadzenie plemników zmniejsza kompetencje rozwojowe komórki jajowej. Obecność pierwszego ciała polarnego (PB) wraz z wrzecionem mejotycznym świadczy o zakończeniu dojrzewania oocytu i gotowości komórki jajowej do zapłodnienia. W praktyce klinicznej przyjmuje się, że wszystkie oocyty wykazujące PB są dojrzałymi oocytami metafazy (MII). Jednak wytłaczanie PB poprzedza powstanie bipolarnego wrzeciona MII. Ta asynchroniczność sprawia, że sama obecność PB jest niewiarygodnym markerem dojrzałości oocytów. Nieinwazyjne obrazowanie wrzeciona za pomocą mikroskopii światła spolaryzowanego (PLM) umożliwia szybką i łatwą kontrolę, czy oocyt wyświetlający PB rzeczywiście ponownie zmontował wrzeciono mejotyczne przed ICSI. W tym miejscu przedstawiamy standardowy protokół przeprowadzania oceny dojrzałości ludzkich komórek jajowych w laboratorium klinicznym. Pokazujemy również, jak zoptymalizować czas ICSI w odniesieniu do etapu rozwojowego oocytu, aby zapobiec przedwczesnej iniekcji późno dojrzewających komórek jajowych plemników. Dzięki takiemu podejściu nawet niedojrzałe oocyty wytłaczające PB in vitro mogą być klinicznie wykorzystane. Potwierdzenie, że wrzeciono MII jest obecne przed wstrzyknięciem plemnika i indywidualne dostosowanie czasu ICSI jest szczególnie ważne w cyklach zapłodnienia in vitro (IVF) o złym rokowaniu z małą liczbą oocytów dostępnych do zapłodnienia.
Wprowadzenie
Aby stać się haploidalnym jajeczkiem nadającym się do zapłodnienia, diploidalny oocyt musi wytłoczyć połowę swojej informacji genetycznej do sąsiedniej komórki, zwanej pierwszym ciałem polarnym (PB), i wyrównać chromosomy na równiku wrzeciona dwubiegunowej metafazy II (MII). Podczas gdy PB można wyraźnie zaobserwować za pomocą konwencjonalnej mikroskopii świetlnej, wykrycie materiału genetycznego i struktur cytoszkieletu zazwyczaj wymaga inwazyjnych procedur przygotowawczych, które są niezgodne z dalszym wykorzystaniem oocytu w leczeniu niepłodności. Stąd w praktyce klinicznej obecność PB jest uważana za cechę charakterystyczną dojrzałości oocytów. Jednak obrazowanie na żywo dynamiki mikrotubul i chromosomów podczas dojrzewania ludzkich oocytów ujawniło, że PB staje się widoczny na kilka godzin przed złożeniem dwubiegunowego wrzeciona MII i wyrównaniem chromosomów1. Niemniej jednak w świetle przechodzącym zatrzymane przez MII komórki jajowe są nie do odróżnienia od oocytów, które właśnie weszły w proces segregacji chromosomów. Tak więc kohorta oocytów, sklasyfikowana jako oocyty MII tylko na podstawie obecności PB, może zawierać późno dojrzewające oocyty, które nie zakończyły jeszcze swojego rozwoju, a zatem nie są gotowe do zapłodnienia.
Opóźnienie dojrzewania oocytów prawdopodobnie wpłynie na populację osób słabo reagujących z małą liczbą oocytów MII i wysokim odsetkiem niedojrzałych oocytów zebranych nieoczekiwanie w cyklach stymulowanych2. In vivo tylko jedna, najlepszej jakości komórka jajowa osiąga dojrzałość i ulega owulacji. W cyklach zapłodnienia in vitro (IVF) kontrolowana hiperstymulacja jajników jest stosowana do rekrutacji wielu oocytów do dojrzewania. Wyrzut gonadotropin powoduje wznowienie programu mejotycznego, a komórki progenitorowe jaj powinny osiągnąć etap zatrzymania MII w ciągu 36 godzin3. Jednak oocyty pobrane z pęcherzyków przedowulacyjnych często stanowią asortyment oocytów MII i niedojrzałych oocytów PB, zarówno w metafazie I (MI), jak i w stadium pęcherzyka rozrodczego (GV) (Ryc. 1). Tylko oocyty MII są poddawane docytoplazmatycznemu wstrzyknięciu plemnika (ICSI), podczas gdy niedojrzałe oocyty są zwykle odrzucane. Jednak podczas hodowli in vitro powszechnie obserwuje się, że oocyty MI wytłaczają PB in vitro. Pomimo ich ogólnej niższości, późno dojrzewające oocyty, które spontanicznie zakończyły pierwszy podział mejotyczny podczas nocnej hodowli, zostały z powodzeniem wykorzystane jako ostatnie oocyty zasobów, a żywe urodzenia zostały zgłoszone4,5,6,7,8. W związku z tym przedwczesne wstrzyknięcie nasienia może być główną przyczyną słabych wyników rozwojowych późno dojrzewających oocytów zgłoszonych w poprzednich badaniach9,10,11.
Mikroskopia światła spolaryzowanego (PLM) w połączeniu z oprogramowaniem do przetwarzania obrazu pozwala na nieinwazyjną wizualizację wrzeciona mejotycznego w żywym oocycie. Podwójne odbicie jest generowane przez oddziaływanie spolaryzowanej wiązki światła z wysoce uporządkowanym zespołem mikrotubul budujących wrzeciono bipolarne. Ponieważ światło spolaryzowane ma normalną intensywność, technika ta może być bezpiecznie stosowana w warunkach klinicznych do oglądania dynamiki aparatu podziałowego11,12,13,14. Obecność dwójłomności wrzeciona MII w oocycie została zidentyfikowana jako marker kompetencji rozwojowej komórki jajowej9,15,16,17,18,19,20,21,22,23. W związku z tym zasugerowano, że nieinwazyjne obrazowanie wrzeciona mejotycznego może być wykorzystane do kontroli jakości jaj w praktyce klinicznej11,14,20.
Ponieważ rozwiązana została oś czasu dla dynamiki mikrotubularny podczas mejozy oocytów1, obserwowany wzorzec PLM może być lepiej powiązany z przebiegiem czasowym przejścia MI do MII. Krótko po emisji PB powstające wrzeciono MII staje się niewykrywalne przez PLM. Jeśli jednak oocyty są trzymane w hodowli, sygnał dwójłomności może pojawić się później, gdy dwubiegunowe wrzeciono MII ponownie się złoży9,10,11. Tak więc w oocytach wytłaczających PB in vitro brak wrzeciona może być tylko tymczasowy, odpowiadający fizjologicznemu przejściu późno dojrzewającego oocytu ze stadium MI do MII. Jeśli sygnał wrzeciona MII jest niewykrywalny, wstrzyknięcie plemnika można odroczyć do późniejszego punktu czasowego, zapewniając dodatkowy czas na uformowanie wrzeciona MII. Wspomagana przez PLM optymalizacja czasu ICSI maksymalizuje szansę na kliniczne wykorzystanie późno dojrzewających oocytów i ma znaczenie dla pacjentów ze złym rokowaniem9.
Poniżej przedstawiamy krok po kroku protokół, jak przeprowadzić nieinwazyjne obrazowanie wrzeciona w ludzkich oocytach. Pokazujemy również, w jaki sposób można zastosować PLM, aby uniknąć ryzyka przedwczesnego zapłodnienia późno dojrzewających oocytów.
Protokół
Ten protokół opisuje procedurę kliniczną, która jest 'dodatkiem' do standardowego leczenia in vitro. Powinien być wykonywany przez doświadczony personel zgodnie z dobrą praktyką laboratoryjną i wytycznymi klinicznymi24,25. Zaleca się uzyskanie pisemnej świadomej zgody od uprawnionych pacjentów. Protokół ten został zatwierdzony przez instytucjonalną Komisję ds. Etyki.
1. Pobieranie jaj i denudacja
- Wywołaj stymulację jajników za pomocą konwencjonalnych protokołów stymulacji3. Dawkę należy dostosować do indywidualnej odpowiedzi na leczenie. Gdy dwa lub więcej pęcherzyków, uwidocznionych za pomocą badania ultrasonograficznego, osiągnie średnicę 18 mm, indukuj dojrzewanie oocytów za pomocą 250 μg ludzkiej gonadotropiny kosmówkowej (hCG). Zaplanuj pobranie oocytów (OPU) po 35-36 godzinach od wstrzyknięcia hCG.
- Zebrać pobrane kompleksy wzgórko-oocyty (COC) w podłożu niezależnym od CO2 (tabela materiałów). Po krótkim okresie inkubacji (10-15 min) w inkubatorze niezależnym od CO2 należy na krótko (do 30 s) wystawić zebrane COC na działanie roztworu hialuronidazy (tabela materiałów). Pod mikroskopem stereoskopowym mechanicznie usuń komórki wzgórka-korona, delikatnie pipetując COC za pomocą końcówki filtrującej o pojemności 200 μl.
- Za pomocą mikropipet do denudacji o stopniowo zmniejszającej się średnicy (200 μm, 180 μm i 150 μm) delikatnie oderwać oocyty od pozostałych komórek pęcherzykowych i przemyć oocyty 3x w pożywce manipulacyjnej.
- Oceń liczbę i status rozwojowy ogołoconych oocytów w zależności od obecności lub braku jądra i pierwszego PB (ryc. 1).
- Sprawdź kryteria włączenia do egzaminu PLM. Przeprowadzić ocenę dojrzałości komórki jajowej, jeśli wystąpi (1) nieoczekiwana słaba reakcja na konwencjonalną stymulację z mniej niż 6 oocytami MII pobranymi w OPU oraz (2) historia wcześniejszego niepowodzenia zapłodnienia lub niedojrzałości oocytów.
- Umieść oocyty GV, MI i MII w oddzielnych studzienkach w naczyniu do zapłodnienia in vitro, z których każdy zawiera 500 μl wstępnie zrównoważonej pożywki hodowlanej zależnej od CO2 (tabela materiałów) pokrytej olejem mineralnym (tabela materiałów).
- Inkubować przez dodatkowe 3-4 godziny w temperaturze 37 °C w wilgotnej atmosferze 5%O2 i 6% CO2 .
2. Przygotowanie do egzaminu PLM i późniejszego ICSI
UWAGA: Dostarczony tutaj protokół opisuje ocenę PLM przeprowadzoną przy użyciu systemu OCTAX Polar AIDE (Tabela Materiałów). Alternatywnie można zastosować inne dostępne na rynku systemy widoku wrzeciona.
- Przygotuj płytki do hodowli zarodków.
- W zależności od liczby oocytów do zbadania (suma oocytów MII i oocytów MI wytłaczających PB w okresie preinkubacji), należy przygotować płytkę 4-dołkową lub 12-dołkową, napełnić każdą studzienkę odpowiednio 500 μl lub 30 μl pożywki hodowlanej i zalać wcześniej zbilansowanym olejem mineralnym.
- Upewnij się, że zarówno pożywka hodowlana, jak i olej mineralny zostały zrównoważone w inkubatorze CO2 przez noc. Przygotowane danie należy przechowywać w inkubatorze zależnym od CO2 przez co najmniej 2 godziny. W razie potrzeby ponumeruj studzienki, aby śledzić losy rozwojowe poszczególnych oocytów.
- Przygotuj danie ICSI.
- Użyj przypisanego plastikowego naczynia i przygotuj 5 μl kropli wstępnie podgrzanego podłoża dla każdego oocytu wyświetlającego PB i jedną dodatkową kroplę do mycia igły. Przygotować dodatkową kroplę roztworu poliwinylopirolidonu (PVP) (tabela materiałów) do unieruchomienia plemników przed ICSI (dodać plemniki tuż przed ICSI) i nałożyć na wstępnie podgrzany olej mineralny.
- Przygotowane naczynie ICSI należy przechowywać w inkubatorze niezależnym od emisjiCO2 przez co najmniej 20 minut. W razie potrzeby ponumeruj studzienki, aby śledzić oocyty po ICSI.
- Przygotuj naczynie do badania PLM.
- Użyj przypisanego naczynia ze szklanym dnem i przygotuj 5 μl kropelek wstępnie podgrzanej pożywki dla każdego oocytu wyświetlającego PB. Nakładka z podgrzanym olejem mineralnym.
- Przechowywać naczynie w inkubatorze niezależnym od emisjiCO2 przez co najmniej 20 minut. W razie potrzeby ponumeruj kropelki, aby śledzić oocyty po badaniu PLM.
- Ustaw mikroskop w gotowości do badania PLM.
- Włącz podgrzewany stage w odwróconym mikroskopie z dużym wyprzedzeniem, aby uzyskać odpowiednią temperaturę ogrzewania. Upewnij się, że ustawienia są dokładnie dostosowane, aby utrzymać 37 °C w kropelkach pożywki manipulacyjnej w naczyniu PLM/ICSI podczas procedur mikromanipulacji.
- Umieścić sterylny uchwyt i igłę ICSI w uchwytach do mikrowstrzyknięć i ustawić ostrość. Alternatywnie użyj igły do wylęgu.
- Wybierz odpowiedni obiektyw (najbardziej odpowiednie są 20x i 25x) i upewnij się, że kondensor znajduje się w pozycji jasnego pola.
- Włóż zielony filtr interferencyjny (światło zmieni kolor na zielony) i ustaw suwak analizy ciekłokrystalicznej w pozycji roboczej.
- Ustaw migawkę na ~50% i wyreguluj polaryzator kołowy, aby zmniejszyć szumy tła.
- Przygotuj komputer do badania PLM.
- Uruchom oprogramowanie do obrazowania.
- Wybierz pozycję Wideo | Źródło wideo | polarAIDE w menu wideo na górnym pasku menu.
- Przełącz się na wideo na żywo, przechodząc do strony Wideo i aktywuj analizę wrzeciona i strefy, naciskając ikonę (Rysunek uzupełniający 1) na pasku narzędzi wideo.
- Wybierz tryb wyświetlania dla dynamicznego skalowania podczas obrazowania wrzeciona: (1) czerwony (dwójłomność)/zielony (tło) widok połączony lub (2) widok biały (dwójłomność)/i (tło). Tryb dynamicznego oceniania służy do automatycznego oceniania osłony przejrzystej.
3. Badanie dojrzałości jaj
- Po okresie preinkubacji (3−4 h) należy wykonać badanie PLM ujawniające stan dojrzałości oocytów w standardowym czasie ICSI (39−40 h po wyzwoleniu hCG).
- Przenieś wszystkie oocyty do pojedynczych kropelek na szalce PLM i umieść ją pod mikroskopem odwróconym przygotowanym do obrazowania wrzecionowego. Pamiętaj, aby przed rozpoczęciem badania zdjąć plastikową pokrywkę z naczynia ze szklanym dnem.
- Ustaw ostrość na pierwszym oocycie. Jeśli trudno jest wyszukać komórkę w zielonym świetle, tymczasowo wyciągnij zielony filtr. Upewnij się, że zielony filtr jest włożony przed analizą.
- Obserwuj wykryty obraz dwójłomności oocytów (czerwony/pomarańczowy na zielonym tle), który jest przetwarzany komputerowo i wyświetlany w czasie rzeczywistym na ekranie komputera. Pamiętaj, że sygnał nie jest widoczny w okularze.
- Jeśli pojawi się komunikat informujący, że ekspozycja na światło jest zbyt niska/wysoka, dostosuj jasność do odpowiedniej intensywności za pomocą pokrętła natężenia światła mikroskopu.
- Użyj przytrzymywania i igły ICSI, aby obrócić oocyt tak, aby PB znajdował się w pozycji godziny 12 i skup się na PB.
- Jeśli dwójłomność wrzeciona nie jest widoczna na pierwszy rzut oka w pobliżu PB, delikatnie obróć oocyt wokół każdej osi, lekko dotykając osłonki przejrzystej, aby zapewnić wyrównanie spolaryzowanego światła z włóknami wrzeciona matrycy (Dodatkowe wideo). Zadeklaruj brak wrzeciona MII, o ile oocyt nie pokazuje sygnału wrzeciona pomimo rygorystycznego obrotu.
- Na podstawie zaobserwowanego wzorca dwójłomności sklasyfikuj oocyty do następujących kategorii (Ryc. 2): (A) oocyty z jasnym sygnałem dwubiegunowego wrzeciona MII w kształcie beczki z wyraźnie wytyczonymi granicami i równomiernym rozkładem dwójłomności; (B) oocyty z dysmorficznym, apolarnym i półprzezroczystym wrzecionem MII o nieregularnych granicach i nierównomiernym rozkładzie sygnału; (C) oocyty bez wykrywalnej dwójłomności wrzeciona MII w ooplazmie; (D) oocyty anafazy I/telofazy I, wykazujące most mikrorurkowy (nić łącząca między pierwszym PB a oocytem) zamiast wrzeciona MII.
UWAGA: Oocyty z wykrywalnym sygnałem wrzeciona MII (stopień A lub B) nadają się do natychmiastowego ICSI. - Zrób migawkę (F9) lub nagraj wideo na potrzeby raportu i/lub późniejszej analizy obrazu. Zachowaj dokumentację wzorca obrazu, aby zmniejszyć subiektywność operatora.
- Przejdź do pozycji następnego oocytu i powtórz kroki 3,6−3,9.
4. Optymalizacja taktowania ICSI
- Przenieś wszystkie wrzecionowato-dodatnie oocyty (stopień A lub B, krok 3.8) do szalki ICSI i poddaj je ICSI zgodnie ze standardowymi protokołami24,25.
- Jeśli oocyty nie wykazują wykrywalnego sygnału wrzeciona MII, umieść szalkę PLM w inkubatorze niezależnym od CO2 i przesuń ICSI na późniejszy czas.
- Wykonaj ponowny test PLM ~2−3 h później, wykonując kroki 3.3−3.9. Jeśli niektóre oocyty nadal nie mają wrzeciona MII, należy dodatkowo opóźnić ICSI o dodatkowe 1-2 godziny.
- Przenieś wszystkie oocyty do szalki ICSI i wstrzyknij je zgodnie ze standardowymi protokołami24. Jeśli czasza PLM jest kompatybilna z kątem zgięcia igły do mikroiniekcji, należy wykonać ICSI natychmiast w czaszy PLM po przełączeniu w tryb jasnego pola.
- Po ICSI przenieść oocyty na przygotowane płytki w celu hodowli zarodków i hodowli do stadium blastocysty.
Wyniki
Mikroskopia polaryzacyjna umożliwia natychmiastową ocenę, czy oocyt zakończył dojrzewanie jądra i uformował wrzeciono MII przed ICSI. Dzięki nieinwazyjnemu charakterowi może być ona bezpiecznie stosowana w warunkach klinicznych do oceny gotowości ludzkiej komórki jajowej do zapłodnienia1,12,13,14. Oocyty z widocznym wrzecionem wykazują większe prawdopodobieństwo rozwoju w żywotne embriony niż oocyty pozbawione wrzeciona9,15,16,17,18,19,20,21,2,23. Ponadto oocyty z wyraźnym wrzecionem bipolarnym wydają się mieć wyższą zdolność rozwojową niż oocyty z wrzecionami dysmorficznymi9,21,2. Podsumowując, obrazowanie wrzecion może służyć jako narzędzie do identyfikacji oocytów o największym potencjale do udanego zapłodnienia, rozwoju przedimplantacyjnego i wsparcia pełnozakresowej ciąży9,15,16,17,18,19,20,21,2,23.
Zgłaszana częstość występowania wrzeciona jest zmienna (4−97%), co odzwierciedla różnorodność badanych populacji9,15,16,17,18,19,20,21,2,23,26,27,28. Oocytu dojrzewające in vivo u pacjentek z prawidłową odpowiedzią zazwyczaj wykazują bipolarny wrzecionowy układ MII 40 h po wyzwalaniu hCG9,18,27,29. Jednak u pacjentek z powolną odpowiedzią pula oocytów pobranych z pęcherzyków przedowulacyjnych jest obarczona opóźnieniem dojrzewania9,27. W takim przypadku należy przeprowadzić obrazowanie wrzeciona, aby odróżnić oocyty zatrzymane w stadium MII od tych przechodzących istotną transformację dojrzewania (Rycina 3). Zalecamy usunięcie komórek pęcherzykowych natychmiast po pobraniu oraz inkubację oocytów w stadiach MI i MII w oddzielnych studzienkach, aby móc odróżnić oocyty dojrzewające in vivo od oocytów dojrzewających późno, które wydalają pierwsze ciałko polarne (PB) in vitro tuż przed ICSI. W przypadku, gdy denudacja jest przeprowadzana bezpośrednio przed ICSI, te dwie populacje oocytów są nierozróżnialne na podstawie wyglądu PB.
Zmiany wzorca PLM specyficzne dla danej fazy należy interpretować w kontekście wiedzy o dynamice wrzeciona podczas dojrzewania meiotycznego. Podczas interkinezy aparat podziałowy przechodzi rozległą reorganizację strukturalną, a sygnał PLM przejściowo znika1,9,10,1. Zatem w oocytach o opóźnionym rozwoju, które wydalają PB in vitro, brak sygnału wrzeciona MII nie musikoniecznie odzwierciedlać zaburzeń komórkowych, lecz może wskazywać na przejście oocytu z etapu MI do etapu MII (Ryc. 3). Jeśli spermatozoid zostanie wstrzyknięty w niefizjologicznym punkcie czasowym, potencjał rozwojowy komórki jajowej zostaje upośledzony. Odroczenie ICSI daje oocytom dojrzewającym później więcej czasu na sformowanie wrzeciona MII, którego obecność wiąże się z lepszymi wynikami klinicznymi9,10,1. W badaniu klinicznym obejmującym pacjentki z niską lub słabą odpowiedzią, prawie 60% oocytów początkowo negatywnych pod kątem wrzeciona wykształciło sygnał wrzeciona przed ponowną oceną PLM po około 2 h9. W zależności od etapu rozwoju i ogólnej kondycji późno dojrzewających oocytów, pojawienie się wrzeciona MII po wydaleniu PB trwa zazwyczaj 2−6 h (obserwacja niepublikowana). Oocyty wykazujące mostek mikrotubulowy (anafaza/telofaza, stopień D) podczas pierwszej oceny PLM wymagają więcej czasu na wykształcenie sygnału wrzeciona MII niż oocyty bez widocznego wrzeciona (wrzeciona formujące się, stopień C). Indywidualne dostosowanie czasu ICSI do etapu rozwojowego komórki jajowej zapobiega przedwczesnej aktywacji oocytu i skutkuje poprawą wskaźnika zapłodnienia oraz pomyślnym rozwojem zarodka9.
Chociaż oocyty dojrzewające późno, które wydalają ciało polarne (PB) in vitro, zazwyczaj wykazują niższą zdolność rozwojową niż oocyty dojrzewające in vivo, wskaźnik rozwoju zarodkowego jest akceptowalny, jeśli uda im się utworzyć wykrywalne wrzeciono przed opóźnioną ICSI (wskaźnik blastulacji wynosi 41,32%)9. Stosując to podejście, nawet niedojrzałe oocyty, które zazwyczaj są odrzucane w leczeniu niepłodności, mogą zostać wykorzystane klinicznie, doprowadzić do powstania zarodków nadających się do transferu i zaowocować ciążami pełnoterminowymi. Ocena stopnia dojrzałości każdego pojedynczego oocytu jest szczególnie korzystna w cyklach o złym rokowaniu, w których uzyskano niewielką liczbę oocytów w stadium MII i/lub po przeprowadzeniu ratunkowego dojrzewania in vitro niedojrzałych oocytów9.
Poza oceną dojrzałości komórki jajowej, zaleca się również obrazowanie wrzeciona przed biopsją ciała pierwszego polosomu (PB), aby uniknąć zniszczenia wrzeciona w oocytach znajdujących się w anafazie I/telofazie. W embriologii eksperymentalnej wizualizacja wrzeciona meiotycznego jest stosowana podczas enukleacji komórki jajowej i/lub procedury transferu wrzeciona13.

Rycina 1: Dojrzewanie ludzkiego oocytu. Oocyty dojrzałe in vivo (MII) wykazują obecność pierwszego ciałka polarnego (PB) w momencie pobrania. Oocyty niedojrzałe (GV, MI) mogą spontanicznie ukończyć dojrzewanie in vitro. Pasek skali = 20 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
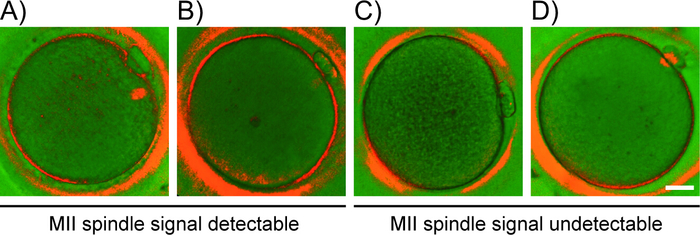
Rycina 2: Klasyfikacja oocytów na podstawie wzorca wykrytego metodą PLM. Reprezentatywne przykłady stopni oceny oocytów (A-D) na podstawie wyglądu sygnału wrzeciona. Wzór wykryty przez PLM: (A) wyraźny sygnał wrzeciona dwubiegunowego, (B) półprzezroczyste apolarne wrzeciono podziałowe w stadium MII, (C) brak wykrywalnego wrzeciona, i (D) mostek mikrotubularny. Pasek skali = 20 µm. Aby wyświetlić większą wersję tego rysunku, kliknij tutaj.

Rysunek 3: Etapy przejścia z fazy MI do MII podczas dojrzewania oocytów. Przedstawiono wygląd oocytów w świetle jasnym (górny rząd), wraz z sygnałem fluorescencyjnym chromosomów (cyjan) i mikrotubul (magenta) (środkowy rząd) oraz w świetle spolaryzowanym (dolny rząd). Każdy oocyt został najpierw poddany badaniu PLM, a następnie natychmiast utrwalony. Utrwalone oocyty zostały poddane (immuno)znakowaniu Hoechstem (DNA) oraz przeciwciałem anty-α-tubulinowym (mikrotubule). Żółta strzałka wskazuje obecność PB, a biała strzałka zaznacza położenie dwójłomnych mikrotubul. Pasek skali = 20 µmRysunek zmodyfikowano na podstawie opracowania Holubcová et al., JARG 20199. Prosimy kliknąć tutaj, aby wyświetlić większą wersję tego rysunku.

Rycina 4: Korelacja organizacji chromosomów i mikrotubul z wzorem dwójłomności wykrytym za pomocą mikroskopii w świetle spolaryzowanym. Przedstawiono wygląd oocytów w polu jasnym w połączeniu z sygnałem fluorescencyjnym dla chromosomów (cyjan) i mikrotubul (magenta) (górny rząd) oraz w świetle spolaryzowanym (dolny rząd). Każdy oocyt utrwalono niezwłocznie po badaniu metodą PLM. Wybarwiono DNA (Hoechst) oraz mikrotubule (α-tubulina).A-C) oocyty z wrzecionem wykrywalnym za pomocą PLM, lecz z nieprawidłowo ułożonymi chromosomami (A, B) lub słabo zogniskowane bieguny wrzeciona (C); (D-F) nieprawidłowe oocyty bez wykrywalnego w PLM wrzeciona MII, wykazujące niedorozwinięte (D), niepolarny (E) lub brak wrzeciona (F). Biała strzałka wskazuje położenie dwójłomnych mikrotubul, a gwiazdka (*) wskazuje położenie zdekondensowanej chromatyny. Pasek skali = 20 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rysunek 5: Struktury dwójłomności w ludzkich oocytach. Reprezentatywne przykłady (A-D) struktury dwójłomne wykryte za pomocą PLM w ludzkich oocytach. ZP = błona przejrzysta; PM = błona komórkowa (oolema); RB = ciała refrakcyjne, wakuole. Biała strzałka: wrzeciono mejotyczne w różnych etapach dojrzewania. (E) nieprawidłowe ustawienie wrzeciona MII względem ciałka polarnego (PB). (F) Odłączenie wrzeciona od błony komórkowej. Pasek skali = 20 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Rycina dodatkowa 1: Układ pulpitu oprogramowania do analizy obrazu. Prosimy o kliknięcie tutaj, aby pobrać ten plik.

Film uzupełniający: Procedura badania za pomocą PLM. Konieczna jest rotacja oocytu w celu wykluczenia obecności wrzeciona podziałowego (strzałka). Pasek skali = 20 µm. Proszę kliknąć tutaj, aby pobrać ten plik.
Dyskusja
Wrzeciono mejotyczne acentrosomalne w ludzkich oocytach jest bardzo dynamiczne i ma delikatną strukturę1. W nieoptymalnych warunkach włókna mikrotubul szybko ulegają depolimeryzacji, a wrzeciono mejotyczne demontujesię 30,31,32,33. Dlatego niezwykle ważne jest zapewnienie, że hodowla oocytów i warunki mikromanipulacji, a mianowicie temperatura i pH, mieszczą się w optymalnym zakresie. Aby zminimalizować ryzyko przerwania wrzeciona, oocyty powinny być przechowywane w środowisku o kontrolowanej temperaturze, utrzymującym temperaturę 37 ± 0,5 °C w pożywce oocytowej. Bezwzględnie wymagane jest korzystanie z mikroskopów i zestawów do mikroiniekcji wyposażonych w podgrzewany stolik. Wszystkie manipulacje oocytami poza inkubatorem muszą być przeprowadzane w pożywkach buforowanych HEPES/MOPS, aby uniknąć wahań pH. Aby uniknąć potencjalnych negatywnych skutków nadmiernego oddawania komórek jajowych w warunkach otoczenia, łączny czas badania PLM nie powinien przekraczać 10 minut. Oocyty muszą być analizowane na szklanym dnie naczynia ze zdjętą plastikową pokrywką, ponieważ umieszczenie standardowego tworzywa sztucznego na ścieżce wiązki utrudnia analizę obrazu. Ponieważ naczynia z dnem plastikowym i szklanym mają różne właściwości termiczne, temperaturę należy sprawdzać bezpośrednio w kropelkach pożywki w naczyniu do badań.
Oprócz warunków laboratoryjnych, na dokładność badania PLM mogą mieć wpływ różnice proceduralne i umiejętności mikromanipulacji operatora. Tylko wysoce zmontowane wrzeciona bipolarne mogą być nieinwazyjnie wizualizowane. Obserwowany sygnał jest proporcjonalny do stopnia organizacji strukturalnej wrzeciona. Powstające, niebiegunowe, poluzowane lub nieuporządkowane wrzeciona wykazują tylko niewyraźną dwójłomność lub nie wykazują jej wcale (ryc. 3 i ryc. 4). Poza tym niedoskonałe wyrównanie światła spolaryzowanego z układami mikrotubul powoduje jedynie półprzezroczystość i źle zdefiniowaną dwójłomność, pomimo rzeczywistej obecności dobrze rozwiniętego wrzeciona dwubiegunowego (ryc. 4). Jeśli sygnał wrzeciona nie jest odpowiednio zorientowany, może zostać łatwo przeoczony, a dojrzałość oocytów błędnie zdiagnozowana (Dodatkowe wideo). Aby uzyskać optymalne obrazowanie wrzeciona, oocyt musi być odpowiednio obrócony wokół każdej osi. Ponieważ dwójłomność nie jest widoczna w okularach, operator musi obserwować ekran komputera podczas wykonywania obrotu oocytu. Wcześniejsze doświadczenia w mikromanipulacji i szkolenie w obrazowaniu wrzecionowym w nadmiarze dojrzałych komórek jajowych in vitro są pożądane przed przejściem do zastosowania klinicznego.
Oprócz wrzeciona, wzgórki otaczające oocyt, oolema, wewnętrzna warstwa osłonki przejrzystej i niektóre struktury cytoplazmatyczne (np. ciała ogniotrwałe, wakuole) wykazują dwójłomność (ryc. 5A-D). O ile nie zostaną dokładnie usunięte z oocytu przed obrazowaniem, ściśle przylegające komórki pęcherzykowe wytwarzają szum tła i utrudniają wykrywanie wrzeciona mejotycznego. Uważaj, aby nie pomylić dużego ogniotrwałego korpusu z wrzecionem. Wiele inkluzji cytoplazmatycznych znajdujących się w cytoplazmie wykazuje wysoką jasność, która ostro kontrastuje z ciemnym tłem. Z drugiej strony wrzeciono mejotyczne wykazuje tylko umiarkowany sygnał, nieostre granice i zazwyczaj przyczepia się do oolemy poniżej lub w sąsiedztwie pierwszego PB. Czasami badanie PLM ujawnia duże odchylenie wrzeciona od jego standardowego położenia (rysunek 5E,F). W przypadku dużej niewspółosiowości między aparatem dzielącym a PB, PLM pomaga zorientować oocyt, aby uniknąć ryzyka uszkodzenia wrzeciona podczas mikroiniekcji. Wydaje się, że względne położenie wrzeciona w oocycie nie wpływa na potencjał rozwojowy powstałych zarodków17,34. Jednak gdy wrzeciono konkurencyjnie odczepia się od oolemy, występują nieprawidłowości zapłodnienia. Co ciekawe, niektóre oocyty o niskiej jakości ulegają dekondensacji chromatyny natychmiast po ekstruzji PB zamiast rozpoczynać zarodkowanie mikrotubul (Figura 4F). Stosując konwencjonalną mikroskopię świetlną i PB jako jedyny marker dojrzałości oocytów, takie subkompetentne oocyty zostałyby uznane za nadające się do zapłodnienia. W ten sposób, oprócz rutynowej oceny morfologicznej, obrazowanie wrzeciona dostarcza ważnych informacji o dojrzałości jaja i może służyć jako pośredni marker jego jakości.
Częstość występowania wrzecionowatych oocytów MII prawdopodobnie zależy od cech badanej populacji (np. tła genetycznego, stanu zdrowia, wieku matki). Ponadto odsetek oocytów opóźnionych rozwojowo w kohorcie będzie miał wpływ na rzeczywistą liczbę wykrytych oocytów wrzecionowato-ujemnych 9,27. Wizualizacja wrzeciona mejotycznego umożliwia jednoznaczną identyfikację komórek jajowych zdolnych do zapłodnienia zatrzymanych w stadium MII. Co więcej, drugie badanie w późniejszym czasie może ujawnić, czy wrzecionowato-ujemny oocyt jest nieprawidłowy, czy też dopiero niedawno przeszedł przez przejście MI/MII 9,10,11. Jeśli pozwoli się im rozwinąć wrzeciono przed ICSI, nawet niedojrzałe oocyty, które są rutynowo wyrzucane, mogą produkować zdolne do życia zarodki. W cyklach, w których dostępnych jest bardzo mało oocytów do zapłodnienia, ICSI oocytów wytłaczających PB w precyzyjnym czasie może służyć jako strategia ratunkowa i alternatywa dla anulowania cyklu.
Niemniej jednak wydłużenie czasu preinkubacji nie powinno być uogólniane na wszystkie oocyty. Dojrzałe in vivo oocyty od normalnych reagujących zazwyczaj wykazują wrzeciono MII 9,20,21,27. W tym przypadku szansa na udane obrazowanie wrzeciona zmniejsza się z czasem w wyniku poowulacyjnego starzenia in vitro35. Jeśli to możliwe, ICSI należy wykonać w dniu pobrania i nie powinno to trwać dłużej niż 9 godzin (45 godzin po hCG), czyli w okresie związanym ze spadkiem jakości zarodków36,37. Oocyty wykazujące wyraźne wrzeciona dwubiegunowe powinny zostać niezwłocznie poddane ICSI. Podsumowując, u pacjentów ze złymi rokowaniami warto przeprowadzić zindywidualizowaną optymalizację czasu ICSI, aby wykluczyć jakiekolwiek ryzyko przedwczesnej iniekcji nasienia. Jest to jednak niepotrzebne, zbyt czasochłonne i pracochłonne, aby można je było wykonać we wszystkich cyklach zapłodnienia in vitro.
Analiza PLM ujawnia, czy oocyt osiągnął stadium MII. Jednak nieinwazyjna wizualizacja wrzeciona mejotycznego nie dostarcza żadnych informacji na temat organizacji chromosomów. Może wystąpić poważna niewspółosiowość chromosomów i / lub związane z wiekiem matki rozszczepienie chromatydy w oocytach z wrzecionem dwubiegunowym (ryc. 5). Różne inne czynniki mają znaczący wpływ na sukces reprodukcyjny (np. czynnik plemników, mitochondria, aktywacja genomu embrionalnego, nieregularne rozszczepienie, epigenetyka, endometrium, odporność matki). W związku z tym wykrycie wrzeciona MII samo w sobie nie gwarantuje pozytywnego wyniku klinicznego procedury IVF.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Chcielibyśmy podziękować laboratorium embriologicznemu Reprofit International. Wyrażamy również uznanie dla głównej placówki CELLIM z CEITEC wspieranej przez MEYS CR (LM2015062 Czech-Bioimaging) za wsparcie w uzyskaniu prezentowanych tutaj danych z obrazowania immunofluorescencyjnego.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Ciągła pojedyncza hodowla w komplecie z albuminą surowicy ludzkiej | Irvine Scientific | 90164 | jednoetapowa pożywka pożywka hodowlana do hodowli zarodków |
| Mikropipeta do usuwania nagości 150 i mikro; m | Microtech IVF | 005-150C | |
| Mikropipeta do usuwania nagości 180 & micro; m | Microtech IVF | 005-180B | nadaje się do transferu oocytów między naczyniami |
| Mikropipeta Denuding 200 µ m | Microtech IVF | 005-250-A | nadaje się do transferu oocytów między naczyniami |
| FluoroDish | World Precision Instruments | FD 5040-100 | naczynie ze szklanym dnem |
| (alternatywnie: WillCo-dish GWST-5040 WillCo Wells) | |||
| Mikropipeta trzymająca | Microtech | 001-120-30 | sterylne szklane mikroigły |
| Roztwór hialuronidazy | Irvine Scientific | 90101 | do denudacji oocytów |
| Mikropipeta ICSI | Microtech | 002-5-30 | sterylne szklane mikroigły |
| Naczynie do hodowli mikrokropelek | Vitrolife | 16003 | 12-dołkowa płytka do hodowli zarodków |
| Uniwersalna manipulacyjna (MHM) z gentamycyną | Irvine Scientific | 90163 | pożywka manipulacyjna, buforowana MOPS/HEPES |
| Nikon Eclipse TE 2000-U | Mikroskop odwrócony Nikon | ||
| Szalka Petriego Nunc IVF, 60 mm | Termo Fisher Scientific | 150270 | plastikowa miska ICSI |
| Nunc 4-dołkowa miska IVF bez obróbki | Thermo Fisher Scientific | 179830 | 4-dołkowa płytka do hodowli zarodków |
| Zintegrowany system PLM | OCTAX polarAide | MTG | |
| Olej do hodowli zarodków | Irvine Scientific | 9305 | olej do nakładki |
| Poliwinylopirolidon | Irvine Scientific | 90123 | do immobilizacji plemników przed ICSI |
Bibliografia
- Holubcova, Z., Blayney, M., Elder, K., Schuh, M. Human oocytes. Error-prone chromosome-mediated spindle assembly favors chromosome segregation defects in human oocytes. Science. 348 (6239), 1143-1147 (2015).
- Oudendijk, J. F., Yarde, F., Eijkemans, M. J., Broekmans, F. J., Broer, S. L. The poor responder in IVF: is the prognosis always poor?: a systematic review. Human Reproduction Update. 18 (1), 1-11 (2012).
- Gautam, N., Allahbadia, Y. M. Ovarian Stimulation Protocols. , Springer. India, Mumbai, India. (2016).
- Piqueras, P., et al. Live birth after replacement of an embryo obtained from a spontaneously in vitro matured metaphase-I oocyte. Systems Biology in Reproductive Medicine. 63 (3), 209-211 (2017).
- Liu, J., Lu, G., Qian, Y., Mao, Y., Ding, W. Pregnancies and births achieved from in vitro matured oocytes retrieved from poor responders undergoing stimulation in in vitro fertilization cycles. Fertility and Sterility. 80 (2), 447-449 (2003).
- Shu, Y., et al. Fertilization, embryo development, and clinical outcome of immature oocytes from stimulated intracytoplasmic sperm injection cycles. Fertility and Sterility. 87 (5), 1022-1027 (2007).
- Sachdev, N. M., Grifo, J. A., Licciardi, F. Delayed intracytoplasmic sperm injection (ICSI) with trophectoderm biopsy and preimplantation genetic screening (PGS) show increased aneuploidy rates but can lead to live births with single thawed euploid embryo transfer (STEET). Journal of Assisted Reproduction and Genetics. 33 (11), 1501-1505 (2016).
- De Vos, A., Van de Velde, H., Joris, H., Van Steirteghem, A. In-vitro matured metaphase-I oocytes have a lower fertilization rate but similar embryo quality as mature metaphase-II oocytes after intracytoplasmic sperm injection. Human Reproduction. 14 (7), 1859-1863 (1999).
- Holubcova, Z., et al. Egg maturity assessment prior to ICSI prevents premature fertilization of late-maturing oocytes. Journal of Assisted Reproduction and Genetics. 36 (3), 445-452 (2019).
- Montag, M., Schimming, T., van der Ven, H. Spindle imaging in human oocytes: the impact of the meiotic cell cycle. Reproductive BioMedicine Online. 12 (4), 442-446 (2006).
- Montag, M., van der Ven, H. Symposium: innovative techniques in human embryo viability assessment. Oocyte assessment and embryo viability prediction: birefringence imaging. Reproductive BioMedicine Online. 17 (4), 454-460 (2008).
- Keefe, D., Liu, L., Wang, W., Silva, C. Imaging meiotic spindles by polarization light microscopy: principles and applications to IVF. Reproductive BioMedicine Online. 7 (1), 24-29 (2003).
- Caamano, J. N., Munoz, M., Diez, C., Gomez, E. Polarized light microscopy in mammalian oocytes. Reproduction in Domestic Animals. 45, 49-56 (2010).
- Eichenlaub-Ritter, U., Shen, Y., Tinneberg, H. R. Manipulation of the oocyte: possible damage to the spindle apparatus. Reproductive BioMedicine Online. 5 (2), 117-124 (2002).
- Wang, W. H., Meng, L., Hackett, R. J., Odenbourg, R., Keefe, D. L. The spindle observation and its relationship with fertilization after intracytoplasmic sperm injection in living human oocytes. Fertility and Sterility. 75 (2), 348-353 (2001).
- Wang, W. H., Meng, L., Hackett, R. J., Keefe, D. L. Developmental ability of human oocytes with or without birefringent spindles imaged by Polscope before insemination. Human Reproduction. 16 (7), 1464-1468 (2001).
- Moon, J. H., et al. Visualization of the metaphase II meiotic spindle in living human oocytes using the Polscope enables the prediction of embryonic developmental competence after ICSI. Human Reproduction. 18 (4), 817-820 (2003).
- Cohen, Y., et al. Spindle imaging: a new marker for optimal timing of ICSI? Human Reproduction. 19 (3), 649-654 (2004).
- Rama Raju, G. A., Prakash, G. J., Krishna, K. M., Madan, K. Meiotic spindle and zona pellucida characteristics as predictors of embryonic development: a preliminary study using PolScope imaging. Reproductive BioMedicine Online. 14 (2), 166-174 (2007).
- Heindryckx, B., De Gheselle, S., Lierman, S., Gerris, J., De Sutter, P. Efficiency of polarized microscopy as a predictive tool for human oocyte quality. Human Reproduction. 26 (3), 535-544 (2011).
- Kilani, S., Cooke, S., Tilia, L., Chapman, M. Does meiotic spindle normality predict improved blastocyst development, implantation and live birth rates? Fertility and Sterility. 96 (2), 389-393 (2011).
- Kilani, S., Chapman, M. G. Meiotic spindle normality predicts live birth in patients with recurrent in vitro fertilization failure. Fertility and Sterility. 101 (2), 403-406 (2014).
- Tilia, L., Venetis, C., Kilani, S., Cooke, S., Chapman, M. Is oocyte meiotic spindle morphology associated with embryo ploidy? A prospective cohort study. Fertility and Sterility. 105 (4), 1085-1092 (2016).
- ESHRE Guideline Group on Good Practice in IVF Labs, De los Santos, M. J., et al. Revised guidelines for good practice in IVF laboratories (2015). Human Reproduction. 31 (4), 685-686 (2016).
- Principles of IVF Laboratory Practice: Optimizing Performance and Outcomes. Montag, M., Morbeck, D. , Cambridge University Press. Cambridge, UK. (2017).
- Chamayou, S., et al. Meiotic spindle presence and oocyte morphology do not predict clinical ICSI outcomes: a study of 967 transferred embryos. Reproductive BioMedicine Online. 13 (5), 661-667 (2006).
- Rienzi, L., et al. Relationship between meiotic spindle location with regard to the polar body position and oocyte developmental potential after ICSI. Human Reproduction. 18 (6), 1289-1293 (2003).
- Woodward, B. J., Montgomery, S. J., Hartshorne, G. M., Campbell, K. H., Kennedy, R. Spindle position assessment prior to ICSI does not benefit fertilization or early embryo quality. Reproductive BioMedicine Online. 16 (2), 232-238 (2008).
- Kilani, S., Cooke, S., Chapman, M. Time course of meiotic spindle development in MII oocytes. Zygote. 19 (1), 55-62 (2011).
- Wang, W. H., Meng, L., Hackett, R. J., Odenbourg, R., Keefe, D. L. Limited recovery of meiotic spindles in living human oocytes after cooling-rewarming observed using polarized light microscopy. Human Reproduction. 16 (11), 2374-2378 (2001).
- Sun, X. F., Wang, W. H., Keefe, D. L. Overheating is detrimental to meiotic spindles within in vitro matured human oocytes. Zygote. 12 (1), 65-70 (2004).
- Mullen, S. F., et al. The effect of osmotic stress on the metaphase II spindle of human oocytes, and the relevance to cryopreservation. Human Reproduction. 19 (5), 1148-1154 (2004).
- Swearman, H., et al. pH: the silent variable significantly impacting meiotic spindle assembly in mouse oocytes. Reproductive BioMedicine Online. 37 (3), 279-290 (2018).
- Rienzi, L., Vajta, G., Ubaldi, F. Predictive value of oocyte morphology in human IVF: a systematic review of the literature. Human Reproduction Update. 17 (1), 34-45 (2011).
- Miao, Y. L., Kikuchi, K., Sun, Q. Y., Schatten, H. Oocyte aging: cellular and molecular changes, developmental potential and reversal possibility. Human Reproduction Update. 15 (5), 573-585 (2009).
- Pujol, A., Garcia, D., Obradors, A., Rodriguez, A., Vassena, R. Is there a relation between the time to ICSI and the reproductive outcomes? Human Reproduction. 33 (5), 797-806 (2018).
- Yanagida, K., et al. Influence of oocyte preincubation time on fertilization after intracytoplasmic sperm injection. Human Reproduction. 13 (8), 2223-2226 (1998).
Przedruki i uprawnienia
