Ten protokół szczegółowo opisuje, jak implementować i wykonywać zapisy fotometryczne z wieloma włóknami, jak korygować artefakty niezależne od wapnia, oraz ważne kwestie dotyczące obrazowania fotometrycznego dwukolorowego.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Fotometria wielowłóknowa do rejestrowania aktywności neuronalnej u swobodnie poruszających się zwierząt
W tym artykule
Podsumowanie
Streszczenie
Rejestrowanie aktywności grupy neuronów w swobodnie poruszającym się zwierzęciu to trudne przedsięwzięcie. Co więcej, w miarę jak mózg jest dzielony na coraz mniejsze podgrupy funkcjonalne, kluczowe staje się rejestrowanie z projekcji i/lub genetycznie zdefiniowanych subpopulacji neuronów. Fotometria światłowodowa to dostępne i skuteczne podejście, które może przezwyciężyć te wyzwania. Dzięki połączeniu metodologii optycznej i genetycznej, aktywność neuronalna może być mierzona w głębokich strukturach mózgu poprzez ekspresję genetycznie kodowanych wskaźników wapnia, które przekształcają aktywność neuronalną w sygnał optyczny, który można łatwo zmierzyć. Obecny protokół szczegółowo opisuje elementy systemu fotometrii wielowłóknowej, sposób uzyskiwania dostępu do głębokich struktur mózgu w celu dostarczania i gromadzenia światła, metodę uwzględniania artefaktów ruchu oraz sposób przetwarzania i analizy sygnałów fluorescencyjnych. Protokół szczegółowo opisuje rozważania eksperymentalne podczas wykonywania obrazowania jedno- i dwukolorowego, z jednego lub wielu wszczepionych światłowodów.
Wprowadzenie
Zdolność do korelowania reakcji neuronalnych z konkretnymi aspektami zachowania zwierzęcia jest kluczowa dla zrozumienia roli, jaką odgrywa określona grupa neuronów w kierowaniu lub reagowaniu na działanie lub bodziec. Biorąc pod uwagę złożoność zachowań zwierząt, z niezliczonymi stanami wewnętrznymi i bodźcami zewnętrznymi, które mogą wpływać nawet na najprostsze działania, nagrywanie sygnału z rozdzielczością pojedynczej próby wyposaża badaczy w narzędzia niezbędne do pokonania tych ograniczeń.
Fotometria światłowodowa stała się techniką wybieraną przez wielu badaczy w dziedzinie neuronauki systemowej ze względu na jej względną prostotę w porównaniu z innymi technikami rejestracji in vivo, wysoki stosunek sygnału do szumu oraz możliwość nagrywania w różnych paradygmatach behawioralnych1,2,3,4,5,6,7,8. W przeciwieństwie do tradycyjnych metod elektrofizjologicznych, fotometria jest podejściem optycznym najczęściej stosowanym w połączeniu z genetycznie kodowanymi wskaźnikami wapnia (GECIs, seria GCaMP)9. GECI zmieniają swoją zdolność do fluorescencji w zależności od tego, czy są związane z wapniem, czy nie. Ponieważ wewnętrzne stężenie wapnia w neuronach jest bardzo ściśle regulowane, a kanały wapniowe bramkowane napięciem otwierają się, gdy neuron wystrzeliwuje potencjał czynnościowy, przejściowe wzrosty wewnętrznego stężenia wapnia, które powodują przejściowy wzrost zdolności GECI do fluorescencji, mogą być dobrym wskaźnikiem zastępczym dla neuronalnego wypalania9.
W przypadku fotometrii światłowodowej, światło wzbudzenia jest kierowane cienkim, wielomodowym światłowodem do mózgu, a sygnał emisyjny jest zbierany z powrotem przez ten sam światłowód. Ponieważ te włókna światłowodowe są lekkie i podatne na zginanie, zwierzę może poruszać się w dużej mierze bez przeszkód, dzięki czemu technika ta jest zgodna z szeroką gamą testów i warunków behawioralnych. Niektóre warunki, takie jak szybkie ruchy lub wygięcie światłowodowego poza promień, przy którym może on utrzymać całkowite odbicie wewnętrzne, mogą wprowadzać artefakty sygnału. Aby odróżnić sygnał od szumu, możemy wykorzystać właściwość GCaMP znaną jako "punkt izobestyczny". Krótko mówiąc, w przypadku GCaMP, gdy długość fali światła wzbudzenia jest przesuwana w lewo, jego emisja w stanie związanym z wapniem maleje, a emisja w stanie niezwiązanym z wapniem nieznacznie wzrasta. Punkt, w którym względna intensywność tych dwóch emisji jest równa, nazywa się punktem izobestycznym. Gdy GCaMP jest wzbudzany w tym punkcie, na jego emisję nie mają wpływu zmiany wewnętrznych stężeń wapnia, a zmienność sygnału jest najczęściej spowodowana tłumieniem sygnału wynikającym z nadmiernego wygięcia patchcordu światłowodowego lub ruchu tkanki nerwowej względem wszczepionego włókna.
Elektrofizjologia jednojednostkowa jest nadal złotym standardem dla swobodnie poruszających się nagrań in vivo ze względu na rozdzielczość pojedynczej komórki i pojedynczego skoku. Jednak określenie tożsamości molekularnej rejestrowanych komórek może być trudne, a analiza post-hoc może być dość pracochłonna. Chociaż fotometria światłowodowa nie ma rozdzielczości pojedynczej komórki, pozwala naukowcom zadawać pytania, na które nie można odpowiedzieć tradycyjnymi technikami. Łącząc strategie wirusowe ze zwierzętami transgenicznymi, ekspresja GECI może być kierowana do genetycznie zdefiniowanych typów neuronów w celu rejestrowania aktywności neuronalnej zdefiniowanej przez populację lub projekcję, co można wykonać poprzez monitorowanie sygnału wapniowego bezpośrednio na końcach aksonów10,11. Co więcej, poprzez wszczepienie wielu kaniul światłowodowych, możliwe jest jednoczesne monitorowanie aktywności neuronalnej z kilku obszarów mózgu i ścieżek w tym samym zwierzęciu12,13.
W tym manuskrypcie opisujemy technikę fotometrii jedno- i wielowłóknowej, jak korygować artefakty niezależne od wapnia oraz szczegółowo opisujemy, jak wykonywać nagrania mono- i dwukolorowe. Podajemy również przykłady typów pytań, które można zadawać, oraz ich rosnący poziom złożoności (patrz Rysunek 1). Konfiguracja fotometrii światłowodowej dla nagrań wielowłóknistych wyszczególnionych w tym protokole może być zbudowana przy użyciu listy materiałów znajdującej się na stronie https://sites.google.com/view/multifp/hardware (Rysunek 2).
Istotne jest, aby system był przystosowany zarówno do długości fali wzbudzenia 410 nm, jak i 470 nm dla niezależnej od wapnia i zależnej od wapnia emisji fluorescencji z GCaMP6 lub jego wariantów. W przypadku niestandardowych konfiguracji lub jeśli nie ma dostępnego oprogramowania do uruchomienia systemu, można użyć bezpłatnego programu Bonsai (http://www.open-ephys.org/bonsai/) o otwartym kodzie źródłowym. Alternatywnie, fotometrię światłowodową można uruchomić za pomocą MATLAB (np. https://github.com/deisseroth-lab/multifiber)12 lub innego języka programowania14. Oprogramowanie i sprzęt systemu powinny umożliwiać manipulowanie zarówno diodami LED 410 nm, jak i 470 nm, a także kamerą, ekstrakcję obrazów (Rysunek 2) oraz obliczanie średniej intensywności fluorescencji w obszarach zainteresowania (ROI) narysowanych wokół włókien na obrazach. Wyjściem powinna być tabela średnich wartości natężenia zarejestrowanych za pomocą diod LED 470 nm i 410 nm z każdego włókna w krosowym. Podczas wykonywania eksperymentów z wieloma włóknami, wiązki włókien 400 μm mogą ograniczać ruch myszy. W takich przypadkach zalecamy użycie krosowych o średnicy 200 μm, które zapewniają większą elastyczność. Możliwe jest również użycie mniejszych atrap podczas szkolenia myszy.
Kluczowe jest to, aby móc wyodrębnić punkty czasowe dla interesujących zdarzeń podczas akwizycji fotometrii światłowodowej. Jeśli system nie zapewnia wbudowanego systemu do integracji TTL dla określonych zdarzeń, alternatywną strategią jest przypisanie znacznika czasu do poszczególnych punktów czasowych zarejestrowanych w celu dostosowania do określonych czasów i zdarzeń podczas eksperymentu. Znakowanie czasem można wykonać za pomocą zegara komputerowego.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Wszystkie eksperymenty zostały przeprowadzone zgodnie z wytycznymi Institutional Animal Care and Use Committees Uniwersytetu Kalifornijskiego w San Diego oraz Canadian Guide for the Care and Use of Laboratory Animals i zostały zatwierdzone przez Université Laval Animal Protection Committee.
1. Ustawienie osi optycznej między kamerą CMOS (complementary metal oxide semiconductor) a pojedynczym lub rozgałęzionym kablem patchcord
- Poluzuj wszystkie śruby w translatorze 5-osiowym (11, Rysunek 2B).
- Wkręć kabel patchcord (12, Rysunek 2B) do adaptera [SMA (sub-miniature A) lub FC (fiber optic connector)] przymocowanego do translatora 5-osiowego.
- Włącz światło wzbudzenia 470 nm (1, Rysunek 2B) przy niskiej mocy (100 µW) i skieruj końcówkę patchcordu w stronę autofluorescencyjnego szkiełka plastikowego. Nie ma to wpływu na przyszłe pomiary, służy wyłącznie wizualizacji procesu wyrównywania.
- Uruchom podgląd na żywo z kamery CMOS (13, Rysunek 2B). Zwiększ wzmocnienie lub dostosuj tabelę przeglądową (LUT), aż obraz przestanie być całkowicie czarny. Celem jest uzyskanie obrazu w punkcie ogniskowym obiektywu (10, Rysunek 2B).
- Przesuwaj translator 5-osiowy w stronę obiektywu, upewniając się, że światło 470 nm jest wycentrowane na włóknie przy końcówce SMA lub FC patchcordu, aż do momentu uzyskania wyraźnego obrazu w kamerze.
- Reguluj osie X i Y, aż obraz będzie wycentrowany i wyraźny.
- Zweryfikuj światło emitowane z końcówki ferulowej patchcordu. Powinno ono mieć postać izotropowego koła. W przypadku zastosowania patchcordu rozgałęzionego, ilość światła emitowanego z końcówek ferulowych każdego z patchcordów powinna być zbliżona. Jeśli koło nie jest izotropowe lub emitowane światło jest nierównomierne, skoryguj ustawienie translatora 5-osiowego w osi X-Y.
2. Wyznaczenie obszarów zainteresowania (ROI) wokół włókien do pomiaru średniej intensywności fluorescencji
- Włącz wszystkie światła wzbudzenia, aby lepiej zwizualizować włókna. Dostosuj wzmocnienie kamery w taki sposób, aby żadne piksele nie były nasycone, a obraz włókien był wyraźny.
- Przeprowadź zapis na żywo lub wykonaj wstępne zdjęcie.
- Wyznacz obszary ROI wokół włókien i zachowaj je do pomiaru średnich wartości intensywności podczas rejestracji (Rysunek 2A).
- W przypadku rejestracji z wielu włókien należy sprawdzić niezależność sygnałów.
- Przeprowadź zapis na żywo ze wszystkich włókien.
- Skieruj jedno włókno w stronę źródła światła i delikatnie uderz w nie palcem. Bardzo duże fluktuacje powinny wystąpić wyłącznie w tym kanale (akceptowalny poziom przenikania 1:1000).
- Jeśli sygnały nie są niezależne, wyznacz ponownie bardziej konserwatywne obszary ROI i powtórz test niezależności.
- Aby oznaczyć i śledzić, który obszar ROI odpowiada któremu włóknu, na końcach włókien można zastosować kolorową taśmę lub lakier do paznokci. Przed rozpoczęciem każdego eksperymentu wykonaj zdjęcie jako dodatkowe przypomnienie.
3. Przygotowanie areny rejestracyjnej
- Zawieś kabel światłowodowy nad areną, używając statywów, zacisków lub uchwytów.
- Upewnij się, że zwierzę może swobodnie poruszać się po całej arenie, a długość włókna nie stanowi dla niego przeszkody.
- Niezależnie od tego, czy używana jest komora operantowa, czy otwarte pole, upewnij się, że kabel światłowodowy będzie mógł dotrzeć do zwierzęcia przy minimalnym zgięciu. Jeśli wymagane jest włożenie nosa do otworu (nose poke), upewnij się, że nad głową jest wystarczająco dużo miejsca, aby zapobiec zgięciu włókna. Unikaj nadmiernego zginania lub skręcania kabla światłowodowego.
4. Rejestracje in vivo
UWAGA: Procedura implantacji kaniuli z włókna optycznego do eksperymentów z fotometrii włókna jest identyczna z procedurą dla optogenetyki opisaną w pracy Sparta et al15. Zalecamy stosowanie cementu dentystycznego (patrz Tabela materiałów), który zapewnia solidne zakotwiczenie nakładki na głowę do kości czaszki. Cement dentystyczny będzie szczególnie użyteczny w przypadkach, w których nie można zastosować śrub mocujących.
- Dokonaj wizualnej inspekcji dystalnych końców włókien patchcordu gołym okiem oraz za pomocą mikroskopu do światłowodów. Jeśli powierzchnia włókien jest porysowana, należy je ponownie wypolerować, używając folii polerskiej do włókien o drobnej ziarnistości (1 µm i 0.3 µm).
- Oczyść dystalne końce patchcordu 70% etanolem i aplikatorem z bawełnianą końcówką.
- Oczyść kaniule światłowodowe 70% etanolem i aplikatorem z bawełnianą końcówką.
- Połącz koniec z tulejką (ferrule) patchcordu z implantowanym włóknem, używając ceramicznej tulejki łączącej pokrytej czarną rurką termokurczliwą. Podczas łączenia upewnij się, że tulejka przylega ciasno; w przeciwnym razie użyj nowej tulejki.
UWAGA: Wystąpienie jakiejkolwiek szczeliny między tulejką patchcordu a implantem spowoduje znaczne straty sygnału, co uniemożliwi przeprowadzenie rejestracji. - Pozostaw zwierzę na kilka minut w celu regeneracji przed rozpoczęciem testów behawioralnych.
- Rozpocznij rejestrację sygnału optycznego i przeprowadź eksperyment.
- Podczas rejestracji uważnie monitoruj przebieg sygnału w czasie rzeczywistym, aby zapewnić wysoką jakość pomiarów. Przewiduje się, że sygnał będzie gwałtownie spadać w funkcji czasu w ciągu pierwszych 2 min rejestracji. Efekt ten jest spowodowany termicznym zanikiem LED, w którym wzrost temperatury zwiększa rezystancję elementu optycznego.
- Jeśli wystąpi skok sygnału przekraczający kinetykę włączania/wyłączania GCaMP, często jest to oznaka, że tulejka nie przylega wystarczająco ściśle i zmienia się odległość między patchcordem a implantem. W takim przypadku przerwij eksperyment i ponownie połącz zwierzę, używając nowej tulejki.
5. Analiza danych z fotometrii włóknistej
UWAGA: Jest to metoda analizy danych, która sprawdza się w większości pomiarów. Można jednak zastosować alternatywne podejścia. Przykładowy kod do analizy danych znajduje się tutaj: https://github.com/katemartian/Photometry_data_processing.
- Wyodrębnij wartości średniej intensywności fluorescencji zarejestrowane z diod LED 470 nm (Int470) i 410 nm (Int410), przypisane do każdego pojedynczego włókna.
- Wygładź każdy sygnał za pomocą algorytmu średniej kroczącej (Rycina 3A).
- Wykonaj korekcję linii bazowej każdego sygnału (Rycina 3A i 3B) przy użyciu adaptacyjnego, iteracyjnie rewytuowanego algorytmu najmniejszych kwadratów z karą (airPLS) (https://github.com/zmzhang/airPLS), aby usunąć nachylenie i fluktuacje niskoczęstotliwościowe w sygnałach.
- Znormalizuj każdy sygnał, korzystając z wartości średniej i odchylenia standardowego (Rycina 3C):
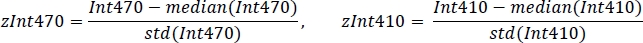
- Używając nieujemnej odpornej regresji liniowej, dopasuj znormalizowane sygnały zInt410 do zInt470 (Rycina 3D) zgodnie z funkcją regresji:
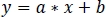
- Wykorzystaj parametry regresji liniowej (a, b), aby wyznaczyć nowe wartości zInt410 dopasowane do zInt470 (fitInt410, Rycina 3D,E):
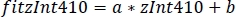
- Wykorzystaj parametry regresji liniowej (a, b), aby wyznaczyć nowe wartości zInt410 dopasowane do zInt470 (fitInt410, Rycina 3D,E):
- Oblicz znormalizowane dF/F (z dF/F) (Rycina 3F):
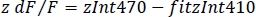
6. Symultaniczne rejestracje dwukolorowe
- Do systemu fotometrycznego należy dodać diodę LED o długości fali 560 nm w celu wzbudzenia czerwonego fluorescencyjnego sensora wapnia oraz odpowiednie lustra dichroiczne i filtry (szczegółowy opis znajduje się w pracy Kim et al., 2016)12.
- Między obiektywem a kamerą CMOS należy zamontować dzielnik obrazu w celu rozdzielenia zielonej i czerwonej długości fali emisji (patrz Rysunek 5). Dzielnik obrazu utworzy na matrycy kamery dwa lustrzane obrazy, odpowiadające sygnałom czerwonym i zielonym (np. patch cord z 3 odnogami utworzy obraz z 6 włóknami).
- Należy wyznaczyć ROI wokół wszystkich włókien dla obu kolorów, zgodnie z powyższym opisem. Należy upewnić się, że każde ROI jest wyraźnie przypisane do odpowiedniego włókna i kanału (zielonego i czerwonego) (Rysunek 4A).
- Należy wyzwolić jednoczesne wzbudzenie diodami LED 470 nm i 560 nm, naprzemiennie z diodą LED 410 nm (Rysunek 5A).
7. Analiza danych dwukolorowych
- Należy postępować zgodnie z krokami opisanymi w sekcji 5, aby wyznaczyć fitInt410 dla sygnału Int470 i obliczyć z dF/F.
- Ponieważ punkt izosbestyczny dla przesuniętych ku czerwieni GECIs jest zazwyczaj nieznany, sygnał rejestrowany za pomocą diody LED 410 nm w kanale zielonym może być wykorzystany do korekcji ruchu w obu kanałach. Należy postępować zgodnie z krokami opisanymi w sekcji 5, aby wyznaczyć fitInt410 dla sygnału Int560 i obliczyć z dF/F.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Neuronalne korelaty reakcji behawioralnych mogą różnić się w zależności od wielu czynników. W tym przykładzie zastosowano fotometrię włóknistą in vivo w celu pomiaru aktywności zakończeń aksonalnych z bocznej części podwzgórza (LHA), które kończą się w bocznej habenuli (LHb). Myszy typu dzikiego otrzymały wstrzyknięcie wirusa adeno-związanego (AAV) kodującego GCaMP6s (AAV-hSyn-GCaMP6s) do LHA, a następnie wszczepiono włókno optyczne z końcówką umieszczoną bezpośrednio nad LHb (Rysunek 4
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Fotometria światłowodowa jest dostępnym podejściem, które pozwala naukowcom rejestrować dynamikę wapnia w określonych populacjach neuronów u swobodnie poruszających się zwierząt. Metodę tę można łączyć z szeroką gamą testów behawioralnych, w tym z zadaniami "wymagającymi ruchu", takimi jak testy wymuszonego pływania2, warunkowanie strachu18, interakcje społeczne 1,4 i inne 7,8,19,20
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Sage Aronson jest dyrektorem generalnym i założycielem firmy Neurophotometrics Ltd., która sprzedaje wielowłóknowe systemy fotometryczne.
Podziękowania
Ta praca została wsparta grantem od Natural Sciences and Engineering Research Council of Canada (NSERC: RGPIN-2017-06131) dla C.P. C. P. jest FRSQ Chercheur-Boursier. Dziękujemy również Plateforme d'Outils Moléculaires (https://www.neurophotonics.ca/fr/pom) za produkcję wektorów wirusowych wykorzystanych w tym badaniu.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Śruba z walcowym ze stali nierdzewnej 1/4"-20, śruba z walcowym 1" długa | SH25S100 | ||
| 1/4"-20 ze stali nierdzewnej, | SH25S050 | a | |
| /4"-20 ze stali nierdzewnej, śruba z walcowym o długości 3/8" | SH25S038 | ||
| 1000 i mikro; m, 0.50 NA, SMA-SMA światłowodowy | Thorlabs | M59L01 | |
| Słupek optyczny 12.7 mm | Thorlabs | TR30/M | |
| 12.7 mm Uchwyt na słupek cokołowy | Thorlabs | PH20EM | |
| 15 V, 2.4 A Zasilacz ze złączem Jack 3.5 mm do T-Cube | Thorlabs | KPS101 | |
| Obiektyw 20x | Thorlabs | RMS20X | #10 na rysunku 2, #11 na rysunku 5 |
| 30 mm Cage Cube z mocowaniem filtra dichroicznego | Thorlabs | CM1-DCH/M | #8-9 na rysunku 2, #8-10 na rysunku 5 |
| Soczewki doryckie | LED 405 nm | CLED_405 | #2 na rysunku 2 |
| Filtr pasmowo-przepustowy 410 nm | Thorlabs | FB410-10 | #5 na rysunku 2; #7 na rysunku 5 |
| 465 nm. | Soczewki LED Doric | CLED_465 | #1 na rysunku 2 |
| Filtr pasmowo-przepustowy 470 nm | Thorlabs | FB470-10 | #4 na rysunku 2; #6 na rysunku 5 |
| Filtr pasmowo-przepustowy 560 nm | Semrock | FF01-560/14-25 | #5 na rysunku 5 |
| Soczewki LED Doric | 560 nm | CLED_560 | #1 na rysunku 3 |
| 5-osiowy kinematyczny montaż | Thorlabs | K5X1 | #11 na rysunku 2, #12 na rysunku 5 |
| Achromatyczny dublet | Thorlabs | AC254-035-A-ML | #7 na rysunku 2 |
| Adapter do kolimatora 405 | Thorlabs | AD11F | #3 na rysunku 2; #4 na rysunku 5 |
| Adapter do regulowanego kolimatora | Thorlabs | AD127-F | #3 na rysunku 2; #4 na rysunku 5 |
| Aluminiowa płytka stykowa | Thorlabs | MB1824 | |
| Widelec zaciskowy | Thorlabs | CF125 | |
| Łącznik sześcienny | Thorlabs | CM1-CC | |
| Dual 493/574 dichroiczny | Semrock | FF493/574-Di01-25x36 | #10 na rysunku 5 |
| Filtr emisji dla GCaMP6 | Semrock | FF01-535/22-25 | #6 na rysunku 2 |
| Obudowa z czarnymi panelami z płyty pilśniowej | Thorlabs | XE25C9 | |
| Zewnętrznie gwintowana zaślepka SM1 do obróbki | ślimaków | ||
| Szybkowymienny uchwyt filtra rurki obiektywu SM1 | Thorlabs | SM1QP | #4-6 na rysunku 2, #5-7 na rysunku 5 |
| Naprawiono kolimator dla światła 405 nm | Thorlabs | F671SMA-405 | #3 na rysunku 2; #4 na rysunku 5 |
| Stały kolimator dla światła 470 i 560 nm | Thorlabs | F240SMA-532 | #3 na rysunku 2; #4 na rysunku 5 |
| Zielony filtr emisji | Semrock | FF01-520/ 35-25 | In rozdzielacz wiązki światła |
| Kamera CMOS USB 3.0 o wysokiej rozdzielczości | Thorlabs | DCC3260M | #13 na rysunku 2, #15 na rysunku 5 |
| Rozdzielacz wiązki światła | Neurofotometria | SPLIT# | 14 na rysunku 5 |
| Lustro dichroiczne długoprzepustowe, 425 nm Cutoff | Thorlabs | DMLP425R | #8 na rysunku 2, #9 na rysunku 5 |
| Lustro dichroiczne długoprzepustowe, 495 nm Cutoff | Semrock | FF495-Di03 | #9 na rysunku 2, #8 na rysunku 5 |
| Cement dentystyczny Metabond | C& B | ||
| M8 - M8 | Soczewki Doryckie | Cable_M8-M8 | |
| Kaniule światłowodowe | Soczewki Doryckie | Należy określić, że będą one używane do eksperymentów fotometrycznych wymagających niskiej autofluorescencji | |
| Patchcordy światłowodowe | Soczewki doryckie | Należy określić, że będą one wykorzystywane do eksperymentów fotometrycznych wymagających niskiej autofluorescencji | |
| Czerwony filtr emisyjny | Semrock | FF01-600/37-25 | Rozdzielacz wiązki światła T7 |
| LabJack | LabJack | ||
| T-cube Sterownik LED | Thorlabs | LEDD1B | |
| I/O USB 3.0, Hirose 25, do DCC3240 | Thorlabs | CAB-DCU-T3 |
Bibliografia
- Gunaydin, L. A., et al. Natural Neural Projection Dynamics Underlying Social Behavior. Cell. 157 (7), 1535-1551 (2014).
- Proulx, C. D., et al. A neural pathway controlling motivation to exert effort. Proceedings of the National Academy of Sciences of the United States of America. 115 (22), 5792-5797 (2018).
- Muir, J., et al. In Vivo Fiber Photometry Reveals Signature of Future Stress Susceptibility in Nucleus Accumbens. Neuropsychopharmacology. 43 (2), 255-263 (2017).
- Wang, D., et al. Learning shapes the aversion and reward responses of lateral habenula neurons. eLife. 6, (2017).
- de Jong, J. W., et al. A Neural Circuit Mechanism for Encoding Aversive Stimuli in the Mesolimbic Dopamine System. Neuron. 101 (1), 133-151 (2018).
- Lerner, T. N., et al. Intact-Brain Analyses Reveal Distinct Information Carried by SNc Dopamine Subcircuits. Cell. 162 (3), 635-647 (2015).
- Calipari, E. S., et al. In vivo imaging identifies temporal signature of D1 and D2 medium spiny neurons in cocaine reward. Proceedings of the National Academy of Sciences of the United States of America. 113 (10), 2726-2731 (2016).
- González, A. J., et al. Inhibitory Interplay between Orexin Neurons and Eating. Current Biology. 26 (18), 2486-2491 (2016).
- Chen, T. -W., et al. Ultrasensitive fluorescent proteins for imaging neuronal activity. Nature. 499 (7458), 295-300 (2013).
- Barker, D. J., et al. Lateral Preoptic Control of the Lateral Habenula through Convergent Glutamate and GABA Transmission. Cell Reports. 21 (7), 1757-1769 (2017).
- Siciliano, C. A., Tye, K. M. Leveraging calcium imaging to illuminate circuit dysfunction in addiction. Alcohol. 74, 47-63 (2018).
- Kim, C. K., et al. Simultaneous fast measurement of circuit dynamics at multiple sites across the mammalian brain. Nature Methods. 13 (4), 325-328 (2016).
- Sych, Y., Chernysheva, M., Sumanovski, L. T., Helmchen, F. High-density multi-fiber photometry for studying large-scale brain circuit dynamics. Nature Methods. 16 (6), 553-560 (2019).
- Akam, T., Walton, M. E. pyPhotometry: Open source Python based hardware and software for fiber photometry data acquisition. Scientific Reports. 9 (1), 3521(2019).
- Sparta, D. R., et al. Construction of implantable optical fibers for long-term optogenetic manipulation of neural circuits. Nature Protocol. 7 (1), 12-23 (2011).
- Stamatakis, A. M., et al. Lateral Hypothalamic Area Glutamatergic Neurons and Their Projections to the Lateral Habenula Regulate Feeding and Reward. The Journal of Neuroscience. 36 (2), 302-311 (2016).
- Tervo, G. D., et al. A Designer AAV Variant Permits Efficient Retrograde Access to Projection Neurons. Neuron. 92 (2), 372-382 (2016).
- Yu, K., da Silva, P., Albeanu, D. F., Li, B. Central Amygdala Somatostatin Neurons Gate Passive and Active Defensive Behaviors. The Journal of Neuroscience. 36 (24), 6488-6496 (2016).
- Falkner, A. L., Grosenick, L., Davidson, T. J., Deisseroth, K., Lin, D. Hypothalamic control of male aggression-seeking behavior. Nature Neuroscience. 19 (4), 596-604 (2016).
- Ren, J., et al. Anatomically Defined and Functionally Distinct Dorsal Raphe Serotonin Sub-systems. Cell. 175 (2), 472-487 (2018).
- Barnett, L. M., Hughes, T. E., Drobizhev, M. Deciphering the molecular mechanism responsible for GCaMP6m’s Ca2+-dependent change in fluorescence. PLOS ONE. 12 (2), 0170934(2017).
- Sun, F., et al. A Genetically Encoded Fluorescent Sensor Enables Rapid and Specific Detection of Dopamine in Flies, Fish, and Mice. Cell. 174 (2), 481-496 (2018).
- Patriarchi, T., et al. Ultrafast neuronal imaging of dopamine dynamics with designed genetically encoded sensors. Science. 360 (6396), (2018).
- Feng, J., et al. A Genetically Encoded Fluorescent Sensor for Rapid and Specific In Detection of Norepinephrine. Neuron. 102 (4), 745-761 (2019).
- Akerboom, J., et al. Genetically encoded calcium indicators for multi-color neural activity imaging and combination with optogenetics. Frontiers in Molecular Neuroscience. 6, 1-29 (2013).
- Dana, H., et al. Sensitive red protein calcium indicators for imaging neural activity. eLife. 5, (2016).
- Wang, H., Jing, M., Li, Y. Lighting up the brain: genetically encoded fluorescent sensors for imaging neurotransmitters and neuromodulators. Current Opinion in Neurobiology. 50, 171-178 (2018).
- Lu, L., et al. Wireless optoelectronic photometers for monitoring neuronal dynamics in the deep brain. Proceedings of the National Academy of Sciences. 115 (7), 1374-1383 (2018).
- Jennings, J. H., et al. Visualizing Hypothalamic Network Dynamics for Appetitive and Consummatory Behaviors. Cell. 160 (3), 516-527 (2014).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
