Ten protokół wyjaśnia, jak przygotować i zamontować próbki bakterii do trójwymiarowego obrazowania na żywo oraz jak zrekonstruować trójwymiarowy kształt E. coli na podstawie tych obrazów.
Artykuł metodologiczny
Trójwymiarowe obrazowanie komórek bakteryjnych w celu dokładnego odwzorowania komórek i precyzyjnej lokalizacji białek
W tym artykule
Podsumowanie
Streszczenie
Kształt bakterii jest ważny dla jej fizjologii. Kształt komórki może mieć wpływ na wiele aspektów fizjologii komórki, takich jak ruchliwość komórek, drapieżnictwo i produkcja biofilmu. Komórki bakteryjne są obiektami trójwymiarowymi (3D), choć rzadko są tak traktowane. Większość technik mikroskopowych skutkuje dwuwymiarowymi (2D) obrazami, co prowadzi do utraty danych dotyczących rzeczywistego kształtu komórki 3D i lokalizacji białek. Niektóre parametry kształtu, takie jak krzywizna Gaussa (iloczyn dwóch głównych krzywizn), mogą być mierzone tylko w 3D, ponieważ obrazy 2D nie mierzą obu głównych krzywizn. Ponadto nie wszystkie komórki leżą płasko podczas montażu, a obrazowanie 2D zakrzywionych komórek może nie odzwierciedlać dokładnie kształtów tych komórek. Dokładny pomiar lokalizacji białek w 3D może pomóc w określeniu regulacji przestrzennej i funkcji białek. Opracowano technikę konwolucji do przodu, która wykorzystuje funkcję rozmycia mikroskopu do rekonstrukcji kształtów komórek 3D i dokładnej lokalizacji białek. W tym miejscu opisano protokół przygotowania i montażu próbek do obrazowania żywych komórek bakterii w 3D, zarówno w celu odtworzenia dokładnego kształtu komórki, jak i lokalizacji białek. Metoda opiera się na prostym przygotowaniu próbki, akwizycji obrazu fluorescencyjnego i przetwarzaniu obrazu w oparciu o MATLAB. Wiele wysokiej jakości mikroskopów fluorescencyjnych można po prostu zmodyfikować, aby wykonywać te pomiary. Te rekonstrukcje komórek są intensywne obliczeniowo i zalecany jest dostęp do zasobów obliczeniowych o wysokiej przepustowości, chociaż nie jest to konieczne. Metoda ta została z powodzeniem zastosowana do wielu gatunków bakterii i mutantów, metod obrazowania fluorescencyjnego i producentów mikroskopów.
Wprowadzenie
Komórki wszystkich typów regulują swoje kształty dla określonych funkcji. Na przykład neurony mają inny kształt niż komórki krwi i pełnią różne funkcje. Podobnie, komórki bakteryjne występują w różnych kształtach i rozmiarach, chociaż cel tych kształtów nie zawsze jest znany1,2. Dlatego ważne jest, aby kształt komórek bakteryjnych był dokładnie określony. Opisana metoda pokazuje łatwy do wdrożenia sposób zbierania danych odpowiednich do analizy 3D większości żywych lub utrwalonych komórek bakteryjnych.
Opisana metoda umożliwia wykonywanie obrazów 3D komórek bakteryjnych w celu dokładnego odwzorowania kształtu komórki 3D próbki i precyzyjnego lokalizowania białek w tych kształtach. Tradycyjne techniki mikroskopowe wykonują obrazy 2D, co jest problematyczne podczas badania komórek o nieprawidłowych lub niesymetrycznych kształtach, takich jak mutanty Escherichia coli lub zakrzywione bakterie, takie jak Vibrio cholerae i Helicobacter pylori. Chociaż obrazy 3D o wysokiej rozdzielczości są kluczowymi danymi wejściowymi tej metody, metoda ta nie zwraca obrazu o zwiększonej rozdzielczości. Zamiast tego metoda ta rekonstruuje współrzędne powierzchni 3D i kształt komórki przy użyciu algorytmu konwolucji do przodu przy użyciu aktywnych konturów i funkcji pozornego rozmycia mikroskopu3 (Rysunek 1). Został on wykorzystany do zbadania bakteryjnego homologu aktyny MreB u E. coli4,5,6,7, nowego pierwiastka okołoszkieletowego CrvA w V. cholerae8 oraz domniemanej baktofiliny CcmA w Helicobacter pylori9 (Rysunek 2).
Lokalizacja białek może dać wgląd w ich funkcje. Na przykład białka biorące udział w podziale komórki są zwykle zlokalizowane w środkowej komórce10,11. Przeprowadzono wysokoprzepustowe badania w celu zlokalizowania wszystkich białek bakterii w nadziei na uzyskanie wglądu w ich funkcje12. Niestety, badania te przeprowadzono za pomocą obrazowania 2D i analizy 1D lub 2D, co uniemożliwiło zmierzenie określonych aspektów lokalizacji białek, takich jak lokalizacja do komórkowych cech geometrycznych.
Na przykład, przypuszcza się, że MreB, dynamiczne białko wymagane do kształtu pręcików wielu bakterii, działa poprzez kierowanie lokalizacją syntezy ściany komórkowej, a jego lokalizacja odzwierciedla lokalizację syntezy ściany komórkowej7,13. MreB z wielu gatunków pokazuje wzbogacenie geometryczne4,6,7,14,15. Dynamiczne polimery powierzchniowe, takie jak MreB, mogą łączyć geometrię powierzchni z uśrednionym w czasie profilem wzbogacania16 i mogą być w stanie zorientować się na określone geometrie poprzez minimalizację energii związanej z wiązaniem z membraną17. Chociaż znaczenie skręcania, wiązania, zginania i dynamiki nie zostało całkowicie rozwiązane dla MreB, ważne jest, aby pamiętać, że dokładne pomiary obu głównych krzywizn powierzchni wymagają pełnej reprezentacji 3D komórki. Dlatego, aby jak najdokładniej zmierzyć krzywizny, do których lokalizują się białka, preferowane jest obrazowanie 3D, a nie 2D. Obrazowanie 3D eliminuje konieczność obliczeniowego szacowania tych krzywizn, których nie można zmierzyć w 2D, oszacowania, które może nie być dokładne w komórkach asymetrycznych18.
Chociaż obrazowanie 2D komórek jest szybsze i nie wymaga tak wiele pracy obliczeniowej po obrazowaniu, obrazowanie 3D zapewnia dokładniejsze odwzorowanie komórki, a także możliwość pomiaru cech powierzchni, takich jak krzywizna, której nie można zmierzyć w 2D. W związku z tym, w miarę jak obrazowanie 3D staje się coraz bardziej powszechne, możliwe stanie się uzyskanie nowych informacji na temat kształtu komórki i lokalizacji białek.
Protokół
1. Przygotowanie próbki
- Spraw, aby E. coli były fluorescencyjne do obrazowania, albo poprzez inżynierię ich w celu ekspresji cytoplazmatycznego białka fluorescencyjnego6, albo za pomocą barwnika membranowego5. Zamiast E. coli można stosować inne gatunki bakterii.
- Przekształć komórki za pomocą elektroporacji za pomocą plazmidu, który koduje cytoplazmatyczne białko fluorescencyjne mCherry.
nuta: Można stosować różne białka fluorescencyjne o innych kolorach. - Wyhodować transformanty na płytce LB z odpowiednim antybiotykiem w temperaturze 37 °C. Uzyskać pojedyncze kolonie i zidentyfikować dodatnie klony za pomocą mikroskopii. Kolonie oporne na antybiotyki, które pod mikroskopem wydają się czerwone, zawierają plazmid przenoszący mCherry.
- Przekształć komórki za pomocą elektroporacji za pomocą plazmidu, który koduje cytoplazmatyczne białko fluorescencyjne mCherry.
- Wyhodować 2 ml nocnej kultury w płynnym podłożu LB z odpowiednimi antybiotykami w temperaturze 37 °C w inkubatorze z wytrząsaniem. Jako inokulum należy użyć kolonii z talerza lub niewielkiej ilości bulionu z zamrażarki.
nuta: Użyj pożywki niezbędnej dla komórek bakteryjnych wybranych do eksperymentu. - Subkulturuj hodowlę przez noc w stosunku 1:1,000 w 5 ml świeżej pożywki LB i pozwól komórkom rosnąć do fazy wykładniczej w temperaturze 37 °C w inkubatorze z wytrząsaniem przez 3-4 godziny. Zmierz OD600 komórek, aby potwierdzić, że są w fazie wykładniczej (tj. OD600 = 0,2−0,4).
nuta: Obrazowanie można wykonać na dowolnym etapie wzrostu, w zależności od przeprowadzanego eksperymentu.
2. Przygotowanie slajdów
UWAGA: Ważne jest, aby używać mediów o niskiej autofluorescencji. Można użyć dowolnego podłoża o niskiej autofluorescencji. W tym eksperymencie do obrazowania komórek w 3D wymagane są minimalne podkładki z 1% agarozy M63 i uszczelnienie za pomocą VaLaP19.
- Przygotować 1% roztwór agarozy w 20 ml minimalnej pożywki.
- Roztwór należy podgrzewać w kuchence mikrofalowej, aż agaroza całkowicie się rozpuści, a roztwór stanie się klarowny.
- Roztwór należy przechowywać w łaźni wodnej o temperaturze 60 °C do momentu przygotowania do użycia.
nuta: Roztwór ten może być zestalany i topiony w razie potrzeby lub może być podzielony na mniejsze ilości, które są topione w razie potrzeby. Po wielokrotnym użyciu nośnik może się odbarwić i należy go wymienić.
- Stopić uszczelniacz VaLaP na płycie grzejnej w temperaturze 80−100 °C.
nuta: Przygotować VaLaP, który ma być stosowany jako uszczelniacz, topiąc po 50 g wazeliny, lanoliny i parafiny razem w zlewce na gorącej płycie w temperaturze 80−100 °C. Ta duża ilość VaLaP może być przechowywana w temperaturze pokojowej w nieskończoność i wystarczy na >500 szkiełek. Podgrzanie w temperaturze >100 °C spowoduje jego degradację i pociemnienie koloru. - Umieścić dwa stosy po trzy szkiełka nakrywkowe o wymiarach 20 mm x 20 mm na przeciwległych końcach szkiełka podstawowego (łącznie sześć szkiełek nakrywkowych).
- Odpipetować 200 μl roztworu wacików agarozowych na szkiełko.
nuta: Jeśli nie używasz zmodyfikowanej barwie fluorescencyjnej, przed tym krokiem można dodać barwnik membranowy do roztworu wacika agarozowego. Zawiesić barwnik w wodzie i dodać barwnik do 1 ml roztworu waby agarozowej do końcowego stężenia 5 μg/ml. - Natychmiast i stanowczo umieść drugie szkiełko w dół na stosie szkiełek nakrywkowych, aby spłaszczyć agar i pozwól mu zastygnąć przez 1 minutę w temperaturze pokojowej.
- Ostrożnie zsuń górną prowadnicę.
- Użyj dużej końcówki końcówki pipety o pojemności 200 μl, aby wyciąć pojedyncze pady z żelu (o średnicy ~5 mm) na szkiełku i wyrzucić zniekształcony lub niepotrzebny żel.
nuta: W przypadku obrazowania wielu szczepów lub schorzeń, dla każdego z nich potrzebna będzie osobna podkładka. Jeśli ma być zobrazowany tylko jeden szczep, wykonaj 3-4 elektrody, aby pomóc podeprzeć szkiełko nakrywkowe. - Wielokrotnie pipetuj komórki w górę i w dół, aby rozbić grudki komórek i upewnić się, że kultura jest dobrze wymieszana. Odpipetować 1 μl subkultury z kroku 1.3 na podkładkę.
nuta: Rekonstrukcje kształtu komórki wymagają pojedynczych komórek, które nie stykają się z innymi komórkami. W przypadku stosowania hodowli w fazie stacjonarnej lub hodowli o dużej gęstości komórek, może być konieczne rozcieńczenie próbki w stosunku 1:10 przed umieszczeniem jej na podkładce. - Pozostaw próbkę do wyschnięcia na powietrzu przez 5-10 minut. Upewnij się, że kropla została całkowicie wchłonięta przez wkładkę. Jeśli pozostanie jakakolwiek ciecz, komórki będą się poruszać w cieczy i nie będzie można ich zobrazować.
- Umieść szkiełko nakrywkowe na górze padów.
- Uszczelnij szkiełko nakrywkowe stopionym VaLaP, delikatnie muskając krawędź szkiełka nakrywkowego bawełnianym wacikiem. Upewnij się, że trzymasz go z dala od górnej części szkiełka nakrywkowego, gdzie obiektyw będzie się stykał. VaLaP stwardnieje w ciągu kilku sekund, uszczelniając próbkę.
- Natychmiast zobrazuj próbkę.
nuta: Próbka powinna zostać zobrazowana zaraz po przygotowaniu szkiełka. Komórki mogą rosnąć na opuszkach, a jeśli się podzielą, rekonstrukcje będą trudniejsze.
3. Wymagania dotyczące obrazowania
- Upewnij się, że oś z lub oś ostrości mikroskopu może wykonywać precyzyjne ruchy mniejsze niż 50 nm. Używaj stolików piezoelektrycznych (patrz tabela materiałów), dostępnych w mikroskopach klasy badawczej, ponieważ typowe zmotoryzowane urządzenia do ustawiania ostrości nie są w stanie zapewnić takiej precyzji.
nuta: Przyjmując kryterium próbkowania Nyquista-Shannona20, trzeba mieć możliwość przesunięcia 0,5x najmniejszego pożądanego rozmiaru kroku lub 2x pożądanej częstotliwości przestrzennej. Dla kroków 100 nm wymaganych w tym protokole wymagany jest stolik o dokładności 50 nm lub mniejszej. - Upewnij się, że mikroskop zawiera obiektyw 100x z minimalną aperturą numeryczną (NA) 1.45.
- Zbierz stosy z od 200 do 400 różnych komórek, aby upewnić się, że uzyskano wystarczającą liczbę komórek do dalszych zastosowań.
nuta: Liczba potrzebnych komórek zależy od podstawowej zmienności próbki będącej przedmiotem zainteresowania. Niektóre z komórek pobranych w tym momencie nie przejdą przez etapy rekonstrukcji.
- Zbierz stosy z od 200 do 400 różnych komórek, aby upewnić się, że uzyskano wystarczającą liczbę komórek do dalszych zastosowań.
- Upewnij się, że stos z jest zgodny z ustawieniami używanymi dla kanału kształtu, jeśli mierzony jest wtórny kanał fluorescencyjny (białko, etykieta metaboliczna itp.).
4. Obrazowanie
- Włóż szczelnie zapieczętowany szkiełko do mikroskopu i pozostaw go na 5 minut, aby zrównoważyć temperaturę z otoczeniem, ponieważ w pomieszczeniu mikroskopu może panować inna temperatura niż w pomieszczeniu do przygotowywania próbek.
- Pobrać fluorescencyjny stos Z próbki.
UWAGA: Stos z powinien całkowicie pokrywać próbkę z odstępem Z mniejszym niż głębia ostrości. W przypadku obiektywu 1,45 NA 100x i komórek E. coli o grubości ~1 μm dobrze sprawdza się 40 kroków przy 100 nm na krok. W przypadku większych komórek lub komórek, które nie leżą idealnie płasko na powierzchni, może być konieczne wykonanie 50 lub więcej kroków. Uwzględnij wystarczającą liczbę kroków i upewnij się, że próbka jest całkowicie rozmyta powyżej i poniżej.- Użyj oprogramowania dołączonego do mikroskopu (patrz tabela materiałów), aby sterować mikroskopem.
- Ustaw ostrość na środku komórki za pomocą kół ostrości mikroskopu. W obszarze Akwizycja ND zaznacz pole Z, aby pobrać stos z. Kliknij przycisk Początek, aby ustawić środek komórki jako punkt początkowy. Ustaw rozmiar kroku na 0,1 μm i ustaw zakres na 4 μm. Upewnij się, że urządzenie Z jest ustawione na piezoelektryczny stage.
- Ustaw kanały fluorescencyjne pod oknem lambda na ustawienia dla obrazowanych cząsteczek fluorescencyjnych. W tym eksperymencie użyto GFP i mCherry.
nuta: Weź dodatkowy stos z tym samym rozmiarem kroku i zakresem w drugim kanale koloru, jeśli pożądany jest rozkład 3D dodatkowego kanału fluorescencyjnego. W tym eksperymencie do określenia kształtu komórki użyto cytoplazmatycznego mCherry, a MreB-GFP użyto jako drugiego kanału kolorów21. - Upewnij się, że kolejność eksperymentu jest ustawiona na lambda (seria z), tak aby przed przełączeniem zajął pełny stos z w każdym kanale koloru.
- Kliknij przycisk Uruchom teraz, aby rozpocząć pobieranie obrazu i zapisać plik, gdy jeden lub oba stosy z są zakończone.
- Przejdź do nowego obszaru na podkładce i powtórz kroki 4.2.2-4.2.5.
5. Rekonstrukcja komórek
- Przytnij pojedyncze komórki i zapisz obrazy jako ułożony plik tiff, tak aby w każdym pliku była tylko jedna komórka. Upewnij się, że ta komórka jest dobrze odizolowana od innych komórek (tj. około 5 razy więcej niż połowa maksymalnej szerokości pełnej funkcji rozmycia w xy.
UWAGA: Można to zrobić za pomocą ogólnodostępnego oprogramowania do analizy obrazu (patrz Spis materiałów).- Narysuj ramkę wokół pojedynczej komórki i zduplikuj tę komórkę 2x, raz dla każdego kanału. Upewnij się, że pole zduplikowanego hyperstack jest zaznaczone i zmień kanał na 1 lub 2, upewniając się, że wycinki zawierają cały z-stack.
nuta: Jeśli obrazujesz tylko kształt komórek, a nie dodatkowe białko fluorescencyjne, obecny będzie tylko jeden kanał. - Gdy oba stosy będą dostępne, przejdź do Obrazy | Stosy | Narzędzia | Połącz w celu połączenia obrazów z kanałem białkowym jako pierwszym, a następnie z kanałem kształtu.
- Zapisz nowy obraz jako plik tiff.
- Narysuj ramkę wokół pojedynczej komórki i zduplikuj tę komórkę 2x, raz dla każdego kanału. Upewnij się, że pole zduplikowanego hyperstack jest zaznaczone i zmień kanał na 1 lub 2, upewniając się, że wycinki zawierają cały z-stack.
- Zmierz funkcję rozmycia mikroskopu za pomocą koralików fluorescencyjnych o ograniczonej subdyfrakcji22. Należy to zrobić dla każdego mikroskopu i obiektywu mikroskopu, ale można to zrobić przed lub po obrazowaniu interesujących nas próbek.
- Uśrednij razem wiele niezależnych koralików z pewną ręczną interwencją przy użyciu dostępnego oprogramowania (patrz Tabela materiałów).
nuta: Produktem końcowym powinien być obraz 3D funkcji rozmycia z takimi samymi odstępami xyz, jak w próbkach będących przedmiotem zainteresowania.
- Uśrednij razem wiele niezależnych koralików z pewną ręczną interwencją przy użyciu dostępnego oprogramowania (patrz Tabela materiałów).
- Uruchom skrypty rekonstrukcji kształtu komórki konwolucji do przodu za pomocą dostępnego oprogramowania. Najnowszą wersję tych skryptów można bezpłatnie pobrać ze strony https://github.com/PrincetonUniversity/shae-cellshape-public.
- Utwórz folder w folderze na pulpicie, który zawiera przycięte obrazy i plik cell_shape_settings_tri.txt z shae-cellshape-public/exampleData_tri.
- Edytuj cell_shape_setting_tri.txt, aby mieć poprawne ustawienia dla interesującego Cię eksperymentu. W tym eksperymencie plik ustawień zawiera następujące wiersze:
nm_per_pixel 70
Z_scale 0,65
stack_z_size 41
stack_t_size 1
Fstack_z_size 41
Fstack_t_size 1
stack_seperation_nm 100
Fstack_seperation_nm 100
psfScript -999 osuPSF20180726
Gradient 1
nuta: Ten plik tekstowy jest podzielony na sekcje, a każda sekcja jest analizowana we własną zmienną. Chociaż wiele ustawień nie musi być zmienianych z eksperymentu na eksperyment, należy upewnić się, że rozmiar stosu z (stack_z_size dla kształtu, Fstack_z_size dla białka będącego przedmiotem zainteresowania), odstępy między stosami z (stack_seperation_nm, Fstack_seperation_nm), względne przesunięcie ogniskowej mikroskopu (Z_scale)23, rozmiar piksela w xy (nm_per_pixel) i nazwa skryptu, który ładuje funkcję rozmycia mikroskopu (psfScript) są zgodne z eksperymentem. Pole gradientu powinno być ustawione na 1, jeśli kanał kształtu jest wypełniony cytoplazmatycznie i 0, jeśli jest to obiekt zabarwiony błoną. - Uruchom funkcję Cell_shape_detector3dConvTriFolder (shae-cellshape-public/CellShapeDetectorTri/) z ciągiem do lokalizacji folderu, a następnie numerem komórki, od której chcesz zacząć, oraz liczbą komórek, które chcesz uruchomić.
nuta: Przykład danych wejściowych będzie wyglądał następująco: Cell_shape_detector3dConvTriFolder ("ścieżka do folderu z przyciętymi obrazami", indeks początkowy w folderze, # komórek). Typowa komórka może potrzebować od 5 do 20 minut, aby rekonstrukcja zbiegła się i zakończyła.
- Przeprowadź badania przesiewowe rekonstrukcji komórek, aby upewnić się, że są poprawne, zanim użyjesz komórek do jakiejkolwiek analizy statystycznej.
- Uruchom ScreenFits (shae-cellshape-public/shae-fitViewerGui/), aby wizualnie prześwietlić rekonstrukcje poszczególnych komórek.
- Kliknij przycisk wyboru folderu, gdy otworzy się graficzny interfejs użytkownika (GUI), a następnie wybierz folder z plikami danych rekonstrukcyjnych (TRI.mat) utworzonymi w kroku 5.3.
- Zaznacz pole obok rekonstrukcji komórki, jeśli komórka wydaje się zniekształcona lub nie jest w pełni zbieżna (Rysunek 3). Może to wyglądać jak komórka z, płaską stroną lub wychodzącą z niej gałęzią. Spowoduje to dołączenie "FLAG" do nazwy pliku, aby można go było wykluczyć z dalszej analizy.
nuta: Zrekonstruowaną komórkę można porównać z oryginalnymi obrazami. Może to być szczególnie ważne, jeśli twoje komórki pochodzą z różnej heterogenicznej populacji kształtów.
- Uruchom enrichmentSmoothingSpline (shae-cellshape-public/), aby utworzyć profil wzbogacania względnego stężenia białka będącego przedmiotem zainteresowania w funkcji krzywizny Gaussa na powierzchni.
- Zaznacz każdy folder z plikami TRI.mat utworzonymi w kroku 5.3.3.
- Wybierz nowo utworzony (5.5.1) plik curve.mat.
nuta: Plik curve.mat zostanie utworzony dla każdego folderu, który został wybrany w 5.5.1. Wszystkie profile wzbogacania zostaną przedstawione na jednym wykresie. Jeśli wymagane są indywidualne wykresy, uruchom 5.5 dla każdego folderu.
nuta: Oprócz precyzyjnej lokalizacji geometrycznej białka fluorescencyjnego, istnieje wiele innych sposobów analizowania danych z kanału wtórnego, w tym zliczanie liczby, rozmiaru i orientacji obiektów4.
Wyniki
Bakterie występują w szerokiej rozmaitości kształtów i rozmiarów, które mogą determinować ich funkcje w naturze1. Wynikiem tej procedury jest dokładna reprezentacja 3D komórek uzyskana poprzez splot w przód (forward convolution) stosu obrazów z-stack (Rysunek 1). Metoda ta jest szczególnie istotna w przypadku komórek zakrzywionych (Rysunek 2) lub o nietypowych kształtach (Rysunek 4A), ponieważ reprezentacja 2D nie oddaje precyzyjnie krzywizny komórek. Aby zastosować metodę splotu w przód (Rysunek 1A), komórki muszą być albo barwione obwodowo, albo posiadać barwienie cytoplazmatyczne (Rysunek 2B lewa vs. prawa).
Rysunek 4 przedstawia lokalizację MreB w komórce. W celu zbadania dokładnej lokalizacji w komórkach E. coli typu dzikiego oraz mutantach4, białko MreB, będące bakteryjną aktyną, połączono z GFP21. Ponieważ MreB jest związany z błoną, do wiernego odtworzenia jego położenia w komórce niezbędne jest obrazowanie 3D. Dzięki pomiarom w 3D udało się zrekonstruować kształty komórek typu dzikiego oraz mutantów rodZ (Rysunek 4A). Wykazano, że lokalizacja MreB jest wzbogacona w obszarach o małych krzywiznach Gaussa, co jest cechą geometryczną możliwą do zmierzenia wyłącznie w 3D, i zachodzi w sposób zależny od RodZ (Rysunek 4B).
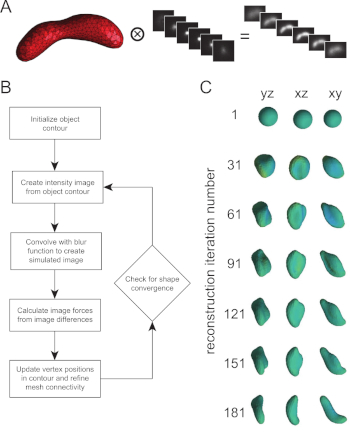
Rycina 1: Metoda splotu w przód rekonstruuje komórki bez uprzedniej wiedzy o ich kształcie. (A) Końcowym wynikiem metody jest trójwymiarowa rekonstrukcja komórki uzyskana poprzez porównanie kształtu testowego z skalibrowaną funkcją rozmycia mikroskopu. Porównanie to trwa do momentu, aż obserwowany stos obrazów z osi z (z-stack) będzie zgodny z obrazem hipotetycznym. Przedstawiony tutaj obraz jest renderingiem rekonstrukcji jednej komórki C. crescentus. (B) Procedura rekonstrukcji iteracyjnie aktualizuje szacowane pozycje elementów powierzchni na podstawie obserwowanego stosu obrazów. Pełne szczegóły algorytmiczne metody opisano w pracy Nguyen3. (C) Procedura rekonstrukcji rozpoczyna się bez wiedzy a priori o kształcie komórki i aktualizuje pozycję oraz liczbę wierzchołków powierzchni, aby dopasować je do obserwowanego stosu z. Reprezentatywne obrazy z każdego 30. kroku podczas rekonstrukcji 3D komórki V. cholerae przedstawiono z trzech różnych kątów. Pozycje powierzchni tego kształtu są aktualizowane w celu zminimalizowania różnicy między stosem symulowanym a obserwowanym. Kliknij tutaj, aby wyświetlić większą wersję tej ryciny.

Rycina 2: Reprezentatywne rekonstrukcje 3D trzech gatunków bakterii o różnych kształtach. Rekonstrukcje trójwymiarowe można wykonać z komórek z zabarwioną błoną (po lewej) lub wypełnionych cytoplazmatycznym fluorophorem (po prawej). Kształt i krzywizna wyjściowej komórki nie mają znaczenia, ponieważ pręciki zakrzywione, skręcone lub proste mogą zostać precyzyjnie zrekonstruowane. Zrekonstruowane powierzchnie są pokolorowane na podstawie lokalnej krzywizny Gaussa powierzchni. Pasek skali = 1 µm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.

Rycina 3: Rekonstrukcje mogą nie powodzić się z wielu powodów. Komórki muszą zostać przesiane, aby upewnić się, że algorytm rekonstrukcji zbiegł do rozsądnego wyniku. Lewo = reprezentatywne komórki E. coli typu dzikiego (góra) i mutanta rodZ (dół), które przeszły kontrolę jakości. Prawo = komórki, których nie udało się poprawnie zrekonstruować i które nie przeszły kontroli jakości. Przedstawiono pięć klas błędów zbieżności: (i) komórki znajdujące się zbyt blisko krawędzi obszaru przycinania, co prowadzi do ostrego odgraniczenia, (ii) komórki znajdujące się zbyt blisko innej komórki, (iii) komórki, w których powstało wgłębienie, (iv) komórki, które nie posunęły się poza początkowy punkt startowy oraz (v) inne nieznane błędy. Aby wyświetlić większą wersję tej ryciny, kliknij tutaj.

Rycina 4: Reprezentatywne dane pokazujące lokalizację białka w specyficznych geometriach komórkowych. (A) Trójwymiarowe rekonstrukcje komórek typu dzikiego oraz komórek rodZ E. coli z naniesioną krzywizną Gaussa i intensywnością fluorescencji MreB. Pasek skali = 1 µm. (B) Wykresy wzbogacenia MreB w komórkach typu dzikiego i komórkach rodZ E. coli. Wartości >1 wskazują na wzbogacenie, a wartości <1 na ubytek MreB w tych obszarach komórkowych w stosunku do jednolitego pokrycia komórki. Zacieniowane obszary oznaczają średnią ±90% przedział ufności bootstrap dla średniej. Krzywa dla każdego szczepu jest sześcianowym spline'em wygładzającym i została przycięta przy użyciu progu prawdopodobieństwa dla ekstremalnych krzywizn p > 5 x 10⁻³. Rycina została zmodyfikowana na podstawie pracy (Bratton et al.)4. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Kluczowym krokiem w tym protokole jest pozyskiwanie obrazów wysokiej jakości. Aby prawidłowo zrekonstruować komórki, musi być wystarczająco dużo rozmycia nad i pod komórką. Dlatego konieczne jest, aby wykonany z-stack pokonywał wystarczająco dużą odległość. Liczba kroków wykonywanych podczas akwizycji obrazu może być dostosowana do każdego szczepu. Na przykład komórki E. coli usunięte dla rodZ są szersze i wymagają więcej kroków, a tym samym większej odległości, niż komórki typu dzikiego. Jeśli próbka dryfuje podczas akwizycji obrazu, rekonstrukcja może zawierać poważne błędy. Dlatego ważne jest, aby przed obrazowaniem pozwolić szkiełku osiągnąć równowagę termiczną z mikroskopem, aby uniknąć dryfu podczas akwizycji z-stack. Komórki powinny być obrazowane na elektrodach o niskiej autofluorescencji. Składniki pożywki, takie jak te znajdujące się w powszechnym pożywce LB, mają autofluorescencję, która może powodować problemy podczas próby rekonstrukcji komórek. Gęstość komórek na podkładce obrazowej jest ważna, ponieważ proces rekonstrukcji jest wykonywany niezależnie na każdej komórce. Zbyt mała liczba komórek wydłuży czas potrzebny do uzyskania obrazów wystarczającej liczby komórek, podczas gdy zbyt duża liczba komórek spowoduje, że pola obrazowania będą zbyt gęste, aby łatwo przyciąć pojedyncze komórki. Ponieważ nie wszystkie komórki rekonstruują się prawidłowo, dodatkowe komórki powinny być obrazowane na etapie akwizycji, a wszystkie wyniki powinny być przesiewane przed przejściem do analizy statystycznej (Rysunek 3).
Wiele ograniczeń związanych z tą metodą ma charakter techniczny. W mikroskopie, który ma być używany, musi być wyposażony w obiektyw o dużej aperturze numerycznej (zwykle >1,4), ponieważ umożliwia to przekrój optyczny w skali wielkości bakterii. Dodatkowo mikroskop musi być wyposażony w stolik piezoelektryczny, który może wykonywać małe, precyzyjne kroki w kierunku z. Ponadto, chociaż nie jest to konieczne, zdecydowanie zaleca się dostęp do zasobów obliczeniowych o wysokiej przepustowości w celu uruchomienia oprogramowania do analizy obrazu, ponieważ skróci to czas przetwarzania w celu rekonstrukcji komórek.
Jednym z ograniczeń koncepcyjnych tej metody jest to, że należy wybrać odpowiednie skale energii do ważenia płynności rekonstrukcji w stosunku do stosunku sygnału do szumu obrazów. Aby zweryfikować wybór parametrów, rozmiary i kształty komórek powinny być mierzone przy użyciu niezależnych metod, takich jak transmisyjna mikroskopia elektronowa (TEM) lub mikroskopia sił atomowych (AFM). Jako dowód słuszności tej zasady, przeprowadzono rekonstrukcje 3D komórek na AFM w celu przetestowania dokładności z (<50 nm) lub na siatce TEM w celu przetestowania dokładności xy (<30 nm)3. Takie skorelowane podejście jest czasochłonne i kosztowne. Prostszym podejściem może być obrazowanie standardowych próbek, takich jak komórki typu dzikiego lub kulki sferyczne o wielkości 1 μm. Średnica i kulistość rekonstrukcji mogą być wykorzystane do zapewnienia, że skale wielkości i energii użyte w rekonstrukcji są prawidłowe.
Nie jest to jedyna metoda, która ma na celu wydobycie informacji przestrzennych o wysokiej rozdzielczości z obrazów z mikroskopii fluorescencyjnej. Wiele artykułów przeglądowych opisuje najnowsze osiągnięcia w dziedzinie mikroskopii superrozdzielczej24,25. Techniki zwiększające rozdzielczość, takie jak mikroskopia dekonwolucyjna26, mikroskopia konfokalna z wirującym dyskiem27, reprzydział pikseli28 i mikroskopia oświetlenia strukturalnego (SIM)29 mają na celu poprawę rozdzielczości obrazów uzyskanych przez mikroskop. Metody te nie są niezgodne z przedstawionym podejściem. Ostatnio ta metoda została dostosowana, aby umożliwić obrazy oparte na karcie SIM jako dane wejściowe9. Chociaż metoda konwolucji do przodu ma pewne podstawy wspólne z mikroskopią dekonwolucyjną, ma zupełnie inne wyniki. Podczas gdy podejścia takie jak mikroskopia dekonwolucyjna mają na celu poprawę rozdzielczości obrazu, podejście to nie generuje obrazu, ale raczej rekonstrukcję kształtu komórki z dokładnością około 50 nm. Techniki mikroskopii aktywnej pojedynczej cząsteczki oparte na słabo znakowanych próbkach mogą zapewnić jeszcze wyższy poziom precyzji przestrzennej niż ta metoda. W wielu przypadkach te podejścia oparte na pojedynczych cząsteczkach wymagają optymalizacji konstruktów fluorescencyjnych i mogą wymagać długiego czasu akwizycji, co utrudnia ich stosowanie w przypadku żywych lub dynamicznych próbek. Każda z tych metod wiąże się z jednym lub kilkoma zastrzeżeniami, których ta metoda nie zawiera. Na przykład korzyści reklamowane przez mikroskopię konfokalną z wirującym dyskiem nie mają tak dużego zastosowania do monowarstw komórek bakteryjnych, w których nie ma zbyt wiele światła poza płaszczyzną. Co więcej, metoda ta zapewnia potok do uzyskania dokładnych kształtów komórek 3D i lokalizacji białek bez potrzeby stosowania specjalistycznych fluoroforów. Metoda ta ma minimalne wymagania sprzętowe (tj. z piezo, obiektyw o wysokiej NA) i wymaga tylko kilkudziesięciu obrazów na punkt czasowy, co pozwala na łatwe badanie dynamicznych struktur 3D6.
Pojawia się coraz więcej podejść do badania organizacji komórek bakteryjnych w strukturach 3D. Należą do nich podejścia koncepcyjnie podobne do tego, które wykorzystują wysokiej jakości obrazy fluorescencyjne 3D 30,31,32. Takie podejście wymaga dobrze wyizolowanych komórek i nie przyjmuje żadnych apriorycznych założeń dotyczących geometrii komórek. Jednak, aby przenieść się do gęstych agregatów komórkowych lub biofilmów, zakłada się, że komórki są podobne do pręcików. Ten widok o niższej rozdzielczości nadal umożliwia badanie układów upakowania komórek, chociaż duża gęstość komórek w biofilmie uniemożliwia analizę subkomórkowej lokalizacji określonych czynników.
W przyszłości interesujące może być opracowanie ram do integracji podejść pojedynczych cząsteczek i szerokiego pola z tą techniką rekonstrukcji 3D. Co więcej, możliwe jest włączenie tego podejścia do konwolucji naprzód z narzędziami do segmentacji widzenia maszynowego32 , aby umożliwić rekonstrukcję bardziej gęstych klastrów komórek.
To, dlaczego komórki wyewoluowały w określone kształty, jest złożonym zagadnieniem, które musi odzwierciedlać złożone środowisko, w którym żyją. Zrozumienie ewolucji i funkcji kształtów komórek wymaga wykonania precyzyjnych i dokładnych pomiarów tych kształtów, co zapewnia ta metoda.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Chcielibyśmy podziękować Jeffreyowi Nguyenowi i Joshui Shaevitzowi za pomoc w rozwoju tej metody.
Finansowanie: RMM - NIH F32 GM103290-01A1, BPB - Glenn Centers for Aging Research i National Science Foundation PHY-1734030.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Koraliki fluorescencyjne 50 nm | Invitrogen | F8795 | służą do pomiaru funkcji rozmycia mikroskopu |
| Agarose | sigma-Aldrich | A9539 | |
| Wacik bawełniany | Puritan Medical Products Company LLC S304659 | używany do aplikacji | |
| szkiełek nakrywkowych | VWR | 16004-302 | |
| Fiji | ImageJ | https://fiji.sc | używany do komórek cro |
| FM4-64 | Invitrogen | LST3166 | barwnik błonowy używany do barwienia komórek |
| Huygens Software | Scientific Volume Imaging | Huygens niezbędne lub profesjonalne | Służy do pomiaru funkcji rozmycia mikroskopu |
| Lanolina | Sigma-Aldrich | L7387 | w połączeniu z parafiną i wazeliną w celu uzyskania |
| pożywki wzrostowej | BD Difco | ||
| M63 średni | amerykański biologiczny | M1015 | |
| MATLAB | Mathworks | Potrzebne do uruchamiania skryptów konwolucyjnych do przodu | |
| Szkiełka mikroskopowe | Fisher | 12-550-133 | |
| Elementy NIS | Nkon | ||
| Parafina | Sigma-Aldrich | 327212 | |
| Równanie | wazeliny49035-038-27 | ||
| Końcówki | Nikon | 77011589 | |
| -p200 | USA Scientific | 1111-0730 | |
| Końcówki do pipet- p10 | USA Scientific | 1111-3730 |
Bibliografia
- Young, K. D. The Selective Value of Bacterial Shape. Microbiology and Molecular Biology Reviews. 70 (3), 660-703 (2006).
- Persat, A., Stone, H. A., Gitai, Z. The Curved Shape of Caulobacter crescentus Enhances Surface Colonization in Flow. Nature Communications. 5, 3824(2014).
- Nguyen, J. P., Bratton, B. P., Shaevitz, J. W. Bacterial Cell Wall Homeostasis: Methods and Protocols. Hong, H. J. , Springer. New York. 227-245 (2016).
- Bratton, B. P., Shaevitz, J. W., Gitai, Z., Morgenstein, R. M. MreB Polymers and Curvature Localization are Enhanced by RodZ and Predict E. coli's Cylindrical Uniformity. Nature Communications. 9 (1), 2797(2018).
- Ouzounov, N., et al. MreB Orientation Correlates with Cell Diameter in Escherichia coli. Biophysical Journal. 111 (5), 1035-1043 (2016).
- Morgenstein, R. M., et al. RodZ links MreB to Cell Wall Synthesis to Mediate MreB rotation and Robust Morphogenesis. Proceedings of the National Academy of Sciences. , 12510-12515 (2015).
- Ursell, T. S., et al. Rod-Like Bacterial Shape is Maintained by Feedback Between Cell Curvature and Cytoskeletal Localization. Proceeding of the National Academy of Science U.S.A. 111 (11), E1025-E1034 (2014).
- Bartlett, T. M., et al. A Periplasmic Polymer Curves Vibrio cholerae and Promotes Pathogenesis. Cell. 168 (1-2), 172-185 (2017).
- Taylor, J. A., et al. Distinct Cytoskeletal Proteins Define Zones of Enhanced Cell Wall Synthesis in Helicobacter pylori. bioRxiv. , 545517(2019).
- Egan, A. J. F., Vollmer, W. The Physiology of Bacterial Cell Division. Annals of the New York Academy of Science. 1277 (1), 8-28 (2013).
- Adams, D. W., Errington, J. Bacterial Cell Division: Assembly, Maintenance and Disassembly of the Z ring. Nature Reviews Microbiology. 7 (9), 642-653 (2009).
- Werner, J. N., Gitai, Z., Melvin, I. S., Brian, R. C., Alexandrine, C. High-Throughput Screening of Bacterial Protein Localization. Methods in Enzymology. 471, 185-204 (2010).
- de Pedro, M. A., Quintela, J. C., Höltje, J. V., Schwarz, H. Murein Segregation in Escherichia coli. Journal of Bacteriology. 179 (9), 2823-2834 (1997).
- Hussain, S., et al. MreB Filaments Align Along Greatest Principal Membrane Curvature to Orient Cell Wall Synthesis. eLife. 7, e32471(2018).
- Wong, F., et al. Mechanical Strain Sensing Implicated in Cell Shape Recovery in Escherichia coli. Nature Microbiology. 2, 17115(2017).
- Wong, F., Garner, E. C., Amir, A. Mechanics and Dynamics of Translocating MreB Filaments on Curved Membranes. eLife. 8, e40472(2019).
- Quint, D. A., Gopinathan, A., Grason, G. M. Shape Selection of Surface-Bound Helical Filaments: Biopolymers on Curved Membranes. Biophysical Journal. 111 (7), 1575-1585 (2016).
- Colavin, A., Shi, H., Huang, K. C. RodZ Modulates Geometric Localization of the Bacterial Actin MreB to Regulate Cell Shape. Nature Communications. 9 (1), 1280(2018).
- Valap Sealant. , Cold Spring Harbor Protocols. http://cshprotocols.cshlp.org/content/2015/2/pdb.rec082917 (2015).
- Shannon, C. E. Communication in the Presence of Noise. Proceedings of the IRE. 37 (1), 10-21 (1949).
- Billings, G., et al. De Novo Morphogenesis in L-Forms Via Geometric Control of Cell Growth. Mol Microbiol. 93 (5), 883-896 (2014).
- Sturrman, N. Measuring a Point Spread Function. , iBiology. https://www.ibiology.org/talks/measuring-a-point-spread-function (2012).
- Bratton, B. P., Shaevitz, J. W. Simple Experimental Methods for Determining the Apparent Focal Shift in a Microscope System. PLOS ONE. 10 (8), e0134616(2015).
- Moerner, W. E., Shechtman, Y., Wang, Q. Single-molecule Spectroscopy and Imaging over the decades. Faraday Discussions. 184, 9-36 (2015).
- Sahl, S. J., Hell, S. W., Jakobs, S. Fluorescence Nanoscopy in Cell Biology. Nature Reviews Molecular Cell Biology. 18, 685(2017).
- Sarder, P., Nehorai, A. Deconvolution Methods for 3-D Fluorescence Microscopy Images. IEEE Signal Processing Magazine. 23 (3), 32-45 (2006).
- Oreopoulos, J., Berman, R., Browne, M. Methods in Cell Biology. Waters, J. C., Wittman, T. 123, Academic Press. 153-175 (2014).
- Huff, J. The Airyscan detector from ZEISS: confocal imaging with improved signal-to-noise ratio and super-resolution. Nature Methods. 12, 1205(2015).
- Gustafsson, M. G. L. Surpassing the Lateral Resolution Limit by a Factor of Two Using Structured Illumination Microscopy. Journal of Microscopy. 198 (2), 82-87 (2000).
- Lee, M. K., Rai, P., Williams, J., Twieg, R. J., Moerner, W. E. Small-Molecule Labeling of Live Cell Surfaces for Three-Dimensional Super-Resolution Microscopy. Journal of the American Chemical Society. 136 (40), 14003-14006 (2014).
- Yan, J., Sharo, A. G., Stone, H. A., Wingreen, N. S., Bassler, B. L. Vibrio cholerae Biofilm Growth Program and Architecture Revealed by Single-Cell Live Imaging. Proceedings of the National Academy of Sciences. 113 (36), E5337-E5343 (2016).
- Wang, J., et al. Bact-3D: A level set segmentation approach for dense multi-layered 3D bacterial biofilms. 2017 IEEE International Conference on Image Processing (ICIP). , 330-334 (2017).
Przedruki i uprawnienia
