Dwuetapowa kancerogeneza skóry jest indukowana przez dwie miejscowo stosowane substancje chemiczne. Mutagen 7,12-dimetylobenzantracen) powoduje mutacje w komórkach naskórka, a ciągłe stosowanie ogólnego stymulatora wzrostu octanu 12-O-tetradekanoiloforbol-13 przyspiesza powstawanie brodawczaków skóry.
Subskrypcja JoVE jest wymagana do oglądania tego materiału. Zaloguj się lub rozpocznij bezpłatny okres próbny.
Artykuł metodologiczny
Model kancerogenezy skóry indukowanej chemicznie z wykorzystaniem dimetylobenz[a]antracenu i octanu 12-O-tetradekanoilu forbolu-13 (DMBA-TPA)
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Rak jest jedną z najbardziej wyniszczających chorób człowieka. Eksperymentalne modele nowotworów są ważne, aby uzyskać wgląd w złożone wzajemne oddziaływanie różnych typów komórek i genów w promowaniu progresji nowotworu oraz zapewnić platformę do testowania skuteczności różnych podejść terapeutycznych. Jednym z najczęściej stosowanych eksperymentalnych modeli raka zapalnego jest dwuetapowy model kancerogenezy skóry DMBA-TPA. Powstawanie guza jest indukowane w tym modelu przez miejscowe stosowanie dwóch różnych substancji chemicznych, 7,12-dimetylobenz[a]antracenu (DMBA) i octanu 12-O-tetradekanolofral-13-forbolu (TPA), które razem powodują powstawanie brodawczaka w skórze. Ponieważ głównym wynikiem jest tworzenie się brodawczaka w skórze, model jest idealnym, niezawodnym i powtarzalnym sposobem radzenia sobie zarówno z inicjacją guza (przeżycie wolne od guza), jak i progresją guza (liczba i wielkość widocznych guzów). Efekty leczenia DMBA-TPA są przekazywane za pośrednictwem mechanizmu zapalnego, co sprawia, że model ten jest szczególnie odpowiedni do badania roli układu odpornościowego w tworzeniu nowotworów. Jednak ten model jest ograniczony do skóry i innych powierzchni, na które można nakładać chemikalia. W tym artykule znajduje się szczegółowy protokół umożliwiający pomyślne korzystanie z modelu.
Wprowadzenie
Nowotwory są jedną z głównych przyczyn zgonów na świecie. W związku z tym istnieje zapotrzebowanie na opracowanie wiarygodnych eksperymentalnych modeli chorobowych, aby lepiej zrozumieć przebieg choroby oraz zbadać potencjalne podejścia terapeutyczne. Jednym z najczęściej stosowanych eksperymentalnych modeli in vivo do badania rozwoju raka skóry jest dwuetapowy model chemicznie indukowanej kancerogenezy skóry1,2. Model ten stanowi narzędzie do badania inicjacji, promocji i progresji nowotworu, a także specyficznych zjawisk, takich jak infiltracja komórek odpornościowych i angiogeneza.
W celu zastosowania dwuetapowego modelu kancerogenezy skóry, skórę grzbietową myszy poddaje się działaniu dwóch różnych substancji chemicznych, które wspólnie indukują powstawanie guzów. Model ten inicjuje się niską dawką mutagenu, DMBA, po czym następuje długotrwała ekspozycja na promotor nowotworowy, TPA3 (Rycina 1). DMBA powoduje losowe mutacje DNA poprzez tworzenie adduktów kowalencyjnych z DNA komórek naskórka i pierwotnych komórek macierzystych keratynocytów4,5,6,7. Część tych losowych mutacji zachodzi w protoonkogenach, takich jak Hras1 (wykrywa się również mutacje w Kras i Nras), a konwersja protoonkogenów w onkogeny napędza proces tworzenia guza pod wpływem odpowiednich bodźców. Z kolei TPA jest najczęściej stosowanym czynnikiem promującym wzrost nowotworów. Jego celem molekularnym jest kinaza białkowa C (PKC)8. TPA aktywuje również szlak sygnałowy Wnt/β-catenin, który jest kluczowy dla powstawania guzów w tym modelu9. Powtarzalna i przedłużona ekspozycja na czynnik promujący prowadzi do nasilenia sygnalizacji komórkowej, zwiększonej produkcji czynników wzrostu oraz miejscowej reakcji zapalnej, co objawia się zwiększoną syntezą DNA i naciekiem komórek zapalnych w traktowanej skórze.
Zidentyfikowano kluczowe mediatory stanu zapalnego w modelu DMBA-TPA10. Znane jest, że interleukina-17A (IL-17A) wykazuje szczególnie silne działanie tumorigenne w modelu DMBA-TPA11,12. Działa ona w synergii z interleukiną 6 (IL-6) i bierze udział w rekrutacji makrofagów oraz neutrofili13,14. Dodatkowo wykazano, że limfocyty T CD4+ oraz neutrofile wykazują działanie tumorigenne w modelu DMBA-TPA. Wreszcie, makrofagi mogą również promować tumorigenezę w tym modelu15,16,17.
W fazie promowania dochodzi do zwiększenia proliferacji zmutowanych komórek oraz utrzymuje się trwała hiperplazja naskórka1. Prowadzi to do rozwoju brodawczaków skóry w ciągu 10–20 tygodni, po czym brodawczaki zaczynają przekształcać się w guzy złośliwe, czyli raki kolumnowokomórkowe (SCCs)2. Jednak mniej niż 10% brodawczaków przechodzi w stadium złośliwości, choć odsetek ten zależy również od tła genetycznego myszy2,18. Przez dziesięciolecia nie było wiadomo, jaki typ komórek uległ pierwotnej mutacji w guzach prowadzących do złośliwości, mimo że niektóre badania wskazywały na wyraźnie odmienne cechy guzów złośliwych w porównaniu z łagodnymi brodawczakami19,20. Niemniej jednak ostatnie badania znacznie poszerzyły naszą wiedzę na temat klonalnego pochodzenia tworzenia guzów w modelu DMBA-TPA21.22.23. Wykazano, że w tworzeniu guza uczestniczą zarówno komórki nabłonkowe pochodzące ze szpiku kostnego, jak i komórki macierzyste mieszków włosowych22. Badania śledzenia linii komórkowych specyficzne dla poszczególnych etapów ujawniły, że łagodne brodawczaki mają pochodzenie monoklonalne, lecz rekrutują one nowe populacje komórek nabłonkowych21,23. Jednak tylko jeden z klonów komórkowych pełni funkcję drivera kancerogenezy; zawiera on mutację Hras23. Progresja do stadium raka wiąże się z zjawiskiem clonal sweep23.
Karcynogen DMBA inicjuje tworzenie się brodawczaków, a TPA promuje wzrost guza. Zatem proces inicjacji nowotworu można badać oddzielnie od procesu promocji, przerywając eksperyment przed okresem podawania TPA. Ponieważ progresja nowotworu jest monitorowana co tydzień, daje to doskonałą okazję do szczegółowej analizy wzrostu guza w trakcie całego badania. Ponieważ guzy są generowane przez zewnętrzne substancje chemiczne, mutacja onkogenna w linii zarodkowej nie jest konieczna. W związku z tym badanie wpływu tła genetycznego (np. knockout/transgen w porównaniu z typem dzikim) na tumorigenezę jest proste2. Podsumowując, model raka skóry indukowanego DMBA/TPA jest szczególnie użytecznym podejściem do badania roli układu odpornościowego w progresji nowotworu, a także do oceny etapów inicjacji i promocji guza w sposób niezależny lub współzależny.
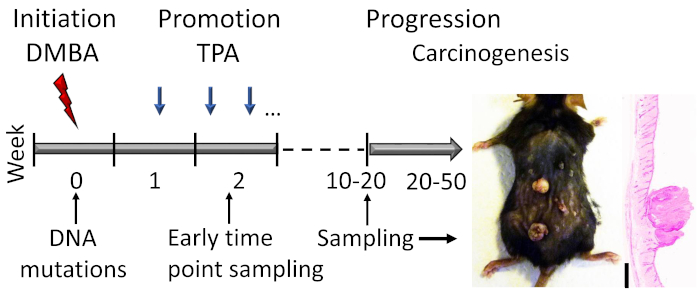
Rycina 1: Schemat modelu kancerogenezy skóry indukowanej DMBA-TPA. Kancerogen DMBA jest stosowany miejscowo w celu wywołania mutacji DNA w fazie inicjacji modelu. Agent promujący wzrost TPA jest podawany 2x w tygodniu, aby wzmocnić proliferację komórek podczas fazy promocji, co prowadzi do rozwoju papilniaków w skórze. Zwierzęta są uśmiercane po tym, jak odpowiedź w postaci papilniaków osiągnie plateau, zazwyczaj między 15. a 20. tygodniem, w zależności od tła genetycznego myszy. Niewielka część papilniaków może w dalszym ciągu przekształcić się w SCC w ciągu 20–50 tygodni. Aby badać wczesne zdarzenia w fazie inicjacji i wczesnej promocji, można pobrać próbki (np. krótko po drugiej aplikacji TPA). Przedstawiono reprezentatywne zdjęcie oraz przekrój poprzeczny papilniaków na skórze myszy C57BL/6 po 19 tygodniach leczenia, barwiony hematoksyliną i eozyną. Pasek skali = 0.1 mm. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Protokół
Opisany tutaj protokół został zatwierdzony przez Narodową Komisję Etyki Zwierząt Finlandii (numer protokołu ESAVI/23659/2018).
1. Zwierzęta doświadczalne, odczynniki i sprzęt
- Użyj myszy dopasowanych do wieku i płci. Rozpocznij badanie w wieku 7–9 tygodni, ponieważ skóra u większości myszy jest w fazie telogenu (faza spoczynku) mniej więcej w tym wieku2.
- Obserwuj zachowanie zwierząt podczas badania i jeśli walczą, co często zdarza się w przypadku samców, trzymaj je osobno. Walki mogą powodować skaleczenia skóry, które sprzyjają powstawaniu guza. Samice myszy są preferowane ze względu na ich mniej agresywne zachowanie. Typowa wielkość grupy doświadczalnej waha się między 8–20 zwierzętami na grupę24,25,26,27.
UWAGA: Obliczenia mocy oparte na wariancji biologicznej zaobserwowanej we wcześniejszych badaniach pomagają wybrać wystarczająco dużą wielkość grupy. Szczepy użyte jako przykłady w tym artykule to Balb/c i C57BL/6. Jednak wiele innych szczepów myszy, takich jak SENCAR i FVB, zostało użytych z modelem DMBA-TPA, a także Wistar i Sprague-Dawley rats2,28,29. Przed rozpoczęciem badania potrzebna jest licencja od krajowej lub lokalnej komisji ds. pracy ze zwierzętami. Oprócz ogólnych względów związanych z dobrostanem, punktami końcowymi specyficznymi dla modelu są zazwyczaj rak płaskonabłonkowy (SCC) i zakażenie skóry. Zadrapania na skórze spowodowane swędzeniem po zastosowaniu rakotwórczych chemikaliów w acetonie są typowe, ale poza tym zwierzęta nie powinny wykazywać żadnych oznak dyskomfortu. Regularne ważenie (np. 2 razy w miesiącu) pomaga ocenić dobrostan zwierząt. - Użyj DMBA i TPA, oba rozcieńczone w acetonie. Stężenie robocze DMBA wynosi 250 g/L. Dawka dla jednego zwierzęcia to 50 μg DMBA w 200 μL acetonu. Stężenie podstawowe TPA wynosi 125 g/l, a stężenie po zabiegu 25 g/l. Dawka TPA dla jednego zwierzęcia wynosi 5 μg w 200 μl acetonu.
UWAGA: DMBA jest szkodliwy w przypadku połknięcia i może powodować raka. Aceton szybko odparowuje i jest łatwopalny. Może powodować zawroty głowy i podrażniać oczy. Używaj maski oddechowej i/lub pracuj pod przepływem podciśnienia. Zmień rękawice po kontakcie z którąkolwiek z tych substancji chemicznych. Indywidualnie wentylowane klatki zapobiegają rozprzestrzenianiu się chemikaliów podczas trzymania myszy. Po aplikacji należy zebrać końcówki pipet używane do obchodzenia się z DMBA i wyrzucić jako odpady niebezpieczne.
UWAGA: DMBA musi być chroniony przed światłem. Rozcieńczony TPA jest przechowywany w temperaturze -20 °C, najlepiej chroniony przed światłem. - Zaopatrz się w następujący sprzęt: wagę, zwykłą maszynkę do golenia sierści, pipety i końcówki o odpowiednim rozmiarze, zwykłą linijkę, aparat cyfrowy, notatnik i długopis lub komputer do rejestrowania brodawczaków, system do znieczulenia wziewnego lub ogranicznik myszy z otworem z tyłu oraz system narkozy dwutlenkiem węgla do składania ofiar z myszy.
2. Indukcja i promocja brodawczaka skórnego
- Ogol skórę grzbietu i zważ zwierzę. Później należy ogolić skórę w razie potrzeby, ale nie w momencie ekspozycji na substancję chemiczną.
UWAGA: Zachowaj ostrożność podczas golenia wokół brodawczaków i unikaj wykonywania jakichkolwiek nacięć na skórze. Waż każde zwierzę co 2 tygodnie, aby zauważyć potencjalną utratę wagi. - Nanieś 50 μg DMBA w 200 μl acetonu miejscowo na ogolony obszar za pomocą pipety 48 godzin po zgoleniu sierści. W razie potrzeby unieruchomić zwierzę za pomocą lekkiego znieczulenia wziewnego lub przytrzymywania myszy.
- Po 7 dniach należy podać pierwszą dawkę TPA. Nakładać miejscowo 5 μg TPA w 200 μl acetonu pipetą 2x w tygodniu, najlepiej w poniedziałek i czwartek lub wtorek i piątek.
- Licz, rejestruj i fotografuj brodawczaki co tydzień. Wyczuwalna masa o średnicy większej niż 1 mm jest uważana za brodawczaka, jeśli utrzymuje się dłużej niż 1 tydzień. Zaznacz każdego brodawczaka na mapie i co tydzień wymieniaj jego rozmiar. Przechowuj zdjęcia cyfrowe.
3. Składanie ofiar ze zwierząt i pobieranie próbek
- Kontynuuj leczenie, aż odpowiedź guza osiągnie plateau. Ogólnie rzecz biorąc, oczekuje się, że obciążenie brodawczakiem wzrośnie 10-20 tygodni po rozpoczęciu, w zależności od użytego szczepu myszy. Plateau spodziewany jest za 15–20 tygodni. Niewielka część brodawczaków (poniżej 3%) może przekształcić się w SCC w ciągu 20–50 tygodni2.
- Uśmiercaj zwierzęta 24 godziny po ostatnim zastosowaniu TPA. Użyj narkozy dwutlenkiem węgla ze zwichnięciem szyjki macicy lub inną odpowiednią metodą.
- W zależności od pytania badawczego zbierz odpowiedni materiał próbny od zwierząt30,31.
- Na przykład, pobierz próbki krwi przed złożeniem ofiary i oddziel osocze.
- Wytnij kawałki skóry do barwienia immunohistochemicznego (IHC) (np. hematoksylina i eozyna, komórki proliferujące lub zapalne).
- Użyj stempli biopsyjnych, aby pobrać kawałki skóry z tkanką brodawczaka lub skórą bez brodawczaka (leczoną) w celu ekspresji genów (np. qPCR) i/lub analiz białek (np. Western blot lub ELISA).
- Pobrać fragment śledziony i węzłów chłonnych drenujących skórę do analizy cytometrii przepływowej, jeśli pożądana jest bardziej szczegółowa analiza populacji komórek odpornościowych. Można również oddzielić warstwę naskórka i skóry właściwej w celu dalszych analiz.
4. Statystyki
- Narysuj krzywą przeżycia Kaplana-Meiera w czasie wolnym od brodawczaka i użyj testu logarytmicznego Mantela-Coxa do przeżycia. Narysuj liniową krzywą liczby brodawczaków na tydzień. Ponieważ są to dane liczbowe, należy użyć modelu regresji nieliniowej. W razie potrzeby skonsultuj się ze statystykiem.
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Wyniki
Głównym punktem końcowym jest czas przeżycia (tj. czas do pojawienia się brodawczaka) w grupach leczonych lub grupach genotypowych. Wtórnym punktem końcowym jest liczba brodawczaków na tydzień w każdej grupie (Rysunek 2). Oczekiwanymi wynikami są statystycznie istotne różnice w czasie do pojawienia się brodawczaka oraz w liczbie brodawczaków pomiędzy grupami eksperymentalnymi (dwoma lub więcej). Zaleca się liczenie brodawczaków i wykreślanie krzywej w fazie promocji (TPA), aby uzyskać obraz ...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Dyskusja
Rak skóry wywołany przez DMBA-TPA jest jednym z najczęściej stosowanych modeli raka, ponieważ jest wysoce powtarzalny i dostarcza informacji na temat progresji guza od inicjacji do złośliwości. Kluczowa miara wyniku, czyli tworzenie brodawczaka, jest łatwa i niezawodna ilościowo. Model odnosi się zarówno do inicjacji guza (przeżycia wolnego od guza), jak i progresji (liczby i rozmiarów guza) jednocześnie. Model nadaje się do badania różnych związków, takich jak potencjalne terapie i wpływ poszczególnych genów na progresj...
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Ta praca została sfinansowana przez Akademię Fińską (granty 25013080481 i 25013142041 (I.J.), 286377 i 295814 (M.P.), 287907 (T.J.)), Fundację Päivikki i Sakari Sohlberg (M.P., T.J.), Fińską Fundację Medyczną (T.P.), Konkurencyjne Finansowanie Badań Państwowych w Obszarze Odpowiedzialności Eksperckiej Szpitala Uniwersyteckiego w Tampere (grant 9V049 i 9X044 (M.P.), 9X011 i 9V010 (T.J.)), Konkurencyjne finansowanie badań przez państwo w obszarze odpowiedzialności ekspertów laboratoriów Fimlab (grant X51409 (I.J.)), Tays Support Foundation (I.J., M.P., T.J.), Tampere Tuberculosis Foundation (I.J., M.P., T.J.), Fińska Fundacja Kulturalna (M.V.), Fundacja Paulo (T.P.), Fińskie Towarzystwo Walki z Rakiem (M.P.), oraz Fundacja Emila Aaltonena (T.P.).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 1000 ul RPT XL Końcówka filtra stopniowego (sterylna), Wkład | Starlab | S1182-1730-C | |
| 300 ul RTP Końcówka filtra stopniowego (sterylna), Wkład | Starlab | S1180-9710-C | |
| 7,12-Dimethylbenz[a]antracen (DMBA) | Sigma | D3254-100MG | Działa szkodliwie w przypadku połknięcia i może powodować raka. Przechowywać w bezpiecznym miejscu. |
| Aceton | Sigma | 1000141011 | szybko odparowuje i jest łatwopalny. |
| Attane vet 1000 mg/g | Piramal Critical Care Limited | Płynny izofluran do inhalacji | |
| Maszynka do strzyżenia na baterie Isis | Albert Kerlb GmbH | GT421 | Do golenia sierści |
| CONTRAfluran-Restgasfilter | ZeoSys GmbH | Do znieczulenia | |
| Linijka Linex Nature N1030 30 cm | Zszywki Business Advantage | 60383 | Do pomiaru brodawczaków |
| Średnia komora CO2 300 x 200 x 200 mm - Red | VetTech Solutions Ltd | AN045AR | Na ofiarę |
| Mekasoft | Mekalasi | 23008 | Obrus |
| Myszy (Balb/c JRj) | Janvier labs | Możliwe również inne szczepy | |
| Myszy (C57BL/6JRj) | Janvier labs | Możliwe również inne szczepy | |
| cyfrowy Panasonic Lumix DMC-FS5 | |||
| Paraformaldehyd | Merck | 30525-89-4 | Do próbek histologicznych |
| 12-mirystynian 13-octan forbolu znany również jako 12-octan 12-Otetradecanoylphorbol-13 (TPA) | Enzo | BML-PE160-0001 | |
| Waga precyzyjna PLJ-C/PLJ-G | KERN & SOHN GmbH | PLJ 600-3CM | |
| Pre-Set CO2 System-2 Chamber-S / S Obudowa | VetTech Solutions Ltd | AN044BX | Do poświęcenia |
| RNAlater | Qiagen | 76104 | Do próbek kwasów nukleinowych |
| Pipeta Tacta 100-1000 ul | Sartorius | LH-729070 | |
| Pipeta Tacta 20-200 ul | Sartorius | LH-729060 | |
| UNO Anesthetic Key Filler | Oprzyrządowanie Scintica inc. | Do znieczulenia | |
| UNO Maska na twarz dla myszy | Scintica oprzyrządowanie inc. | Do znieczulenia | |
| UNO FM2200 Przepływomierz | Scintica oprzyrządowanie inc. | Do znieczulenia | |
| UNO Gas Exhaust Unit | Oprzyrządowanie Scintica inc. | Do znieczulenia | |
| Skrzynka indukcyjna UNO | Oprzyrządowanie Scintica inc. | Do znieczulenia | |
| UNO200VAP Vaporizer | Scintica oprzyrządowanie inc. | Do znieczulenia |
Bibliografia
- DiGiovanni, J. Multistage carcinogenesis in mouse skin. Pharmacology & Therapeutics. 54 (1), 63-128 (1992).
- Abel, E. L., Angel, J. M., Kiguchi, K., DiGiovanni, J. Multi-stage chemical carcinogenesis in mouse skin: fundamentals and applications. Nature Protocols. 4 (9), 1350-1362 (2009).
- Perez-Losada, J., Balmain, A. Stem-cell hierarchy in skin cancer. Nature Reviews. Cancer. 3 (6), 434-443 (2003).
- Bonham, K., et al. Activation of the cellular Harvey ras gene in mouse skin tumors initiated with urethane. Molecular Carcinogenesis. 2 (1), 34-39 (1989).
- Quintanilla, M., Brown, K., Ramsden, M., Balmain, A. Carcinogen-specific mutation and amplification of Ha-ras during mouse skin carcinogenesis. Nature. 322 (6074), 78-80 (1986).
- Nelson, M. A., Futscher, B. W., Kinsella, T., Wymer, J., Bowden, G. T. Detection of mutant Ha-ras genes in chemically initiated mouse skin epidermis before the development of benign tumors. Proceedings of the National Academy of Sciences of the United States of America. 89 (14), 6398-6402 (1992).
- Morris, R. J. A perspective on keratinocyte stem cells as targets for skin carcinogenesis. Differentiation. 72 (8), 381-386 (2004).
- Chung, Y. W., Kim, H. K., Kim, I. Y., Yim, M. B., Chock, P. B. Dual function of protein kinase C (PKC) in 12-O-tetradecanoylphorbol-13-acetate (TPA)-inducec manganese superoxide dismutase (MnSOD) expression: activation of CREB and FOXO3a by PKC-alpha phosphorylation and by PKC-mediated inactivation of Akt, respectively. The Journal of Biological Chemistry. 286 (34), 29681-29690 (2011).
- Su, Z., et al. Tumor promoter TPA activates Wnt/β-catenin signaling in a casein kinase 1-dependent manner. Proceedings of the National Academy of Sciences of the United States of America. 115 (32), 7522-7531 (2018).
- Swann, J. B., et al. Demonstration of inflammation-induced cancer and cancer immunoediting during primary tumorigenesis. Proceedings of the National Academy of Sciences of the United States of America. 105 (2), 652-656 (2008).
- Wang, L., Yi, T., Zhang, W., Pardoll, D. M., Yu, H. IL-17 enhances tumor development in carcinogen-induced skin cancer. Cancer Research. 70 (24), 10112-10120 (2010).
- He, D., et al. IL-17 mediated inflammation promotes tumor growth and progression in the skin. PLoS One. 7 (2), 32126(2012).
- Roussel, L., et al. IL-17 promotes p38 MAPDK-dependent endothelial activation enhancing neutrophil recruitment to sites of inflammation. Journal of Immunology. 184 (8), 4531-4537 (2010).
- Wanqiu, H., Young-Hee, J., Hyun, S. K., Byung, S. K. Interleukin-6 (IL-6) and IL-17 synergistically promote viral persistence by inhibition cellular apoptosis and cytotoxic T cell function. Journal of Virology. 88 (15), 8479-8489 (2014).
- Yusuf, N., et al. Antagonistic roles of CD4+ and CD8+ T-cells in 7,12-dimethylbenz(a)anthracene cutaneous carcinogenesis. Cancer Research. 68 (10), 3924-3930 (2008).
- Gong, L., et al. Promoting effect of neutrophils on lung tumorigenesis is mediated by CXCR2 and neutrophil elastase. Molecular Cancer. 12 (1), 154(2013).
- Vestweber, D., Wessel, F., Nottebaum, A. F. Similarities and differences in the regulation of leukocyte extravasation and vascular permeability. Seminars in Immunopathology. 36 (2), 177-192 (2014).
- Woodworth, C. D., et al. Strain-dependent differences in malignant conversion of mouse skin tumors is an inherent property of the epidermal keratinocyte. Carcinogenesis. 25 (9), 1771-1778 (2004).
- Tennenbaum, T., et al. The suprabasal expression of alpha 6 beta 4 integrin is associated with a high risk for malignant progression in mouse skin carcinogenesis. Cancer Research. 53 (20), 4803-4810 (1993).
- Hennings, H., Shores, R., Mitchell, P., Spangler, E. F., Yuspa, S. H. Induction of papillomas with a high probability of conversion to malignancy. Carcinogenesis. 6 (11), 1607-1610 (1985).
- Auto, Y., et al. Time-Series Analysis of Tumorigenesis in a Murine Skin Carcinogenesis Model. Scientific Reports. 8 (1), 12994(2018).
- Park, H., et al. Bone marrow-derived epithelial cells and hair follicle stem cells contribute to development of chronic cutaneous neoplasms. Nature Communications. 9 (1), 5293(2018).
- Reeves, M. Q., Kandyba, E., Harris, S., Del Rosario, R., Balmain, A. Multicolour lineage tracing reveals clonal dynamics of squamous carcinoma evolution from initiation to metastasis. Nature Cell Biology. 20 (6), 699-709 (2018).
- Dao, V., et al. Prevention of carcinogen and inflammation-induced dermal cancer by oral rapamycin includes reducing genetic damage. Cancer Prevention Research. 5, Philadelphia Pa. 400-409 (2015).
- Yeong, L. T., Abdul Hamid, R., Saiful Yazan, L., Khaza’ai, H., Mohtarrudin, N. Low dose triterpene-quinone fraction from Ardisia crispa root precludes chemical-induced mouse skin tumor promotion. BMC Complementary and Alternative Medicine. 15 (1), 431(2015).
- Kong, Y. H., Xu, S. P. Salidroside prevents skin carcinogenesis induced by DMBA/TPA in a mouse model through suppression of inflammation and promotion of apoptosis. Oncology Reports. 39 (6), 2513-2526 (2018).
- Jung, M., Bu, S. Y., Tak, K. H., Park, J. E., Kim, E. Anticarcinogenic effect of quercetin by inhibition of insulin-like growth factor (IGF)-1 signaling in mouse skin cancer. Nutrition Research and Practice. 7 (6), 439-445 (2013).
- Hu, Y. Q., Wang, J., Wu, J. H. Administration of resveratrol enhances cell-cycle arrest followed by apoptosis in DMBA-induced skin carcinogenesis in male Wistar rats. European review for medical and pharmacological sciences. 13, 2935-2946 (2016).
- Schweizer, J., Loehrke, H., Hesse, B., Goerttler, K. 7,12-Dimethylbenz[a]anthracene/12-O-tetradecanoyl-phorbol-13-acetate-mediated skin tumor initiation and promotion in male Sprague-Dawley rats. Carcinogenesis. 3 (7), 785-789 (1982).
- Vähätupa, M., et al. T-cell-expressed proprotein convertase FURIN inhibits DMBA/TPA-induced skin cancer development. Oncoimmunology. 5 (12), 1245266(2016).
- May, U., et al. Resistance of R-Ras knockout mice to skin tumour induction. Scientific Reports. 5, 11663(2015).
- Krajewska, M., et al. Image analysis algorithms for immunohistochemical assessment of cell death events and fibrosis in tissue sections. The Journal of Histochemistry and Cytochemistry. 57 (7), 649-663 (2009).
- Järvinen, T. A., Ruoslahti, E. Target-seeking antifibrotic compound enhances wound healing and suppresses scar formation in mice. Proceedings of the National Academy of Sciences of the United States of America. 107 (50), 21671-21676 (2010).
- Schwarz, M., Münzel, P. A., Braeuning, A. Non-melanoma skin cancer in mouse and man. Archives of Toxicology. 87 (5), 783-798 (2013).
- Slaga, T. J. SENCAR mouse skin tumorigenesis model versus other strains and stocks of mice. Environmental Health Perspectives. 68, 27-32 (1986).
- Goerttler, K., Loehrke, H., Schweizer, J., Hesse, B. Systemic two-stage carcinogenesis in the epithelium of the forestomach of mice using 7,12-dimethylbenz(a)anthracene as initiator and the phorbol ester 12-O-tetradecanoylphorbol-13-acetate as promoter. Cancer Research. 39 (4), 1293-1297 (1979).
- Topping, D. C., Nettesheim, P. Promotion-like enhancement of tracheal carcinogenesis in rats by 12-O-tetradecanoylphorbol-13-acetate. Cancer Research. 40, 4352-4355 (1980).
- Wille, J. J. Circadian rhythm of tumor promotion in the two-stage model of mouse tumorigenesis. Cancer Letters. 190 (2), 143-149 (2003).
- Lee, Y. S., et al. Inhibition of skin carcinogenesis by suppression of NF-κB dependent ITGAV and TIMP-1 expression in IL32γ overexpressed condition. Journal of Experimental & Clinical Cancer Research. 37 (1), 293(2018).
- Kiss, A., et al. Cell type-specific p38δ targeting reveals a context-, stage-, and sex-dependent regulation of skin carcinogenesis. International Journal of Molecular Sciences. 20 (7), 1532(2019).
- Tomo-o, I., et al. Positron emission tomography imaging of DMBA/TPA mouse skin multi-step tumorigenesis. Molecular Oncology. 4 (2), 119-125 (2010).
- Mantovani, A., Allavena, P., Sica, A., Balkwill, F. Cancer-related inflammation. Nature. 454 (7203), 436-444 (2008).
- Crusz, S. M., Balkwill, F. R. Inflammation and cancer: advances and new agents. Nature Reviews. Clinical Oncology. 12 (10), 584-596 (2015).
- Hennings, L., et al. Malignant conversion and metastasis of mouse skin tumors: a comparison of SENCAR and CD-1 mice. Environmental Health Perspectives. 68, 69-74 (1986).
- Gómez-Cuadrado, L., Tracey, N., Ma, R., Qian, B., Brunton, V. G. Mouse models of metastasis: progress and prospects. Disease Models & Mechanisms. 10 (9), 1061-1074 (2017).
- Ouhtit, A., Ananthaswamy, H. N. A model for UV-induction of skin cancer. Journal of Biomedicine and Biotechnology. 1 (1), 5-6 (2001).
- Day, C. -P., Marchalik, R., Merlino, G., Michael, H. T. Mouse models of UV-induced melanoma: genetics, pathology, and clinical relevance. Laboratory Investigation. 97 (6), 698-705 (2017).
Dostęp ograniczony. Zaloguj się lub rozpocznij wersję próbną, aby wyświetlić tę treść.
Przedruki i uprawnienia
