Celem tego badania było ustalenie metody badania dynamiki serca za pomocą translacyjnego modelu zwierzęcego. Opisane podejście eksperymentalne obejmuje optokardiografię podwójnej emisji w połączeniu z badaniem elektrofizjologicznym w celu oceny aktywności elektrycznej w izolowanym, nienaruszonym modelu serca świni.
Artykuł metodologiczny
Badania optokardiograficzne i elektrofizjologiczne serca perfundowanego ex vivo Langendorffem
W tym artykule
Podsumowanie
Streszczenie
Modele małych zwierząt są najczęściej wykorzystywane w badaniach sercowo-naczyniowych ze względu na dostępność genetycznie modyfikowanych gatunków i niższe koszty w porównaniu z większymi zwierzętami. Jednak większe ssaki lepiej nadają się do badań translacyjnych związanych z normalną fizjologią serca, patofizjologią i testami przedklinicznymi środków terapeutycznych. Aby przezwyciężyć bariery techniczne związane z zastosowaniem większego modelu zwierzęcego w badaniach kardiologicznych, opisujemy podejście do pomiaru parametrów fizjologicznych w izolowanym, perfundowanym metodą Langendorffa sercu prosiąt. Podejście to łączy w sobie dwa potężne narzędzia eksperymentalne do oceny stanu serca: badanie elektrofizjologii (EP) i jednoczesne mapowanie optyczne napięcia transbłonowego i wewnątrzkomórkowego wapnia przy użyciu barwników wrażliwych na parametry (RH237, Rhod2-AM). Opisane metodologie doskonale nadają się do badań translacyjnych badających układ przewodzenia serca, zmiany w morfologii potencjału czynnościowego, obchodzenie się z wapniem, sprzężenie wzbudzenie-skurcz oraz występowanie alternanów lub arytmii serca.
Wprowadzenie
Choroby układu krążenia są główną przyczyną chorób i zgonów na całym świecie. W związku z tym głównym celem badań jest optymalizacja metodologii, które można wykorzystać do badania prawidłowej fizjologii serca i podstawowych mechanizmów, które mogą przyczyniać się do zachorowalności i śmiertelności u ludzi. Podstawowe badania sercowo-naczyniowe tradycyjnie opierały się na małych modelach zwierzęcych, w tym gryzoni i królików1,2,3, ze względu na dostępność gatunków modyfikowanych genetycznie4,5, niższy koszt, mniejszy ślad eksperymentalny i większa przepustowość. Jednak zastosowanie modelu świni może potencjalnie dostarczyć bardziej istotnych klinicznie danych6. Rzeczywiście, poprzednie badania udokumentowały podobieństwa w elektrofizjologii serca (EP) między ludźmi a świniami, w tym podobne prądy jonowe7, kształt potencjału czynnościowego8 i odpowiedzi na testy farmakologiczne9. Co więcej, serce świni ma kinetykę kurczliwości i relaksacji, która jest bardziej porównywalna z ludzką niż u gryzoni czy królików10. W porównaniu z modelem psów, anatomia naczyń wieńcowych świń bardziej przypomina ludzkie serce11,12 i jest modelem z wyboru dla badań koncentrujących się na rozwoju serca, kardiologii dziecięcej i/lub wrodzonych wadach serca13. Chociaż istnieją różnice między sercem świni a ludzkim8, te podobieństwa sprawiają, że serce świni jest cennym modelem do badań sercowo-naczyniowych14.
Wsteczna perfuzja serca stała się standardowym protokołem do badania dynamiki serca ex vivo15 od czasu pierwszego ustanowienia przez Oskara Langendorffa16. W związku z tym perfuzja Langendorffa może być stosowana do podtrzymywania izolowanego, nienaruszonego serca przy braku wpływów autonomicznych. Model ten jest użytecznym narzędziem do bezpośredniego porównywania elektrofizjologii serca i kurczliwości między zdrowymi i niezdrowymi sercami. Ponieważ dynamika serca jest złożona zarówno czasowo, jak i przestrzennie, niewielka zmiana w jednym regionie może dramatycznie wpłynąć na zdolność całego serca do pracy jako syncytium17. W związku z tym obrazowanie barwników wrażliwych na parametry w czasie przestrzennym jest użytecznym narzędziem do monitorowania funkcji serca na całej powierzchni serca18,19. Rzeczywiście, jednoczesne podwójne obrazowanie napięciowych i wrażliwych na wapń sond fluorescencyjnych pozwala na ocenę aktywności elektrycznej, obchodzenia się z wapniem i sprzężenia wzbudzenie-skurcz na poziomie tkanki20,21,22,23,24,25,26,27,28. Techniki perfuzji Langendorffa i/lub mapowania optycznego były wcześniej wykorzystywane do dokumentowania spadku wydolności serca spowodowanego starzeniem się lub mutacjami genetycznymi oraz do oceny bezpieczeństwa środków farmakologicznych lub ekspozycji środowiskowych29,30,31,32,33.
W warunkach klinicznych, inwazyjne badanie elektrofizjologii serca jest często wykorzystywane do badania zaburzeń rytmu serca, identyfikacji patologii i wskazania możliwych opcji leczenia. Podobnie opisujemy protokół EP, który można wykorzystać do oceny funkcji węzła zatokowego, pomiaru przewodnictwa przedsionkowo-komorowego i identyfikacji ogniotrwałości tkanki mięśnia sercowego. Opisane badanie EP może być przeprowadzone w połączeniu z mapowaniem optycznym lub optokardiografią34, aby w pełni scharakteryzować fizjologię serca w izolowanych sercach. W opisanym protokole obrazowanie fluorescencyjne o wysokiej rozdzielczości czasoprzestrzennej wykonano za pomocą kombinacji barwników napięciowych (RH237) i wapniowych (Rhod-2AM) w układzie podwójnej emisji. Dodatkowo monitorowano parametry elektrofizjologii serca zarówno w rytmie zatokowym, jak i w odpowiedzi na zaprogramowaną stymulację elektryczną.
Protokół
Wszystkie eksperymenty zostały przeprowadzone zgodnie z Przewodnikiem National Institutes of Health dotyczącym opieki i użytkowania zwierząt laboratoryjnych (wydanie ósme). Wszystkie metody i protokoły stosowane w tych badaniach zostały zatwierdzone przez Instytucjonalny Komitet ds. Protokołu Opieki nad Zwierzętami i Użytkowania w Narodowym Szpitalu Dziecięcym zgodnie z wytycznymi dotyczącymi opieki i wykorzystania zwierząt laboratoryjnych opublikowanymi przez NIH. Wszystkie zwierzęta wykorzystane w tym badaniu otrzymały humanitarną opiekę zgodnie z Przewodnikiem dotyczącym opieki nad zwierzętami laboratoryjnymi i ich wykorzystywania.
1. Przygotowanie
- Przygotować 6 l zmodyfikowanego roztworu Krebsa-Henseleit16 (mM: 118,0 NaCl, 3,3 KCl, 1,2MgSO4, 24,0NaHCO3, 1,2 KH2PO4, 10,0 glukoza, 2,0 pirogronian sodu, 2% albumina, 2,0 CaCl2). Dodaj CaCl2 w dniu eksperymentu, ponieważ z biegiem czasu, w obecności fosforanów, chlorek wapnia ostatecznie wytrąci się z roztworu jako fosforan wapnia.
- Dostosuj pH do 7,4 po sterylnym przefiltrowaniu (wielkość porów: 0,22 μm). Sprawdź osmolalność roztworu, aby zapewnić zakres 275−310 mOsm/kg. Schłodzić 1 l na lodzie do użycia natychmiast po wycięciu serca. Podgrzać 3 l w łaźni wodnej do temperatury około 37 °C, a następnie zabulgotać karbogenem (95%O2, 5% CO2).
nuta: Ocieplenie minimalizuje pęcherzyki i potencjalny zator, ponieważ zimna ciecz ma zwiększoną zdolność rozpuszczania się gazu; w związku z tym, gdy zmodyfikowane podłoże Krebsa-Henseleita przechodzi przez system perfuzyjny i ogrzewa się, gaz zostanie uwolniony w postaci pęcherzyków. - Przygotować 2 litry kardioplegii (zmodyfikowany roztwór kardioplegii del Nido, tabela 1). Zamroź wystarczającą ilość kardioplegii w tacce na kostki lodu, aby napełnić zlewkę o pojemności 500 ml.
- Włączyć łaźnie wodne obiegowe ustawione na 42 °C. Włączyć pompy, aby perfuzat krążył w zamkniętej wodnej pętli grzewczej (pełna lista materiałów znajduje się w Tabeli Materiałów i Rysunek 1).
nuta: Podgrzewana kąpiel wodna obiegowa służy do ogrzewania rur i wymienników ciepła z płaszczem wodnym. - Oczyścić obwody i komory przewodów, przepuszczając przez system 2 litry 1% roztworu uniwersalnego detergentu w wodzie. Przepłukać wszystkie obwody i komory przewodów systemu Langendorff >4 l oczyszczonej wody. Uruchom pompy, aż cała woda zostanie usunięta z systemu.
- Dodać syntetyczny filtr membranowy w linii z pompami perfuzyjnymi (filtr polipropylenowy, wielkość porów >5 μm). Gazować natleniacz z mikrofibry (hemofiltr) o zawartości 95%O2 i 5% CO2 przy 80 kPa.
nuta: Podczas stosowania albuminy często dochodzi do pienienia się związanego z natlenieniem i/lub aktywnością pompowania przez obwód rurki. Związek przeciwpieniący (emulsja przeciwpieniąca Y30) może być okresowo dodawany kroplami (~ co 30 minut), aby ugasić go w miarę występowania. - Sprawdź kalibrację dwupunktową (0 i 60 mmHg) dla czujnika ciśnienia znajdującego się nad aortą lub w pułapce pęcherzykowej; skalibruj w razie potrzeby.
- Bezpośrednio przed wycięciem serca wlej pożywkę do systemu perfuzji pętli Langendorffa. Upewnij się, że perfuzat przechodzi przez natleniacze z mikrofibry (hemofiltry) zagazowane natlenionym perfuzatem, który następnie przepływa przez wymienniki ciepła w celu utrzymania temperatury perfuzatu mediów wynoszącej 37 °C w aorcie.
- Ustaw łaźnię z obiegową wodą na kilka stopni wyższą niż 37 °C, na przykład 42 °C, aby uwzględnić straty ciepła podczas wymiany i w całym systemie. Monitorować temperaturę krążącego perfuzatu za pomocą termopar.
2. Wycięcie serca i perfuzja Langendorffa
- Uspokoić świnię domięśniowym (IM) wstrzyknięciem ketaminy (20 mg/kg) i ksylazyny (2 mg/kg) i zaintubować rurką dotchawiczą. W celu indukcji należy podać dożylnie (dożylnie) wstrzyknięcie dożylne fentanylu (50 μg/kg) i rokuronium (1 mg/kg). Utrzymuj znieczulenie wziewnym izofluranem (0,5-3%), fentanylem (10-25 μg/kg) i pankuronium (1 mg/kg).
nuta: Do tego badania wykorzystano młode świnie Yorkshire (14−42 dni, n = 18) o masie ciała od 2,5−10,5 kg masy ciała do 18−137 g masy serca (Ryc. 2). Jeśli konieczne jest dodatkowe wstrzyknięcie w celu indukcji, ketaminę (10 mg/kg) można wstrzyknąć domięśniowo. - Gdy zwierzę jest całkowicie znieczulone i nie reaguje, wykonaj sternotomię, aby odsłonić aortę wstępującą i prawy przedsionek.
- Za pomocą skalpela wykonaj nacięcie w linii środkowej od szczytu mostka przy wlocie klatki piersiowej, aż do wyrostka mieczykowatego. Za pomocą kauteryzacji (lub nożyczek) wypreparuj leżący pod spodem tłuszcz i mięśnie, aż mostek będzie widoczny.
- Od wyrostka mieczykowatego przeciąć linię środkową mostka przez manubrium za pomocą chirurgicznych nożyczek do kości lub piły do kości. Włóż retraktory do nacięcia, aby odsłonić serce.
- Dostarczyć dobolus dawki heparyny (300 j./kg) do prawego przedsionka za pomocą igły i strzykawki 18 G, aby zminimalizować zakrzepy po wycięciu narządu. Umieść chłonne wkładki w klatce piersiowej i lód wokół serca.
- Nożyczkami ostrożnie przeciąć osierdzie, odizolować aortę wypreparowaniem z otaczającej tkanki łącznej i zacisnąć aortę tuż poniżej pierwszej gałęzi tętniczej na łuku aorty. Za pomocą strzykawki o pojemności 50 ml z igłą 18 G wstrzyknąć lodowatą kardioplegię (20 ml / kg) przez górną część aorty wstępującej.
- Przeciąć naczynia prowadzące do serca i usunąć serce z nienaruszoną aortą wstępującą i zanurzyć wycięte serce w lodowatej kardioplegii.
- Chwyć ściany aorty parą hemostatów i wsuń ją na żebrowaną kaniulę przymocowaną do rurki prowadzącej do 1 litra lodowatej kardioplegii pośredniej zawieszonej nad sercem (~95 cm, aby zapewnić ~70 mm Hg). Pozwól, aby płyn dostał się do aorty i wypełnił ją, aż się przeleje, aby zapobiec przedostawaniu się pęcherzyków do układu krwionośnego.
nuta: Zastosowanie mechanicznego rozprzęgacza (monoksymu 2,3-butanodionu [BDM] lub blebbistatyny) zmniejszy szybkość perfuzji wieńcowej wraz ze spadkiem zapotrzebowania tkanki na tlen. - Przymocuj aortę do kaniuli za pomocą taśmy pępowinowej i dalej ją zakotwicź, wiążąc hemostatyki, aby udźwignąć ciężar serca, które teraz zwisa z kaniuli (Rysunek 1C). Pozwól, aby zimne media cofnęły się, aby perfundować serce pod stałym ciśnieniem 70 mmHg za pomocą grawitacji. Utrzymuj serce zanurzone w zimnej kardioplegii, aż będzie gotowe do przeniesienia do rozgrzanego (37 °C) systemu perfuzji Langendorffa (<10 min).
nuta: Aorta na mniejszych sercach (<50 g, do 2 tygodniowej świni) wytrzyma ciężar serca, ale większe serca są narażone na ryzyko zsunięcia się z kaniuli. Podczas początkowej kaniulacji i podczas przemieszczania się do rozgrzanego układu należy zapobiegać przedostawaniu się powietrza do aorty, co może spowodować zatorowość wieńcową. Użyj rurki o dużym otworze (średnica wewnętrzna >3/8"), która pozwala pęcherzykom unosić się szybciej niż roztwór wchodzący do aorty. - Przenieść serce do systemu Langendorffa (37 °C) bez wprowadzania powietrza do kaniuli. Pozwól, aby normalny rytm zatokowy wypłukał układ krwionośny z pozostałej krwi i kardioplegii.
nuta: W opisywanym badaniu zaobserwowano średnie początkowe natężenie przepływu wynoszące 184 ± 17 ml/min w izolowanych sercach młodych prosiąt. Natężenie przepływu spadło do 70 ± 7,5 ml/min (średnio ± SEM) po perfuzji z podgrzanym medium zawierającym mechaniczny rozprzęgacz (20 mM BDM). Nie zanurzaj tkanki serca, ponieważ może to wpływać na obrazowanie serca. Temperatura tkanek jest utrzymywana przez przepływ wieńcowy w sercu świni ze względu na jego większą objętość i mniejszą powierzchnię w porównaniu z gryzoniami. Przy pełnym przepływie temperatura nasierdzia i wsierdzia wahała się odpowiednio od 35 °C do 37 °C.
ostrożność: Podczas pracy z rozłącznikami mechanicznymi należy nosić odpowiednie środki ochrony osobistej, w tym okulary. Serce może szybko i niespodziewanie wyrzucać pożywkę. - Defibrylacja serca w przypadku wstrząsowych arytmii (częstoskurcz komorowy, migotanie komór) poprzez umieszczenie zewnętrznych łopatek na wierzchołku i podstawie serca i dostarczenie pojedynczego wstrząsu o wartości 5 J, zwiększając się w krokach co 5 J (lub zgodnie z wyborem defibrylatora) do 50 J, kardiowersji lub rytmu niewstrząsowego. W razie potrzeby powtórz wstrząsy przy 50 J.
nuta: W prezentowanym badaniu 89% preparatów wymagało defibrylacji. Po zrównoważeniu (~10 min) zaobserwowano średnie tętno wynoszące 70 ± 4,5 bpm (średnia ± SEM) dla serc młodych prosiąt (Ryc. 2). - Przepłukać serce co najmniej 1 litrem zmodyfikowanej pożywki Krebsa-Henseleita, bez recyrkulacji, w celu usunięcia resztek krwi i kardioplegii. Gdy pożywka przepłynie przez serce, zamknij pętlę krążącą, aby ponownie wprowadzić perfuzat.
3. Badanie elektrofizjologii
- Aby zarejestrować standardowy elektrokardiogram (EKG) odprowadzeniowy II w trakcie badania, należy przymocować elektrodę igłową 29 G do nasierdzia komorowego w pobliżu wierzchołka, z drugą elektrodą w prawym przedsionku. Podłącz dodatnie i ujemne wejścia biowzmacniacza różnicowego odpowiednio do wierzchołka i prawego przedsionka.
- Podłącz jedną bipolarną elektrodę bodźcową do prawego przedsionka, a drugą bipolarną elektrodę bodźcową do bocznej lewej komory w celu stymulacji.
- Stymuluj pracę serca za pomocą stymulatora elektrofizjologii, z prądem początkowym ustawionym na dwukrotność progu rozkurczowego (1−2 mA) i szerokością impulsu 1 ms35,36.
nuta: Jeśli stymulacja nie wywoła odpowiedzi, szerokość impulsu może zostać zwiększona do 2 ms. Potrzebny jest większy prąd (~10x) przy dużych elektrodach współosiowych (stymulacja bipolarna). - Zidentyfikuj próg stymulacji, stosując serię impulsów bodźca (1−2 mA, szerokość impulsu 1 ms) o określonej długości cyklu stymulacji (PCL), aby zapewnić spójną reakcję na bodziec.
nuta: Po ustaleniu współczynnika wewnętrznego początkowy ciąg impulsów może rozpocząć się przy nieco krótszym PCL. - Wykonuj stymulację pozabodźcową za pomocą ciągu stymulacji S1−S1 lub S1−S2, w tym ostatnim ciągu 6−8 impulsów (S1) następował pojedynczy impuls (S2). Zmniejszaj S2 PCL stopniowo o 10 ms (tj. 200 ms, 190 ms, 180 ms itd.), aż nie uda się go przechwycić. Przejdź do przedostatniego PCL (tj. 190 ms) i zmniejszaj w odstępach 1 ms, aby znaleźć najbardziej precyzyjny PCL przed utratą wychwytywania (tj. 184 ms).
UWAGA: Te same parametry stymulacji są stosowane zarówno dla S1, jak i S2 (1−2 mA, szerokość impulsu 1 ms). Zobacz Rysunek 3 dla reprezentatywnych przykładów lub poprzednio opublikowanych wartości pomiarów elektrofizjologii serca świń37.- Aby ustalić efektywny okres refrakcji komorowej (VERP), użyj elektrody stymulującej na bocznej lewej komorze, aby zidentyfikować najkrótszy interwał S1−S2, w którym S2 (przedwczesne uderzenie) inicjuje depolaryzację komór.
nuta: Okres refrakcji jest najkrótszym osiągalnym interwałem sprzęgania S1−S2. - Aby określić długość cyklu Wenckebacha (WBCL), użyj elektrody stymulującej na prawym przedsionku, aby znaleźć najkrótszy przedział S1−S1, w którym przewodnictwo przedsionkowo-komorowe 1:1 rozchodzi się normalną ścieżką przewodzenia.
nuta: Niezastosowanie się do tego oznacza blok serca 2 stopnia. - Aby określić czas regeneracji węzła zatokowego (SNRT), użyj elektrody stymulującej na prawym przedsionku, aby zastosować ciąg stymulacji (S1−S1) i zmierzyć opóźnienie czasowe między ostatnim impulsem w pociągu stymulacyjnym a odzyskaniem spontanicznej aktywności węzła zatokowo-przedsionkowego.
- Aby ustalić efektywny okres refrakcji węzła przedsionkowo-komorowego (AVNERP), użyj elektrody stymulującej na prawym przedsionku, aby znaleźć najkrótszy interwał sprzężenia S1-S2, w którym po przedwczesnej stymulacji przedsionków następuje potencjał pęczka His, który wywołuje zespół QRS, co oznacza depolaryzację komór.
- Aby ustalić efektywny okres refrakcji komorowej (VERP), użyj elektrody stymulującej na bocznej lewej komorze, aby zidentyfikować najkrótszy interwał S1−S2, w którym S2 (przedwczesne uderzenie) inicjuje depolaryzację komór.
4. Optyczne mapowanie napięcia transbłonowego i wewnątrzkomórkowego wapnia
UWAGA: Mechaniczny rozłączacz powinien być używany w celu zminimalizowania artefaktów ruchu podczas mapowania optycznego i uniknięcia niedotlenienia3,38,39,40. (-/-)Blebbistatyna (stężenie 5 μM w krążeniu) może być dodawana powoli w postaci dawki bolusa 0,5 mM w 5 ml perfuzatu (100x stężenia końcowego)41. Alternatywnie, BDM może być początkowo włączony do pożywki perfuzyjnej w stężeniu krążącym 20 mM.
- Przygotować barwnik napięciowy, rozpuszczając 5 mg RH237 w 4 ml bezwodnego DMSO. Rozcieńczyć podwielokrotność barwnika w objętości do 5 ml pożywki i odwirować. Powoli dodawać RH237 (62,1 μg na 500 ml perfuzatu) proksymalnie do kaniuli aortalnej.
nuta: Tkanka mięśnia sercowego może być ponownie zabarwiona RH237, jeśli to konieczne, przez cały czas trwania eksperymentu. - Przygotować barwnik wapniowy, rozpuszczając 1 mg Rhod2-AM w 1 ml bezwodnego DMSO. Wymieszać barwnik z 50 μl kwasu pluronowego, umieścić w kąpieli sonikacyjnej o temperaturze 37 °C na okres do 10 minut, a następnie rozcieńczyć do 5 ml pożywki. Powoli dodawać barwnik wapniowy (50 μg na 500 ml perfuzatu) proksymalnie do kaniuli aortalnej.
nuta: Aby zapewnić równomierne barwienie barwnikiem, barwniki należy dodawać powoli (>30 s). Rhod-2AM potrzebuje do 10 minut, aby osiągnąć szczytową fluorescencję, podczas gdy RH237 barwi serce w ciągu 1-2 minut. Korzystając z opisanego obciążenia barwnikiem, można oczekiwać zakresów stosunku sygnału do szumu (SNR) wynoszących ~42−86 i ~35−69 odpowiednio dla napięcia i wapnia. Wartości SNR można obliczyć jako SNR = (Peak-to-Peak counts)/(Odchylenie standardowe w okresie rozkurczowym)42. - Ustaw sprzęt do przetwarzania obrazu (kamerę, rozdzielacz obrazu, obiektyw) tak, jak pokazano na Rysunek 1, aby ustawić ostrość na odpowiednim polu widzenia.
nuta: Splitter jest skonfigurowany ze zwierciadłem dichroicznym (660+ nm), które przechodzi przez RH237 i odbija widma emisyjne Rhod2. Filtry emisyjne o wysokiej transmisji są stosowane do światła emitowanego przez RH237 (710 nm long pass) i Rhod2 (585 ± 40 nm) emitowanego światła (long pass ET710, patrz tabela materiałów). Obiektyw o szerokiej źrenicy 50 mm/F0,95l jest przymocowany z przodu rozdzielacza obrazu. Ta konfiguracja zapewnia odpowiednią separację światła emisyjnego, zgodnie z wcześniejszymi ustaleniami43,44. - Podłącz kamerę do stacji roboczej i rejestruj obrazy za pomocą wybranego oprogramowania, z czasem naświetlania 0,5−2 ms. Wykonaj wyrównanie obrazu za pomocą oprogramowania, które może podzielić żądane obszary, nałożyć i wyświetlić odejmowanie w skali szarości lub dodawanie pseudokolorów w celu podkreślenia niewspółosiowości (patrz Tabela materiałów dla opcji oprogramowania).
- Wyłącz światło w pomieszczeniu, aby zminimalizować zakłócenia fluorescencji spowodowane oświetleniem otoczenia. Przetestuj światła LED (525 nm, 1,4 mW/mm2) przed rozpoczęciem obrazowania, aby zapewnić równomierne i maksymalne oświetlenie nasierdzia, zgodnie z głębokością dołka czujnika.
nuta: Każde światło kierowane jest przez filtr wzbudzenia (535 ± 25 nm). Światła LED mogą być uruchamiane ręcznie przed filmowaniem, aby zmaksymalizować liniowość sygnału. Emitowana fluorescencja z nasierdzia przepuszczana jest przez rozdzielacz obrazu i filtry emisyjne. Podzielone obrazy są rzutowane na szybką matrycę. Pole widzenia wynosi około 12 cm x 10 cm lub 5,9 cm x 4,7 cm dla każdego podzielonego obrazu, w zależności od wybranego obiektywu i odległości od serca. - W przypadku badań mapowania optycznego zobrazuj mięsień sercowy podczas rytmu zatokowego, migotania komór (Ryc. 4) lub dynamicznej stymulacji (S1−S1, 1−2 mA, szerokość impulsu 1 ms) za pomocą elektrody stymulacyjnej umieszczonej na lewej komorze (Ryc. 5). Rozpocznij od długości cyklu stymulacji 350 ms i zmniejszaj o 10−50 ms, aby wygenerować krzywe restytucji (Rysunek 5E)35,36.
5. Sprzątanie
- Usunąć serce z systemu i spuścić cały perfuzat. Przepłucz przewody i komory układu oczyszczoną wodą.
- W celu rutynowej konserwacji należy okresowo płukać system roztworem detergentu lub rozcieńczonym roztworem nadtlenku wodoru, w zależności od potrzeb.
6. Przetwarzanie danych
- Potwierdź jakość sygnału optycznego przez cały czas trwania badania, otwierając plik wideo, wybierając obszar zainteresowania i wykreślając średnią fluorescencję w czasie za pomocą odpowiedniego pakietu oprogramowania lub niestandardowego algorytmu.
- Analizuj dane obrazowania zgodnie z wcześniejszym opisem23,33,43,45,46, aby określić ilościowo potencjał czynnościowy i parametry czasowe przejściowe wapnia, w tym czas aktywacji, czas sprzężenia napięcie-wapń (różnica między czasami aktywacji Vm i Ca) oraz pomiary czasu trwania repolaryzacji.
- Zastosuj progowanie, aby wyizolować fluorescencyjne piksele nasierdzia i odrzucić zaszumione dane tła.
nuta: Progowanie uprości i przyspieszy analizę dużych filmów. - Przestrzennie filtruj sygnały optyczne na powierzchni nasierdzia o rozmiarach ziaren od 3 mm x 3 mm do 5 mm x 5 mm, jak widać na Rysunek 4 i Rysunek 5.
nuta: To ostatnie poprawi SNR bez zniekształcania cech potencjału czynnościowego, morfologii przejściowej wapnia lub ogólnego konturu czoła fal19,47. Może to być niepotrzebne w przypadku korzystania z czujnika z dużymi pikselami lub w przypadku łączenia w grupy podczas akwizycji. - Filtruj czasowo sygnały za pomocą cyfrowego filtra dolnoprzepustowego (np. Butterwortha 5. rzędu) z częstotliwością odcięcia od 100 do 75 Hz, aby wyeliminować nieistotną zawartość sygnału45.
nuta: Zobacz Rysunek 5C dla przykładu reprezentatywnych przetworzonych śladów. - Zastosuj usuwanie dryfu i odejmowanie za pomocą dopasowania wielomianu N-tego rzędu, aby zminimalizować skutki fotowybielania, ruchu lub innych znaczących źródeł zmienności.
- Po przetworzeniu i znormalizowaniu danych optycznych w całym filmie oblicz potencjał czynnościowy i interesujące Cię parametry przejściowe wapnia. Określ czas aktywacji, zdefiniowany jako czas maksymalnej pochodnej podczas depolaryzacji, oraz pik fluorescencji w celu obliczenia procentowych czasów i okresów repolaryzacji (czas trwania potencjału czynnościowego [APD] i [Ca2+] i czas trwania [CaD], patrz Rysunek 5).
- Po obliczeniu parametrów czasowych wygeneruj mapy izoochronne, aby zobrazować aspekty pojedynczego potencjału czynnościowego lub stanu przejściowego wapnia na całej obrazowanej powierzchni nasierdzia za pomocą niestandardowych algorytmów23,33,43,45,46.
nuta: Zobacz Rysunek 5D dla przykładu.
- Zastosuj progowanie, aby wyizolować fluorescencyjne piksele nasierdzia i odrzucić zaszumione dane tła.
Wyniki
Rysunek 1A przedstawia schemat systemu perfuzji izolowanego serca, który obejmuje obwód rurek, pompę, filtr, oksygenator, zbiorniki oraz elementy grzejne. Rozmieszczenie elektrod EKG (konfiguracja odprowadzenia II) i elektrod stymulujących pokazano na Rysunku 1B, a układ obrazowania przedstawiono na Rysunku 1C. Schemat komponentów optycznych i dróg światła pokazano na Rysunku 1D.
Badania eksperymentalne przeprowadzono na nienaruszonych, całych sercach izolowanych od młodych świń rasy Yorkshire (14–42 dni, n = 18), których masa ciała wynosiła od 2,5 do 10,5 kg, a masa serca od 18 do 137 g (Rycina 2A). Po przeniesieniu izolowanego serca do systemu Langendorffa (37 °C), częstość akcji serca ustabilizowała się na poziomie 70 ± 4,5 bpm (średnia ± SEM) w ciągu około 10 min od defibrylacji i pozostawała stała przez cały czas trwania badania (Rycina 2B). Zmierzono średni przepływ na poziomie 184 ± 17 mL/min (średnia ± SEM), który spadł do 70 ± 7,5 mL/min po perfuzji ogrzanym medium zawierającym mechaniczny rozsprzęgacz (Rycina 2C).
Przez cały czas trwania badania rejestrowano EKG w odprowadzeniu II podczas rytmu zatokowego (Rysunek 3A) lub w odpowiedzi na stymulację zewnętrzną (Rysunek 3B-E) w celu ilościowego określenia parametrów elektrofizjologicznych. Do oceny EP zastosowano dynamiczną stymulację (S1−S1) prawego przedsionka, aby wyznaczyć WBCL oraz SNRT (czas regeneracji po rozpoczęciu S1−S1, Rysunek 3C), gdzie WBCL określono jako najkrótszy PCL inicjujący przewodzenie przedsionkowo-komorowe. W celu zidentyfikowania najkrótszego odstępu sprzężenia inicjującego depolaryzację komór, a tym samym wyznaczenia VERP (Rysunek 3D), wdrożono protokół stymulacji S1−S2 przy użyciu bipolarnej elektrody stymulującej w lewej komorze. Alternatywnie, protokół stymulacji przedsionkowej S1−S2 jest stosowany do wyznaczenia AVNERP (S1−S2), jak pokazano na Rysunku 3E. Reprezentatywne przykłady parametrów elektrofizjologicznych serca świni są zgodne z wcześniej opublikowanymi danymi37.
Eksperymenty z mapowania optycznego przeprowadzono podczas rytmu zatokowego, spontanicznego migotania komór (Rycina 4) lub podczas dynamicznego stymulowania (S1−S1) lewej komory (LV), aby wygenerować krzywe restytucji elektrycznej i wapniowej przedstawione na Rycini 5. Reprezentatywne obrazy serca prosięcia obciążonego barwnikiem przedstawiono na Rycini 4 wraz z odpowiadającymi im optycznymi potencjałami czynnościowymi (Vm) i przejściami wapniowymi (Ca) zebranymi z dwóch obszarów zainteresowania na powierzchni epicardium (prawa komora [RV] = niebieski, LV = czerwony). Nieprzetworzone sygnały wyświetlono dla rytmu zatokowego oraz dla migotania komór. Jak wspomniano wcześniej, podczas eksperymentów z mapowania optycznego zastosowano również dynamiczne stymulowanie epicardium (S1−S1), aby zniwelować wszelkie niewielkie różnice w wrodzonej częstotliwości akcji serca (Rycina 5A-E). Wyświetlono surowe sygnały (RV = niebieski, LV = czerwony), które posłużyły do przedstawienia czasu sprzężenia potencjału czynnościowego i przejścia wapniowego (Rycina 5C), czasu aktywacji i trwania (Rycina 5D) oraz restytucji elektrycznej i wapniowej (Rycina 5E). W przypadku grubych preparatów mięśnia sercowego do analizy potencjałów czynnościowych lub przejść wapniowych epicardium odpowiednie jest filtrowanie przestrzenne z rozmiarem jądra ~3 mm x 3 mm19,47. W związku z tym obrazy o wysokiej rozdzielczości przestrzennej (w opisanym układzie łącznie 1240 x 1024 lub 620 x 512 na kanał, rozmiar piksela 6,5 µm) są często poddawane binowaniu przestrzennemu w trakcie lub po akwizycji (Rycina 5C). Przetwarzanie obrazu może być wykonane w celu wygenerowania map aktywacji i repolaryzacji przy użyciu niestandardowych algorytmów23,3,43,45 (Rycina 3D), przy czym czas aktywacji każdego piksela w sercu zdefiniowano jako maksymalną pochodną fazy wzrostowej potencjału czynnościowego lub przejścia wapniowego.
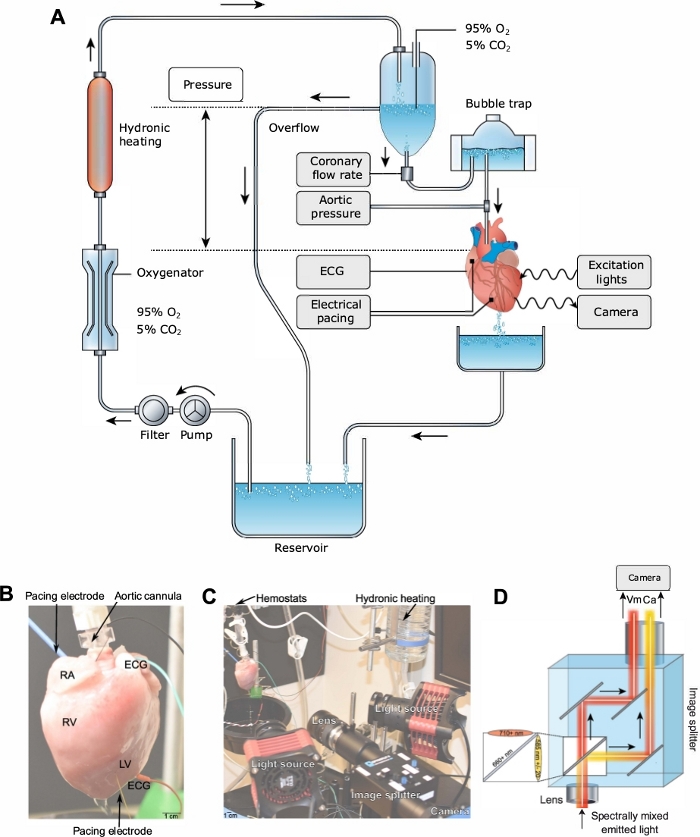
Rysunek 1: Układ doświadczalny. (A) Schemat systemu perfuzji izolowanego serca; strzałki wskazują kierunek przepływu. (B) Przedstawiono kaniulowane serce z rozmieszczeniem elektrod. RA = prawy przedsionek, RV = prawa komora, LV = lewa komora, ECG = elektrokardiogram w odprowadzeniu II. (C) Platforma obrazująca w bliskim sąsiedztwie tkanki serca. (D) Emisja każdej z sond komplementarnych (napięcia, wapnia) jest rozdzielana według długości fali za pomocą urządzenia do rozdzielania obrazu z odpowiednimi filtrami emisyjnymi i lustrem dichroicznym. Aby wyświetlić powiększoną wersję tej ryciny, należy kliknąć tutaj.
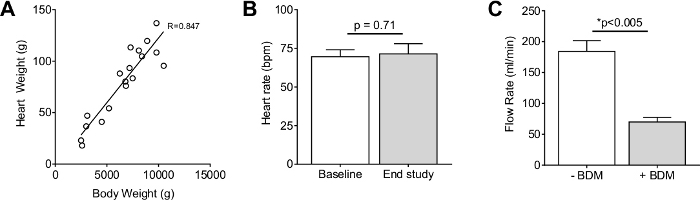
Rysunek 2: Pomiary masy serca, tętna i przepływu. (A) Stosunek masy serca do masy ciała dla każdego prosięcia wykorzystanego w badaniu (n = 18). (B) Częstość akcji serca mierzono około 10 min po defibrylacji oraz ponownie na koniec badania (około 1 h). (CPrzepływ wieńcowy gwałtownie spada po perfuzji mechanicznym rozsprzęgaczem (+BDM) z powodu zmniejszonego zapotrzebowania na tlen. Paski skali reprezentują średnią ± SEM. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej figury.
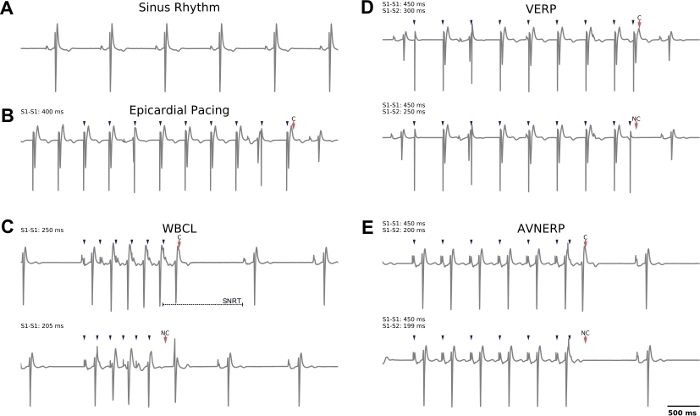
Rysunek 3: Reprezentatywne przykłady zapisów elektrokardiograficznych z odprowadzenia II, zarejestrowane podczas rytmu zatokowego lub w odpowiedzi na stymulację zewnętrzną. (A) Rytm zatokowy. (B) Przykład stymulacji nadsercowej przy długości cyklu 40 ms (S1−S1), która została zastosowana w eksperymentach obrazowych. (C) Góra: Stymulacja przedsionkowa w celu identyfikacji WBCL; zaobserwowano skuteczne przechwycenie przy S1 = 250 ms, przy którym występuje przewodzenie z przedsionka do komory. Należy pamiętać, że stymulacja przedsionkowa może być wykorzystana do wyznaczenia SNRT (czasu do wyładowania węzła zatokowego po rozpoczęciu stymulacji zewnętrznej). Dół: Po skróceniu cyklu S1 do 205 ms przewodzenie do komory zostaje przerwane. (DGóra: Stymulacja epikardialna (S1−S2) w celu zidentyfikowania VERP; obserwuje się skuteczne przechwycenie przy S1 = 450 ms, S2 = 300 ms. Dół: Wraz ze skróceniem cyklu S2 do 250 ms, tkanka komór przestaje być przechwytywana.E) Stymulacja przedsionkowa (S1−S2) w celu identyfikacji AVNERP. Góra: Obserwowany jest skuteczny zapłon przy S1 = 450 ms, S2 = 20 ms. Dół: Wraz ze skróceniem cyklu S2 do 19 ms przewodzenie do komory zostaje przerwane. Niebieskie strzałki oznaczają impulsy stymulujące, czerwone strzałki oznaczają zapłon („C”) lub brak zapłonu („NC”). S1−S1 = stymulacja dynamiczna, S1−S2 = stymulacja dodatkowym impulsem (extrastimulus). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
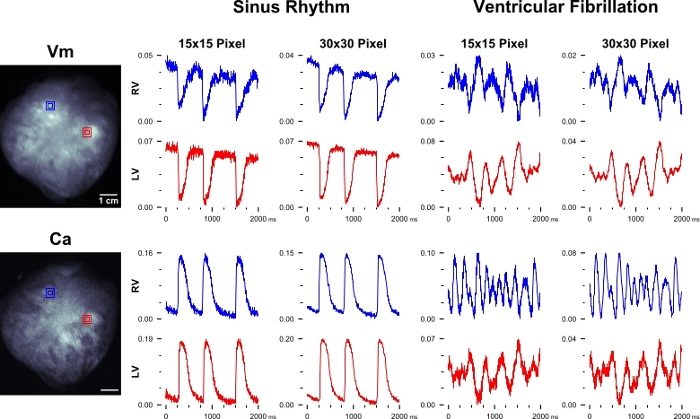
Rysunek 4: Dane optyczne podczas rytmu zatokowego i migotania komór. Po lewej: Reprezentatywne obrazy serca świni obciążonego barwnikami (Vm = napięcie, RH237; Ca = wapń, Rhod2), widok przedni. Przefiltrowane przestrzennie sygnały fluorescencyjne napięcia błony komórkowej i wewnątrzkomórkowego wapnia z serca świni podczas rytmu zatokowego (Środek). Sygnały napięcia i wapnia podczas migotania komór (Prawo). Rozmiary regionów sygnału (15 x 15 pikseli = 2,4 x 2,4 mm)2, 30 x 30 = 4,8 x 4,8 mm2 rozmiar jądra) przedstawiony w formie czerwonych i niebieskich kwadratów. Jednostki = ΔF/F. Kliknij tutaj, aby wyświetlić powiększoną wersję tej figury.
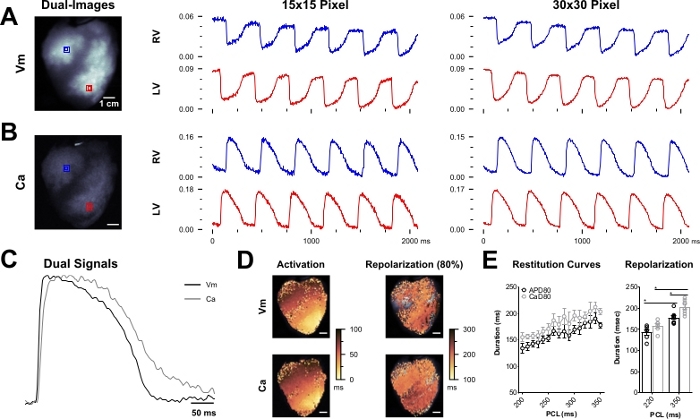
Rycina 5: Dane optyczne z perfundowanych w układzie Langendorffa serc świń. Niezpracowany, przefiltrowany przestrzennie (A) napięcie błonowe i (B) sygnały fluorescencji wapnia wewnątrzkomórkowego z prawej i lewej komory podczas stymulacji elektrycznej wierzchołka. Niefiltrowane, uśrednione przestrzennie sygnały przedstawiają optyczne potencjały czynnościowe i przejściowe zmiany stężenia wapnia w wybranych obszarach zainteresowania (jednostki sygnału to ΔF/F). (C) Nałożenie znormalizowanych stanów przejściowych ilustruje czas sprzężenia potencjału czynnościowego ze stanem przejściowym wapnia (przefiltrowane filtrem dolnoprzepustowym przy 75 Hz). (DPrzetwarzanie sygnałów z całej powierzchni epikardium w celu wygenerowania map izochronicznych parametrów czasowych, w tym czasu aktywacji (tDziałanie) i czasie repolaryzacji 80%. (EKrzywe przywracania stanu równowagi dla transjentów elektrycznych i wapniowych wygenerowane dla wielu częstotliwości (lewo) wraz z analizą statystyczną (prawo), obrazujące dłuższy czas repolaryzacji przy wolniejszych cyklach stymulacji. Paski skali = średnia ± SEM. Prosimy kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
| Odczynnik chemiczny | Wzór | Masa cząsteczkowa | g/L |
| Chlorek sodu | NaCl | 58.4 | 5.26 |
| Gluconian sodu | C6H1NaO7 | 218.14 | 5.02 |
| Octan sodu trihydrat | C2H3NaO2•3H2O | 136.08 | 3.68 |
| Chlorek potasu | KCl | 74.5 | 0.63 |
| Chlorek magnezu (bezwodny) | MgCl2 | 95.21 | 0.1405 |
| 8.4% wodorowęglan sodu | NaHCO3 | 84.01 | 13 |
| Mannitol | C6H14O6 | 182.17 | 16.3 |
| Siarczan magnezu | MgSO4 | 120.37 | 4 |
| pH | 7.4 | ||
| Osmolarność (mOsmol/L) | 294 |
Tabela 1: Zmodyfikowany skład kardioplegii del Nido.
Dyskusja
Chociaż modele badań sercowo-naczyniowych obejmują zarówno preparaty komórkowe, jak i preparaty in vivo, istnieje nieodłączny kompromis między znaczeniem klinicznym a użytecznością eksperymentalną. W tym spektrum izolowane serce perfundowane Langendorffem pozostaje użytecznym kompromisem w badaniu fizjologii serca48. Cały model serca reprezentuje wyższy poziom integracji funkcjonalnej i strukturalnej niż monowarstwy pojedynczej komórki lub tkanki, ale także pozwala uniknąć mylących zawiłości związanych z modelami in vivo. Główną zaletą eksperymentów z podwójnym mapowaniem optycznym jest to, że można obserwować powierzchnię nasierdzia izolowanego serca, a obrazowanie fluorescencyjne potencjału transbłonowego i obchodzenia się z wapniem można wykorzystać do monitorowania fizjologii serca34.
Modele gryzoni są najczęściej używane do izolowanych preparatów serca w przeciwieństwie do większych zwierząt, częściowo ze względu na związany z tym koszt zwiększenia rozmiaru wszystkich zaangażowanych elementów (np. objętości roztworu, obwodu perfuzji, ilości barwników i mechanicznych rozprzęgaczy) wraz z większą niestabilnością i skłonnością do arytmii u większych zwierząt 10,36,49. Jedną z zalet stosowania serc świń jest to, że są one bardzo podobne do ludzkiego serca pod względem struktury, wielkości i szybkości skurczu, dzięki czemu dokładniej modelują parametry hemodynamiczne, takie jak przepływ krwi w naczyniach wieńcowych i pojemność minutowa serca. Podobnie ludzie i świnie mają podobne obchodzenie się z wapniem, odstępy między elektrokardiogramami37 i morfologię potencjału czynnościowego, w tym kanały leżące u podstaw, które reprezentuje 12,50,51,52. Protokół ten szczegółowo opisuje etapy tworzenia powtarzalnego dużego modelu zwierzęcego w celu kompleksowego scharakteryzowania funkcji mięśnia sercowego. Jednoczesne obrazowanie napięcia transbłonowego (RH237) i wewnątrzkomórkowego wapnia (Rhod2), stosowane w połączeniu z ustalonymi protokołami elektrofizjologicznymi, daje możliwość wskazania mechanizmów odpowiedzialnych za zmienioną czynność serca. Opisana metodologia może być stosowana do przedklinicznych badań bezpieczeństwa, toksykologicznych badań przesiewowych oraz badania patologii genetycznych lub innych patologii chorobowych. Ponadto opisana metodologia może być modyfikowana i dostosowywana do stosowania z innymi modelami serca (np. psi, ludzkim) w zależności od konkretnego przedmiotu badań 53,54,55.
Istnieje kilka krytycznych modyfikacji, o których należy pamiętać podczas przechodzenia z mniejszego modelu gryzoni na większy model świni w przypadku izolowanych preparatów z całym sercem. Podczas przygotowania i konfiguracji zalecamy dodanie albuminy do perfuzatu w celu utrzymania ciśnienia onkotycznego i zmniejszenia obrzęku (plus środka przeciwpieniącego, jeśli to konieczne)56,57,58,59. Co więcej, perfuzat zawierający albuminę może również pomóc w badaniach metabolicznych, które również wymagają suplementacji kwasami tłuszczowymi do pożywki60,61. W przeciwieństwie do serc gryzoni, większe serce świni nie musi być zanurzane w ciepłym pożywce ze względu na mniejszy stosunek powierzchni do objętości i zwiększoną objętość podgrzanego podłoża przepływającego przez naczynia wieńcowe, co lepiej utrzymuje temperaturę. Jak wspomniano wcześniej, umieściliśmy sondy temperatury wewnątrz prawej komory i na powierzchni nasierdzia zarówno prawej, jak i lewej komory, obserwując tylko niewielkie wahania temperatury o 1-2 °C we wszystkich trzech miejscach przez cały czas trwania badania. Co ważne, takie szybsze przepływy mogą również zwiększać prawdopodobieństwo wystąpienia pęcherzyków i potencjalnego zatoru. Aby obejść ten problem, zalecamy użycie pułapki bąbelkowej z rurką o dużym otworze prowadzącą prosto w dół do kaniuli aortalnej. Podobnie, stwierdziliśmy, że najbardziej przydatne jest posiadanie dwóch osób pracujących w tandemie, aby kaniulować aortę na większym (i cięższym) sercu; Jedna osoba utrzymuje aortę otwartą za pomocą mocnych hemostatów, a druga przymocowuje aortę do kapiny za pomocą taśmy pępowinowej. W opisanej metodologii stwierdziliśmy, że perfuzja z kardioplegią i defibrylacja były niezbędne do rekonwalescencji serca, co jest przeciwieństwem preparatów na serce gryzoni. Z naszego doświadczenia wynika, że tylko kilka wyciętych serc wznowiło normalną aktywność napędzaną przez zatoki bez kardiowersji.
Aby poprawić punkty końcowe obrazowania optycznego, preparat do wiszącego serca ograniczył efekt olśnienia, które może wystąpić w przypadku zanurzonego serca. Co więcej, wiszące serce pozwala również uniknąć ucisku lub naruszenia naczyń wieńcowych w tylnej części serca, które może wystąpić podczas układania serca poziomo w celu obrazowania pionowego. Odkryliśmy również, że ładowanie barwników fluorescencyjnych po pułapce bąbelkowej (w pobliżu kaniuli aortalnej) znacznie poprawiło barwienie tkanek i sygnały optyczne. Wreszcie, aby poprawić punkty końcowe elektrofizjologii serca, zastosowanie większej elektrody do stymulacji współosiowej ułatwiło skuteczną stymulację przedsionków. Chociaż opisujemy zastosowanie elektrokardiogramów do identyfikacji wychwytywania i utraty wychwytywania dla różnych parametrów EP, można również stosować cewniki wewnątrzsercowe lub bipolarne elektrody rejestrujące.
Nasze badanie koncentrowało się na opracowaniu metodologii podwójnego mapowania optycznego i oceny elektrofizjologicznej serca w izolowanym, nienaruszonym modelu serca świni. Ze względu na podobieństwa do serca młodocianego człowieka, serce świni pozostaje popularnym modelem w badaniach dotyczących kardiologii dziecięcej lub wrodzonych wad serca. Co ważne, opisane podejście można dostosować do stosowania z większymi rozmiarami dorosłych serc i/lub różnymi gatunkami zwierząt. Rzeczywiście, inne laboratoria mogą uznać, że użycie psich lub ludzkich serc (zarówno dawców, jak i chorych) jest bardziej odpowiednie dla ich konkretnego celu badawczego 53,54,55. Innym potencjalnym ograniczeniem tego badania jest zastosowanie mechanicznego rozłączacza w celu zmniejszenia artefaktów ruchu podczas obrazowania. Blebbistatyna stała się rozprzęgaczem z wyboru w zastosowaniach obrazowania serca ze względu na jej minimalny wpływ na parametry EKG, aktywację i okresy refrakcji 41,62,63. BDM jest tańszym wyborem, co może być szczególnie ważne w badaniach na dużych zwierzętach, które wymagają większych objętości perfuzatu i mechanicznego rozprzęgacza, ale wiadomo, że ma większy wpływ na prądy potasu i wapnia, które mogą zmieniać morfologię potencjału czynnościowego 64,65,66,67. Jeśli stosuje się BDM, należy pamiętać, że skrócenie APD zwiększa podatność serca na arytmie wywołane wstrząsem68. I odwrotnie, głównym ograniczeniem stosowania blebbistatyny jest jej nadwrażliwość na światło i fototoksyczność, chociaż alternatywne preparaty, które zmniejszyły te efekty 69,70,71. Wreszcie, opisana metodologia wykorzystuje system pojedynczej kamery do eksperymentów z podwójnym mapowaniem optycznym, ale ważne jest, aby pamiętać, że badania naukowe koncentrujące się na migotaniu komór i / lub śledzeniu fal elektrycznych na powierzchni nasierdzia musiałyby zmodyfikować to podejście, aby uwzględnić trójwymiarowe obrazowanie panoramiczne, jak opisano przez innych 15,19,72,73, Rozdział 74,75.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Autorzy dziękują dr Matthew Kayowi za pomocne wskazówki eksperymentalne, a Manelle Ramadan i Muhaymin Chowdhury za pomoc techniczną. Prace te były wspierane przez National Institutes of Health (R01HL139472 do NGP, R01 HL139712 do NI), Children's Research Institute, Children's National Heart Institute i Sheikh Zayed Institute for Pediatric Surgical Innovation.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| (-)-Blebbistatin | Sigma-Aldrich | B0560-5MG | Rozłącznik mechaniczny |
| 2,3-butanodionu monoksymu (BDM) | Sigma-Aldrich | B0753-100G | Mechaniczny rozprzęgacz |
| albuminy | Sigma-Aldrich, St. Louis, MO | A9418 | |
| Analogowy interfejs sygnałowy | emka Technologies | itf16USB | |
| Antypieniący | Sigma-Aldrich | A5758-250ML | |
| Przeciwpieniąca emulsja Y-30 | Sigma-Aldrich, St. Louis, MO | A5758 | |
| Kaniula aortalna, 5/16" | Cole-Parmer | 45509-60 | |
| Pułapka bąbelkowa | Sigma-Aldrich | CLS430641U-100EA | |
| CaCl2 | Fisher Scientific, Fair Lawn, NJ | C77-500 | |
| Kamera, sCMOS | Andor Technology | Zyla 4.2 PLUS | |
| Koncentryczna elektroda stymulacyjna (przedsionki) | Harvard Apparatus | 73-0219 | |
| Defibrylator | Lustro | Zoll serii | |
| Chroma Technology | T660lpxrxt-UF2 | ||
| Wzmacniacz różnicowy | Warner Instruments | DP-304A | |
| Filtr emisyjny, wapń | Chroma Technology | ET585/40m | |
| Filtr emisyjny, napięciowy | Stymulator Chroma Technology | ET710lp | |
| EP (Bloom) | Fisher Medical | DTU-215B | |
| Filtr wzbudzenia | Chroma Technology | CT510/60bp | |
| Światła wzbudzenia | Thorlabs | SOLIS-525C | |
| Filtr | McMaster-Carr | 8147K52 | |
| Wkład filtra, polipropylen | Pentair | PD-5-934 | |
| Obudowa filtra | McMaster-Carr | 9979T21 | |
| Przetwornik przepływu | Transonic | ME6PXN | |
| Glucose | Sigma-Aldrich, St. Louis, MO | 158968 | |
| Cewka grzewcza | Radnoti | 158821 | |
| Hemofilter | Hemocor | HPH 400 | |
| Kleszcze hemostatyczne | World Precision Instruments | 501326 | |
| Image Splitter | Cairn Research | OptoSplit II | |
| KCl | Sigma-Aldrich, St. Louis, MO | P3911 | |
| KH2PO4 | Fisher Scientific, Fair Lawn, NJ | 423-316 | |
| Rurki o dużej średnicy, ID 3/8" | Fisher Scientific | 14-169-7H | |
| Obiektyw 50 mm, 0,95 przysłony | Navitar | DO-5095 | |
| Metamorph | Molecular Devices | Wyrównanie obrazu | |
| MgSO4 | Sigma-Aldrich, St. Louis, MO | M-7506 | |
| Detergent Mucasol | Sigma-Aldrich | Z637181-2L | |
| Na Pirogronian | Sigma-Aldrich, St. Louis, MO | P2256 | |
| NaCl | Sigma-Aldrich, St. Louis, MO | S-3014 | |
| NaHCO3 | Fisher Scientific, Fair Lawn, NJ | S-233 | |
| Elektrody igłowe 29 G, 2 mm | AD Instruments Inc. | ||
| Eliminator hałasu | Quest Scientific | Humbug | |
| Pompa perfuzyjna | PolyStan | A/S 1481 | |
| Przetwornik ciśnienia | World Precision Instruments | BLPR2 | |
| Zbiornik, 2 L | Cole-Parmer | UX-34541-07 | |
| RH237 | AAT Bioquest Inc. | 21480 | |
| Rhod2-AM | AAT Bioquest Inc. | 21062 | |
| Elektroda stymulująca (komora) | Aparat Harvard | 73-0160 | |
| Szew chirurgiczny | McKesson Medyczno-chirurgiczny | 890186 | |
| Wzmacniacz przetwornika | Precision Instruments | TBM4M | |
| Konsola przepływu rurek | Transonic | TS410 | |
| Taśma pępowinowa | Jorvet | J0025UA | |
| Łaźnia wodna/cyrkulator | VWR | 89400-970 | |
| Narzędzia chirurgiczne | |||
| Nożyce do bandaży | Harvard Apparatus | 72-8448 | Nożyczki do bandaży Lister, kątowe,/, 42,0 mm długość ostrza, 17,0 cm |
| Elektrokoagulacja | Dalwha Corp. Ltd. | BA2ALD001 | Model: 200 podstawowych |
| hemostatów | Roboz | RS-7476 | Rurka St Vincent Kleszcze do zamykania |
| hemostatycznych Aparat | Harvard | 72-8960 | Kleszcze hemostatyczne Hartmann, zakrzywione, ząbkowane Szerokość końcówki 2,2 mm, 9,5 cm |
| Hemostatyki | Aparat Harvard | 72-8985 | Kleszcze hemostatyczne Halstead-Mosquito zakrzywione, ząbkowane, końcówka 2 mm |
| Nożyczki Mayo | WPI | 501749 | 14,5 cm, Proste |
| Nożyczki Metzenbaum | WPI | 501747 | 11,5 cm, Proste |
| Kleszcze do komarów | Harvard Apparatus | 72-8980 | Kleszcze hemostatyczne Halstead-Mosquito Proste, gładkie, 2 mm szerokość końcówki 12 cm |
| Uchwyt na igły | Aparat Harvard | 72-8828 | Uchwyty na igły Webster, proste, gładkie, 13,0 cm długości całkowitej |
| Krzyż pediatryczny zacisk | Roboz | RS-7660 | Zacisk Cooley-Derra 6,25" 5 mm Kalibracje |
| Kleszcze kątowe | WPI | 501240 | Kleszczyki hemostatyczne Baby Mixter, 14 cm, skalpel kątowy |
| Rękojeść skalpela Ted Pella | 549-4 | 4, 13,7 cm Nożyczki ze stali nierdzewnej i 10 ostrzy nr 22 | |
| Aparat Harvard | 72-8380 | Nożyczki operacyjne, proste,/, ostrze 42 mm, 12 cm | |
| Kleszcze proste ząbkowane | WPI | 500363 | Kleszcze opatrunkowe 15,5 cm |
| Zacisk do ręczników | WPI | 501700 | Backhaus Zacisk do ręczników, 13 cm, Zakrzywiony, Uchwyt blokujący, SS |
| Zwijacz Weitlaner | WPI | 501314 | Zwijacz Weitlaner, samopodtrzymujący, 10,2 cm, 2x 3 ostre zęby |
| Jednorazowe | |||
| 3-0 prolenu szew | Różni dostawcy | Różni dostawcy Różni dostawcy Pętla | |
| naczyniowa | Aspen chirurgiczny | 011001PBX | Sterion® Pętla naczynia, 0,8 mm x 406 mm |
| Kardioplegia (Plegisol) | Pfizer | 00409-7969-05 | Plegisol; Roztwór do kardioplegii krystaloidalnej św. Tomasza 20 ml / kg |
| Heparyna | Różni dostawcy | Różni dostawcy | 300 U/kg |
| Strzykawka i igła | Różni dostawcy | Różni dostawcy | odpowiednio 60 ml i 18 G |
| Taśma pępowinowa | Ethicon | U12T |
Bibliografia
- Wang, L., De Jesus, N. M., Ripplinger, C. M. Optical Mapping of Intra-Sarcoplasmic Reticulum Ca2+ and Transmembrane Potential in the Langendorff-perfused Rabbit Heart. Journal of Visualized Experiments. (103), e53166(2015).
- Lang, D., Sulkin, M., Lou, Q., Efimov, I. R. Optical Mapping of Action Potentials and Calcium Transients in the Mouse Heart. Journal of Visualized Experiments. (55), e3275(2012).
- Asfour, H., Wengrowski, A. M., Jaimes, R., Swift, L. M., Kay, M. W. NADH fluorescence imaging of isolated biventricular working rabbit hearts. Journal of Visualized Experiments. (65), e4115(2012).
- Capecchi, M. R. The new mouse genetics: altering the genome by gene targeting. Trends in genetic. 5 (3), 70-76 (1989).
- Hall, B., Limaye, A., Kulkarni, A. B. Overview: generation of gene knockout mice. Current Protocols in Cell Biology. , Chapter 19, Unit 19 1-17 (2009).
- Schechter, M. A., et al. An Isolated Working Heart System for Large Animal Models. Journal of Visualized Experiments. (88), e51671(2014).
- Arlock, P., et al. Ion currents of cardiomyocytes in different regions of the Göttingen minipig heart. Journal of Pharmacological and Toxicological Methods. 86, 12-18 (2017).
- Crick, S. J., Sheppard, M. N., Ho, S. Y., Gebstein, L., Anderson, R. H. Anatomy of the pig heart: comparisons with normal human cardiac structure. Journal of anatomy. 193, Pt 1 105-119 (1998).
- Markert, M., et al. Validation of the normal, freely moving Göttingen minipig for pharmacological safety testing. Journal of Pharmacological and Toxicological Methods. 60 (1), 79-87 (2009).
- Milani-Nejad, N., Janssen, P. M. L. M. L. Small and large animal models in cardiac contraction research: advantages and disadvantages. Pharmacology & Therapeutics. 141 (3), 235-249 (2014).
- Bertho, E., Gagnon, G. A comparative study in three dimension of the blood supply of the normal interventricular septum in human, canine, bovine, porcine, ovine and equine heart. Diseases of the Chest. 46, 251-262 (1964).
- Lelovas, P. P., Kostomitsopoulos, N. G., Xanthos, T. T. A comparative anatomic and physiologic overview of the porcine heart. Journal of the American Association for Laboratory Animal Science. 53 (5), 432-438 (2014).
- Camacho, P., Fan, H., Liu, Z., He, J. Q. Large Mammalian Animal Models of Heart Disease. Journal of Cardiovascular Development and Disease. 3 (4), 30(2016).
- Jordan, C. P., et al. Minimally Invasive Resynchronization Pacemaker: A Pediatric Animal Model. The Annals of Thoracic Surgery. 96 (6), 2210-2213 (2013).
- Rogers, J. M., Walcott, G. P., Gladden, J. D., Melnick, S. B., Kay, M. W. Panoramic optical mapping reveals continuous epicardial reentry during ventricular fibrillation in the isolated swine heart. Biophysical Journal. 92 (3), 1090-1095 (2007).
- Langendorff, O. Untersuchungen am uberlebenden Saugethierherzen [Investigations on the surviving mammalian heart]. Pflügers Archiv: European Journal of Physiology. 61, 291-332 (1895).
- Pumir, A., Arutunyan, A., Krinsky, V., Sarvazyan, N. Genesis of ectopic waves: role of coupling, automaticity, and heterogeneity. Biophysical Journal. 89 (4), 2332-2349 (2005).
- Kay, M. W., Walcott, G. P., Gladden, J. D., Melnick, S. B., Rogers, J. M. Lifetimes of epicardial rotors in panoramic optical maps of fibrillating swine ventricles. American journal of Physiology - Heart and Circulatory Physiology. 291 (4), 1935-1941 (2006).
- Lee, P., et al. Low-Cost Optical Mapping Systems for Panoramic Imaging of Complex Arrhythmias and Drug-Action in Translational Heart Models. Scientific Reports. 7, 43217(2017).
- Venkataraman, R., Holcomb, M. R., Harder, R., Knollmann, B. C., Baudenbacher, F. Ratiometric imaging of calcium during ischemia-reperfusion injury in isolated mouse hearts using Fura-2. BioMedical Engineering OnLine. 11 (1), 39(2012).
- Efimov, I. R., Nikolski, V. P., Salama, G. Optical Imaging of the Heart. Circulation Research. 95 (1), 21-33 (2004).
- Zimmermann, W. H., et al. Three-dimensional engineered heart tissue from neonatal rat cardiac myocytes. Biotechnology and Bioengineering. 68 (1), 106-114 (2000).
- Jaimes, R., et al. A Technical Review of Optical Mapping of Intracellular Calcium within Myocardial Tissue. American Journal of Physiology-Heart and Circulatory Physiology. 310 (11), 1388-1401 (2016).
- Herron, T. J., Lee, P., Jalife, J. Optical imaging of voltage and calcium in cardiac cells & tissues. Circulation Research. 110 (4), 609-623 (2012).
- Guatimosim, S., Guatimosim, C., Song, L. S. Imaging Calcium Sparks in Cardiac Myocytes. Methods in Molecular Biology. 689, Clifton, N.J. 205(2011).
- Hou, J. H., Kralj, J. M., Douglass, A. D., Engert, F., Cohen, A. E. Simultaneous mapping of membrane voltage and calcium in zebrafish heart in vivo reveals chamber-specific developmental transitions in ionic currents. Frontiers in Physiology. 5, 344(2014).
- Thomas, K., Goudy, J., Henley, T., Bressan, M. Optical Electrophysiology in the Developing Heart. Journal of Cardiovascular Development and Disease. 5 (2), 28(2018).
- Nikolski, V., Efimov, I. Fluorescent imaging of a dual-pathway atrioventricular-nodal conduction system. Circulation Research. 88 (3), 23-30 (2001).
- Posnack, N. G., et al. Bisphenol A Exposure and Cardiac Electrical Conduction in Excised Rat Hearts. Environmental Health Perspectives. 122 (4), 384-390 (2014).
- Garrott, K., et al. KATP channel inhibition blunts electromechanical decline during hypoxia in left ventricular working rabbit hearts. The Journal of Physiology. 595 (12), 3799-3813 (2017).
- Wang, Z., et al. Exposure to Secondhand Smoke and Arrhythmogenic Cardiac Alternans in a Mouse Model. Environmental Health Perspectives. 126 (12), 127001(2018).
- Francis Stuart, S. D., et al. Age-related changes in cardiac electrophysiology and calcium handling in response to sympathetic nerve stimulation. The Journal of Physiology. 596 (17), 3977-3991 (2018).
- Jaimes, R., et al. Plasticizer Interaction With the Heart: Chemicals Used in Plastic Medical Devices Can Interfere With Cardiac Electrophysiology. Circulation: Arrhythmia and Electrophysiology. 12 (7), (2019).
- Boukens, B. J., Efimov, I. R. A century of optocardiography. IEEE reviews in Biomedical Engineering. 7, 115-125 (2014).
- Li, N., Wehrens, X. H. Programmed Electrical Stimulation in Mice. Journal of Visualized Experiments. (39), e1730(2010).
- Dor-Haim, H., Berenfeld, O., Horowitz, M., Lotan, C., Swissa, M. Reduced Ventricular Arrhythmogeneity and Increased Electrical Complexity in Normal Exercised Rats. PLoS ONE. 8 (6), 66658(2013).
- Noszczyk-Nowak, A., et al. Normal Values for Heart Electrophysiology Parameters of Healthy Swine Determined on Electrophysiology Study. Advances in Clinical and Experimental. 25 (6), 1249-1254 (2016).
- Wengrowski, A. M., Kuzmiak-Glancy, S., Jaimes, R., Kay, M. W. NADH changes during hypoxia, ischemia, and increased work differ between isolated heart preparations. American Journal of Physiology-Heart and Circulatory Physiology. 306 (4), 529-537 (2014).
- Schramm, M., Klieber, H. G., Daut, J. The energy expenditure of actomyosin-ATPase, Ca(2+)-ATPase and Na+,K(+)-ATPase in guinea-pig cardiac ventricular muscle. The Journal of Physiology. 481, 647-662 (1994).
- Kuzmiak-Glancy, S., et al. Cardiac performance is limited by oxygen delivery to the mitochondria in the crystalloid-perfused working heart. American Journal of Physiology- Heart and Circulatory Physiology. 314 (4), 704-715 (2018).
- Fedorov, V. V., et al. Application of blebbistatin as an excitation-contraction uncoupler for electrophysiologic study of rat and rabbit hearts. Heart Rhythm. 4 (5), 619-626 (2007).
- Evertson, D. W., et al. High-Resolution High-Speed Panoramic Cardiac Imaging System. IEEE Transactions on Biomedical Engineering. 55 (3), 1241-1243 (2008).
- Jaimes, R., et al. Path Splitter: A New Approach for Truly Simultaneous Dual Optical Mapping of the Heart with a Single Camera. bioRxiv. , 651380(2019).
- Choi, B. R., Salama, G. Simultaneous maps of optical action potentials and calcium transients in guinea-pig hearts: mechanisms underlying concordant alternans. Journal of Physiology. 529, 171-188 (2000).
- Laughner, J. I., Ng, F. S., Sulkin, M. S., Arthur, R. M., Efimov, I. R. Processing and analysis of cardiac optical mapping data obtained with potentiometric dyes. American Journal of Physiology-Heart and Circulatory Physiology. 303 (7), 753-765 (2012).
- O'Shea, C., et al. ElectroMap: High-throughput open-source software for analysis and mapping of cardiac electrophysiology. Scientific Reports. 9 (1), 1389(2019).
- Mironov, S. F., Vetter, F. J., Pertsov, A. M. Fluorescence imaging of cardiac propagation: spectral properties and filtering of optical action potentials. American Journal of Physiology-Heart and Circulatory Physiology. 291 (1), 327-335 (2006).
- Skrzypiec-Spring, M., Grotthus, B., Szelag, A., Schulz, R. Isolated heart perfusion according to Langendorff---still viable in the new millennium. Journal of Pharmacological and Toxicological Methods. 55 (2), 113-126 (2007).
- Nishida, K., Michael, G., Dobrev, D., Nattel, S. Animal models for atrial fibrillation: clinical insights and scientific opportunities. Europace. 12 (2), 160-172 (2010).
- Verdouw, P. D., Van Den Doel, M. A., De Zeeuw, S., Duncker, D. J. Animal models in the study of myocardial ischaemia and ischaemic syndromes. Cardiovascular Research. 39 (1), 121-135 (1998).
- Camacho, P., Fan, H., Liu, Z., He, J. Q. Large Mammalian Animal Models of Heart Disease. Journal of Cardiovascular Development and Disease. 3 (4), 30(2016).
- Swindle, M. M., Makin, A., Herron, A. J., Clubb, F. J., Frazier, K. S. Swine as Models in Biomedical Research and Toxicology Testing. Veterinary Pathology. 49 (2), 344-356 (2012).
- Aras, K. K., Faye, N. R., Cathey, B., Efimov, I. R. Critical Volume of Human Myocardium Necessary to Maintain Ventricular Fibrillation. Circulation: Arrhythmia and Electrophysiology. 11 (11), 006692(2018).
- Hill, A. J., et al. In Vitro Studies of Human Hearts. The Annals of Thoracic Surgery. 79 (1), 168-177 (2005).
- Fedorov, V. V., et al. Structural and functional evidence for discrete exit pathways that connect the canine sinoatrial node and atria. Circulation Research. 104 (7), 915-923 (2009).
- Jacob, M., et al. Albumin Augmentation Improves Condition of Guinea Pig Hearts After 4 hr of Cold Ischemia. Transplantation. 87 (7), 956-965 (2009).
- Segel, L. D., Ensunsa, J. L. Albumin improves stability and longevity of perfluorochemical-perfused hearts. American Journal of Physiology-Heart and Circulatory Physiology. 254 (6), 1105-1112 (1988).
- Sutherland, F. J., Hearse, D. J. The isolated blood and perfusion fluid perfused heart. Pharmacological Research. 41 (6), 613-627 (2000).
- Werner, J. C., Whitman, V., Fripp, R. R., Schuler, H. G., Morgan, H. E. Carbohydrate metabolism in isolated, working newborn pig heart. American Journal of Physiology-Endocrinology and Metabolism. 241 (5), 364-371 (1981).
- Liao, R., Podesser, B. K., Lim, C. C. The continuing evolution of the Langendorff and ejecting murine heart: new advances in cardiac phenotyping. American Journal of Physiology-Heart and Circulatory Physiology. 303 (2), 156-167 (2012).
- Kates, R. E., Yee, Y. G., Hill, I. Effect of albumin on the electrophysiologic stability of isolated perfused rabbit hearts. Journal of Cardiovascular Pharmacology. 13 (1), 168-172 (1989).
- Lou, Q., Li, W., Efimov, I. R. The role of dynamic instability and wavelength in arrhythmia maintenance as revealed by panoramic imaging with blebbistatin vs. 2,3-butanedione monoxime. American Journal of Physiology-Heart and Circulatory Physiology. 302 (1), 262-269 (2012).
- Swift, L. M., et al. Properties of blebbistatin for cardiac optical mapping and other imaging applications. Pflügers Archiv: European Journal of Physiology. 464 (5), 503-512 (2012).
- Kettlewell, S., Walker, N. L., Cobbe, S. M., Burton, F. L., Smith, G. L. The electrophysiological and mechanical effects of 2,3-butane-dione monoxime and cytochalasin-D in the Langendorff perfused rabbit heart. Experimental Physiology. 89 (2), 163-172 (2004).
- Liu, Y., et al. Effects of diacetyl monoxime on the electrical properties of sheep and guinea pig ventricular muscle. Cardiovascular Research. 27 (11), 1991-1997 (1993).
- Jou, C. J., Spitzer, K. W., Tristani-Firouzi, M. Blebbistatin effectively uncouples the excitation-contraction process in zebrafish embryonic heart. Cellular Physiology and Biochemistry. 25 (45), 419-424 (2010).
- Sellin, L. C., McArdle, J. J. Multiple effects of 2,3-butanedione monoxime. Pharmacology & Toxicology. 74 (6), 305-313 (1994).
- Cheng, Y., Li, L., Nikolski, V., Wallick, D. W., Efimov, I. R. Shock-induced arrhythmogenesis is enhanced by 2,3-butanedione monoxime compared with cytochalasin D. American Journal of Physiology-Heart and Circulatory Physiology. 286 (1), 310-318 (2004).
- Kolega, J. Phototoxicity and photoinactivation of blebbistatin in UV and visible light. Biochemical and Biophysical Research Communications. 320 (3), 1020-1025 (2004).
- Sakamoto, T., Limouze, J., Combs, C. A., Straight, A. F., Sellers, J. R. Blebbistatin, a myosin II inhibitor, is photoinactivated by blue light. Biochemistry. 44 (2), 584-588 (2005).
- Várkuti, B. H., et al. A highly soluble, non-phototoxic, non-fluorescent blebbistatin derivative. Scientific Reports. 6 (1), 26141(2016).
- Bray, M. A., Lin, S. F., Wikswo, J. P. Three-dimensional surface reconstruction and fluorescent visualization of cardiac activation. IEEE Transactions on Bio-medical Engineering. 47 (10), 1382-1391 (2000).
- Qu, F., Ripplinger, C. M., Nikolski, V. P., Grimm, C., Efimov, I. R. Three-dimensional panoramic imaging of cardiac arrhythmias in rabbit heart. Journal of Biomedical Optics. 12 (4), 44019(2007).
- Gloschat, C., et al. RHYTHM: An Open Source Imaging Toolkit for Cardiac Panoramic Optical Mapping. Scientific Reports. 8 (1), 2921(2018).
- Kay, M. W., Amison, P. M., Rogers, J. M. Three-dimensional surface reconstruction and panoramic optical mapping of large hearts. IEEE Transactions on Bio-medical Engineering. 51 (7), 1219-1229 (2004).
Przedruki i uprawnienia
