Ludzka bariera krew-mózg selektywnie zapobiega przenikaniu hydrofilowych cząsteczek i patogenów do mózgu. Kilka patologii, w tym zapalenie opon mózgowo-rdzeniowych i majaczenie pooperacyjne, wiąże się ze zwiększoną przepuszczalnością bariery krew-mózg. W tym miejscu opisujemy model hodowli komórek śródbłonka w celu zbadania przepuszczalności bariery przez przenikanie drobnoustrojów.
Artykuł metodologiczny
Analiza przepuszczalności bariery krew-mózg przez przenikanie drobnoustrojów przez komórki śródbłonka mikronaczyniowego
W tym artykule
Podsumowanie
Streszczenie
Ludzka bariera krew-mózg (BBB) charakteryzuje się bardzo niską przepuszczalnością dla biomolekuł w celu ochrony i regulacji metabolizmu mózgu. Bariera krew-mózg składa się głównie z komórek śródbłonka osadzonych w błonach podstawnych bogatych w kolagen IV i fibronektynę. Kilka patologii wynika z dysfunkcji bariery krew-mózg, a następnie przenikania drobnoustrojów, powodując choroby, takie jak zapalenie opon mózgowych. W celu zbadania wpływu wielu parametrów, w tym różnych leków i środków znieczulających, na przepuszczalność bariery krew-mózg, stworzyliśmy nowatorski model hodowli komórek ludzkich naśladujący barierę krew-mózg z komórkami śródbłonka mikronaczyniowego ludzkiego mózgu. Komórki śródbłonka są hodowane na jednostkach filtracyjnych pokrytych kolagenem i fibronektyną aż do zbiegu, a następnie mogą być leczone różnymi interesującymi związkami. Aby zademonstrować przenikanie mikrobiologiczne, górna komora z wierzchołkową powierzchnią komórek śródbłonka jest zaszczepiana bakteriami. Po okresie inkubacji próbki z dolnej komory posiewa się na płytkach agarowych i liczy otrzymane kolonie, przy czym liczba kolonii koreluje z przepuszczalnością BBB. Endogenne czynniki komórkowe mogą być analizowane w tym układzie eksperymentalnym w celu wyjaśnienia podstawowych mechanizmów komórkowych komórek śródbłonka przyczyniających się do BBB. Ponadto platforma ta pozwala na wykonanie badania przesiewowego pod kątem związków, które mogą wpływać na przepuszczalność komórek śródbłonka. Wreszcie, przenikanie bakterii może być badane i łączone z różnymi patologiami, takimi jak zapalenie opon mózgowych. Być może uda się rozszerzyć model i przeanalizować szlaki bakterii przez barierę krew-mózg. W tym artykule przedstawiamy szczegółowy protokół opisanej metody w celu zbadania przepuszczalności bariery krew-mózg.
Wprowadzenie
Ludzka Bbariera krew-mózg (BBB) stanowi unikalną granicę tkanki mózgowej, oddzielającą mózg od krwi. Ściśle reguluje ona przenikanie większych i hydrofilowych cząsteczek, blokuje dyfuzję parakomórkową i utrzymuje homeostazę mózgu. Chroni ona również mózg przed wahaniami składu osocza, toksynami i drobnoustrojami oraz kieruje komórkami zapalnymi w ramach odporności ośrodkowego układu nerwowego (OUN). Od czasu jej odkrycia przed stuleciem1, przeprowadzono wiele badań w celu zrozumienia struktury i funkcji BBB. Złożone interakcje komórek, białek i sygnałów z mózgu i krwi nadal wymagają dalszych badań oraz opracowania odpowiednich modeli.
Ludzka BBB składa się z trzech typów komórek: komórek śródbłonka mikro naczyniowego mózgu (BMECs), perycytów oraz astrocytów2,3. BMECs różnią się od większości komórek śródbłonka w organizmie tym, że posiadają dużą liczbę połączeń ścisłych i połączeń przylegających4, niską aktywność pinocytarną2,5 oraz ciągłą błonę podstawną6,7, co blokuje dyfuzję parakomórkową. Małe cząsteczki lipofilowe mogą dyfundować i przenikać przez BBB zgodnie z gradientem stężeń; większe i hydrofilowe cząsteczki wnikają do mózgu lub go opuszczają wyłącznie poprzez polaryzowane, selektywne systemy transportowe8. Regulacja ta skutkuje wysokim transendotelialnym oporem elektrycznym (TEER) na poziomie 1,500-2,000 Ω·cm2, który jest odwrotnie skorelowany z przepuszczalnością9,10. Choć BMECs tworzą szczelną barierę, mogą one reagować na sygnały lokalne i obwodowe11,12. Między BMECs a astrocytami zachodzi ścisła interakcja13; stopki końcowe astrocytów tworzą warstwę wokół naczyń i indukują tworzenie połączeń ścisłych13,14. Są one zaangażowane w dojrzewanie BBB za pomocą różnych czynników, w tym czynnika wzrostu transformującego-β (TGF-β)15,16. Ponadto perycyty odgrywają kluczową rolę w regulacji angiogenezy17 oraz zapobieganiu apoptozie śródbłonka podczas różnicowania komórkowego18 (Rycina 1). Są one osadzone w błonie podstawnej i zapewniają stabilność strukturalną ściany naczynia19.

Rycina 1: Schematyczna budowa bariery krew-mózg. Wyjątkowa struktura ludzkiej BBB składa się z trzech różnych typów komórek. Światło mikronaczynia jest otoczone komórkami śródbłonka, które charakteryzują się licznymi połączeniami ścisłymi i nie są fenestrowane. Są one osadzone w błonie podstawnej, podobnie jak perycyty. Komórki te są istotne dla stabilności strukturalnej ściany naczynia i obok astrocytów odgrywają rolę w rozwoju BBB. Ich stopki tworzą gęstą warstwę wokół naczynia i wspierają formowanie się połączeń ścisłych. Wszystkie elementy BBB są kluczowe dla prawidłowego funkcjonowania fizjologicznego. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Wiele różnych patologii wiąże się z załamaniem bariery krew-mózg (BBB) (np. encefalopatia septyczna). U dotkniętych tym schorzeniem pacjentów obserwuje się podwyższone poziomy białka w płynie mózgowo-rdzeniowym20, a w miąższu mózgu dotkniętych gryzoni stwierdza się zwiększony wychwyt znakowanego koloidalnego tlenku żelaza oraz aminokwasów21,22. Wyniki te wskazują na zwiększoną przepuszczalność BBB, która występuje równocześnie ze zwiększoną pinocytozą w BMECs21 oraz aktywacją śródbłonka23. Inną powiązaną patologią związaną ze zmienioną BBB jest zapalenie opon mózgowo-rdzeniowych – stan nagły i złożony stan zapalny któremu towarzyszy obrzęk mózgu, mogący prowadzić do śmierci komórek neuronalnych. Przypuszcza się, że głównym miejscem wnikania krążących bakterii są naczynia mikrokrążenia24; jednak BBB zapobiega wnikaniu bakterii. Przepuszczalność BBB nie zawsze jest powiązana ze wzrostem w eksperymentalnym zapaleniu opon mózgowo-rdzeniowych pochodzenia hematogennego25, a mechanizmy te mogą być wieloczynnikowe. Współwystępowanie sepsy z poprzedsytowym majaczeniem (POD)26 oraz związek z infekcjami przedoperacyjnymi27,28 wskazują na potrzebę stworzenia modelu BBB, który umożliwia bezpośrednią ekspozycję na bakterie, aby lepiej zrozumieć patogenezę bakteryjną.
Istnieje wiele luk w zrozumieniu i kwantyfikacji przenikania drobnoustrojów przez barierę krew-mózg (BBB). Dlatego opracowaliśmy model, który umożliwia wygodne testowanie różnych czynników i warunków przy bezpośredniej korelacji między przenikaniem bakterii a wpływem na przepuszczalność BBB. Poprzednie prace koncentrowały się na przepuszczalności parakomórkowej i obejmowały pomiary TEER oraz strumień znaczników. Dodatkowo transport makrocząsteczek analizowano za pomocą cząsteczek sprzężonych lub przeciwciał, przy czym opracowano różne modele wykorzystujące wyłącznie komórki śródbłonka lub ich kombinacje z astrocytami i perycytami. Ze względu na trudności w regularnym pozyskiwaniu tkanek ludzkich, stosuje się wiele modeli opartych na zwierzętach. Komórki śródbłonka mózgu pochodzenia bydlęcego i świńskiego tworzą szczelne monowarstwy o wysokim TEER, wykazują dobrze ukształtowaną polaryzację apikalno-bazalną i nadają się do badań transportu małych cząsteczek przez BBB. Białka te różnią się sekwencją od ich ludzkich homologów29,30, co utrudnia badania nad przeciwciałami terapeutycznymi. Z tego powodu preferowane mogą być modele hodowli mysich lub ludzkich. Myszy lub szczury jako źródła próbek mają tę zaletę, że pochodzą z dobrze scharakteryzowanych gatunków, ale dostarczają niewielu komórek do celów badawczych. Można temu zaradzić poprzez zastosowanie unieśmiertelnionych linii komórkowych endotelialnych mózgu myszy (END) bEND.3, bEND.5 lub cEND31,32,33.
Pierwotne hodowle komórek z tkanek ludzkich są trudne do pozyskania i regularnego utrzymania. Dlatego większość ludzkich modeli komórkowych stosowanych w badaniach nad ludzką BBB to unieśmiertelnione linie komórek śródbłonka. Opublikowaną linią komórkową jest ludzka linia komórek śródbłonka mikronaczyniowego mózgu hCMEC/D3, która dobrze nadaje się do badania wychwytu leków i jest łatwa w obsłudze. Komórki te tworzą monowarstwę i wykazują ekspresję charakterystycznych białek połączeń ścisłych BBB34, podczas gdy poziom ekspresji claudin-5 jest zgłaszany jako niższy niż w nienaruszonych mikronaczyniach35, a wiele specyficznych transporterów wykryto na poziomie transkrypcyjnym36 oraz w badaniach proteomicznych34. Stosunkowo niska wartość TEER w zakresie 30-50 Ω·cm2 wciąż stanowi wyzwanie37. Innym źródłem komórek śródbłonka mózgu są ludzkie pluripotencjalne komórki macierzyste (hPSCs)38 oraz ludzkie komórki macierzyste pochodzące z krwi pępowinowej z linii krążących progenitorów śródbłonka i linii hematopoetycznych39,40. Oba protokoły różnicowania prowadzą do powstania szczelnych monowarstw komórkowych i wysokich wartości TEER (np. 1,450 Ω·cm2 w kokulturach)38. Te modele komórek macierzystych wymagają szczególnej staranności w hodowli, jednak dają możliwość badania wpływu hormonów regulacyjnych41 lub chorób o podłożu genetycznym42 na rozwój BBB.
W niniejszym badaniu opracowaliśmy unieśmiertelnioną, transfekowaną linię ludzkich komórek śródbłonka mikrokrążenia mózgowego, THBMEC43aby naśladować barierę krew-mózg (BBB) i badać przenikanie bakterii. Komórki są wysiewane na filtr i hodowane do uzyskania 100% konfluencji w tym modelu hodowli komórkowej. Bakterie są inokulowane w górnej części komory hodowlanej. Stosujemy Escherichia coli (E. coli) w naszej próbie badawczej ze względu na wysoką częstość występowania E. coli zapalenie opon mózgowo-rdzeniowych44Wykazano, że najniższa przepuszczalność monowarstwy komórek występuje między 13. a 15. dniem po wysianiu.45Dlatego też traktowanie monowarstwy THBMEC przeprowadza się po tym czasie, a następnie inokuluje bakterie w medium na powierzchni apikalnej monowarstwy. Po czasie inkubacji bakterie, które były w stanie przekroczyć barierę, są kwantyfikowane poprzez wysiewanie medium z bakteriami na płytki z agarem i zliczanie kolonii. Zwiększona liczba kolonii koreluje z wyższą przenikalnością bakterii przez BHE. Wartość TEER wynosi około 70 Ω·cm.2 46Nie jest jednak konieczne pomiar TEER w opisanym метоdzie. Choć jest to uznana wartość określająca przepuszczalność BBB, wydaje się ona nie mieć wpływu na przenikanie bakterii przez BBB. Nieleczone komórki służą w naszym modelu jako kontrola szczelności. W poprzednich badaniach wykazano, że komórki są zdolne do reakcji na cytokiny prozapalne i wykazują ekspresję typowych białek połączeń ścisłych.47Umożliwia to przesiewanie związków oraz walidację większego zestawu substratów transporterów i receptorów.
Protokół
1. Przygotowanie buforu i odczynników
- Przygotować 10-krotny bufor fosforanowo-solny (10x PBS), dodając 80 g chlorku sodu (NaCl), 2 g chlorku potasu (KCl), 14,4 g wodorofosforanu sodu dwuwodnego (Na2HPO4 · 2H2O) oraz 2 g wodorofosforanu potasu (KH2PO4) do 1 L szklanej kolby z 1 L podwójnie destylowanej wody H2O. Roztwór 10x PBS poddać autoklawowaniu, a następnie 100 mL tego roztworu rozcieńczyć w 900 mL podwójnie destylowanej wody, aby otrzymać 1x PBS.
- Do sterylizacji roztworów użyć autoklawu. Umieścić szklaną kolbę w koszyku, zamknąć pokrywę i sterylizować przez 15 min w temperaturze 121 °C i pod ciśnieniem 98,9 kPa.
UWAGA: Protokół ten jest zawsze stosowany podczas autoklawowania roztworów w kolejnych etapach.
- Do sterylizacji roztworów użyć autoklawu. Umieścić szklaną kolbę w koszyku, zamknąć pokrywę i sterylizować przez 15 min w temperaturze 121 °C i pod ciśnieniem 98,9 kPa.
- Przygotować roztwór kolagenu IV o stężeniu 10 µg/mL oraz roztwór fibronektyny o stężeniu 10 µg/mL poprzez rozcieńczenie roztworu fibronektyny 0,5 mg/mL oraz roztworu kolagenu IV 0,3 mg/mL za pomocą 1x PBS do alikwotów 100 mg/µL w probówkach mikrocentryfugowych 1,5 mL. Następnie zmieszać 100 µL obu alikwotów z 1 800 µL 1x PBS w probówkach mikrocentryfugowych 2 mL i przechowywać w temperaturze -20 °C.
- Przygotować pożywkę DMEM/F-12, dodając do niej 4% płodowej surowicy bydlęcej, 2 mM L-glutaminy oraz 100 mg/L penicyliny/streptomycyny, a następnie przechowywać w temperaturze 4 °C.
- Przygotować 1-krotny roztwór trypsyny-EDTA poprzez rozcieńczenie 5 mL 10-krotnie stężonego roztworu trypsyny-EDTA w 45 mL 1x PBS w probówce 50 mL i przechowywać w temperaturze 4 °C.
- Przygotować 500 mL pożywki LB, odważając 10 g bazy bulionu LB do 500 mL szklanej kolby. Dodać 500 mL sterylnej wody i poddać autoklawowaniu.
- Przygotować agar LB, odważając 10 g bazy bulionu LB i 7,5 g agar-agaru do 500 mL szklanej kolby. Przed autoklawowaniem dodać 500 mL sterylnej wody, nie zamykając pokrywy kolby. Poddać autoklawowaniu i pozostawić roztwór do ostygnięcia, aż będzie ciepły w dotyku.
- Przygotować pożywkę bez antybiotyków, dodając 4% płodowej surowicy bydlęcej i 2 mM L-glutaminy, ale bez penicyliny/streptomycyny, do pożywki DMEM/F-12 i przechowywać w temperaturze 4 °C, analogicznie jak w kroku 1.3.
2. Hodowla komórek imitujących barierę krew-mózg
- Aby przygotować płytkę 12-dołkową, umieść wkłady do hodowli komórkowych w dołkach (Rysunek 2A).
- Rozpakuj płytkę oraz każdy wkład w komorze z laminarnym przepływem powietrza i tam wykonuj kolejne kroki. Używaj wysterylizowanej pęsety, chwytając wkład za szeroką podstawę, aby go przemieścić.
- Pokryj porowatą membranę każdego wkładu 90 µL mieszaniny 10 µg/mL kolagenu IV i 10 µg/mL fibronektyny. Inkubuj płytkę 12-dołkową przez 24 h w temperaturze 37 °C w inkubatorze do hodowli komórkowych (Rysunek 2B).
- Przemyj wkłady dwukrotnie, pipetując 1 mL 1x PBS do każdego wkładu, a następnie odessij roztwór za pomocą pompy próżniowej do hodowli komórkowych.
- Urównoważ membrany, pipetując 0,5 mL uprzednio ogrzanej pożywki DMEM/F-12 do komory górnej i 1,5 mL do komory dolnej. Inkubuj płytkę przez 30 min w temperaturze 37 °C w inkubatorze do hodowli komórkowych w atmosferze 5% CO2 (Rysunek 2C).
- Zasiej 2 x 10⁵ ludzkich mikro naczyniowych komórek śródbłonka do każdej komory górnej i inkubuj płytkę 12-dołkową w temperaturze 37 °C w inkubatorze do hodowli komórkowych (Rysunek 2D).
- Odessij pożywkę z kolby do hodowli komórkowych za pomocą pompy próżniowej do hodowli komórkowych i przemyj monowarstwę, pipetując 10 mL 1x PBS, a następnie odsysając roztwór pompą próżniową.
- Całkowicie pokryj komórki 1x stężoną trypsyną-EDTA, pipetując 5 mL roztworu do kolby do hodowli komórkowych. Inkubuj kolbę przez 3-5 min w temperaturze 37 °C w inkubatorze do hodowli komórkowych.
UWAGA: Jeśli komórki nie uległy dysocjacji, energicznie uderz kolbą o wnętrze dłoni, aby oderwać komórki. - Pobierz pipetą 5 mL zawiesiny komórkowej do probówki 15 mL i dodaj 5 mL pożywki zawierającej FCS, aby zatrzymać reakcję enzymatyczną.
- Wirowarkuj zawiesinę przez 3 min przy 210 x g, usuń nadsącz za pomocą pompy próżniowej i resuspenduj osad w 5 mL pożywki za pomocą pipety.
- Użyj licznika komórek, mieszając 10 µL zawiesiny komórkowej z 10 µL 0,4% barwnika trypan blue w mikroprobówce 1,5 mL. Dodaj 10 µL mieszaniny do komory liczbowej, umieść ją w liczniku komórek i rozpocznij liczenie.
- Ustaw ostrość licznika na komórkach tak, aby ich krawędzie były ciemnoniebieskie, a środek biały. Następnie uruchom odpowiedni program do liczenia komórek.
- Aby obliczyć objętość dla każdego wkładu, podziel uzyskaną liczbę 2 x 10⁵ komórek na wkład przez obliczone stężenie zawiesiny komórkowej.
3. Hodowla modelu bariery krew-mózg
- Inkubować płytkę 12-dołkową przez 14 dni w temperaturze 37 °C.
- Wymieniać 0,5 mL pożywki w komorze górnej oraz 1,5 mL pożywki w komorze dolnej co 2-3 dni. Pożywkę należy ogrzać przed dodaniem do kolby z komórkami. Odessać ciecz za pomocą pompy próżniowej (Rysunek 2E).
UWAGA: Pracować ostrożnie, aby nie dotknąć membrany. - Sprawdzić stan komórek za pomocą mikroskopu i określić stopień konfluencji. Upewnić się, że po 14 dniach konfluencja wynosi 100%.
4. Przygotowanie bakterii
- Dzień przed pomiarem należy przenieść kolonię szczepu E. coli GM2163 do pożywki LB. Inkubować probówkę z kulturą przez 24 h w temperaturze 37 °C przy 180 rpm w inkubatorze z wytrząsaniem (Rycina 2F).
- Hodować szczep E. coli na płytce z agarem LB w temperaturze 4 °C. Za pomocą wysterylizowanej pętlki pobrać jedną kolonię i przenieść ją do przygotowanej probówki zawierającej 3 mL pożywki LB.
- Przygotować płytkę z agarem LB dla każdego insertu, używając ciepłego roztworu agaru LB i wypełniając szalki Petriego do połowy ich całkowitej objętości. Pozostawić do zastygnięcia i przechowywać w temperaturze 4 °C.
5. Traktowanie komórek
- W 14. dniu po wysianiu komórek, traktuj je związkami lub zmierz transendotelialną oporność elektryczną (TEER), jeśli było to zaplanowane (Rysunek 2G).
UWAGA: Zawsze należy zachować grupę komórek nietraktowanych jako kontrolę.- Aby potraktować komórki badanym związkiem, rozcieńcz go do stężenia końcowego w pożywce DMEM/F-12. Dodaj 0,5 mL tej mieszaniny do komory górnej i 1,5 mL do komory dolnej. Inkubuj płytkę w inkubatorze do hodowli komórkowych przez wymagany czas.
- Następnie wymień pożywkę kompletną na pożywkę bez antybiotyków, odsysając starą pożywkę za pomocą pompy próżniowej i pipety (Rysunek 2H).
6. Pomiar przepuszczalności
- Aby uzyskać stałe stężenia bakterii, zmierz gęstość optyczną fotometrem przy długości fali 600 nm. Rozcieńcz nocną kulturę bakterii w pożywce LB w probówce typu Falcon 50 mL do wartości OD600 wynoszącej 0,5 ± 0,05. Pracuj w warunkach chłodzenia na lodzie.
- Napełnij kuwetę 1 mL pożywki LB. Uruchom fotometr i włóż kuwetę stroną z oznaczeniem do przodu. Naciśnij dolny przycisk „Blank”, aby zmierzyć wartość tła.
- Zmierz gęstość roztworu bakteryjnego, przelewając go do kuwety, wkładając ją do urządzenia i naciskając dolny przycisk próbki. Powtarzaj pomiar podczas rozcieńczania, aż do uzyskania końcowego stężenia.
- Pracuj w komorze z laminarnym przepływem powietrza, gdzie można operować bakteriami, używając przygotowanej płytki 12-dołkowej oraz roztworu bakteryjnego o OD600 = 0,5. Dodaj 450 µL roztworu bakteryjnego wyłącznie do każdej górnej komory zawierającej 0,5 mL pożywki (Rysunek 2I).
- Inkubuj płytkę 12-dołkową przez 6 h w temperaturze 37 °C w inkubatorze.
UWAGA: Protokół nakazuje w tym miejscu przerwanie pracy. - Pobierz pipetą próbkę 50 µL pożywki z każdej dolnej komory, usuwając wkładkę za pomocą pęsety (Rysunek 2J). Uważaj, aby nie przelać pożywki z komór górnych do dolnych.
- Wysiej każdą próbkę na oddzielną płytkę z agarem (Rysunek 2K). Nanieś próbkę na płytkę i rozprowadź roztwór za pomocą rozpylacza do komórek.
- Inkubuj płytki z agarem przez 24 h w temperaturze 37 °C w inkubatorze.
- Policz kolonie na każdej płytce (Rysunek 2L).
7. Analiza danych
- Wprowadź dane do tabeli, a następnie oblicz średnią oraz odchylenie standardowe liczby zaobserwowanych kolonii dla komórek traktowanych i nietraktowanych.
- Przedstaw średnią jako bezwzględną liczbę kolonii.
- W celu normalizacji wyników oblicz względną liczbę kolonii, dzieląc wszystkie wyniki przez wartość kontrolną.
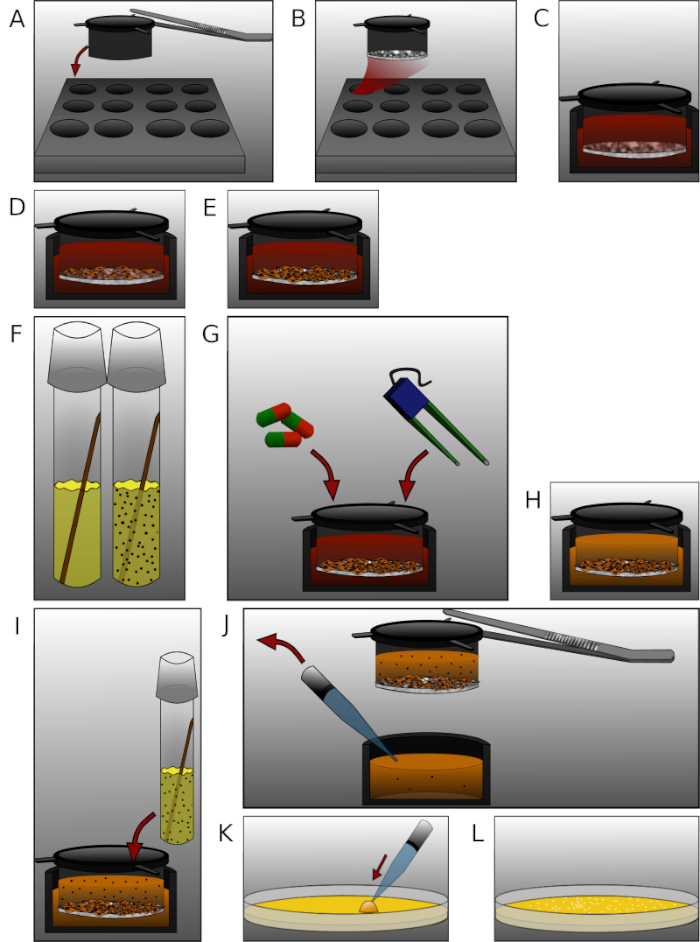
Rycina 2: Szczegółowa prezentacja poszczególnych kroków protokołu. (A) Za pomocą wysterylizowanej pęsety umieścić wkładki w płytce 12-dołkowej. (B) Każdą wkładkę pokryć 90 µL mieszaniny fibronektyny i kolagenu IV, a następnie inkubować przez 24 h. (C) Równoważyć membrany w uprzednio ogrzanym medium przez 30 min. (D) Wysiać 2 x 10⁵ ludzkich komórek śródbłonka mikrokrążenia mózgowego na każdą wkładkę. (E) Hodować płytkę przez odpowiedni czas. (F) Na dzień przed pomiarem przenieść kolonię E. coli do probówki z medium LB i inkubować przez 24 h. (G) Poddać komórki działaniu czynnika lub zmierzyć TEER. (H) Wymienić medium kompletne na medium bez antybiotyków. (I) Do każdej górnej komory dodać 450 µL roztworu bakterii (OD600 = 0.5) i inkubować przez 6 h. (J) Pobrać próbkę 50 µL medium z każdej dolnej komory, usuwając wkładkę pęsetą. (K) Wysiać próbkę na płytki z agarem i inkubować przez 24 h. (L) Policzyć kolonie i przeanalizować dane. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Wyniki
Zgodnie z protokołem wysiano komórki i zbudowano model BBB. W 14. dniu po wysianiu komórki poddano działaniu glioksalu jako reaktywnego aldehydu. Celem eksperymentu było zbadanie korelacji między wiekiem a cukrzycą w POD27 oraz wysokiej zapadalności na zapalenie opon mózgowo-rdzeniowych u starszych pacjentów48. Podwyższone poziomy końcowych produktów zaawansowanej glikacji (AGEs) zarówno w procesie starzenia, jak i w cukrzycy49 wymagają dalszego zbadania wpływu glikacji na patogenezę przenikania drobnoustrojów przez BBB. Glikacja jest nieenzymatyczną reakcją wolnych grup aminowych w białkach z grupami karbonylowymi cukrów redukujących lub innymi związkami karbonylowymi. Glukoza jest znanym donorem grup karbonylowych; istnieją jednak związki bardziej reaktywne. Po utworzeniu niestabilnej zasady Schiffa ulegają one przegrupowaniu do bardziej stabilnych i reaktywnych związków dikarbonylowych, takich jak glioksal. AGEs, będące produktami końcowymi, mogą powodować tworzenie wiązań krzyżowych między białkami50. Mogą one uszkadzać struktury komórkowe i zmieniać funkcje komórek poprzez oddziaływanie z receptorem AGEs (RAGE)51.
Komórki traktowano roztworem glioksalu (GO) o stężeniu 0,05 i 0,15 mM przez 1 h, a jako kontrolę wykorzystano komórki nietraktowane. Glikację wykryto za pomocą immunoblottingu oraz detekcji z użyciem przeciwciała anty-AGE (Rysunek 3). Uzyskane kolonie bakterii policzono i przedstawiono jako bezwzględną liczbę kolonii (Rysunek 4A) lub względną liczbę kolonii znormalizowaną względem kontroli (Rysunek 4B). Pożywka pobrana z dołków z komórkami nietraktowanymi utworzyła bardzo mało kolonii. Wynik ten wykazał, że nietraktowane komórki były w stanie stworzyć barierę i mogły służyć jako kontrola. Próbki traktowane glioksalem wykazały zwiększoną liczbę kolonii, co prowadzi do wniosku, że glioksal wpływa na THBMECs i gęstość bariery komórkowej, ponieważ liczba kolonii wykazała istotną różnicę między komórkami nietraktowanymi a traktowanymi. Zwiększone przenikanie bakterii przez barierę po traktowaniu glioksalem może wyjaśniać, dlaczego cukrzyca koreluje z chorobami przebiegającymi z rozpadem BBB.
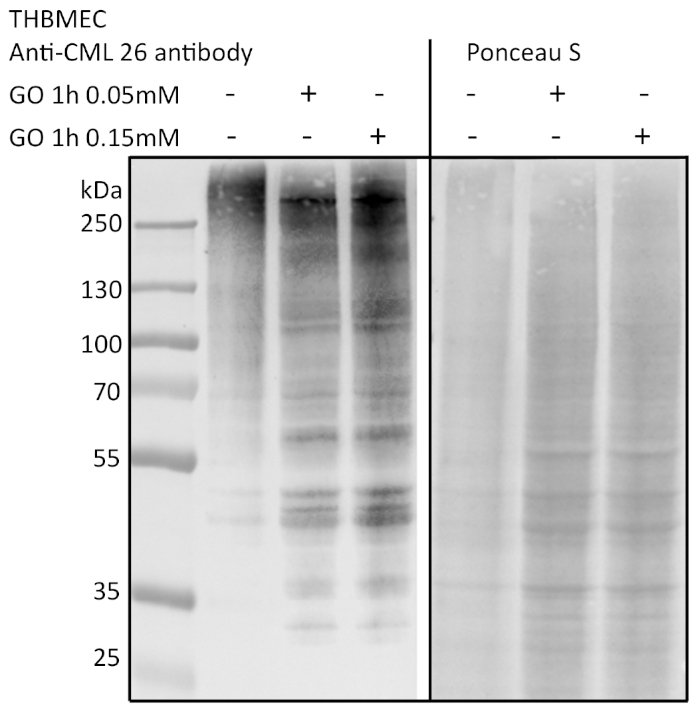
Rycina 3: Detekcja glikacji białek za pomocą immunoblottingu. Komórki THBMECs traktowano GO w różnych stężeniach przez 1 h. Całkowite białko wyizolowano i rozdzielono za pomocą SDS-PAGE. Glikację białek wykryto za pomocą immunoblottingu z użyciem przeciwciała anty-AGE (CML-26). Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
W innym układzie glikację białek THBMECs indukowano za pomocą glukozy. Do pożywki DMEM/F-12 dodano sterylną glukozę, aby zwiększyć jej stężenie z poziomu pożywki z normalną zawartością glukozy (NG) wynoszącej 17.5 mM do pożywki z wysoką zawartością glukozy (HG) wynoszącej 42.5 mM. Komórki THBMECs hodowano w dwóch różnych kolbach do hodowli komórkowej: jednej w pożywce z normalną zawartością glukozy (NG) i drugiej w pożywce z wysoką zawartością glukozy (HG). Te dwa różne rodzaje pożywek stosowano również do wzrostu BBB na filtrach w płytkach 12-dołkowych. Komórki hodowane w pożywce NG służyły jako kontrola. Uzyskane kolonie przedstawiono jako bezwzględną liczbę kolonii (Rysunek 4C) lub względną liczbę kolonii znormalizowaną względem kontroli (Rysunek 4D). Wyniki wskazują na brak istotnego wpływu na przenikanie bakterii przez ludzką BBB, co prowadzi do wniosku, że różnica między NG a HG nie była na tyle znacząca, aby wpłynąć na integralność BBB. Różne scenariusze zostały zaprojektowane w celu walidacji modelu oraz integralności komórek naśladujących BBB.
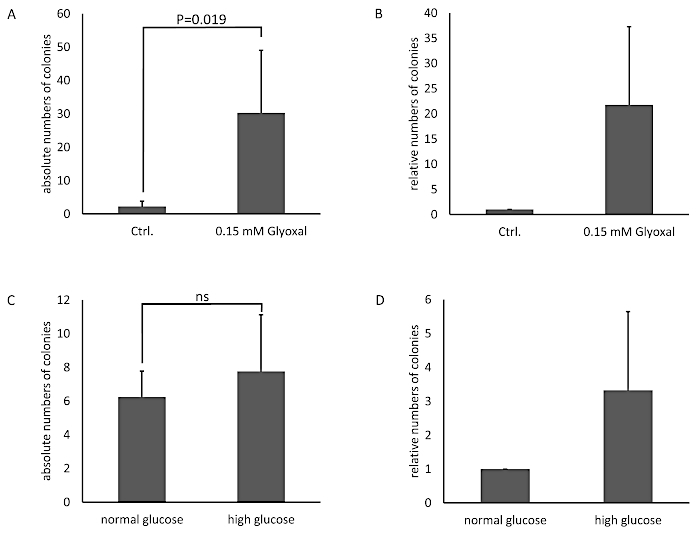
Rysunek 4: Bezwzględna i względna liczba policzonych kolonii bakterii w modelu BBB z wykorzystaniem THBMECs. Komórki THBMECs traktowano 0,15 mM GO przez 1 h; nietraktowane komórki służyły jako kontrola. Do każdej górnej komory dodano łącznie 450 µL zawiesiny E. coli (OD600 = 0,5). Po 6 h pożywkę z dolnych komór wysiano na płytki agarowe. (A) Wykres przedstawia średnią +/- SEM z policzonych kolonii. (B) Wykres przedstawia liczbę policzonych kolonii znormalizowaną względem nietraktowanych komórek kontrolnych +/- SEM (n = 4). Na panelach (C) i (D) komórki THBMECs hodowano w pożywce NG i HG. Do każdej górnej komory dodano łącznie 450 µL zawiesiny E. coli (OD600 = 0,5). Po 6 h pożywkę z dolnej komory wysiano na płytki agarowe. (C) Wykres przedstawia średnią +/- SEM z policzonych kolonii. (D) Wykres przedstawia liczbę policzonych kolonii znormalizowaną względem nietraktowanych komórek kontrolnych +/- SEM (n = 3). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
Dyskusja
Ograniczony wgląd w patogenezę przemieszczania się drobnoustrojów ogranicza dalszy rozwój terapii POD lub zapalenia opon mózgowo-rdzeniowych. Śmiertelność i zachorowalność z powodu tych chorób wymagają lepszego leczenia pacjentów, badań nad mechanizmami leżącymi u ich podstaw oraz solidnej platformy do badań przesiewowych związków. Zdarzenia wieloczynnikowe można badać za pomocą ludzkich BMEC. Kilka zgłoszonych pomyślnie procedur izolacji BMEC z wielu gatunków wykazało utratę cech charakterystycznych sygnatury molekularnej komórek52,53. Opisane THBMEC w tej procedurze były transfekowane w bardzo wczesnych pasażach, gdzie wykazywały specyficzne cechy komórek śródbłonka mózgu i zachowywały je43. Jest to ważne, ponieważ do tej pory nie odkryto wszystkich etapów w dotkniętych szlakach, a model ten wydaje się naśladować konwencjonalne BMEC. Prezentowany przez nas model wykazuje bezpośrednie wpływy na BMEC i przenikanie drobnoustrojów przez barierę krew-mózg.
Obsługa ogniw THBMEC jest prosta, a wymagane wyposażenie techniczne znajduje się w większości laboratoriów nauk przyrodniczych. Nasz model pozwala na natychmiastowe rozpoczęcie procedur dochodzeniowych po tym, jak THBMEC zbudują szczelną monowarstwę. Zakres zastosowań może być szeroki ze względu na możliwe kombinacje nowych testów z konwencjonalnymi testami, takimi jak pomiar TEER lub znakowanie za pomocą znaczników54. Możliwe jest również dodanie astrocytów lub perycytów w celu stworzenia modelu współ- lub potrójnej hodowli. Wpływ leków na przenikanie drobnoustrojów można również przetestować w naszym modelu, traktując THBMEC związkami przed zaszczepieniem górnej komory bakteriami. W rzeczywistości istnieje możliwość zakupu wkładów z filtrami do płytek 96-dołkowych, co pozwala na automatyzację zabiegu. Może to ułatwić wdrożenie wysokoprzepustowych systemów badań przesiewowych leków w celu przyspieszenia odkrywania leków przeciwko wspomnianym chorobom i zmniejszenia skutków ubocznych dla bariery krew-mózg podczas opracowywania leków.
Krytycznym etapem w prezentowanej metodzie jest czas inkubacji po dodaniu bakterii do górnej komory. Ważne jest, aby używać godzin jako osi czasu w protokole, ponieważ czas generowania E. coli wynosi tylko 20 minuti 55 minut. W przeciwnym razie użycie różnych punktów czasowych może prowadzić do mylących wyników. Istnieje również możliwe ryzyko zanieczyszczenia między górną a dolną komorą podczas ekspozycji na bakterie, jeśli płytki nie są obchodzone z ostrożnością. Wszelkie zmiany w płytce 12-dołkowej w tym momencie mogą zanieczyścić pożywkę w dolnej komorze.
E. coli jest jedną z dobrze znanych, bardzo częstych przyczyn bakteryjnego zapalenia opon mózgowo-rdzeniowych. Dalsze badania powinny przetestować różne bakterie, które są również związane z zapaleniem opon mózgowych, takie jak Neisseria meningitidis56 lub Streptococcus pneumoniae57. Wydaje się, że wykorzystują one różne mechanizmy do przekraczania bariery krew-mózg i muszą być lepiej zrozumiane w leczeniu pacjentów. U pacjentów w podeszłym wieku częstość występowania POD wzrastao 26 , podobnie jak liczba występujących chorób współistniejących. Wiadomo, że zachodzą interakcje między różnymi chorobami, zwłaszcza ogólnoustrojowymi, takimi jak cukrzyca. W naszym modelu możliwe jest symulowanie tych warunków lub traktowanie komórek przed dodaniem bakterii.
Model jest ograniczony przez bezpośredni kontakt THBMEC i bakterii, dlatego konieczne są dalsze badania w celu zbadania potencjalnych mechanizmów kontaktu w celu wykrycia zaangażowanych szlaków i białek. Możliwe jest jednak usunięcie wkładek i pobranie komórek do dalszej analizy. TEER modelu jest niższy w porównaniu z modelami komórek macierzystych 38,39,40. Potwierdziliśmy to, stosując stężenie bakterii, które nie przekroczyło bariery krew-mózg w nieleczonych komórkach po 6 godzinach.
Podsumowując, metoda ta stanowi solidną platformę do analizy przenikania bakterii przez barierę krew-mózg z potencjałem do jej rozszerzenia w celu przeprowadzenia wysokoprzepustowych badań przesiewowych leków.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Autorzy dziękują dr Maryam Hussain za wcześniejszą pracę nad tą metodą, grupie PD dr Kerstin Danker (Charité-Universitätsmedizin, Berlin) za dostarczenie THBMEC i Juliane Weber za krytyczną lekturę rękopisu. Badanie to było wspierane przez RTK 2155 (ProMoAge).
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Agar - Agar | Carl Roth | 6494.3 | Autoklaw klasy BioScience |
| Systec | VX-150 | ||
| Bakterie E.coli szczep GM2163 | Fermentas Life Sciences, Litwa | ||
| Fotometr | Eppendorf | 6131 | |
| Komórki THBMEC | Grupa M. F. Stinsa | ||
| Hodowla komórkowa kolby | Greiner Bio-One | 658175 | |
| Wirówka Uniwersalna 320 | Hettrichlab | 1401 | |
| Kolagen IV | SIGMA Aldrich | C6745 | z hodowli komórek |
| ludzkich Countess Automatyczny licznik komórek ze szkiełkami komory do liczenia komórek i barwieniem Trypan Blue 0,4% | Invitrogen | C10311 | |
| Probówki hodowlane | Greiner Bio-One | 191180 | |
| Kuwety | BRAND | 759015 | |
| Di wodorofosforan sodu z hydratem | MERCK | 1065800500 | |
| DMEM/F-12 | GIBCO/ Thermo Sc. | 11330032 | Probówki HEPES |
| Falcon 15 ml | Greiner Bio-One | 188271 | |
| Probówki Falcon 50 ml | Greiner Bio-One | 227261 | |
| Płodowa Surowica Bydlęca | GIBCO/ Thermo Sc. | 10270 | wartość FBS -Brazylia |
| Fibronektyna | SIGMA Aldrich | F0556 | roztwór ludzkie fibroblasty |
| Heracell 150 CO2 Inkubator Heraeus 50116047 | |||
| Wytrząsarka do inkubatora I 26 Nowy Brunszwik | Eppendorf | M1324-0000 | |
| Pętla inokulacyjna | Dr. Ilona Schubert - Laborfachhandel | 641000 | |
| LB Baza bulionowa | GIBCO/ Termo Sc. | ||
| L-Glutamina | GIBCO/ Thermo Sc. | 25030-081 | |
| Inkubator mikrobiologiczny B 6200 | Heraeus | 51015192 | |
| Szafa Bezpieczeństwa Mikrobiologicznego AURA 2000 M.A.C. Klasa II | BIOAIR | 12469 | |
| Mikroskop odwrócony | Zeiss | TELAVAL 31 | |
| Mikroprobówki 2 ml | Sarstedt | 72,695,400 | |
| Mikroprobówki 1,5 ml | Sarstedt | 72,706,400 | |
| Penicylina / Streptomycyna | GIBCO / Thermo Sc. | ||
| szalka Petriego | Dr. Ilona Schubert - Laborfachhandel | 464-800 | |
| Chlorek potasu | Roth | HN02.3 | |
| Di-wodorofosforan potasu | Roth | P018.2 | |
| Chlorek sodu | Roth | 9265.2 | |
| ThinCerts + płytki wielodołkowe | Greiner Bio-One | 665631 | 12 dołków, wielkość porów 3,0 &mikro; m |
| Trypsyna - EDTA | GIBCO/ Thermo Sc. | ||
| Pompa próżniowa Laboport | KNF N | 86 KT.18 |
Bibliografia
- Goldmann, E. E. Vitalfärbung am Zentralnervensystem: Beitrag z. Physio-Pathologie d Plexus chorioideus ud Hirnhäute. , (1913).
- Reese, T. S., Karnovsky, M. J. Fine structural localization of a blood-brain barrier to exogenous peroxidase. Journal of Cell Biology. 34 (1), 207-217 (1967).
- Risau, W., Dingler, A., Albrecht, U., Dehouck, M. P., Cecchelli, R. Blood-brain barrier pericytes are the main source of gamma-glutamyltranspeptidase activity in brain capillaries. Journal of Neurochemistry. 58 (2), 667-672 (1992).
- Brightman, M. W., Reese, T. S. Junctions between intimately apposed cell membranes in the vertebrate brain. Journal of Cell Biology. 40 (3), 648-677 (1969).
- Coomber, B. L., Stewart, P. A. Morphometric analysis of CNS microvascular endothelium. Microvascular Research. 30 (1), 99-115 (1985).
- Tilling, T., Korte, D., Hoheisel, D., Galla, H. J. Basement membrane proteins influence brain capillary endothelial barrier function in vitro. Journal of Neurochemistry. 71 (3), 1151-1157 (1998).
- Morris, A. W., et al. Vascular basement membranes as pathways for the passage of fluid into and out of the brain. Acta Neuropathologica. 131 (5), 725-736 (2016).
- Betz, A. L., Goldstein, G. W. Polarity of the blood-brain barrier: neutral amino acid transport into isolated brain capillaries. Science. 202 (4364), 225-227 (1978).
- Butt, A. M., Jones, H. C., Abbott, N. J. Electrical resistance across the blood-brain barrier in anaesthetized rats: a developmental study. Journal of Physiology. 429, 47-62 (1990).
- Calabria, A. R., Weidenfeller, C., Jones, A. R., de Vries, H. E., Shusta, E. V. Puromycin-purified rat brain microvascular endothelial cell cultures exhibit improved barrier properties in response to glucocorticoid induction. Journal of Neurochemistry. 97 (4), 922-933 (2006).
- O'Carroll, S. J., et al. Pro-inflammatory TNFalpha and IL-1beta differentially regulate the inflammatory phenotype of brain microvascular endothelial cells. Journal of Neuroinflammation. 12 (131), (2015).
- Simi, A., Tsakiri, N., Wang, P., Rothwell, N. J. Interleukin-1 and inflammatory neurodegeneration. Biochemical Society Transactions. 35 (Pt 5), 1122-1126 (2007).
- Janzer, R. C., Raff, M. C. Astrocytes induce blood-brain barrier properties in endothelial cells. Nature. 325 (6101), 253-257 (1987).
- Tao-Cheng, J. H., Nagy, Z., Brightman, M. W. Tight junctions of brain endothelium in vitro are enhanced by astroglia. Journal of Neuroscience. 7 (10), 3293-3299 (1987).
- Utsumi, H., et al. Expression of GFRalpha-1, receptor for GDNF, in rat brain capillary during postnatal development of the BBB. American Journal of Physiology and Cell Physiology. 279 (2), (2000).
- Tran, N. D., Correale, J., Schreiber, S. S., Fisher, M. Transforming growth factor-beta mediates astrocyte-specific regulation of brain endothelial anticoagulant factors. Stroke. 30 (8), 1671-1678 (1999).
- Balabanov, R., Washington, R., Wagnerova, J., Dore-Duffy, P. CNS microvascular pericytes express macrophage-like function, cell surface integrin alpha M, and macrophage marker ED-2. Microvascular Research. 52 (2), 127-142 (1996).
- Ramsauer, M., Krause, D., Dermietzel, R. Angiogenesis of the blood-brain barrier in vitro and the function of cerebral pericytes. Faseb Journal. 16 (10), 1274-1276 (2002).
- Lindahl, P., Johansson, B. R., Leveen, P., Betsholtz, C. Pericyte loss and microaneurysm formation in PDGF-B-deficient mice. Science. 277 (5323), 242-245 (1997).
- Young, G. B., Bolton, C. F., Archibald, Y. M., Austin, T. W., Wells, G. A. The electroencephalogram in sepsis-associated encephalopathy. Journal of Clinical Neurophysiology. 9 (1), 145-152 (1992).
- Carlyle Clawson, C., Francis Hartmann, J., Vernier, R. L. Electron microscopy of the effect of gram-negative endotoxin on the blood-brain barrier. Journal of Comparative Neurology. 127 (2), 183-197 (1966).
- Jeppsson, B., et al. Blood-brain barrier derangement in sepsis: cause of septic encephalopathy? The American Journal of Surgery. 141 (1), 136-142 (1981).
- Tighe, D., Moss, R., Bennett, D. Cell surface adrenergic receptor stimulation modifies the endothelial response to SIRS. Systemic Inflammatory Response Syndrome. New Horizons (Baltimore, Md). 4 (4), 426-442 (1996).
- Kim, K. S., et al. The K1 capsule is the critical determinant in the development of Escherichia coli meningitis in the rat. Journal of Clinical Investigation. 90 (3), 897-905 (1992).
- Kim, K. S., Wass, C. A., Cross, A. S. Blood-brain barrier permeability during the development of experimental bacterial meningitis in the rat. Experimental Neurology. 145 (1), 253-257 (1997).
- Arshi, A., et al. Predictors and Sequelae of Postoperative Delirium in Geriatric Hip Fracture Patients. Geriatric Orthopaedic Surgery and Rehabililation. 9, 2151459318814823(2018).
- Smulter, N., Lingehall, H. C., Gustafson, Y., Olofsson, B., Engstrom, K. G. Delirium after cardiac surgery: incidence and risk factors. Interactive CardioVascular and Thoracic Surgery. 17 (5), (2013).
- Kratz, T., Heinrich, M., Schlauss, E., Diefenbacher, A. Preventing postoperative delirium. Deutsches Arzteblatt International. 112 (17), 289-296 (2015).
- Uchida, Y., et al. Quantitative targeted absolute proteomics of human blood-brain barrier transporters and receptors. Journal of Neurochemistry. 117 (2), 333-345 (2011).
- Warren, M. S., et al. Comparative gene expression profiles of ABC transporters in brain microvessel endothelial cells and brain in five species including human. Pharmacology Research. 59 (6), 404-413 (2009).
- Omidi, Y., et al. Evaluation of the immortalised mouse brain capillary endothelial cell line, b.End3, as an in vitro blood-brain barrier model for drug uptake and transport studies. Brain Research. 990 (1-2), 95-112 (2003).
- Steiner, O., Coisne, C., Engelhardt, B., Lyck, R. Comparison of immortalized bEnd5 and primary mouse brain microvascular endothelial cells as in vitro blood-brain barrier models for the study of T cell extravasation. Journal of Cerebral Blood Flow and Metabolism. 31 (1), 315-327 (2011).
- Burek, M., Salvador, E., Forster, C. Y. Generation of an immortalized murine brain microvascular endothelial cell line as an in vitro blood brain barrier model. Journal of Visualized Experiments. (66), e4022(2012).
- Ohtsuki, S., et al. Quantitative targeted absolute proteomic analysis of transporters, receptors and junction proteins for validation of human cerebral microvascular endothelial cell line hCMEC/D3 as a human blood-brain barrier model. Molecular Pharmacolgy. 10 (1), 289-296 (2013).
- Urich, E., Lazic, S. E., Molnos, J., Wells, I., Freskgard, P. O. Transcriptional profiling of human brain endothelial cells reveals key properties crucial for predictive in vitro blood-brain barrier models. PLoS One. 7 (5), e38149(2012).
- Lopez-Ramirez, M. A., et al. Cytokine-induced changes in the gene expression profile of a human cerebral microvascular endothelial cell-line, hCMEC/D3. Fluid Barrier CNS. 10 (27), (2013).
- Cucullo, L., et al. Immortalized human brain endothelial cells and flow-based vascular modeling: a marriage of convenience for rational neurovascular studies. Journal of Cerebral Blood Flow Metabolism. 28 (2), 312-328 (2008).
- Lippmann, E. S., et al. Derivation of blood-brain barrier endothelial cells from human pluripotent stem cells. Nature Biotechnology. 30 (8), 783-791 (2012).
- Boyer-Di Ponio, J., et al. Instruction of circulating endothelial progenitors in vitro towards specialized blood-brain barrier and arterial phenotypes. PLoS One. 9 (1), e84179(2014).
- Cecchelli, R., et al. A stable and reproducible human blood-brain barrier model derived from hematopoietic stem cells. PLoS One. 9 (6), e99733(2014).
- Lippmann, E. S., Al-Ahmad, A., Azarin, S. M., Palecek, S. P., Shusta, E. V. A retinoic acid-enhanced, multicellular human blood-brain barrier model derived from stem cell sources. Science Reports. 4, 4160(2014).
- Lim, R. G., et al. Huntington's Disease iPSC-Derived Brain Microvascular Endothelial Cells Reveal WNT-Mediated Angiogenic and Blood-Brain Barrier Deficits. Cell Reports. 19 (7), 1365-1377 (2017).
- Stins, M. F., Badger, J., Sik Kim, K. Bacterial invasion and transcytosis in transfected human brain microvascular endothelial cells. Microbiological Pathogens. 30 (1), 19-28 (2001).
- Gaschignard, J., et al. Neonatal Bacterial Meningitis: 444 Cases in 7 Years. Pediatric Infectious Disease Journal. 30 (3), 212-217 (2011).
- Hussain, M. The Effect of Glycation on the Permeability of an in vitro Blood-brain Barrier Model. , University Halle-Wittenberg. (2015).
- Weber, V. The effect of glycation on the permeability of human blood-brain barrier. , University Halle-Wittenberg. (2019).
- Hussain, M., et al. Novel insights in the dysfunction of human blood-brain barrier after glycation. Mechanism of Ageing Development. 155, 48-54 (2016).
- Choi, C. Bacterial meningitis in aging adults. Clinical Infectious Disease. 33 (8), 1380-1385 (2001).
- Furth, A. J. Glycated proteins in diabetes. British Journal of Biomedical Science. 54 (3), 192-200 (1997).
- Sajithlal, G. B., Chithra, P., Chandrakasan, G. Advanced glycation end products induce crosslinking of collagen in vitro. Biochimica and Biophysica Acta. 1407 (3), 215-224 (1998).
- Ray, R., Juranek, J. K., Rai, V. RAGE axis in neuroinflammation, neurodegeneration and its emerging role in the pathogenesis of amyotrophic lateral sclerosis. Neuroscience and Biobehavior Reviews. 62, 48-55 (2016).
- DeBault, L. E., Cancilla, P. A. Gamma-Glutamyl transpeptidase in isolated brain endothelial cells: induction by glial cells in vitro. Science. 207 (4431), 653-655 (1980).
- Diglio, C. A., Grammas, P., Giacomelli, F., Wiener, J. Primary culture of rat cerebral microvascular endothelial cells. Isolation, growth, and characterization. Laboratory Investigation. 46 (6), 554-563 (1982).
- Buchert, M., Turksen, K., Hollande, F. Methods to examine tight junction physiology in cancer stem cells: TEER, paracellular permeability, and dilution potential measurements. Stem Cell Reviews. 8 (3), 1030-1034 (2012).
- Gibson, B., Wilson, D. J., Feil, E., Eyre-Walker, A. The distribution of bacterial doubling times in the wild. Proceedings of the Royal Society B: Biological Sciences. 285 (1880), (2018).
- Pron, B., et al. Interaction of Neisseria maningitidis with the components of the blood-brain barrier correlates with an increased expression of PilC. Journal of Infectious Diseases. 176 (5), 1285-1292 (1997).
- Iovino, F., Orihuela, C. J., Moorlag, H. E., Molema, G., Bijlsma, J. J. Interactions between blood-borne Streptococcus pneumoniae and the blood-brain barrier preceding meningitis. PLoS One. 8 (7), e68408(2013).
Przedruki i uprawnienia
