Prezentujemy model choroby niedokrwiennej serca za pomocą kardiomiocytów pochodzących z ludzkich indukowanych pluripotencjalnych komórek macierzystych, wraz z metodą ilościowej oceny uszkodzeń tkanek spowodowanych niedokrwieniem. Model ten może stanowić użyteczną platformę do badań przesiewowych leków i dalszych badań nad chorobą niedokrwienną serca.
Artykuł metodologiczny
Model choroby niedokrwiennej serca i porównanie wideo skurczu kardiomiocytów przy użyciu kardiomiocytów pochodzących z hiPSC
* These authors contributed equally
W tym artykule
Podsumowanie
Streszczenie
Choroba niedokrwienna serca jest główną przyczyną zgonów na całym świecie. W związku z tym był przedmiotem ogromnej liczby badań, często na modelach małych zwierząt, takich jak gryzonie. Jednak fizjologia ludzkiego serca znacznie różni się od fizjologii serca gryzoni, co podkreśla potrzebę klinicznie istotnych modeli do badania chorób serca. W tym miejscu przedstawiamy protokół modelowania choroby niedokrwiennej serca przy użyciu kardiomiocytów zróżnicowanych z ludzkich indukowanych pluripotencjalnych komórek macierzystych (hiPS-CM) oraz ilościowego określenia uszkodzeń i upośledzenia funkcjonalnego niedokrwionych kardiomiocytów. Narażenie na 2% tlenu bez glukozy i surowicy zwiększa odsetek uszkodzonych komórek, na co wskazuje zabarwienie jądra jodkiem propidyny i zmniejsza żywotność komórek. Warunki te zmniejszają również kurczliwość hiPS-CM, co potwierdza analiza pola wektora przemieszczenia mikroskopowych obrazów wideo. Protokół ten może ponadto stanowić wygodną metodę spersonalizowanych badań przesiewowych leków, ułatwiając wykorzystanie komórek hiPS od poszczególnych pacjentów. Dlatego ten model choroby niedokrwiennej serca, oparty na iPS-CM pochodzenia ludzkiego, może stanowić użyteczną platformę do badań przesiewowych leków i dalszych badań nad chorobą niedokrwienną serca.
Wprowadzenie
Choroba niedokrwienna serca (IHD) jest uznawana na całym świecie za główną przyczynę zgonów i oszacowano, że jest odpowiedzialna za ponad dziewięć milionów zgonów w 2016 roku1. Częstość występowania chorób sercowo-naczyniowych stale rośnie, a globalizacja wydaje się przyczyniać do występowania czynników ryzyka chorób serca w krajach rozwijających się. W związku z tym badania nad IHD stają się coraz pilniejsze2.
Eksperymentalne modele chorób sercowo-naczyniowych są kluczowe dla badania mechanizmów choroby, dokładności diagnozy i rozwoju nowych terapii. Wiele laboratoriów zaproponowało kilka modeli eksperymentalnych. Niezwykle ważne jest, aby wybrać model o znaczących zaletach; Wykonalność, powtarzalność i podobieństwo do chorób ludzkich są kluczowymi czynnikami przy wyborze modeli chorób sercowo-naczyniowych3. Ludzkie indukowane pluripotencjalne komórki macierzyste (hiPSC) niosące specyficzne mutacje związane z kardiomiopatią są obiecującą alternatywą dla modeli zwierzęcych4. Chociaż opisano wiele strategii indukowania kardiomiocytów za pomocą iPSCs5,6,7,8,9, tutaj przedstawiamy prostą metodę tworzenia modelu IHD przy użyciu kardiomiocytów zróżnicowanych od hiPSC, w której nie stosuje się pracochłonnej selekcji kardiomiocytów za pomocą markerów. W tej metodzie kardiomiocyty są selekcjonowane funkcjonalnie poprzez analizę spontanicznego skurczu.
Indukcja kardiomiocytów za pomocą hiPSC pozwala uniknąć składania ofiar ze zwierząt i technicznie trudnych operacji. Tworzenie modeli zwierzęcych IHD wymaga wymagających technik chirurgicznych10. Doskonała symulacja różnych patofizjologicznych aspektów chorób serca u ludzi, takich jak tętno i potencjały czynnościowe z fizjologii gryzoni, jest prawie niemożliwa. W połączeniu z moralnością i etyką korzystania z modeli zwierzęcych, konieczne jest opracowanie nowych modeli eksperymentalnych innych niż modele zwierzęce. Kardiomiocyty zróżnicowane z ludzkich komórek iPS lepiej naśladują fizjologiczny stan ludzkiego serca. W tym protokole ustalamy model IHD przy użyciu kardiomiocytów pochodzących z komórek hiPS (hiPS-CMs). W naszym modelu brak tlenu i glukozy prowadzi do zmniejszenia siły skurczu i żywotności hiPS-CM. Nasza metoda zapewnia nowe podejście do modelowania IHD i demonstruje nową platformę do badania tej choroby.
Protokół
1. Hodowla podtrzymująca hiPSC
- Pokryć płytkę hodowlaną sześciodołkową lamininą (Tabela materiałów).
- Rozcieńczyć lamininę do stężenia 0.5 μg/mL w fosforanie buforze solnym (PBS).
- Dodać rozcieńczoną lamininę do płytki sześciodołkowej w objętości 2.0 mL/dołek.
- Inkubować płytkę w temperaturze 37 °C przez 30 min.
- Usunąć roztwór lamininy z dołków.
- Wysiać hiPSC w 2 mL pożywki do utrzymania iPSC (Tabela materiałów) do pokrytych dołków z zagęszczeniem 3 × 10⁴ komórek/dołek, nie dopuszczając do wyschnięcia powierzchni.
- Przeprowadzić subkulturę hiPSC.
- Przygotować 0.5× roztwór enzymów do dysocjacji komórek (Tabela materiałów).
- Zmieszać 10 μL 0.5 M kwasu etylenodiaminooctowego (EDTA) i 10 mL PBS, aby otrzymać 0.5 mM EDTA/PBS.
- Rozcieńczyć 10 mL 1× enzymów do dysocjacji komórek do stężenia 0.5×, dodając 10 mL 0.5 mM EDTA/PBS.
- Odssać zużytą pożywkę z dołków.
- Dodać 2 mL/dołek PBS w celu przemycia komórek, a następnie usunąć PBS.
- Dodać 800 μL 0.5× enzymów do dysocjacji komórek i inkubować komórki przez 7 min w 37 °C w wilgotnym inkubatorze z zawartością 5% CO2.
UWAGA: Do dysocjacji komórek można zastosować 0.05% trypsyny-EDTA. - Ostrożnie usunąć roztwór 0.5× enzymów do dysocjacji komórek.
- Przemyć komórki 2 mL PBS, a następnie usunąć PBS.
UWAGA: Należy postępować ostrożnie, ponieważ komórki łatwo odrywają się po dodaniu roztworu enzymów do dysocjacji komórek. - Dodać 1 mL pożywki do utrzymania iPS (Tabela materiałów) zawierającej 10 μM Y-27632.
UWAGA: Dodanie Y-27632 zwiększa przeżywalność hiPSC. - Odczepić komórki za pomocą skrobaczki do komórek i zebrać je do probówki wirówkowej o pojemności 15 mL.
- Policzyć komórki. Dostosować zagęszczenie komórek do 1.5 × 10⁴ komórek/mL poprzez dodanie pożywki do utrzymania iPS zawierającej 10 μM Y-27632.
UWAGA: Nie stosować wirowania, aby uniknąć uszkodzenia komórek. - Wysiać 2 mL mieszaniny komórek na pokrytą lamininą płytkę sześciodołkową (ostateczne zagęszczenie: 3 × 10⁴ komórek/dołek).
- Inkubować komórki w temperaturze 37 °C w wilgotnym inkubatorze z zawartością 5% CO2.
- Wymienić pożywkę hodowlaną na pożywkę do utrzymania iPS bez Y-27632 w dniach 1, 4, 5 i 6.
- Przygotować 0.5× roztwór enzymów do dysocjacji komórek (Tabela materiałów).
- Przeprowadzić subkulturę komórek w 7. dniu.
UWAGA: Subkulturę komórek należy przeprowadzić do 7. dnia, aby zahamować przypadkową różnicowanie hiPSC.
2. Indukcja różnicowania hiPSC w kierunku kardiomiocytów
- Pokryć płytkę hodowlaną 96-dołkową lamininą (Tabela materiałów).
- Rozcieńczyć lamininę w PBS do stężenia 1,675 μg/mL.
- Dodać rozcieńczony roztwór lamininy do płytki 96-dołkowej w objętości 0,1 mL/dołek.
- Inkubować płytkę w temperaturze 37 °C przez 30 min.
- Wysiać hiPSC na płytkę 96-dołkową z gęstością 3 × 10⁴ komórek/dołek.
- Namnażać hiPSC w temperaturze 37 °C w inkubatorze z nawilżaniem i zawartością 5% CO2.
- Następnego dnia zastąpić medium pożywką wzrostową iPS w objętości 200 μL/dołek (Tabela materiałów).
- Wymieniać pożywkę codziennie przez kolejne 2–3 dni, aż komórki osiągną 70%–80% konfluencji.
- Zastosować media różnicujące.
- Odssać zużytą pożywkę i powoli zastąpić ją 200 μL/dołek uprzednio ogrzanego medium różnicującego A (Tabela materiałów).
- Umieścić płytkę w temperaturze 37 °C w inkubatorze z nawilżaniem i zawartością 5% CO2.
- Po 48 h odessać pożywkę i powoli zastąpić ją 200 μL/dołek uprzednio ogrzanego medium różnicującego B (Tabela materiałów).
- Umieścić płytkę w temperaturze 37 °C w inkubatorze z nawilżaniem i zawartością 5% CO2.
UWAGA: Niezwykle ważne jest, aby media różnicujące były świeże. Stopniowo tracą one swój efekt różnicujący, zazwyczaj w ciągu dwóch tygodni. W razie potrzeby rozdzielić świeżą pożywkę na alikwoty i przechowywać w temperaturze −20 °C.
- Zastosować medium do utrzymania kardiomiocytów.
- Po 48 h odessać pożywkę i powoli zastąpić ją 200 μL/dołek uprzednio ogrzanego medium do utrzymania kardiomiocytów (Tabela materiałów).
- Umieścić płytkę w temperaturze 37 °C w inkubatorze z nawilżaniem i zawartością 5% CO2.
- Wymieniać medium do różnicowania kardiomiocytów co drugi dzień aż do 30. dnia.
UWAGA: Ważne jest, aby czas stosowania mediów różnicujących A i B był precyzyjnie ustalony na 48 h, aby zapewnić dokładną sekwencję ekspresji genów niezbędnych do różnicowania.
3. Narażenie na niedokrwienie
- Opozutnijcie pożywkę hodowlaną z substancji odżywczych i tlenu.
- Przygotujcie zmodyfikowaną pożywkę Eagle'a Dulbecco (DMEM) bez glukozy i surowicy.
- Ods으śnijcie pożywkę hodowlaną z dołków płytki 96-dołkowej zawierającej hiPS-CMs.
- Dodajcie do dołków pożywkę pozbawioną składników odżywczych w objętości 200 μL/dołek.
- Umieśćcie płytkę hodowlaną w inkubatorze hipoksyjnym (Tabela materiałów).
- Wprowadźcie azot i utrzymujcie wewnętrzne stężenie tlenu na poziomie 2% oraz stężenie CO2 na poziomie 5% przez 24 h.
- Przejdźcie do wybranych analiz: np. testu żywotności, oceny kurczliwości lub oceny uszkodzeń komórkowych.
4. Ocena żywotności komórek za pomocą testu MTT
- Użyj zestawu do testu MTT (Tabela materiałów), aby ilościowo ocenić żywotność komórek.
UWAGA: W celu uszkodzenia komórek (kontrola dodatnia) można zastosować ekspozycję na 1 mM nadtlenku wodoru w DMEM przez 1 h. Jako kontrola ujemna może służyć ekspozycja na 0 mM nadtlenku wodoru w DMEM.- Do komórek dodaj 10 μL odczynnika MTT, używając pipety wielokrotnej.
- Mieszaj delikatnie przez jedną minutę na wstrząsarce orbitalnej.
- Inkubuj komórki przez 3–4 h w temperaturze 37 °C w inkubatorze z 5% CO2. Po inkubacji formazan wytworzony w komórkach pojawi się w postaci ciemnych kryształów na dnie dołków.
- Po usunięciu supernatantu rozpuść nierozpuszczalne kryształy formazanu w 100 μL roztworu dimetylosulfoksydu (DMSO). Roztwór ten rozpuści kryształy formazanu, tworząc fioletowy roztwór.
OSTRZEŻENIE: DMSO może podrażniać oczy, układ oddechowy i skórę. Należy stosować odpowiednie rękawice oraz ochronę oczu i twarzy. - Zmierz absorbancję każdej próbki za pomocą czytnika mikropłytek przy długości fali 570 nm.
5. Ocena kurczliwości iPS-CMs
- Jeśli nie jest zainstalowany, pobierz wtyczkę Particle Image Velocimetry do programu ImageJ11 ze strony https://sites.google.com/site/qingzongtseng/piv i zainstaluj ją.
- Używając mikroskopu fazokontrastowego, zarejestruj obrazy wideo hiPS-CMs, stosując obiektyw 4× z częstotliwością ~20 klatek na sekundę przez ~10 s i zapisz plik jako „analyze.avi”. W przypadku porównania kurczliwości przed i po niedokrwieniu upewnij się, że zarejestrowano obszar zainteresowania.
UWAGA: Mikroskop z automatycznym stolikiem jest przydatny do precyzyjnego celowania w obszar zainteresowania. Plik wideo powinien być w formacie .avi w celu późniejszej analizy. Jeśli nie jest w tym formacie, przekonwertuj go do .avi. - Utwórz strukturę folderów zgodnie z indicacionesmi na Rysunku 1. Przykład pliku „joblist.txt” znajduje się w pliku uzupełniającym.
- Przeanalizuj dyskretne dwuwymiarowe pola wektorowe przemieszczenia komórkowego.
- Uruchom oprogramowanie Fiji (ImageJ)12, przejdź do Plugins > Macros > Edit i otwórz plik „vector_analysis.ijm” (Uzupełniający plik kodu).
- Kliknij Run. Analiza zostanie przeprowadzona automatycznie.
UWAGA: Wektory przemieszczenia D(x,y) są obliczane dla każdego obszaru 16 × 16 pikseli pomiędzy klatką referencyjną (pierwszą klatką) a wszystkimi kolejnymi klatkami (klatki 1 vs. 2, 1 vs. 3, 1 vs. 4 itd.). Wynik jest obliczany dla każdej klatki i zapisywany jako „vec_x.txt” (x to numer klatki). Wektor maksymalnego przemieszczenia, M(x, y), jest definiowany dla każdej pary (x, y) w następujący sposób: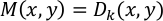
gdzie k oznacza numer klatki, w której |Dk (x,y)| = max [|D2 (x,y)|, |D3 (x,y)|, …, |Dn (x,y)|], a n oznacza ostatnią klatkę. Wynik jest zapisywany jako „Max_vector.txt”. |M(x, y)| reprezentuje maksymalne przemieszczenie spowodowane skurczem kardiomiocytów w punkcie analizy (x, y). Wartość kurczliwości C w jednostkach arbitralnych jest obliczana w następujący sposób: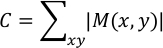
Wartość ta jest zapisywana w kolumnie 7, wierszu 1 w pliku „Max_vector.txt”. C reprezentuje sumę przemieszczeń dla wszystkich (x, y). Im większa część, w której przemieszczenie wynikające ze skurczu mięśnia sercowego jest duże, tym większa wartość C. Pole wektorowe maksymalnego przemieszczenia, M(x, y), jest nałożone na obraz fazokontrastowy pierwszej klatki („Phase_contrast.png”) i zapisane jako „Overlaid.png”. Ponieważ wielkość wektora przemieszczenia jest obliczana na podstawie pierwszej klatki wideo, preferowane jest, aby w pierwszej klatce hiPS-CMs znajdowały się w spoczynkowym okresie rozkurczowym.
6. Ocena uszkodzeń komórkowych za pomocą cytometrii przepływowej
- Rozcieńczyć roztwór jodku propidyny o stężeniu 1 mg/mL w PBS w stosunku 1:1 000.
- Przebarwić oddzielone komórki jodkiem propidyny.
- Odssać pożywkę i przenieść ją do probówki do wirowania o odpowiedniej pojemności.
- Wirować probówkę z prędkością 1 000 × g przez 5 min, a następnie ostrożnie usunąć nadsącz, aby nie zgubić osadzonych komórek.
- Inkubować komórki z rozcieńczonym roztworem jodku propidyny w temperaturze pokojowej przez 15 min w ciemności.
- Wirować probówkę z prędkością 1 000 × g przez 5 min, a następnie ostrożnie usunąć nadsącz, aby nie zgubić osadzonych komórek.
- Resuspender komórki w ~1 mL PBS.
UWAGA: W celu dokładnego ilościowego oznaczenia uszkodzeń komórkowych ważne jest zebranie oddzielonych, pływających komórek z pożywki.
- Przebarwić przytwierdzone komórki jodkiem propidyny.
- Przemyć delikatnie przytwierdzone komórki dwukrotnie PBS, a następnie usunąć PBS.
- Inkubować komórki z rozcieńczonym roztworem jodku propidyny przez 15 min w ciemności.
- Odssać roztwór jodku propidyny.
- Oddzielić komórki, używając 0,25% trypsyny. Przenieść zawiesinę komórkową do probówki do wirowania.
- Wirować probówkę z prędkością 1 000 × g przez 5 min, a następnie ostrożnie usunąć nadsącz, aby nie zgubić osadzonych komórek.
- Resuspender komórki w ~1 mL PBS.
- Wymieszać pływające i przytwierdzone komórki do analizy metodą fluorescencyjnego sortowania komórek (FACS).
- Przepuścić zawiesinę komórkową przez filtr 30 μm.
UWAGA: Filtrowanie komórek jest bardzo ważne dla uzyskania dokładnego pomiaru w analizie FACS. - Przeanalizować próbki przy użyciu systemu FACS.
7. Immunobarwienie
- Utrwal próbkę komórek.
- Odssać medium hodowlane.
- Dodać 4% paraformaldehyd w PBS na 10 min w temperaturze pokojowej.
- Przemyć komórki trzy razy za pomocą PBS.
UWAGA: Dla optymalnego utrwalenia zaleca się stosowanie świeżego roztworu paraformaldehydu.
- Permeabilizować komórki za pomocą 0,2% Triton X-100 przez 15 min, a następnie usunąć odczynnik.
- Dodać 3% albuminy surowicy bydlęcej w celu blokowania komórek przez 30 min.
- Nanieść przeciwciało pierwszorzędowe.
- Usunąć roztwór albuminy surowicy bydlęcej z płytki hodowlanej.
- Inkubować komórki z przeciwciałami pierwszorzędowymi przez noc w temperaturze 4 °C.
- Usunąć roztwór przeciwciał.
- Przemyć komórki trzy razy za pomocą PBS.
- Nanieść przeciwciało drugorzędowe.
- Usunąć roztwór PBS z płytki hodowlanej.
- Inkubować komórki z przeciwciałami drugorzędowymi przez 30 min w temperaturze pokojowej w ciemności.
UWAGA: Pierwszorzędowe mysie przeciwciało monoklonalne przeciwko troponinie T serca (TNNT2) stosuje się w rozcieńczeniu 1:750 w 3% BSA. Drugorzędowe kozie przeciwciało anty-mysie sprzężone z Alexa Fluor 488 rozcieńcza się do 1:1 000 w 3% BSA.
- Dodatkowe barwienie jąder i włókien aktynowych.
- Usunąć roztwór przeciwciał.
- Inkubować komórki w odczynniku do barwienia jąder (Tabela materiałów) i odczynniku do barwienia aktyny (Tabela materiałów) w PBS przez 30 min w temperaturze pokojowej w ciemności.
UWAGA: Do barwienia jąder można użyć 4’, 6-diamidino-2-fenylindolu (DAPI) lub Hoechst 33342. - Przemyć komórki trzy razy za pomocą PBS.
- Wyonać obrazy fluorescencyjne przy użyciu mikroskopu fluorescencyjnego.
Wyniki
Prawidłowo zróżnicowane komórki wykazują spontaniczne skurcze pod mikroskopem (Video 1). Zazwyczaj w 50% studni spontaniczne skurcze pojawiają się w czasie <20 dni (Supplementary Figure 1). W celu potwierdzenia prawidłowego zróżnicowania można zastosować białka markerowe serca (np. cTnT) (Figure 2).
Zazwyczaj komórki z grupy niedokrwiennej wykazują niższą żywotność w testach MTT (Rysunek 3A) oraz kurczliwość (Rysunek 3E,F, Rysunek uzupełniający 2) niż w grupie kontrolnej z normoksją. Ponadto stosunek komórek wybarwionych jodeczkiem propidyny jest wyższy w grupie z niedokrwieniem niż w grupie kontrolnej (Rycina 3B–D), co wskazuje na większe uszkodzenia komórkowe.
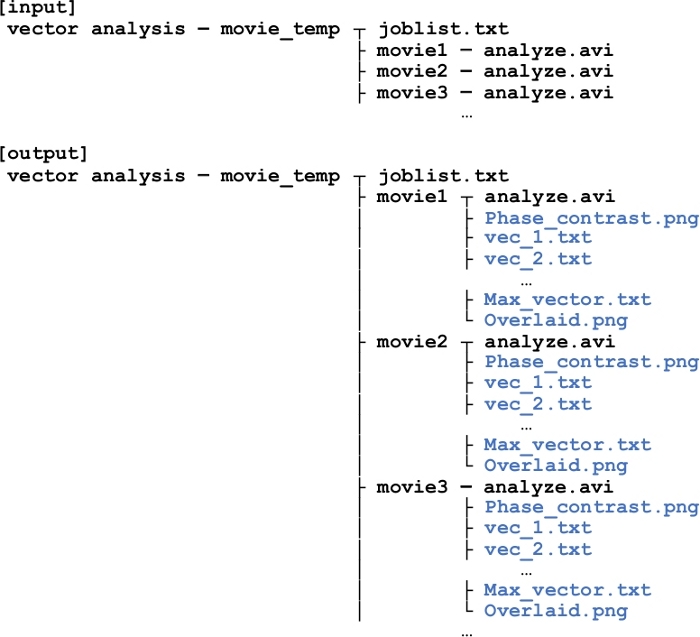
Rycina 1: Struktura folderów dla analizy wektora przemieszczenia przy użyciu ImageJ.
Plik „joblist.txt” opisuje ścieżkę do plików wideo w każdej linii. Jeśli do analizy przeznaczono trzy pliki, utworzone zostaną trzy foldery (movie1, movie2 i movie3), w których należy umieścić plik „analyze.avi” (analizowane wideo). Po wykonaniu analizy przez kod „vector_analysis.ijm” w każdym folderze z filmem zostaną wygenerowane pliki (oznaczone na niebiesko). Informacje zawarte w każdym pliku zostały szczegółowo omówione w tekście głównym. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
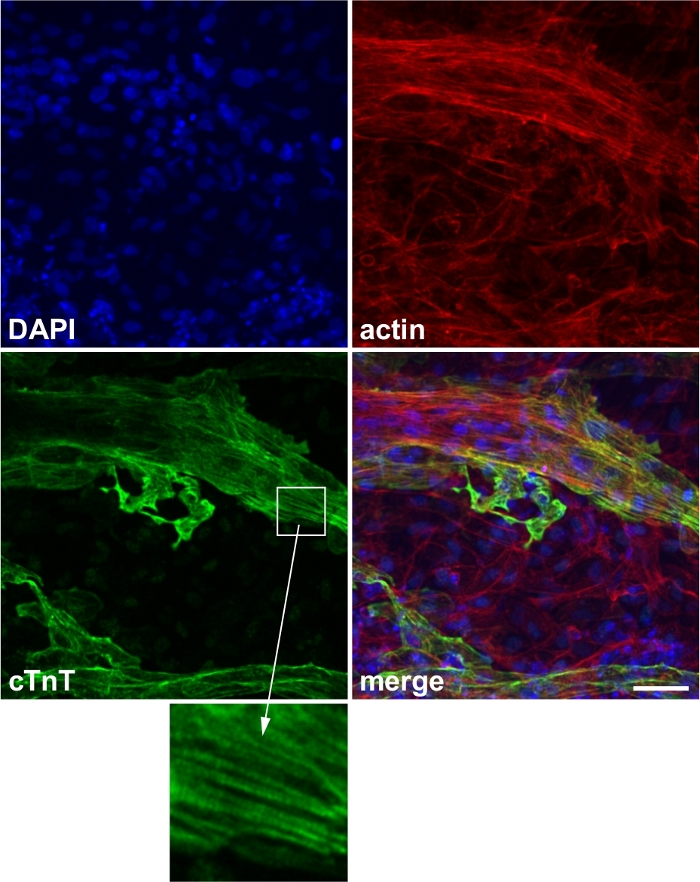
Rycina 2: Reprezentacyjny obraz barwienia markerów sercowych.
Ekspresja białka markerowego serca, troponiny T serca (cTnT). Niebieski: 4’,6-diamidino-2-fenyloindol (DAPI), czerwony: aktyna, zielony: cTnT. Powiększenie: prążkowana ekspresja cTnT, która odpowiada strukturze sarkomeru. Pasek skali, 50 μm. Rycina została zmodyfikowana na podstawie pracy Wei i wsp.13. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
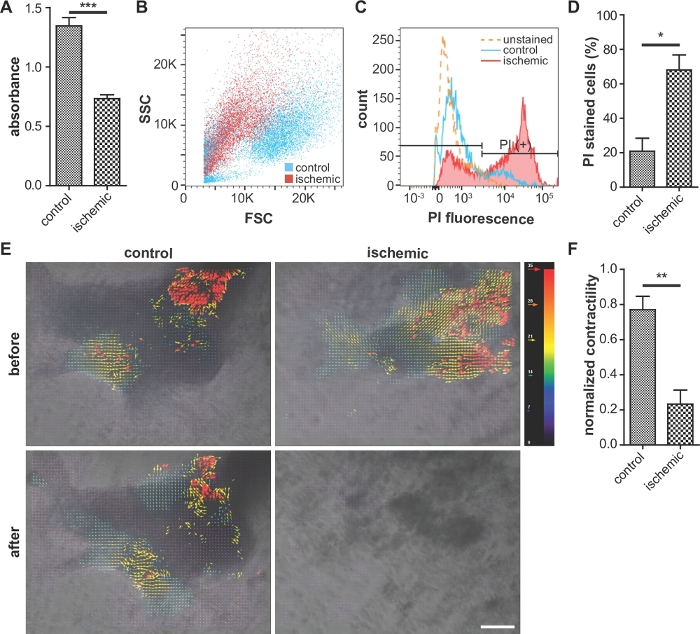
Rysunek 3: Reprezentatywne obrazy testu żywotności komórek, oceny uszkodzeń komórkowych i kurczliwości.
(A) Porównanie żywotności komórek (test MTT). Wyższa absorbancja wskazuje na wyższą żywotność. n = 5 dla każdego stanu. (B, C i D) Analiza cytometryczna przepływowa komórek barwionych jodekiem propidyny (PI). Komórki niedokrwienne wykazują zmniejszoną intensywność rozproszenia przedniego (forward scatter) i zwiększoną fluorescencję PI w porównaniu z kontrolą. (D) Procent komórek barwionych PI w analizie cytometrycznej przepływowej. n = 3 dla każdego stanu. (E) Analiza kurczliwości iPS-CMs przy użyciu oprogramowania ImageJ. Wektory czerwony i niebieski wskazują odpowiednio największe i najmniejsze skurcze. Pasek skali, 100 μm. (F) Ilościowa analiza kurczliwości iPS-CMs przy użyciu kodu. n = 3 dla kontroli i n = 8 dla stanu niedokrwiennego. Słupki błędów reprezentują standardowy błąd średniej. Do analizy statystycznej zastosowano nieparzysty dwustronny test t Studenta. *: p < 0.05, **: p < 0.01. ***: p < 0.0001. Rysunek cytowany z Wei et al.13 Kliknij tutaj, aby zobaczyć powiększoną wersję tego rysunku.
Wideo 1: Zróżnicowane komórki wykazują spontaniczne kurczenie się pod mikroskopem. Kliknij tutaj, aby pobrać to wideo.
Rycina uzupełniająca 1: Analiza Kaplana-Meiera procenta próbek bez skurczów spontanicznych. 50% próbek iPS-CM wykazało skurcze w 20. dniu. W 30. dniu skurcze wystąpiły w 64,4% próbek. n = 83. Kliknij tutaj, aby pobrać tę rycinę.
Rysunek uzupełniający 2: Ocena kurczliwości serca. Skalowaną kurczliwość, uzyskaną poprzez podzielenie kurczliwości C przez liczbę punktów analizy (x, y), przedstawiono dla grup kontrolnej i niedokrwiennej przed i po 24-godzinnej ekspozycji na hipoksję. n = 3 dla grupy kontrolnej i n = 8 dla stanu niedokrwienia. Kliknij tutaj, aby pobrać ten rysunek.
Rycina uzupełniająca 3: Ocena zawartości kardiomiocytów. Immunobarwienie białka markerowego serca na płytce 96-dołkowej. Zielony: cTnT, niebieski: DAPI. Odsetek zróżnicowanych komórek obliczono na 20,7 ± 9,6%, dzieląc powierzchnię regionu zabarwionego na cTnT przez powierzchnię regionu zabarwionego na DAPI. Pasek skali = 1 mm. n = 4 dla warunków kontrolnych. Kliknij tutaj, aby pobrać tę rycinę.
Uzupełniający plik z kodem. Prosimy kliknąć tutaj, aby pobrać ten plik.
Dyskusja
Naukowcy często wykorzystują laboratoryjne modele małych zwierząt do przeprowadzania eksperymentów z IHD. W tym miejscu opracowaliśmy model hodowli komórkowej ludzkiego IHD w celu przeprowadzenia takich eksperymentów.
Głównym problemem, z jakim może się spotkać użytkownik tego protokołu, jest niski wskaźnik zróżnicowanych kardiomiocytów. Należy podjąć kilka kroków z dużą ostrożnością, aby poprawić szybkość pomyślnego różnicowania: (a) należy zachować ostrożność podczas pipetowania, ponieważ komórki łatwo odłączają się po dodaniu odczynnika enzymów dysocjacji komórek, (b) dodanie Y-27632 zwiększa przeżywalność komórek iPS podczas odłączania, oraz (c) czas zmian pożywki na początku różnicowania powinien wynosić dokładnie 48 godzin od siebie, aby zapewnić kontrolowaną ekspresję genów zaangażowanych w różnicowanie.
Jeśli chodzi o białka macierzy zewnątrzkomórkowej używane do powlekania powierzchni płytki hodowlanej, można użyć innych materiałów niż laminina, których użyliśmy w tym protokole. Na przykład Matrigel14,15 i żelatyna16,17 są używane do hodowli hiPSC bez podawania. Według Haraguchi i wsp., hiPSC wysiane na Matrigel zostały z powodzeniem zróżnicowane w arkusz komórek serca18.
Istnieje szereg wcześniejszych badań dotyczących modeli hodowlanych do modelowania chorób z wykorzystaniem kardiomiocytów pochodzących z hiPSC. Jeśli chodzi o modelowanie uszkodzenia niedokrwienno-reperfuzyjnego, wprowadzono manipulacje środowiskiem komórkowym, takie jak hiperkaliemia, kwasica i akumulacja mleczanu19. Inne metody obejmują granulowanie komórek w celu utrudnienia dyfuzji tlenu20 i hamowanie metabolizmu za pomocą cyjanku21. W obecnym protokole uszkodzenie komórek zostało osiągnięte za pomocą stosunkowo prostej metody, a mianowicie 24-godzinnego pozbawienia tlenu i składników odżywczych. Należy jednak zwrócić uwagę na dokładne procesy patofizjologiczne choroby niedokrwiennej serca, ponieważ rzeczywiście istnieją różnice między chorobą in vivo a modelem choroby obecnego protokołu, takie jak obecność lub brak trójwymiarowego środowiska komórkowego i krwi.
Jeśli chodzi o technologiczny aspekt oceny funkcji kardiomiocytów, Toepfer i wsp. opisali algorytm oparty na MatLab do określania skurczu i relaksacji sarkomeru w hiPS-CMs22. Smith i wsp. opisali zaawansowaną metodę wysokoprzepustowej analizy elektrofizjologicznej pobudliwych komórek pochodzących z hiPS-CMs, przy użyciu wyrafinowanych nanotopograficznych układów wieloelektrodowych23,24. Zaletą naszego protokołu jest to, że wymaga on jedynie konwencjonalnego oprogramowania i materiałów eksploatacyjnych, takich jak oprogramowanie imageJ i płytki 96-dołkowe.
Jeśli chodzi o poziom tlenu w sercu, uważa się, że ciśnienie tlenu w żyłach docierających do serca wynosi 40 mmHg25. Według McDougala i wsp. szacuje się, że zewnątrzkomórkowe ciśnienie tlenu w niedotlenieniu wynosi <12,8 mmHg26. Stosując metodę Rounds i wsp.27, ciśnienie tlenu w pożywce hodowlanej (zasolenie: 35‰) w stanie niedotlenienia (2% tlenu) w temperaturze 37 °C poddanej działaniu obecnego protokołu oblicza się na 14,9 mmHg, czyli więcej niż oszacowano powyżej. Co ciekawe, Al-Ani i in. stwierdzili, że w pożywce hodowlanej występuje gradient ciśnienia tlenu, a na ciśnienie tlenu ma wpływ typ komórki, gęstość wysiewu i objętość pożywki28. Zazwyczaj stężenie tlenu na dnie płytki hodowlanej, na której znajdują się komórki, jest najniższe. W związku z tym wpływ głębokości w pożywce hodowlanej jeszcze bardziej obniżyłby efektywne ciśnienie tlenu w pobliżu hiPS-CM. W celu wywołania wystarczającego uszkodzenia hiPS-CM w warunkach niedotlenienia, należy zwrócić szczególną uwagę na głębokość pożywki i gęstość komórek.
Nasz model hiPS-CM, który jest bardzo zbliżony do warunków fizjologicznych ludzkich miocytów serca, korzystnie naśladuje ludzką IHD. Podejścia oparte na modelach zwierzęcych obejmują kwestie etyczne, techniczne i akademickie. W szczególności modele in vivo wymagają zaawansowanej techniki mikrochirurgii w celu uzyskania powtarzalnych danych: np. niedrożność przedniej gałęzi zstępującej lewej tętnicy wieńcowej u gryzoni3. Opisany w niniejszym dokumencie model hiPS-CM pokonuje te krytyczne bariery i stanowi użyteczną, istotną i powtarzalną platformę dla chorób sercowo-naczyniowych.
Należy jednak zwrócić uwagę na pewne ograniczenia. Oczywistą różnicą między kardiomiocytami indukowanymi przez iPS a normalnymi kardiomiocytami jest brak kanalików T29, a w naszym badaniu nie uwzględniliśmy czynników humoralnych, takich jak uszkodzenie tkanek wywołane przez leukocyty i aktywacja układu dopełniacza. Ponadto należy poprawić odsetek zróżnicowanych kardiomiocytów w tym modelu (20,7 ± 9,6%, rysunek uzupełniający 3). Niedawna publikacja Halloina i wsp. opisuje skalowalną, chemicznie zdefiniowaną metodę indukowania czystości hiPS-CM na poziomie >95% za pomocą chemicznych modulatorów szlaku WNT bez konieczności selekcji za pomocą markerów30. Niemniej jednak nasz model ludzkiego IHD jest stosunkowo prosty i ma zastosowanie kliniczne (np. badania przesiewowe leków z wykorzystaniem komórek iPS pochodzących od pacjenta). Nasz model jest również unikalną platformą do dalszego wyjaśniania mechanizmów leżących u podstaw IHD.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
To badanie było wspierane przez JSPS KAKENHI, Fundusz na rzecz Promocji Wspólnych Międzynarodowych Badań (Wspieranie Wspólnych Międzynarodowych Badań), 17KK0168. Autorzy dziękują Centralnemu Laboratorium Badawczemu, Okayama University Medical School za pomoc FACS.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Odczynnik do barwienia aktyny (odczynnik ActinRed 555 ReadyPromes) | Thermo Fisher Scientific, Waltham, MA, USA | R37112 | |
| Przeciwciało przeciw troponinie sercowej T | Thermo Fisher Scientific, Waltham, MA, USA | MA5-12960 | |
| Pożywka podtrzymująca kardiomiocyty (zestaw do różnicowania kardiomiocytów PSC) | Thermo Fisher Scientific, Waltham, MA, USA | A2921201 | |
| Enzymy dysocjacji komórek (TrypLE Select) | Thermo Fisher Scientific, Waltham, MA, Stany Zjednoczone | 12563011 | |
| Pożywka różnicująca A (zestaw do różnicowania kardiomiocytów PSC) | Thermo Fisher Scientific, Waltham, MA, USA | A2921201 | |
| Pożywka różnicująca B (zestaw do różnicowania kardiomiocytów PSC) | Thermo Fisher Scientific, Waltham, MA, Stany | Zjednoczone A2921201 | |
| System | FACS Aria IIIBD Biosciences, San Jose, Kalifornia, Stany Zjednoczone | ||
| Mikroskop fluorescencyjny | KEYENCE, Osaka, Japonia | BZ-X710 | |
| Kozie przeciwciało przeciw myszom Alexa Fluor 488 | Thermo Fisher Scientific, Waltham, MA, USA | A28175 | |
| Ludzkie komórki iPS | RIKEN, Tsukuba, Japonia | 201B7 | |
| Inkubator hipoksyjny | SANYO, Osaka, Japonia | MCO-175M | |
| Pożywka wzrostowa iPSC (Essential 8 Medium) | Thermo Fisher Scientific, Waltham, MA, USA | A1517001 | |
| pożywka do konserwacji iPSC (StemFit AK02N) | Ajinomoto, Tokio, Japonia | RCAK02N | |
| Laminin (iMatrix-511) | Nippi, Tokio, Japonia | iMatrix-511 | |
| (zestaw do oznaczania proliferacji komórek MTT) | Cayman Chemical Company, Ann Arbor, MI, USA | 10009365 | |
| Odczynnik do barwienia jąder (odczynnik NucBlue Fixed Cell ReadyProbes) | Thermo Fisher Scientific, Waltham, MA, USA | R37606 | |
| Triton X-100 | Nacalai Tesque, Kioto, Japonia | 35501-02 |
Bibliografia
- Naghavi, M. Global Burden of Disease Self-Harm, C. Global, regional, and national burden of suicide mortality 1990 to 2016: systematic analysis for the Global Burden of Disease Study 2016. BMJ. 364, 94(2019).
- Nowbar, A. N., Gitto, M., Howard, J. P., Francis, D. P., Al-Lamee, R. Mortality From Ischemic Heart Disease. Circulation: Cardiovascular Quality and Outcomes. 12 (6), 005375(2019).
- Oh, J. G., Ishikawa, K. Experimental Models of Cardiovascular Diseases: Overview. Methods in Molecular Biology. 1816, 3-14 (2018).
- Brodehl, A., et al. Human Induced Pluripotent Stem-Cell-Derived Cardiomyocytes as Models for Genetic Cardiomyopathies. International Journal of Molecular Sciences. 20 (18), (2019).
- Garbern, J. C., et al. Inhibition of mTOR Signaling Enhances Maturation of Cardiomyocytes Derived from Human Induced Pluripotent Stem Cells via p53-Induced Quiescence. Circulation. , (2019).
- Horikoshi, Y., et al. Fatty Acid-Treated Induced Pluripotent Stem Cell-Derived Human Cardiomyocytes Exhibit Adult Cardiomyocyte-Like Energy Metabolism Phenotypes. Cells. 8 (9), (2019).
- Hu, D., et al. Metabolic Maturation of Human Pluripotent Stem Cell-Derived Cardiomyocytes by Inhibition of HIF1alpha and LDHA. Circulation Research. 123 (9), 1066-1079 (2018).
- Correia, C., et al. Distinct carbon sources affect structural and functional maturation of cardiomyocytes derived from human pluripotent stem cells. Scientific Reports. 7 (1), 8590(2017).
- Yang, X., et al. Tri-iodo-l-thyronine promotes the maturation of human cardiomyocytes-derived from induced pluripotent stem cells. Journal of Molecular and Cellular Cardiology. 72, 296-304 (2014).
- Tamargo, J., et al. Genetically engineered mice as a model for studying cardiac arrhythmias. Frontiers in Bioscience. 12, 22-38 (2007).
- Tseng, Q., et al. Spatial organization of the extracellular matrix regulates cell-cell junction positioning. Proceedings of the National Academy of Sciences of the United States of America. 109 (5), 1506-1511 (2012).
- Schneider, C. A., Rasband, W. S., Eliceiri, K. W. NIH Image to ImageJ: 25 years of image analysis. Nature Methods. 9 (7), 671-675 (2012).
- Wei, H., Wang, C., Guo, R., Takahashi, K., Naruse, K. Development of a model of ischemic heart disease using cardiomyocytes differentiated from human induced pluripotent stem cells. Biochemical and Biophysical Research Communications. 520 (3), 600-605 (2019).
- Ghaedi, M., Niklason, L. E. Human Pluripotent Stem Cells (iPSC) Generation, Culture, and Differentiation to Lung Progenitor Cells. Methods in Molecular Biology. 1576, 55-92 (2019).
- Hou, J., et al. Retaining mTeSR1 Medium during Hepatic Differentiation Facilitates Hepatocyte-Like Cell Survival by Decreasing Apoptosis. Cellular Physiology and Biochemistry. 51 (4), 1533-1543 (2018).
- Yoshida, K., et al. Differentiation of mouse iPS cells into ameloblast-like cells in cultures using medium conditioned by epithelial cell rests of Malassez and gelatin-coated dishes. Medical Molecular Morphology. 48 (3), 138-145 (2015).
- Guzzo, R. M., Drissi, H. Differentiation of Human Induced Pluripotent Stem Cells to Chondrocytes. Methods in Molecular Biology. 1340, 79-95 (2015).
- Haraguchi, Y., Matsuura, K., Shimizu, T., Yamato, M., Okano, T. Simple suspension culture system of human iPS cells maintaining their pluripotency for cardiac cell sheet engineering. Journal of Tissue Engineering and Regenerative. 9 (12), 1363-1375 (2015).
- Chen, T., Vunjak-Novakovic, G. In vitro Models of Ischemia-Reperfusion Injury. Regenerative Engineering and Translational Medicine. 4 (3), 142-153 (2018).
- Strijdom, H., Genade, S., Lochner, A. Nitric Oxide synthase (NOS) does not contribute to simulated ischaemic preconditioning in an isolated rat cardiomyocyte model. Cardiovascular Drugs and Therapy. 18 (2), 99-112 (2004).
- Cavalheiro, R. A., et al. Potent cardioprotective effect of the 4-anilinoquinazoline derivative PD153035: involvement of mitochondrial K(ATP) channel activation. PLoS One. 5 (5), 10666(2010).
- Toepfer, C. N., et al. SarcTrack. Circulation Research. 124 (8), 1172-1183 (2019).
- Smith, A. S. T., et al. NanoMEA: A Tool for High-Throughput, Electrophysiological Phenotyping of Patterned Excitable Cells. Nano Letters. , (2019).
- Smith, A. S., Macadangdang, J., Leung, W., Laflamme, M. A., Kim, D. H. Human iPSC-derived cardiomyocytes and tissue engineering strategies for disease modeling and drug screening. Biotechnology Advances. 35 (1), 77-94 (2017).
- Sitkovsky, M., Lukashev, D. Regulation of immune cells by local-tissue oxygen tension: HIF1 alpha and adenosine receptors. Nature Reviews Immunology. 5 (9), 712-721 (2005).
- McDougal, A. D., Dewey, C. F. Modeling oxygen requirements in ischemic cardiomyocytes. Journal of Biological Chemistry. 292 (28), 11760-11776 (2017).
- Rounds, S. A., Wilde, F. D., Ritz, G. F. Chapter A6. Section 6.2. Dissolved oxygen. Report No. 09-A6.2. , Reston, VA. (2006).
- Al-Ani, A., et al. Oxygenation in cell culture: Critical parameters for reproducibility are routinely not reported. PLoS One. 13 (10), 0204269(2018).
- Cadet, J. S., Kamp, T. J. A Recipe for T-Tubules in Human iPS Cell-Derived Cardiomyocytes. Circulation Research. 121 (12), 1294-1295 (2017).
- Halloin, C., et al. Continuous WNT Control Enables Advanced hPSC Cardiac Processing and Prognostic Surface Marker Identification in Chemically Defined Suspension Culture. Stem Cell Reports. 13 (2), 366-379 (2019).
Przedruki i uprawnienia
