Protokół do badania zdarzeń wywołanych przez FcγRIIIa przez przeciwciała terapeutyczne w ludzkich komórkach NK jest opisany tutaj. Ta platforma sztucznej stymulacji umożliwia badanie dalszych funkcji efektorowych, takich jak degranulacja, produkcja chemokin/cytokin i szlaki sygnałowe, w których pośredniczą części FcγRIIIa i Fc przeciwciał zaangażowanych w wiązanie.
Artykuł metodologiczny
Ocena zdarzeń związanych z ludzkimi komórkami NK wywołanych zaangażowaniem FcγRIIIa w obecności przeciwciał terapeutycznych
W tym artykule
Podsumowanie
Streszczenie
Jednym z mechanizmów działania przeciwciał terapeutycznych dla skuteczności klinicznej jest promowanie funkcji związanych z odpornością, takich jak wydzielanie cytokin i cytotoksyczność, napędzanych przez FcγRIIIa (CD16) wyrażanego na komórkach NK (natural killer). Obserwacje te doprowadziły do badań koncentrujących się na metodach zwiększania zdarzeń za pośrednictwem receptora Fc, które obejmują usunięcie ugrupowania fukozy znajdującego się w części Fc przeciwciała. Dalsze badania wyjaśniły mechanistyczne zmiany w sygnalizacji, procesach komórkowych i cechach cytotoksycznych, które zwiększają aktywność ADCC za pomocą afukozylowanych przeciwciał. Ponadto inne badania wykazały potencjalne korzyści płynące z tych przeciwciał w połączeniu z inhibitorami małocząsteczkowymi. Eksperymenty te wykazały mechanizmy molekularne i komórkowe leżące u podstaw korzyści płynących ze stosowania przeciwciał afukozylowanych w warunkach skojarzonych. Wiele z tych obserwacji opierało się na sztucznym teście aktywacji in vitro, w którym FcγRIIIa na ludzkich komórkach NK był aktywowany przez przeciwciała terapeutyczne. Test ten zapewnił elastyczność w badaniu dalszych efektorowych funkcji komórek NK, takich jak produkcja cytokin i degranulacja. Ponadto test ten został wykorzystany do zbadania szlaków sygnałowych i identyfikacji cząsteczek, które można modulować lub wykorzystać jako biomarkery. Wreszcie, inne cząsteczki terapeutyczne (tj. inhibitory małocząsteczkowe) zostały dodane do systemu, aby zapewnić wgląd w połączenie tych środków terapeutycznych z przeciwciałami terapeutycznymi, co jest niezbędne w obecnej przestrzeni klinicznej. Niniejszy manuskrypt ma na celu zapewnienie podstaw technicznych do przeprowadzenia tego testu aktywacji sztucznych ludzkich komórek NK. Protokół demonstruje kluczowe etapy aktywacji komórek, a także potencjalne dalsze zastosowania, które obejmują zarówno odczyty funkcjonalne, jak i bardziej mechanistyczne obserwacje.
Wprowadzenie
W ciągu ostatnich kilku dekad położono ogromny nacisk na rozwój celowanych terapii przeciwnowotworowych z wykorzystaniem przeciwciał. Przeciwciała terapeutyczne, takie jak trastuzumab i rytuksymab, działają poprzez wiele mechanizmów, w tym zapobieganie dimeryzacji cząsteczek sygnałowych i mobilizację układu odpornościowego1,2. To ostatnie osiąga się poprzez cytotoksyczność komórkową zależną od przeciwciał (ADCC), w której limfocyty zwane komórkami NK (natural killer) są wprowadzane do komórki docelowej przez przeciwciało1,2. Umieszczając komórki w pobliżu siebie, komórka NK jest aktywowana i może lizować komórkę nowotworową/docelową poprzez wydzielanie cząsteczek efektorowych3.
Na poziomie molekularnym, część Fab przeciwciała wiąże swój pokrewny antygen wyrażany na komórkach nowotworowych, podczas gdy jego część Fc angażuje FcγRIIIa wyrażony na komórkach NK, aby zbliżyć do siebie dwie komórki1,2. Po włączeniu FcγRIIIa, szlaki sygnałowe (tj. szlaki MAPK i PI3K) napędzają rearanżację cytoszkieletu, produkcję cytokin i cytotoksyczność4,5,6,7,8,9. Tak więc ADCC jest zdarzeniem sterowanym przez FcγRIIIa, w którym pośredniczą komórki NK i przeciwciała.
Ponieważ uważano, że ADCC jest mechanizmem działania tych przeciwciał terapeutycznych, badacze szukali metod na zwiększenie ADCC poprzez modyfikację przeciwciała. Jedną z modyfikacji było usunięcie fukozy z łańcucha oligosacharydowego przyłączonego do asparaginy 297, co zwiększa powinowactwo wiązania części Fc przeciwciała do FcγRIIIa10,11,12. W badaniach na zwierzętach myszy otrzymujące przeciwciała afukozylowane wykazywały wolniejszy wzrost guza w porównaniu z myszami leczonymi jego fukozylowanym odpowiednikiem13. Co ważniejsze, obinutuzumab (np. Gazyva, zatwierdzone przeciwciało afukozylowane) wykazał lepszą skuteczność w porównaniu z rytuksymabem (np. Rituxan, jego fukozylowanym odpowiednikiem) u pacjentów z rozpoznaną przewlekłą białaczką limfocytową lub chłoniakiem grudkowym14,15.
Do niedawna mechanizmy leżące u podstaw zwiększonego ADCC za pomocą afukozylowanych przeciwciał były nieznane. W połączeniu z faktem, że istnieje wiele programów badawczych opracowujących przeciwciała terapeutyczne w celu wykorzystania mechanizmów sterowanych przez FcγRIIIa do celowania w komórki nowotworowe, konieczne jest opracowanie testów in vitro, które badają aspekty molekularne i komórkowe promowane przez te przeciwciała. Zapewnia to fundamentalne zrozumienie mechanizmów działania, a także potencjał do odkrycia biomarkerów. W związku z tym opracowano test sztucznej aktywacji w celu zbadania zależnych od przeciwciał funkcji za pośrednictwem FcγRIIIa, a także sygnalizacji i cech komórkowych8. Dzięki tym badaniom wyjaśniono mechanizmy leżące u podstaw zwiększonej skuteczności afukozylowanych przeciwciał, w których zwiększone powinowactwo wiązania zwiększa sygnalizację, aby promować właściwości komórkowe i cechy cytotoksyczne8.
Obecnym trendem w badaniach klinicznych jest stosowanie kombinacji molekuł terapeutycznych16. Jednym z najczęściej mutowanych szlaków jest szlak PI3K, który skłonił do ogromnego wysiłku w opracowaniu inhibitorów małych cząsteczek, które celują w składniki tego szlaku17,18,19,20. Jednak to, w jaki sposób te cząsteczki działają w połączeniu z przeciwciałami terapeutycznymi, jest stosunkowo nieznane, zwłaszcza w kombinacjach, w których inhibitor może wpływać na cząsteczki, które wymagają szlaku PI3K do funkcjonowania, takie jak te napędzane przez przeciwciała terapeutyczne.
W tym celu, test in vitro zastosowany w badaniach nad przeciwciałami fukozylowanymi został również wykorzystany do zbadania kombinacji inhibitorów PI3K i przeciwciał terapeutycznych. Badania te zdefiniowały molekularną charakterystykę hamowania PI3K w zdarzeniach wywołanych przeciwciałami terapeutycznymi PI3K i opisały, w jaki sposób przeciwciała afukozylowane mogą zrównoważyć tę utratę sygnalizacji9. Odkrycia te są istotne, ponieważ stanowią potencjalne wskazówki dla projektowania badań klinicznych. Ponadto ta seria eksperymentów doprowadziła również do pierwszych opisanych obserwacji dotyczących kinetycznej regulacji szlaku sygnałowego PI3K w celu modulacji transkrypcji i produkcji chemokin/cytokin, które mogą służyć jako potencjalne biomarkery9.
Sztuczny test aktywacji in vitro, używany do definiowania opisanych powyżej cech sygnalizacji i komórek, został zaprojektowany do badania zdarzeń sterowanych przez FcγRIIIa w komórkach NK, w których pośredniczą przeciwciała przy braku komórek docelowych. Bez komórek docelowych w systemie, wszystkie zaobserwowane zdarzenia i funkcje sygnalizacyjne można przypisać bezpośrednio komórkom NK. W przedstawionym teście przeciwciało dodaje się do oczyszczonych komórek NK, w którym to momencie część Fc wiąże FcγRIIIa. Następnie następuje sieciowanie przeciwciała za pomocą przeciwciała przeciwko ludzkiemu łańcuchowi lekkiemu κ w celu sztucznej stymulacji komórek. Sieciowanie przeciwciała naśladuje wiązanie docelowego antygenu w celu wygenerowania platformy sygnalizacyjnej, która wywołuje dalsze zdarzenia. W zależności od długości stymulacji badacze mogą ocenić sygnalizację, procesy komórkowe, cechy cytotoksyczne i funkcje efektorowe8,9. Podobnie, test ten zapewnia również elastyczność w badaniu tych zdarzeń, gdy przeciwciała są połączone z innymi cząsteczkami9.
Razem, jest to idealny test in vitro do badania przeciwciał terapeutycznych, które wywołują odpowiedzi komórek NK poprzez ich FcγRIIIa jako część mechanizmu działania. Protokół ten opisuje wydajność tego testu aktywacji in vitro i zapewnia wgląd w różne odczyty, które można wykonać.
Protokół
Poniższy protokół jest zgodny z wytycznymi komisji etycznej iQ Bioscience ds. badań na ludziach.
1. Izolacja PBMC i wzbogacanie/oczyszczanie komórek NK
UWAGA: Można również zastosować inne metody izolacji komórek jednojądrzastych krwi obwodowej (PBMC) i wzbogacania/oczyszczania.
- Pobrać 200 ml krwi w regulowanych warunkach do probówki zawierającej heparynę.
- Dodać 15 ml pożywki o gradiencie gęstości do probówki o pojemności 50 ml z wbudowaną porowatą barierą. Wiruj probówkę o masie 1000 x g przez 30 s.
- Dodaj 12,5 ml krwi do probówki, a następnie kolejne 12,5 ml PBS i delikatnie odwróć 3x. Wiruj probówkę przy 800 x g przez 15 minut w temperaturze pokojowej (RT) bez przerw.
- Przygotuj stożkową probówkę o pojemności 50 ml z 40 ml PBS dla każdej probówki z porowatą barierą, podczas gdy komórki się obracają.
- Ostrożnie wyjmij probówki i sprawdź po odwirowaniu. Sprawdź, czy nad porowatą barierą, między granicami 20 ml i 25 ml na probówce 50 ml nie ma cienkiej, widocznie białej warstwy PBMC.
- Ostrożnie usuń jak najwięcej płynu z wierzchu za pomocą pipety, nie naruszając cienkiej, białej warstwy PBMC.
- Za pomocą czystej pipety serologicznej o pojemności 10 ml delikatnie usuń warstwę PBMC wraz z przezroczystą, żółtawą warstwą cieczy aż do filtra probówki.
- Wyrzucić PBMC i ciecz do stożkowego pojemnika o pojemności 50 ml zawierającego PBS, przygotowanego w kroku 1.4. Wiruj rurki przy RT i 300 x g przez 5 min.
- Odessać płyn do płukania PBS i dodać dodatkowe 40 ml PBS. Wiruj rurki przy RT i 300 x g przez 5 min.
- Po umyciu policz komórki i zawieś je ponownie w 40 μl 2% BSA/PBS na 1 x 10⁷ komórek.
- Przystąp do izolacji komórek NK przy użyciu wybranej metody. Do wyboru jest ręczne lub automatyczne sortowanie magnetyczne na podstawie kulek9,21. Można również przeprowadzić sortowanie komórek aktywowane fluorescencją22.
- Usunąć małą porcję komórek, aby określić czystość komórek NK za pomocą cytometrii przepływowej. Strategia bramkowania obejmuje następujące elementy: bramkę na żywych komórkach w oparciu o profil rozproszenia do przodu i boku, a następnie ocenę czystości na podstawie markerów NK (np. CD3, CD56) w określonej żywej populacji. Typowa czystość wynosi >95%.
- Po zakończeniu izolacji, wiruj komórki w temperaturze RT i 300 x g przez 5 minut, aby osadzać i aspirować.
- Zawiesić osad komórkowy na 1 x 10⁷ komórek/ml w RPMI 1640 ze składnikami odżywczymi, 10% inaktywowanym termicznie FBS, 1 mM pirogronianem sodu, 55 mM 2-ME i 10 mM HEPES (pH = 7,2).
2. Aktywacja komórek NK za pośrednictwem przeciwciał poprzez FcγRIIIa
- Ustawić schłodzoną mikrowirówkę na 4 °C.
- Dozować 1 x 10⁶ (100 μL) zawieszonych komórek NK do probówki (probówek) o pojemności 1,5 ml i umieścić na lodzie.
UWAGA: Komórki można dozować do 96-dołkowej płytki z dnem w kształcie litery U, jeśli istnieje wiele próbek. - Przygotować 1 μl rytuksymabu o stężeniu 100 μg/ml rytuksymabu (lub przeciwciała będącego przedmiotem zainteresowania) na próbkę i dodać 1 μl do komórek, aby uzyskać końcowe stężenie przeciwciała 1 μg/mL.
UWAGA: Inne cząsteczki mogą być dodawane do komórek w tym momencie lub wcześniej w celu oceny efektów połączenia. W tym przypadku do stymulacji stosowano rytiksumab. We wcześniejszych badaniach inhibitory małych cząsteczek zostały dodane do stymulacji9. - Inkubować próbkę na lodzie przez 30 minut. Podczas inkubacji przygotować 50 μl 50 μg/ml przeciwciała przeciwko ludzkiemu łańcuchowi lekkiemu κ na próbkę w pożywce i ogrzać do 37 °C na bloku grzewczym lub w łaźni wodnej.
- Po inkubacji komórek na lodzie dodać 1 ml lodowatej pożywki i wirować w temperaturze 135 x g przez 5 minut w temperaturze 4 °C. Ponownie przemyć 1 ml lodowatego podłoża .
- Odessać supernatant po ostatnim przemyciu i dodać 50 μl mieszaniny łańcuchów lekkich κ przeciwko człowiekowi, przygotowanej w kroku 2.5.
- Natychmiast inkubować próbki dla określonych przez użytkownika końcowego punktów czasowych w temperaturze 37 °C na bloku grzewczym lub w łaźni wodnej.
- Przerwij stymulację, dodając 1 ml lodowatego podłoża i natychmiast odwiruj próbki w wirówce z chłodzeniem o sile 135 x g przez 5 minut. Przemyj ponownie 1 ml lodowatego podłoża.
3. Dalsze aplikacje i odczyty
- Badanie cząsteczek sygnałowych w komórkach NK stymulowanych przez FcγRIIIa za pomocą analizy western blot
UWAGA: Można stosować różne aparaty do separacji białek i przenoszenia błony.- Po ostatnim przemyciu lodowatym podłożem (krok 2.8) komórki z 20 μl buforu RIPA zawierającego fosfatazę i inhibitory proteazy mieszać przez 30 minut na lodzie.
- Wirować probówki o masie 2100 x g przez 15 minut w temperaturze 4 °C. Przenieść lizat do czystej probówki o pojemności 1,5 ml i dodać odczynniki potrzebne do separacji białek.
- Oddziel białka w żelu SDS-PAGE i przenieś na membranę nitrocelulozową lub PVDF zgodnie ze standardowymi protokołami.
- Zablokuj i sonduj membranę zgodnie z kartą katalogową producenta dla przeciwciała do wykrywania pierwotnego (tutaj zastosowano pAKT, pPRAS 40 i pERK1/2).
- Dodaj sprzężone z HRP przeciwciało drugorzędowe i odczynnik chemiluminescencyjny zgodnie z zaleceniami producenta dotyczącymi membrany PVDF. Do wizualizacji użyj kliszy rentgenowskiej lub przyrządu do wykrywania (w tym przypadku pAKT wykryto przy 60 kDa, pPRAS40 przy 40 kDa, a pERK1/2 przy 42 kDa i 44 kDa).
- Izolacja mRNA i przygotowanie do analizy ekspresji genów komórek NK stymulowanych przez FcγRIIIa (tabela materiałów)
- Po osiągnięciu punktu czasowego stymulacji (krok 2.7) umieść probówkę na lodzie i natychmiast wiruj w wirówce z chłodzeniem o sile 135 x g przez 5 minut (podobnie jak w kroku 2.8).
- Usunąć supernatant i przemyć 2x 1 ml lodowatego PBS.
- Lizuj komórki za pomocą ekstrakcji RNA izotiocyjanianu guanidu (tabela materiałów). Użyj 1 μg mRNA do przeprowadzenia odwrotnej transkrypcji przy użyciu losowych heksamerów z komercyjnym zestawem (Tabela materiałów).
UWAGA: Można zastosować dowolną metodę ekstrakcji RNA lub syntezy cDNA9,23,24. - Zamrażać cDNA w temperaturze -20 °C do czasu analizy ekspresji genów.
- Ocena przegrupowania cytoszkieletu w komórkach NK stymulowanych przez FcγRIIIa
- Po ostatnim przemyciu lodowatym podłożem (krok 2.8) ponownie zawiesić osad komórkowy z 50 μl 3,7% paraformaldehydu na 10 minut w temperaturze pokojowej.
- Dodać 1 ml PBS i wirować w 135 x g przez 5 minut w temperaturze pokojowej. Powtórzyć to pranie jeszcze raz.
- Dodaj 100 μl 0,1% Triton X-100/PBS przez 5 minut, aby przepuszczalność komórek, i obracaj komórki przy 135 x g przez 5 minut w temperaturze pokojowej do osadzania.
- Dodać 100 μl 5 jednostek/ml falloidyny znakowanej AF488 rozcieńczonej w 1% BSA/PBS i inkubować przez 20 minut w temperaturze pokojowej.
- Dodaj 1 ml PBS i wiruj w 135 x g przez 5 minut w temperaturze pokojowej do umycia. Ponownie zawiesić osad komórkowy w żądanej objętości do analizy cytometrii przepływowej.
- Ocena degranulacji komórek NK stymulowanych przez FcγRIIIa przy użyciu barwienia powierzchniowego CD107a
- Inkubować komórki z badanym przeciwciałem na lodzie, jak opisano w krokach 2.1–2.4. Podczas inkubacji należy przygotować 50 μl mieszaniny przeciwciał na próbkę. Przygotować mieszaninę w pożywce komórkowej o końcowym stężeniu 50 μg/ml przeciwciała przeciwko ludzkiemu łańcuchowi lekkiemu κ i 1 μg/ml CD107a znakowanego fluorochromem.
- Po inkubacji komórek na lodzie dodać 1 ml lodowatej pożywki. Wirować w temperaturze 135 x g przez 5 minut w temperaturze 4 °C, a następnie ponownie przemyć 1 ml lodowatego podłoża.
- Odessać supernatant po ostatnim przemyciu, a następnie dodać 50 μl mieszaniny łańcuchów lekkich κ przeciwko człowiekowi i inkubować w temperaturze 37 °C przez żądane punkty czasowe.
- W żądanych punktach czasowych dodać 1 ml PBS i wirować w temperaturze 135 x g przez 5 minut w temperaturze pokojowej. Odessać supernatant i dodać 100 μl 4% paraformaldehydu. Inkubować w temperaturze pokojowej przez 10 minut.
- Dodaj 1 ml PBS i wiruj w 135 x g przez 5 minut w temperaturze pokojowej do umycia. Ponownie zawiesić osad komórkowy w żądanej objętości do analizy cytometrii przepływowej.
- Ocena produkcji chemokin/cytokin z komórek NK stymulowanych przez FcγRIIIa
UWAGA: Do oceny produkcji chemokin i cytokin można stosować różne metody i/lub zestawy.- Po osiągnięciu punktu stymulacji (krok 2.7) natychmiast umieścić probówkę na lodzie i wirować w wirówce z chłodzeniem o sile 135 x g przez 5 minut w temperaturze 4 °C.
- Przenieść supernatant do czystego naczynia. Zamrażać supernatant do czasu oceny stężenia chemokin lub cytokin przy użyciu żądanego testu.
UWAGA: Granulki komórkowe można teraz myć lodowatym PBS i przetwarzać w celu badań nad sygnalizacją, ekspresją genów i rearanżacją cytoszkieletu.
Wyniki
Niezbędne jest zachowanie wysokiej czystości komórek NK, ponieważ fragment Fc przeciwciał może wiązać się z receptorem FcγRIIIa wykazywanym przez inne typy komórek, takie jak monocyty. Przy wysokiej czystości uzyskane obserwacje można przypisać bezpośrednio zdarzeniom zależnym od FcγRIIIa w komórkach NK. W niniejszym przypadku czystość komórek NK wynosiła ponad 90% na podstawie barwienia CD56 i CD3 (Rysunek 1). Ponadto żywotność wynosiła >95%. Należy zachować ostrożność w przypadku izolacji o niższej żywotności. Aby upewnić się, że zdarzenia były napędzane przez FcγRIIIa, wykonano analizy western blot dla p-AKT (pAKT), p-PRAS40 (pPRAS40) oraz p-ERK1/2 (pERK1/2), w których komórki NK aktywowano przez 1–5 min. Jak pokazano, zaobserwowano akumulację tych cząsteczek (Rysunek 2). Podobnie, aktywowane komórki NK wykazywały ekspresję MIP-1α, MIP-1β, IFN-γ i TNF-α, co wykazano w analizie ekspresji genów (Rysunek 3).
Dodatkowo w aktywowanych komórkach zaobserwowano reorganizację cytoszkieletu (Rysunek 4). Odsetek komórek NK stymulowanych przez 4 h wykazywał ekspresję CD107a na powierzchni komórki (Rysunek 5). Ponadto w supernatancie po 3 h stymulacji wykryto IFN-γ, TNF-α, MIP-1α, MIP-1β oraz RANTES (Rysunek 6). Wyniki te są zgodne z opublikowanymi badaniami, ponieważ aktywowane komórki NK wykazują obecność tych ufosforylowanych białek, a także ekspresję genów i produkcję wspomnianych chemokin i cytokin8,9. we wszystkich eksperymentach warunki stymulacji powinny obejmować kontrolę z samym przeciwciałem przeciwko ludzkiemu lekkiemu łańcuchowi κ oraz kontrolę z przeciwciałem bez sieciowania przeciwko ludzkiemu lekkiemu łańcuchowi κ. Komórki NK w tych grupach nie powinny wykazywać sygnałów fosforylacji, degranulacji, produkcji chemokin/cytokin ani ekspresji genów chemokin/cytokin.
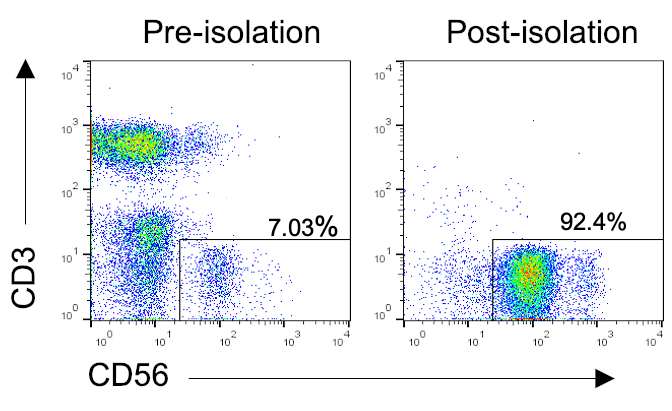
Rysunek 1: Reprezentatywne profile przepływowe czystości komórek NK po izolacji z PBMC. PBMC wyizolowano z krwi zdrowego dawcy, a następnie dokonano wzbogacenia komórek NK przy użyciu metody selekcji negatywnej do izolacji ludzkich komórek NK (Tabela materiałów). W celu określenia czystości komórki barwiono markerami CD56 i CD3 przed i po wzbogaceniu. Reprezentatywne wykresy kropkowe CD56 względem CD3 przed i po izolacji. Aby wyświetlić powiększoną wersję tej ryciny, kliknij tutaj.
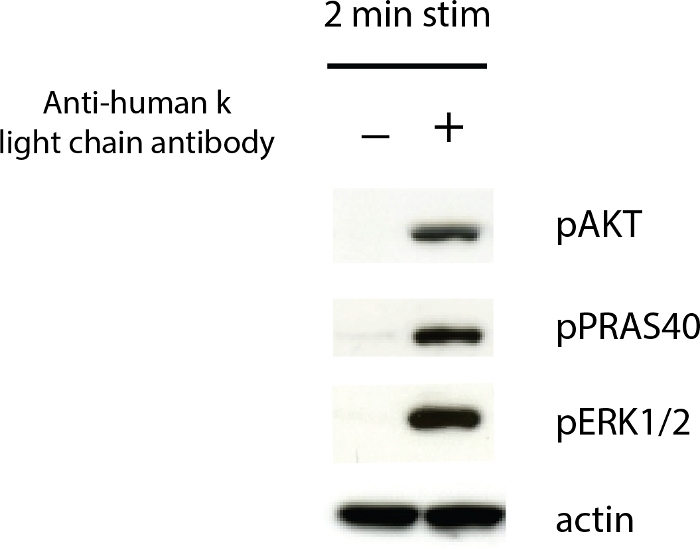
Rysunek 2: Aktywowane przez FcγRIIIa komórki NK wykazują obecność ufosforylowanych cząsteczek sygnałowych. Komórki stymulowano rytuksymabem przez 2 min, a następnie przygotowano lizaty komórkowe zgodnie z protokołem. Lizaty rozdzielono na żelu 4%–12%, po czym przeniesiono na membranę PVDF. Membranę inkubowano z przeciwciałami przeciwko pAKT, pPRAS40, pERK1/2 oraz aktynie. Proszę kliknąć tutaj, aby wyświetlić powiększoną wersję tej ryciny.
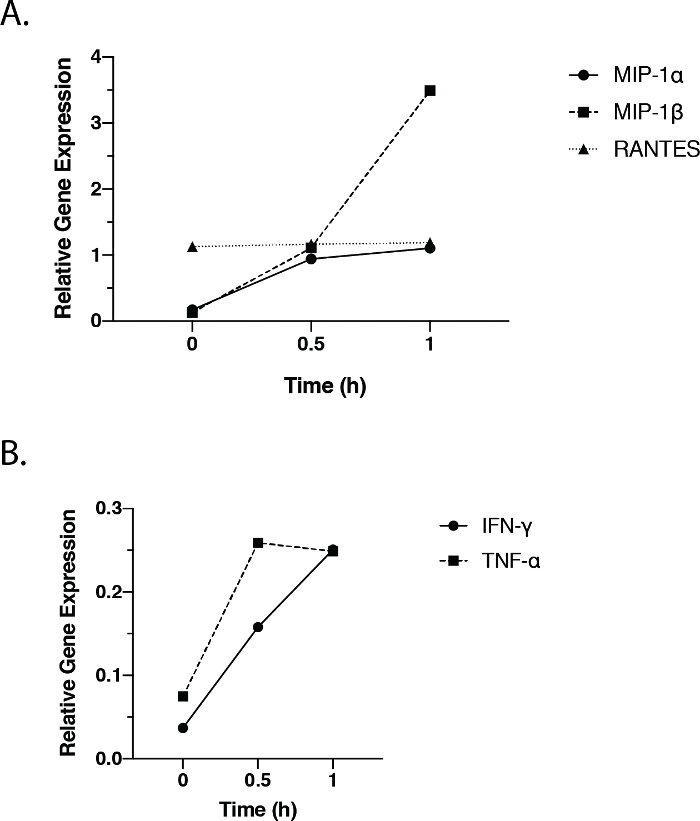
Rycina 3: Aktywowane przez FcγRIIIa komórki NK wykazują ekspresję genów chemokin i cytokin. Komórki NK stymulowano rytuksymabem przez 0 h, 0,5 h i 1 h. Zebrano mRNA, poddano je odwrotnej transkrypcji, a następnie analizie qPCR w celu oznaczenia poziomu MIP-1α, MIP-1β, RANTES, IFN-γ i TNF-α (Tabela materiałów). (A) Względna ekspresja MIP-1α, MIP-1β i RANTES w każdym punkcie czasowym. (B) Względna ekspresja IFN-γ i TNF-α w poszczególnych punktach czasowych. Wartości znormalizowano względem genu aktyny. Kliknij tutaj, aby wyświetlić powiększoną wersję tej figury.
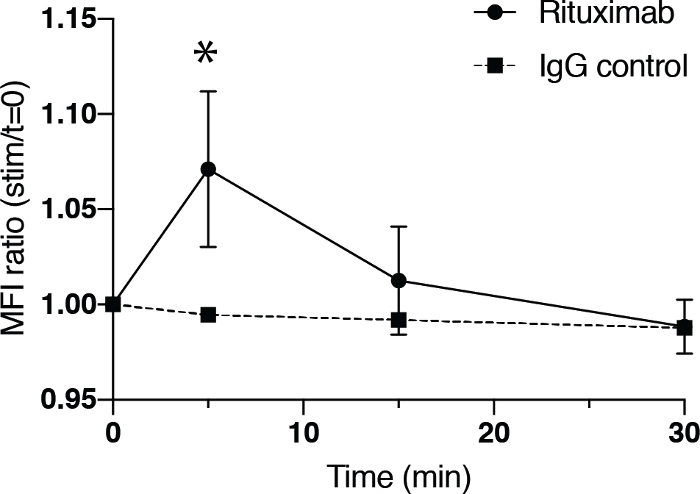
Rysunek 4: Aktywowane przez FcγRIIIa komórki NK wykazują reorganizację cytoszkieletu. Komórki NK stymulowano rytuksymabem przez 0 min, 5 min, 15 min i 30 min, a następnie oceniono reorganizację cytoszkieletu za pomocą barwienia falloidyną i cytometrii przepływowej. Stosunek MFI w badanym punkcie czasowym do MFI w czasie 0 dla komórek NK stymulowanych rytuksymabem (koło, linia ciągła) lub samym przeciwciałem wtórnym (kwadrat, linia przerywana). Słupki przedstawiają SD z czterech powtórzeń. Gwiazdki oznaczają istotność statystyczną na podstawie dwustronnego nieparzystego testu t Studenta (*p < 0.05). Aby wyświetlić powiększoną wersję tej figury, kliknij tutaj.
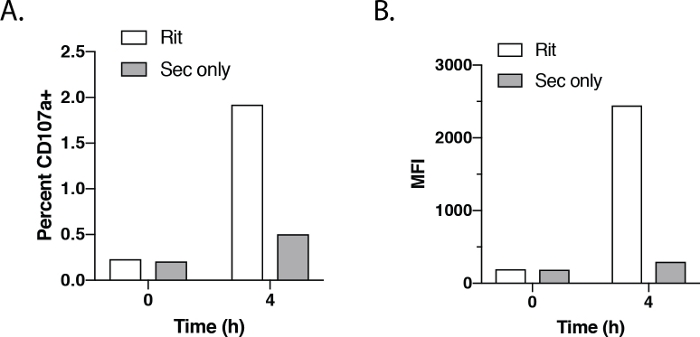
Rysunek 5: NK aktywowane przez FcγRIIIa wykazują ekspresję CD107a. Komórki NK stymulowano rytuksymabem przez 4 h, a następnie oceniano degranulację za pomocą CD107a i cytometrii przepływowej.A) Procent komórek NK wykazujących ekspresję CD107a po stymulacji rytuksymabem (białe słupki) lub przeciwciałem przeciwko ludzkiemu lekkiemu łańcuchowi κ (szare słupki) w czasie 0 h i 4 h. (B) MFI CD107a komórek NK stymulowanych rytuksymabem (białe słupki) lub przeciwciałem przeciwko ludzkiemu lekkiemu łańcuchowi κ (szare słupki) po 0 h i 4 h inkubacji. Aby wyświetlić powiększoną wersję tej ilustracji, kliknij tutaj.
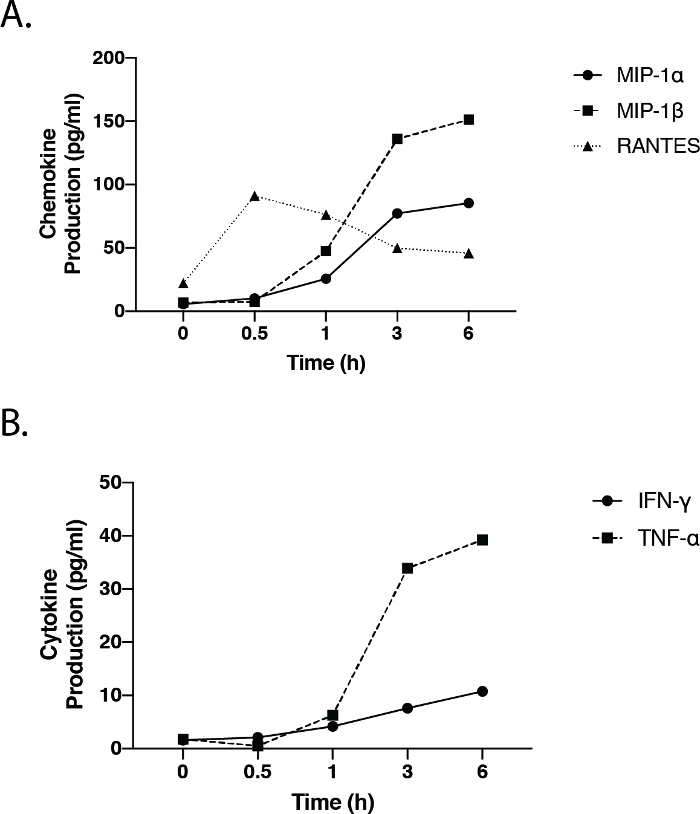
Rycina 6: Aktywowane przez FcγRIIIa komórki NK wydzielają chemokiny i cytokiny. Komórki NK stymulowano rytuksymabem przez 0, 0,5, 1, 3 i 6 godzin. Zebrany nadpływ poddano analizie w celu pomiaru uwalniania MIP-1α, MIP-1β, RANTES, IFN-γ i TNF-α przy użyciu metody oceny cytokin opartej na przepływie i kuleczkach (Tabela materiałów). (A) Produkcja MIP-1α, MIP-1β i RANTES w każdym punkcie czasowym. (B) produkcja IFN-γ i TNF-α w każdym punkcie czasowym. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
Dyskusja
Protokół ten opisuje metody badania zdarzeń sterowanych przez FcγRIIIa w komórkach NK, w których pośredniczą przeciwciała. Techniki te pozwalają na ocenę potencjalnych mechanizmów działania przeciwciał terapeutycznych, które sugeruje się jako ADCC 1,2. W szczególności metody te zapewniają elastyczność w badaniu podstawowych molekularnych szlaków sygnałowych i procesów komórkowych, które są odpowiedzialne za ADCC. Umożliwiają również obserwację innych funkcji efektorowych, takich jak produkcja chemokiny i cytokin. Ponadto metody te pozwalają na identyfikację potencjalnych biomarkerów i cząsteczek, które mogą być ukierunkowane na modulację ADCC.
Podstawą tego protokołu jest sztuczna stymulacja komórek NK poprzez FcγRIIIa przeciwciałami przy braku komórek docelowych. Komórki docelowe związane z przeciwciałami zazwyczaj służą do promowania sieciowania receptorów Fc w celu utworzenia platformy, która napędza sygnalizację i dalsze efekty. Zamiast tego sieciowanie odbywa się przy użyciu przeciwciała przeciwko ludzkiemu łańcuchowi lekkiemu κ w tym teście, omijając potrzebę stymulacji komórek docelowych przez komórki NK. Bez komórek docelowych wyniki i obserwacje można przypisać bezpośrednio komórkom NK, zakładając, że proces oczyszczania zakończył się sukcesem.
Co ważne, użycie przeciwciała anty-ludzkiego łańcucha lekkiego κ do sieciowania przeciwciała nie zakłóca powinowactwa wiązania części Fc do FcγRIIIa, interakcji, która dyktuje siłę odpowiedzi 10,11,12,13. Rzeczywiście, badania wykazały, że przeciwciała afukozylowane zwiększają ADCC ze względu na ich zwiększone powinowactwo do FcγRIIIa 10,11,12,13. Późniejsze badania wykazały, że na to zwiększone powinowactwo nie ma wpływu substytut przeciwciała drugorzędowego przeciwko ludzkiemu łańcuchowi lekkiemu κ i można je wykorzystać do zbadania podstaw zwiększonego ADCC8. Aby zapewnić, że komórka NK jest stymulowana poprzez sieciowanie przeciwciała, należy uwzględnić dwie kontrole ujemne: 1) tylko przeciwciało terapeutyczne bez drugorzędowego przeciwciała przeciwko ludzkiemu łańcuchowi lekkiemu κ i 2) tylko drugorzędowe przeciwciało przeciwko ludzkiemu łańcuchowi lekkiemu κ. W obu przypadkach nie powinna być generowana żadna funkcja sygnalizacyjna ani efektorowa.
Metoda ta zapewnia również elastyczność w badaniu wpływu przeciwciał terapeutycznych na inhibitory małocząsteczkowe. Inhibitor można dodać przed usieciowaniem z przeciwciałem drugorzędowym, aby inhibitor miał czas na zaangażowanie się w swój cel. Należy jednak przeprowadzić badania w celu określenia optymalnego czasu wstępnego leczenia inhibitorem; W ten sposób inhibitor ma maksymalny wpływ na stymulację. Mając to na uwadze, naukowcy mogą również zdecydować się na zbadanie skutków działania inhibitora po stymulacji. W takim przypadku inhibitor może zostać dodany po usieciowaniu, aby zbadać, jak wpływa na sygnały i procesy, które są już generowane. Opisana tutaj metoda zapewnia maksymalną elastyczność w badaniu efektów kombinatorycznych różnych inhibitorów małocząsteczkowych z przeciwciałami terapeutycznymi.
Jak wspomniano powyżej, po stymulacji można wykonać różne odczyty. Western blot można przeprowadzić w celu zbadania sygnalizacji za pomocą SDS-PAGE i systemów transferu membranowego różnych dostawców. Podobnie, ekspresję genów można również ocenić za pomocą różnych metod ekstrakcji RNA, odczynników do odwrotnej transkrypcji i instrumentów do ekspresji genów. Wreszcie, można również przeprowadzić barwienie białka wewnątrzkomórkowego lub zewnątrzkomórkowego, w którym próbki można analizować przy użyciu różnych cytometrów przepływowych. W przypadku barwienia cytokiny wewnątrzkomórkowej i CD107a (krok 3.4, który można ocenić jednocześnie) należy dodać monenzynę i/lub brefeldynę A w celu maksymalizacji sygnałów. Używaliśmy różnych platform dla każdego celu eksperymentalnego i nadal zaobserwowaliśmy podobne wyniki. Dlatego metodę można uzupełnić różnymi odczynnikami, platformami i instrumentami, w zależności od badania.
Czas sieciowania w celu stymulacji będzie zależał od celu badania. Jeśli pożądane są badania sygnalizacyjne, typowy czas stymulacji sieciowania wynosi od 2 min do 10 min. akumulacja pAKT, pPRAS40 i pERK1/2 osiąga szczyt po 2 minutach i znika po 10 minutach 8,9. W przypadku badań funkcjonalnych (tj. obejmujących produkcję chemokin/cytokin) komórki muszą być stymulowane przez co najmniej 30 minut, w zależności od analitu9. Analiza ekspresji genów zazwyczaj wymaga również 30 minut stymulacji9. Należy zachować ostrożność podczas używania ekspresji genu RANTES jako odczytu, ponieważ produkcja mRNA RANTES jest niezależna od aktywacji transkrypcyjnej, ponieważ jest ono już przechowywane w komórkach w celu szybkiej translacji i uwolnienia białka po stymulacji25. Natomiast degranulacja wymaga co najmniej 3 godzin stymulacji. Pomimo tych ogólnych obserwacji, naukowcy powinni przeprowadzić badania kinetyczne w celu określenia optymalnego czasu stymulacji dla poszczególnych cząsteczek będących przedmiotem zainteresowania.
Podobnie, naukowcy powinni miareczkować badane przeciwciało, aby określić optymalne stężenie, ponieważ przeciwciała o różnej specyficzności wiążą się z FcγRIIIa z różnym powinowactwem, nawet jeśli są tego samego izotypu. Na przykład rytuksymab i trastuzumab są izotypami IgG1, ale trastuzumab wiąże się silniej z polimorfizmem waliny FcγRIIIa niż rytuksymab26,27. Ta różnica w powinowactwie może prowadzić do różnic funkcjonalnych, takich jak degranulacja, jak zaobserwowano w opublikowanych badaniach8.
Określenie optymalnego stężenia jest również ważne ze względu na niskie powinowactwo części Fc przeciwciała do FcγRIIIa. Może to spowodować zmycie przeciwciała, ponieważ protokół obejmuje etapy płukania po związaniu przeciwciała z receptorem Fc. Może to następnie prowadzić do braku czułości w testach, co sugeruje niski odsetek komórek CD107a dodatnich po stymulacji (ryc. 5). Jednak określenie optymalnego stężenia powinno dać pewność, że wyniki nie wynikają z braku czułości. Ponadto komórki są wyraźnie aktywowane w testach biochemicznych i funkcjonalnych, które wykorzystują odczyty komórek masowych, w przeciwieństwie do odczytów pojedynczych komórek (ryc. 2, ryc. 3, ryc. 6).
Protokół jest również ograniczony, ponieważ nie naśladuje całkowicie tego, co dzieje się fizjologicznie. Stosowane drugorzędowe przeciwciało anty-ludzkie K ma imitować sieciowanie generowane przez antygen docelowy ulegający ekspresji na komórkach. W tym przypadku dodaje się nasyconą ilość przeciwciała drugorzędowego, aby wygenerować maksymalną odpowiedź. Jednak odrębne komórki docelowe będą wyrażać różne poziomy antygenu, co wpłynie na sieciowanie i odpowiedź. Obecnie platforma ta nie jest zoptymalizowana pod kątem naśladowania efektów różnych poziomów ekspresji antygenu.
Innym czynnikiem, który należy wziąć pod uwagę podczas przeprowadzania tych eksperymentów, jest zmienność między dawcami wynikająca z różnych środowisk genetycznych i historii immunologicznej wśród poszczególnych osób. Dlatego należy zachować ostrożność podczas porównywania odpowiedzi komórek NK od różnych dawców w tych samych testach. Podobnie, w przypadku gdy korzysta się z różnych dawców, należy wyciągać jedynie ogólne wnioski.
Podsumowując, opisana metoda jest prostą i elastyczną platformą stymulacyjną do badania zdarzeń za pośrednictwem FcγRIIIa w komórkach NK. Został on wykorzystany do lepszego zrozumienia podstaw zwiększonego ADCC i skuteczności obserwowanej w przypadku przeciwciał afukozylowanych8. Metodę tę zastosowano również w badaniu łączącym przeciwciała terapeutyczne i małocząsteczkowe inhibitory PI3K9. Dodatkowo zidentyfikowano nieznany wcześniej mechanizm wytwarzania chemokin i cytokin regulowanych przez pS69. W związku z tym przyszłe badania z wykorzystaniem tej sztucznej platformy sygnalizacyjnej mogą dokładniej wyjaśnić mechanizmy regulacji funkcji efektorowych sterowanych przez FcγRIIIa. Może również potencjalnie zidentyfikować nowe cząsteczki ważne dla tych mechanizmów, a także nowe role znanych cząsteczek.
Oświadczenia
Wszyscy autorzy są lub byli pracownikami lub konsultantami iQ Biosciences.
Podziękowania
Autorzy dziękują Jamesowi Lee i Christopherowi Ng za komentarze i redakcję tego rękopisu.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| 16% paraformaldehyd | Thermo Fisher Scientific | 50-980-487 | |
| Alexa Fluor 488 falloidyna | Thermo Fisher Scientific | A12379 | |
| przeciwciało przeciw myszom HRP | Technologie sygnalizacji komórkowej | 7076 | |
| Instrument AutoMACS | NK Miltenyi | ; można użyć | |
| innego instrumentu do izolacjiB-merkaptoetanol | Thermo Fisher Scientific | 21985023 | |
| Albumina w surowicy bydlęcej Frakcja V, bez kwasów tłuszczowych | Przeciwciało Millipore Sigma | 10775835001 | |
| CD107a APC | Biolegend | 328620 | |
| Cytokina 30-Plex Panel dla ludzi | Thermo Fisher Scientific | LHC6003M | metoda chemokina/cytokina; można zastosować inną metodę analizy chemokin/cytokin |
| FBS | Hyclone | SH30071.01 | |
| Kozie przeciwciało anty-ludzkie i kappa; łańcucha lekkiego | Koktajl Millipore Sigma | AP502 | |
| Halt Proteaza i inhibitor fosfatazy | Thermo Fisher Scientific | 78440 | |
| HEPES | Thermo Fisher Scientific | 15630080 | |
| Zestaw do odwrotnej transkrypcji cDNA o dużej pojemności | Thermo Fisher Scientific | 4368814 | metoda transkrypcji cDNA; stosowana zgodnie z protokołem producenta |
| IFN-? startery | Thermo Fisher Scientific | Hs00989291_m1 | |
| Probówka Leukosep (50 ml stożkowa z porowatą barierą) | Greiner | 227290 | |
| Lymphoprep (medium gradientu gęstości) | Stemcell | 7851 | |
| MIP-1? startery | Thermo Fisher Scientific | Hs00234142_m1 | |
| MIP-1β startery | Thermo Fisher Scientific | Hs99999148_m1 | |
| zestaw do izolacji komórek NK | Miltenyi | 130-092-657 | Zestaw do izolacji komórek NK; można użyć innego zestawu izolacyjnego |
| NuPAGE 4-12% Bis-Tris Żele białkowe | Thermo Fisher Scientific | zastosować inny system separacji białek | |
| Przeciwciało pAKT (S473) | Technologie sygnalizacji komórkowej | 4060 | |
| Przeciwciało pERK1/2 | Technologie sygnalizacji komórkowej | 4370 | |
| Przeciwciało pPRAS40 | Technologie sygnalizacji komórkowej | 13175 | |
| Membrana PVDF | Thermo Fisher Scientific | nitroceluloza może być stosowana | |
| Startery RANTES | Thermo Fisher Scientific | Hs00982282_m1 | |
| Bufor RIPA | Millipore Sigma | R0278 | |
| RPMI z/glutamax | Thermo Fisher Scientific | 61870 | |
| Pirogronian sodu | Thermo Fisher Scientific | 11360070 | |
| Podkłady TNF-? | Thermo Fisher Scientific | Hs00174128_m1 | |
| Triton X-100 | Thermo Fisher Scientific | 85111 | |
| TRIzol | Thermo Fisher Scientific | 15596018 | metoda izolacji RNA; stosowany zgodnie z protokołem producenta |
| Moduł transferowy Xcell Blot II | Thermo Fisher Scientific | można zastosować inny system separacji białek | |
| komór do elektroforezy żelu białkowego Xcell SureLock | Thermo Fisher Scientific | można zastosować inny system separacji białek | |
| β-aktyna Przeciwciało HRP | Abcam ab6721 | ||
| β-aktyna podkłady | Thermo Fisher Scientific | Hs00982282_m1 |
Bibliografia
- Hudis, C. A. Trastuzumab - Mechanism of Action and Use in Clinical Practice. New England Journal of Medicine. 357 (1), 39-51 (2007).
- Weiner, G. J. Rituximab: mechanism of action. Seminars inHhematology. 47 (2), 115-123 (2010).
- Orange, J. S. Formation and function of the lytic NK-cell immunological synapse. Nature Reviews Immunology. 8 (9), 713-725 (2008).
- Bonnema, J. D., Karnitz, L. M., Schoon, R. A., Abraham, R. T., Leibson, P. J. Fc receptor stimulation of phosphatidylinositol 3-kinase in natural killer cells is associated with protein kinase C-independent granule release and cell-mediated cytotoxicity. The Journal of Experimental Medicine. 180 (4), 1427-1435 (1994).
- Jiang, K., et al. Pivotal role of phosphoinositide-3 kinase in regulation of cytotoxicity in natural killer cells. Nature Immunology. 1 (5), 419-425 (2000).
- Kanakaraj, P., et al. Phosphatidylinositol-3 kinase activation induced upon Fc gamma RIIIA-ligand interaction. The Journal of Experimental Medicine. 179 (2), 551-558 (1994).
- Orange, J. S., Harris, K. E., Andzelm, M. M., Valter, M. M., Geha, R. S., Strominger, J. L. The mature activating natural killer cell immunologic synapse is formed in distinct stages. Proceedings of the National Academy of Sciences. 100 (24), 14151-14156 (2003).
- Liu, S. D., et al. Afucosylated Antibodies Increase Activation of FcγRIIIa-Dependent Signaling Components to Intensify Processes Promoting ADCC. Cancer Immunology Research. 3 (2), 173-183 (2015).
- Romeo, V., Gierke, S., Edgar, K. A., Liu, S. D. Effects of PI3K Inhibition on Afucosylated Antibody-Driven FcγRIIIa Events and Phospho-S6 Activity in NK Cells. The Journal of Immunology. 203 (1), 137-147 (2019).
- Mössner, E., et al. Increasing the efficacy of CD20 antibody therapy through the engineering of a new type II anti-CD20 antibody with enhanced direct and immune effector cell-mediated B-cell cytotoxicity. Blood. 115 (22), 4393-4402 (2010).
- Shields, R. L., et al. Lack of fucose on human IgG1 N-linked oligosaccharide improves binding to human Fcgamma RIII and antibody-dependent cellular toxicity. The Journal of Biological Chemistry. 277 (30), 26733-26740 (2002).
- Shinkawa, T., et al. The absence of fucose but not the presence of galactose or bisecting N-acetylglucosamine of human IgG1 complex-type oligosaccharides shows the critical role of enhancing antibody-dependent cellular cytotoxicity. The Journal of Biological Chemistry. 278 (5), 3466-3473 (2003).
- Junttila, T. T., et al. Superior In vivo Efficacy of Afucosylated Trastuzumab in the Treatment of HER2-Amplified Breast Cancer. Cancer Research. 70 (11), 4481-4489 (2010).
- Goede, V., et al. Obinutuzumab (GA101) plus chlorambucil (Clb) or rituximab (R) plus Clb versus Clb alone in patients with chronic lymphocytic leukemia (CLL) and preexisting medical conditions (comorbidities): Final stage 1 results of the CLL11 (BO21004) phase III trial. Journal of Clinical Oncology. 31, 15_suppl 7004(2013).
- Sehn, L. H., et al. Randomized Phase II Trial Comparing Obinutuzumab (GA101) With Rituximab in Patients with Relapsed CD20+ Indolent B-Cell Non-Hodgkin Lymphoma: Final Analysis of the GAUSS Study. Journal of Clinical Oncology. 33 (30), 3467-3474 (2015).
- Pons-Tostivint, E., Thibault, B., Guillermet-Guibert, J. Targeting PI3K Signaling in Combination Cancer Therapy. Trends in Cancer. 3 (6), 454-469 (2017).
- Engelman, J. A. Targeting PI3K signalling in cancer: opportunities, challenges and limitations. Nature Reviews. Cancer. 9 (8), 550-562 (2009).
- Fruman, D. A., Rommel, C. PI3K and cancer: lessons, challenges and opportunities. Nature Reviews. Drug Discovery. 13 (2), 140-156 (2014).
- Janku, F., Yap, T. A., Meric-Bernstam, F. Targeting the PI3K pathway in cancer: are we making headway. Nature Reviews. Clinical Oncology. 15 (5), 273-291 (2018).
- Samuels, Y., et al. High frequency of mutations of the PIK3CA gene in human cancers. Science. 304 (5670), New York, N.Y. 554(2004).
- Kanevskiy, L. M., Telford, W. G., Sapozhnikov, A. M., Kovalenko, E. I. Lipopolysaccharide induces IFN-γ production in human NK cells. Frontiers in Immunology. 4, (2013).
- Romagnani, C., et al. Activation of human NK cells by plasmacytoid dendritic cells and its modulation by CD4+ T helper cells and CD4+ CD25hi T regulatory cells. European Journal of Immunology. 35 (8), 2452-2458 (2005).
- Sivori, S., et al. CpG and double-stranded RNA trigger human NK cells by Toll-like receptors: Induction of cytokine release and cytotoxicity against tumors and dendritic cells. Proceedings of the National Academy of Sciences. 101 (27), 10116-10121 (2004).
- Hanna, J., et al. Novel Insights on Human NK Cells' Immunological Modalities Revealed by Gene Expression Profiling. The Journal of Immunology. 173 (11), 6547-6563 (2004).
- Swanson, B. J., Murakami, M., Mitchell, T. C., Kappler, J., Marrack, P. RANTES production by memory phenotype T cells is controlled by a posttranscriptional, TCR-dependent process. Immunity. 17 (5), 605-615 (2002).
- Jo, M., Kwon, H. S., Lee, K. H., Lee, J. C., Jung, S. T. Engineered aglycosylated full-length IgG Fc variants exhibiting improved FcγRIIIa binding and tumor cell clearance. mAbs. 10 (2), 278-289 (2018).
- Isoda, Y., et al. Importance of the Side Chain at Position 296 of Antibody Fc in Interactions with FcγRIIIa and Other Fcγ Receptors. PLoS ONE. 10 (10), 0140120(2015).
Przedruki i uprawnienia
