Oikopleura dioica to organizm modelowy osłonic w różnych dziedzinach biologii. Opisujemy metody pobierania próbek, identyfikację gatunków, konfigurację hodowli i protokoły hodowli zwierząt i paszy dla glonów. Zwracamy uwagę na kluczowe czynniki, które przyczyniły się do wzmocnienia systemu kultury oraz omawiamy możliwe problemy i rozwiązania.
Artykuł metodologiczny
Usprawnione pobieranie próbek i hodowla pelagicznych larw kosmopolitycznych (Oikopleura dioica)
W tym artykule
Podsumowanie
Streszczenie
Oikopleura dioica to planktoniczny strunowca o wyjątkowej zdolności filtrowania, szybkim czasie generacji, zachowanym wczesnym rozwoju i zwartym genomie. Z tych powodów jest uważany za użyteczny organizm modelowy do morskich badań ekologicznych, ewolucyjnej biologii rozwoju i genomiki. Ponieważ badania często wymagają stałego dopływu zasobów zwierzęcych, przydatne jest stworzenie niezawodnego, łatwego w utrzymaniu systemu hodowli. Tutaj opisujemy krok po kroku metodę tworzenia kultury O. dioica. Opisujemy, w jaki sposób wybrać potencjalne miejsca pobierania próbek, metody pobierania, identyfikację docelowych zwierząt oraz konfigurację systemu hodowli. Udzielamy porad dotyczących rozwiązywania problemów w oparciu o własne doświadczenia. Zwracamy również uwagę na kluczowe czynniki, które pomagają utrzymać solidny system hodowli. Chociaż przedstawiony tutaj protokół hodowli jest zoptymalizowany pod kątem O. dioica, mamy nadzieję, że nasza technika pobierania próbek i konfiguracja hodowli zainspirują nowe pomysły na utrzymanie innych delikatnych bezkręgowców pelagicznych.
Wprowadzenie
Organizmy modelowe odegrały kluczową rolę w rozwiązywaniu wielu problemów biologicznych, w tym związanych z rozwojem, genetyką i fizjologią. Co więcej, dodatkowe organizmy modelowe ułatwiają nowe odkrycia, a zatem mają kluczowe znaczenie dla lepszego zrozumienia natury1,2. Zooplankton morski to zróżnicowane grupy organizmów, które odgrywają ważną rolę w ekosystemach oceanicznych3,4,5,6. Pomimo swojej liczebności i znaczenia ekologicznego, galaretowate organizmy, takie jak osłonice planktonowe, są często niedostatecznie reprezentowane w badaniach nad bioróżnorodnością planktonu, ponieważ ich przezroczystość i kruchość sprawiają, że zbieranie i identyfikacja w terenie są trudne7,8. Dostosowane techniki pobierania próbek i hodowla laboratoryjna pozwalają na dokładniejszą obserwację zwierząt in vitro, co przyczyniło się do pogłębienia wiedzy w zakresie biologii osłonic planktonowych9,10,11,12.
Larwy (Wyrostki robaczkowe) to klasa swobodnie pływających osłonic morskich, obejmująca około 70 opisanych gatunków na całym świecie8,13. Ponieważ są jedną z najliczniejszych grup w zbiorowiskach zooplanktonu14,15,16,17, larwy stanowią główne źródło pożywienia dla większych organizmów planktonowych, takich jak larwy ryb18,19. W przeciwieństwie do workowatych - siedzących osłonic - larw zachowują morfologię podobną do kijanki i pozostają planktoniczne przez całe życie20. Każde zwierzę żyje w samodzielnie zbudowanej, skomplikowanej strukturze filtracyjnej, zwanej domem. Gromadzą cząstki stałe w swoich domach, tworząc prądy wodne poprzez falujący ruch swoich ogonów21. Zapchane domy są wyrzucane w ciągu dnia, niektóre z nich tworzą agregaty węglowe i ostatecznie opadają na dno morskie22; Tak więc larwy odgrywają główną rolę w globalnym przepływie węgla23. Według doniesień większość gatunków żyje w strefie pelagicznej w obrębie górnych 100 m słupa wody13; jednak wiadomo, że gigantyczna larwa Bathochordaeus zamieszkuje głębokości 300 m24. Badanie przeprowadzone na Bathochordaeus w Monterey Bay w Kalifornii ujawniło, że zwierzęta te służą również jako biologiczny wektor mikroplastików, co sugeruje potencjalne znaczenie w zrozumieniu roli wyrostka robaczkowego w pionowym transporcie i dystrybucji mikroplastików w oceanach25.
Oikopleura dioica, gatunek larw, przyciągnął uwagę w ostatnich latach jako organizm modelowy ze względu na kilka niezwykłych cech. Jest powszechnie zgłaszany we wszystkich oceanach świata. Jest szczególnie obfity w wodach przybrzeżnych26, co umożliwia łatwe pobieranie próbek z brzegu. Długotrwała, stabilna hodowla jest możliwa zarówno przy użyciu naturalnej, jak i sztucznej wody morskiej27,28,29. Czas generacji zależny od temperatury wynosi zaledwie 4-9 dni w warunkach laboratoryjnych. Ma wysoką płodność, a każda samica jest w stanie wyprodukować > 300 jaj przez cały rok. Jako osłonica zajmuje ważną pozycję filogenetyczną dla zrozumienia ewolucji strunowców30,31. Przy 70 Mb O. dioica ma najmniejszy zidentyfikowany genom spośród wszystkich strunowców32. Wśród larw O. dioica jest jak dotąd jedynym opisanym gatunkiem niehermafrodytycznym33.
Pierwsza udana hodowla O. dioica z mikroalgami hodowanymi w laboratorium została zgłoszona przez Paffenhöfer34. Oryginalny protokół hodowli wykorzystujący silniki synchroniczne i łopatki został opracowany przez Fenaux i Gorsky35, a następnie przyjęty przez wiele laboratoriów. Niedawno Fujii et al.36 zgłosili hodowlę O. dioica w sztucznej wodzie morskiej, solidny system hodowli i kolekcję terenową zostały opisane przez Bouquet et al.27, a zoptymalizowany protokół dla uproszczonego, przystępnego cenowo systemu został zgłoszony przez Marti-Solans et al.29. Oprócz tradycyjnego systemu hodowli Oikopleura, nowo zgłoszony projekt z podwójnym zbiornikiem hodowlanym ma również potencjał do hodowli Oikopleura sp.37.
Przedstawiamy szczegółowy protokół inicjacji monokultury O. dioica oparty na kombinacji protokołów opracowanych przez główne grupy badawcze Oikopleura w Międzynarodowym Centrum Morskiej Biologii Molekularnej Sars27, Uniwersytet w Barcelonie29, Osaka University28oraz nasze własne obserwacje. We wcześniej opublikowanych protokołach hodowli szczegółowe informacje dotyczące składu pożywek glonów, technik pobierania próbek z brzegu i identyfikacji Oikopleura zostały opisane tylko z grubsza, pozostawiając wiele niejasności. Tutaj, za pomocą informacji wizualnych zawartych w protokole wideo, zebraliśmy wszystkie krytyczne informacje potrzebne do stworzenia kultury O. dioica od podstaw w prosty sposób, krok po kroku. Opisujemy, jak odróżnić O. dioica od innego powszechnie opisywanego gatunku, O. longicauda, co jest jednym z najtrudniejszych kroków. Chociaż istniejące systemy hodowli mają zastosowanie do uprawy O. dioica na całym świecie, podkreślamy znaczenie dostosowania protokołu w oparciu o lokalne warunki środowiskowe. Prezentowane informacje łączą w sobie powszechnie publikowane dane, a także wiedzę zdobytą poprzez doświadczenie. Obecny protokół idealnie nadaje się dla badaczy zainteresowanych stworzeniem kultury od podstaw.
Protokół
1. Zaplecze do hodowli O. dioica
- System filtracji wody (Rysunek 1)
- Pobrać naturalną wodę morską z portu z głębokości 2-3 m. Przepuścić wodę morską przez filtr piaskowy (rozmiar oczek 1,4 mm) i przetransportować do wspólnego zbiornika magazynowego w laboratorium. Użyć filtra kanistrowego do cyrkulacji wody w celu utrzymania jakości wody w zbiorniku magazynowym.
- W pomieszczeniu hodowlanym zainstalować wielostopniowy system filtracji składający się ze zbiornika magazynowego o pojemności 100 L z pompą z napędem magnetycznym, wkładów filtrujących z nawiniętego polipropylenu o porach 5 µm i 1 µm oraz sterylizatora UV (100 V) (Rysunek 1).
- Przenieść wodę morską ze wspólnego zbiornika magazynowego do zbiornika w pomieszczeniu hodowlanym. Przed wprowadzeniem do zbiornika w pomieszczeniu hodowlanym przepuścić wodę morską przez jednostkę filtrującą 25 µm (Rysunek 1A,B). Cyrkulować wodę morską przez filtry 5 i 1 µm przez noc, aby dokładnie usunąć cząstki, które mogłyby utrudnić rozwój zwierząt.
UWAGA: Dodatkowy filtr o większym rozmiarze oczek (25-50 µm) jest przydatny do zapobiegania zatykaniu wkładów filtrujących o mniejszych oczkach przez większe cząstki. Przefiltrowana woda morska (fSW) jest gotowa do użycia następnego dnia rano.
- Jednostka hodowlana Oikopleura (Rysunek 2)
- Utrzymywać zwierzęta w okrągłych, przezroczystych plastikowych zlewkach o pojemności 5 lub 10 L.
- Umieścić zlewki hodowlane na stabilnym, dwupoziomowym regale ze stali nierdzewnej (L x W x H = 150 cm x 45 cm x 90 cm) z przezroczystą płytą akrylową o grubości 5 mm.
- Umieścić białe lampy fluorescencyjne pod powierzchnią akrylową, aby oświetlić zwierzęta od dna zlewek.
- Umieścić czarną plastikową płachtę za zlewkami. Czarna płachta tworzy kontrast i ułatwia wizualizację przezroczystych zwierząt.
- Podłączyć synchroniczne silniki elektryczne do akrylowych łopatek (L x H = 8 cm x 27 cm) (Plik uzupełniający 2). Zawiesić łopatki w zlewkach hodowlanych na równoległych szynach biegnących wzdłuż regału (Rysunek 2A).
- Włączyć silniki, aby wywołać łagodny ruch okrężny w zlewkach przy 15 RPM.
UWAGA: Zwierzęta w swoich celulozowych domkach mają wyporność neutralną; jednak cyrkulacja wody pomaga utrzymać jaja, larwy i pokarm algowy w zawieszeniu i równomiernie rozłożyć je w zlewkach hodowlanych.
- Automatyczna pompa dozująca (opcjonalnie)
UWAGA: Automatyczna jednostka karmienia zmniejsza zapotrzebowanie na personel, zwłaszcza w weekendy.- Skalibrować objętość dozowanej cieczy z automatycznej pompy dozującej zgodnie z instrukcjami producenta.
- Użyć probówek 50 mL jako zbiorników na algi.
- Wywiercić dwa otwory o średnicy 5 mm w zakrętkach probówek 50 mL, aby przeprowadzić przez nie przewody powietrzne. Podłączyć jedną rurkę do standardowej akwariowej pompy powietrznej w celu wprowadzania pęcherzyków powietrza, a drugą rurkę do wlotu pompy dozującej (Rysunek 2B).
UWAGA: Wprowadzenie cienkiego strumienia pęcherzyków powietrza pomaga zapobiec osiadaniu alg na dnie probówek. - Zaprogramować czas i objętość pokarmu algowego, który ma zostać dozowany w danym dniu.
- Stanowisko dla alg
- Użyć regału (L x W x H = 90 cm x 46 cm x 115 cm) do umieszczenia czterech kolb o okrągłym dnie o pojemności 1 L zawierających robocze kultury alg (Patrz krok 2.1).
- Oświetlić kultury robocze od tyłu, umieszczając lampy fluorescencyjne za kolbami.
- Uszczelnić kolby dwudziurkowymi korkami gumowymi.
- Przepuścić jednorazową pipetę 1 mL przez korek gumowy. Użyć przewodu powietrznego do połączenia pipety z akwariową pompą powietrzną. Wprowadzić strumień pęcherzyków powietrza do kolby.
2. Pokarm z mikroalg
- Inicjowanie kultur glonów
UWAGA: Należy utrzymywać trzy zestawy kultur (kulturę macierzystą, zapasową i roboczą) dla trzech gatunków mikroalg: Chaetoceros calcitrans, Isochrysis sp., Rhinomonas reticulata oraz jednego gatunku cyjanobakterii, Synechococcus sp.. Kultury macierzyste i zapasowe służą jako zabezpieczenie. Kultura robocza jest wykorzystywana do codziennego karmienia.- Przygotować odczynniki niezbędne do hodowli mikroalg i cyjanobakterii (Tabela 1).
- Aby zainicjować kulturę macierzystą, wysterylizować w autoklawie (121 °C, 25 min) 60–80 mL fSW w kolbie Erlenmeyera o pojemności 100 mL. Aseptycznie zaszczepić określoną ilość zmodyfikowanego medium Conwaya27 oraz mikroalg (Tabela 2). Na przykład, aby zaszczepić kulturę macierzystą C. calcitrans, wysterylizować w autoklawie 60 mL wody morskiej, a następnie aseptycznie dodać po 30 µL witamin i roztworu A, 15 µL krzemianu sodu, 60 µL streptomycyny oraz 30 µL C. calcitran z poprzedniej kultury macierzystej.
UWAGA: R. reticulata zmienia barwę z czerwonoróżowej na pomarańczowo-brązową w przypadku zbyt silnej ekspozycji na światło. Należy odsunąć je od źródła światła, gdy tylko zaczną zmieniać kolor z bezbarwnego na jasnoróżowy. - Przechowywać kulturę macierzystą w inkubatorze ustawionym na 17 °C przy ciągłym oświetleniu. Po około 10 dniach kolor kultury ulegnie zmianie, co wskaże wzrost glonów (Rysunek 3). Po pojawieniu się kolorów przenieść je do temperatury 4 °C w celu długoterminowego przechowywania (do 1 miesiąca).
- W komorze z laminarnym przepływem powietrza aseptycznie przygotować kulturę zapasową z kultury macierzystej (Tabela 2). Inkubować w temperaturze 17 °C przy ciągłym oświetleniu. Po pojawieniu się barw glonów kontynuować przechowywanie w inkubatorze do 2 tygodni.
- Zaszczepić kulturę roboczą z kultury zapasowej (Tabela 2). Zamknąć kolbę gumowym korkiem i włożyć jednorazową pipetę 1 mL. Przenieść kolbę do stacji alg i utrzymywać w temperaturze pokojowej z 8-godzinnym fotoperiodem. Zapewnić stałe napowietrzanie. Odnawiać kulturę roboczą co 4 dni.
- Mieszać kultury macierzyste i zapasowe dwa razy dziennie poprzez delikatne potrząsanie.
UWAGA: Długoterminowe przechowywanie kultur glonów na podłożach stałych oraz kriokonserwacja są możliwe odpowiednio do 3 miesięcy i 1 roku29.
- Tworzenie krzywych wzrostu glonów (opcjonalnie)
UWAGA: Dokładna ocena ilości pokarmu jest istotna dla utrzymania stabilnej hodowli O. dioica. Stworzono krzywe wzrostu dla dwóch głównych gatunków alg pokarmowych: Chaetoceros calcitrans i Isochrysis sp.- Przygotować kultury robocze C. calcitrans i Isochrysis sp. (Tabela 2).
- Dla każdego gatunku w kulturze roboczej pobrać próbki trzykrotnie i zmierzyć absorbancję przy 660 nm za pomocą spektrofotometru. Obliczyć średnią z pomiarów trzech powtórzeń dla każdej kultury roboczej.
- Zgodnie z instrukcją producenta automatycznego licznika komórek przygotować próbki glonów do zliczenia. Policzyć każdą próbkę trzykrotnie. Obliczyć średnią z trzech pomiarów, aby określić całkowitą liczbę komórek obecnych w każdej próbce.
- Kontynuować codzienne pomiary do momentu zarejestrowania około 50 średnich pomiarów.
- Stworzyć krzywe wzrostu dla obu gatunków alg (Rysunek 4).
3. Pobieranie próbek dzikich gatunków Oikopleura w terenie
- Zmodyfikowana sieć planktonowa (Rycina 5)
UWAGA: Kluczem do pomyślnego pobierania próbek Oikopleura spp. jest powolne holowanie sieci planktonowej z obciążonym, niefiltrującym workiem zbiorczym. Na Rycynie 5 przedstawiono schemat zmodyfikowanej sieci planktonowej.- Zastąp worek zbiorczy ręcznej sieci planktonowej zmodyfikowaną butelką płuczką o pojemności 500 mL z nakrętką.
- Wywierć otwór o średnicy 3 cm w nakrętce o średnicy 4 cm butelki płuczki, aby umożliwić wniknięcie wody i zwierząt do worka zbiorczego.
- Zamocuj korek butelki na końcu sieci planktonowej. Owiń go szczelnie taśmą izolacyjną. Dodatkowo zabezpiecz korek zaciskiem do węży ze stali nierdzewnej.
- Za pomocą opasek zaciskowych przymocuj obciążenie 70 g do zewnętrznej strony zmodyfikowanego worka zbiorczego.
- Przymocuj linkę zabezpieczającą, aby dodatkowo utwierdzić worek zbiorczy.
- Wybór miejsc poboru próbek (Rycina 6)
UWAGA: Wszystkie pobrania próbek zostały zatwierdzone przez Komitet Bezpieczeństwa Prac Terenowych OIST. W zależności od lokalizacji mogą występować sezonowe różnice w obecności Oikopleura spp. (Rycina 6). Unikaj pobierania próbek bezpośrednio po ekstremalnych zjawiskach pogodowych, takich jak silne ulewy.- Użyj widoku satelitarnego w serwisie mapowym, aby zidentyfikować potencjalne miejsca poboru próbek. Skupiliśmy się na portach i pomostach rybackich, które są łatwo dostępne samochodem i znajdują się wewnątrz zatok lub w pobliżu oceanicznych urwisk, gdzie plankton ma tendencję do gromadzenia się: port Ishikawa w zatoce Kin, Okinawa, Japonia (GPS: 26°25'39.3"N 127°49'56.6"E).
- Odwiedź potencjalne lokalizacje poboru próbek, aby ocenić dostępność brzegu i bezpieczeństwo każdego miejsca. W razie potrzeby uzyskaj pozwolenie na pobór próbek od lokalnych władz.
- Procedura pobierania próbek
- Zarzucij sieć planktonową do morza i pozwól workowi zbiorczemu opaść na głębokość 1-2 m poniżej powierzchni wody.
- Holuj sieć poziomo ręcznie z prędkością 50-100 cm s-1. Kontynuuj holowanie, chodząc w przód i w tył przez 2-5 minut. Dostosuj czas holowania do obfitości fitoplanktonu w porcie, skracając czas w przypadku większej ilości fitoplanktonu.
UWAGA: Larwaceaty są delikatnymi zwierzętami. Szybkie holowanie lub wielokrotne zarzucanie sieci może uszkodzić zwierzęta uwięzione w worku zbiorczym. - Ostrożnie podnieś sieć. Powoli przelej zawartość worka zbiorczego do okrągłej szklanej butelki o pojemności 500 mL. Wypełnij butelkę z próbką całkowicie wodą morską, aby uniknąć pęcherzyków powietrza.
UWAGA: Obecność Oikopleura spp. można potwierdzić, oglądając butelki z próbkami na czarnym tle. Większość zwierząt opuszcza swoje domki podczas pobierania. Dlatego do identyfikacji na poziomie gatunkowym niezbędna jest obserwacja mikroskopowa. - Powtarzaj pobieranie próbek, aż zostaną zebrane trzy butelki o pojemności 500 mL.
- Zmierz zasolenie, temperaturę i zawartość chlorofilu a za pomocą profilometru CTD, aby zarejestrować zakres parametrów fizycznych, w których naturalnie występują zwierzęta.
- Zbierz 10-15 L powierzchniowej wody morskiej do wiadra, aby aklimatyzować zwierzęta w warunkach laboratoryjnych.
4. Izolacja i identyfikacja zwierząt (Rycina 7, Rycina 8)
- Oikopleura spp. identyfikacja
UWAGA: Inne organizmy planktoniczne, które na pierwszy rzut oka mogą przypominać Oikopleura spp., to chaetognaty, Fritillaria spp., nicienie, larwy ryb z workiem żółtkowym oraz larwy Ciona spp.- Aby zaaklimatyzować zwierzęta do warunków laboratoryjnych, przenieś każdą próbkę 500 mL do zlewki o pojemności 10 L zawierającej wodę morską z miejsca poboru i filtrowaną wodę morską (fSW) utrzymywaną w laboratorium w stosunku 1:1 (Rysunek 7A,B). Dostosuj objętość w zlewce do 5-10 L w zależności od stężenia próbki planktonu.
UWAGA: Jeśli próbka planktonu zawiera niepożądane zanieczyszczenia, przepuść ją przez filtr o grubych oczkach (rozmiar oczka ~600 µm) przed przeniesieniem do zlewki 10 L. - Użyj mieszadła połączonego z synchronicznym silnikiem elektrycznym (15 RPM) i utrzymuj plankton w zawiesinie przez noc (krok 1.2.5).
- Zidentyfikuj Oikopleura spp., szukając zwierząt o długości 1-2 mm, w kształcie kijanki, falujących ogonami wewnątrz sferycznego, półprzezroczystego domku. Niektóre zwierzęta mogą okresowo pływać swobodnie bez domków. Delikatnie przenieś ~5 zwierząt do pustej szalki Petriego za pomocą pipety o zaokrąglonym końcu.
- W celu identyfikacji rodzaju, usuń zwierzęta z ich domków, delikatnie uderzając w domek pipetą transferową.
- Obserwuj zwierzęta bez domków pod mikroskopem w ciemnym polu z powiększeniem 20-40x i potwierdź obecność Oikopleura spp (Rysunek 8).
- Aby zaaklimatyzować zwierzęta do warunków laboratoryjnych, przenieś każdą próbkę 500 mL do zlewki o pojemności 10 L zawierającej wodę morską z miejsca poboru i filtrowaną wodę morską (fSW) utrzymywaną w laboratorium w stosunku 1:1 (Rysunek 7A,B). Dostosuj objętość w zlewce do 5-10 L w zależności od stężenia próbki planktonu.
- O. dioica identyfikacja
UWAGA: O. dioica można zidentyfikować wizualnie po obecności w pełni dojrzałych samców i samic lub dwóch dużych komórek podstrunowych zlokalizowanych w dystalnej połowie ogona. Odległość między dwiema komórkami podstrunowymi może się różnić między osobnikami.- Następnie sprawdź, czy występuje w pełni dojrzała Oikopleura z gonadą wypełnioną jajeczkami (Rysunek 8A) lub plemnikami (Rysunek 8B). Jeśli zwierzę posiada tylko jajeczka lub plemniki, przejdź do kroku 4.2.3, ponieważ jest to O. dioica, jedyny opisany gatunek niedwupłciowy.
- Jeśli zwierzę jest niedojrzałe (Rysunek 8C), szukaj dwóch komórek podstrunowych na końcu jego ogona (Rysunek 8D).
- Po potwierdzeniu gatunku przenieś go do nowej szalki Petriego. Powtarzaj kroki 4.1.3-4.2.2, aż potwierdzisz 10-20 osobników na poziomie gatunku.
UWAGA: Aby ułatwić identyfikację, znieczul zwierzęta w szalce Petriego zawierającej 0,015% metansulfonianu trikainy (MS222) w fSW. - Jeśli nie znaleziono O. dioica, utrzymuj zawiesinę w zlewkach przez dodatkowy dzień lub dwa. Mogą występować niedojrzałe osobniki O. dioica, które będą dalej rosnąć i staną się łatwiejsze do wykrycia. Jeśli po tygodniu żadne się nie pojawią, utylizuj próbkę i spróbuj ponownie pobrać materiał.
5. Protokół hodowli O. dioica
- Inicjowanie monokultury O. dioica z próbki pobranej w terenie (Rycina 7)
UWAGA: Pożywka algowa jest przygotowywana codziennie z kultur roboczych, a każdy zlew z monokulturą jest karmiony trzy razy dziennie, odpowiednio o godzinie 9:00, 12:00 i 17:00 (patrz krok 5.2). Zwierzęta są utrzymywane w temperaturze 23 °C. W tych warunkach cykl życiowy O. dioica z Okinawy trwa 4 dni (Rycina 7C).- Aby zainicjować monokulturę O. dioica, odizoluj 120 osobników i przenieś je do nowego zlewu zawierającego 5 L świeżej fSW (Rycina 7B,C).
- Następnego ranka wyszukaj w pełni dojrzałych samców z żółtymi gonadami oraz samice z jajami wyglądającymi jak złote sfery (Rycina 8A,B).
- Przygotuj zlew do tarła, delikatnie przenosząc 15 samców i 30 samic do nowego zlewu zawierającego 2,5 L świeżej fSW za pomocą pipety z tępym końcem o pojemności 5 mL.
UWAGA: Jeśli nie ma wystarczającej liczby samców i samic, przenieś jak najwięcej dorosłych osobników do zlewu zawierającego 1 L fSW i pozwól im na naturalne tarło. Aby zminimalizować stres fizyczny zwierząt podczas ręcznego przenoszenia, należy je powoli odsysać i uwalniać pod powierzchnią wody. - Pozwól zwierzętom na naturalne tarło w celu zainicjowania następnego pokolenia. Larwy z ogonem powinny pojawić się około 3 godzin po zapłodnieniu.
UWAGA: Tarło polega na tym, że w pełni dojrzałe zwierzęta opuszczają swoje muszle, płyną w stronę powierzchni wody i uwalniają gamety. Prawidłowe zapłodnienie można potwierdzić, pobierając 5-10 mL wody morskiej z dna zlewu do tarła i identyfikując pod mikroskopem jaja z widocznymi podziałami. - Pierwszego ranka po tarle (Dzień 1) w zlewie powinno pojawić się nowe pokolenie zwierząt z nadmuchanymi muszlami. Używając ręcznego zlewu o pojemności 500 mL, delikatnie przenieś zawartość zlewu do tarła do nowego naczynia zawierającego 7,5 L świeżej fSW (łącznie 10 L). Wlewaj pod kątem, aby uniknąć rozbryzgiwania.
- Drugiego ranka (Dzień 2) ręcznie przenieś 150 zwierząt do nowego zlewu zawierającego 5 L świeżej fSW.
- Trzeciego ranka (Dzień 3) ręcznie przenieś 120 zwierząt do nowego zlewu z 5 L świeżej fSW.
UWAGA: Aby zsynchronizować rozwój zwierząt, podczas ręcznego przenoszenia w dniu 2. i 3. ważne jest wybranie osobników o podobnych rozmiarach. Podczas jednego transferu można odessać maksymalnie 10 zwierząt. - Czwartego ranka (Dzień 4) powinny pojawić się w pełni dojrzałe zwierzęta. Powtórz krok 5.1.3, aby zamknąć cykl życiowy.
UWAGA: Automatyczną pompę do karmienia można ustawić tak, aby karmiła zwierzęta o 17:00 w weekendy, bez obecności personelu zajmującego się hodowlą.
- Codzienne przygotowanie pożywki algowej z kultury roboczej
- Zmierz absorbancję kultury roboczej przy 660 nm.
- Na podstawie Tabeli Karmienia Codziennego ustal, ile komórek alg należy podać zwierzętom o konkretnym rozmiarze (Tabela 3).
- Korzystając z krzywych wzrostu alg (Rycina 4), rozwiąż poniższe równania, aby obliczyć objętość pożywki algowej (mL) wymaganą w danym dniu.
- Aby obliczyć objętość konkretnych alg potrzebną w danym dniu i o określonej godzinie karmienia, zastosuj poniższe równanie:
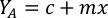

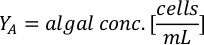
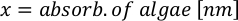
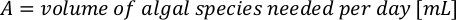
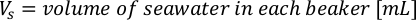

Gdzie YA to stężenie alg w danym dniu, a A to objętość alg potrzebna na jedno karmienie. Ponadto liniowa zależność między YA a x, wartości punktu przecięcia (c) i nachylenia (m) przedstawione są na Rycynie 4. Wartości K znajdują się w Tabeli 3. - Na przykład, aby obliczyć objętość Isochrysis sp. potrzebną podczas karmienia o 9:00 zwierząt z Dnia 3 utrzymywanych w 5 L kultury, przy absorbancji alg wynoszącej 0,234 (mierzonej przy 660 nm), wykonano następujące obliczenia:
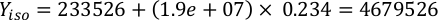
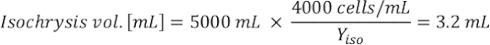
UWAGA: Przechowuj te równania w arkuszu kalkulacyjnym, aby dzienna ilość pokarmu była automatycznie obliczana na podstawie pomiarów absorbancji, rozmiaru zwierząt i objętości morskiej wody hodowlanej (Plik uzupełniający 1).
- Aby obliczyć objętość konkretnych alg potrzebną w danym dniu i o określonej godzinie karmienia, zastosuj poniższe równanie:
- Przenieś obliczoną objętość alg do probówek o pojemności 50 mL, wiruj przy 5000 x g przez 5 min w temperaturze 20 °C.
- Usuń nadosad. Uzupełnij probówki do pierwotnej objętości świeżą fSW, zastępując stare pożywki algowe.
- Przechowuj przygotowany pokarm w lodówce do czasu następnego karmienia. Usuń stary pokarm algowy po przygotowaniu nowej pożywki następnego ranka.
- Węgiel aktywny (opcjonalnie)
UWAGA: Do każdego zlewu hodowlanego dodaje się 10 g węgla aktywnego w celu utrzymania jakości wody. Węgiel można wykorzystać do czterech razy. Powoli otwieraj worek z węglem, aby uniknąć przedostania się pyłu węglowego do zlewi hodowlanych.- Przenieś ~700 g węgla aktywnego do pojemnika. Moczyj w świeżej wodzie (FW) przez 48 godzin i pozwól mu osiąść na dnie.
- Przepłucz FW, aby usunąć pozostałości pyłu węglowego.
- Gotuj węgiel w FW przez 15-20 min. Zdejmij z ognia i pozostaw do ostygnięcia.
- Płucz, aż większość pyłu węglowego zostanie usunięta, a woda stanie się przejrzysta.
- Przechowuj czysty węgiel w zlewie 2 L zawierającym fSW. Przykryj zlew, aby zapobiec przedostawaniu się pyłu.
- Dodaj węgiel do każdego nowego zlewu przed przeniesieniem zwierząt.
Wyniki
Oikopleura może być zbierana z łodzi lub z portu poprzez powolne, delikatne holowanie sieci planktonowej o oczkach 100 µm z niefiltrującym końcem (Rysunek 5). Ze względu na delikatną naturę tych zwierząt, należy unikać wszelkich ruchów, które mogłyby spowodować stres fizyczny, takich jak gwałtowne obchodzenie się z siecią czy pryskanie wody spowodowane uwięzionym pęcherzykiem powietrza w słoiku z próbką.
Ważne jest zrozumienie sezonowego wzorca lokalnych populacji Oikopleura, a także towarzyszących im wahań parametrów fizycznych wody w miejscu poboru prób. Próbkowanie przeprowadzone między 2015 a 2019 rokiem ujawniło spójną sezonową zmienność występowania O. dioica w portach Ishikawa i Kin na Okinawie (Rycyna 6). Temperatura powierzchniowa wody morskiej wydaje się być głównym czynnikiem. O. dioica była gatunkiem dominującym, gdy temperatura powierzchniowa wody morskiej osiągała ≥28 °C, a O. longicauda współwystępowała z O. dioica w temperaturach od 24 °C do 27 °C; jednak poniżej 23 °C dominowała O. longicauda (Rycina 6A). Stopniowa zmiana zasolenia po kilku kolejnych dniach intensywnych opadów deszczu nie korelowała z liczebnością O. dioica (Rycina 6B).
Stosując opisane powyżej procedury pobierania próbek, większość odzyskanych osobników O. dioica znajdowała się między 2. a 3. dniem swojego 4-dniowego cyklu życiowego (Rycina 7C). Dojrzałe samce rozpoznawano po żółtej barwie gonad, natomiast gonady samic lśniły na złoto dzięki jajom o średnicy 70-80 µm (Rycina 8A,B). Niedojrzałe osobniki O. dioica potwierdzano na podstawie obecności dwóch komórek podstrunowych w ogonie (Rycina 8D). Inny dominujący gatunek w lokalnych wodach, O. longicauda, był podobny pod względem wielkości i morfologii. Do odróżnienia O. longicauda od O. dioica zastosowano następujące kryteria38,39,40: brak komórek podstrunowych w ogonie, obecność velum w tułowiu oraz obecność gonady obojnakowej (Rycina 8E,F). Różnice w morfologii ogona są również przydatne do odróżnienia O. longicauda od O. dioica. W przypadku nienaruszonego, nagiego zwierzęcia bez domku, ustawionego bokiem, ogon O. longicauda był prostszy z mniejszą krzywizną, co nadawało mu „sztywniejszy” wygląd w porównaniu do O. dioica.
Trzy najważniejsze czynniki niezbędne do ustanowienia stabilnej Oikopleura systemy hodowlane polegają na (i) utrzymaniu wysokiej jakości wody, (ii) określeniu optymalnego reżimu żywieniowego oraz (iii) przygotowaniu naczynia do tarła z odpowiednią liczbą samców i samic. Wprowadzenie wielostopniowego systemu filtracji (Rycina 1poprawiło to jakość wody oraz stabilność hodowli. W przypadku sztucznej wody morskiej system filtracji nie jest konieczny; jednak koszt, dostępność i wygoda korzystania z naturalnej wody morskiej sprawiają, że jest ona lepszą opcją dla laboratoriów zlokalizowanych w pobliżu wybrzeża. W celu ustalenia reżimu karmienia zalecamy wyznaczenie krzywych wzrostu glonów dostosowanych do konkretnych warunków laboratoryjnych, ponieważ temperatura i warunki oświetleniowe mogą się znacznie różnić. Połączyliśmy krzywe wzrostu z wcześniej opublikowanymi harmonogramami karmienia, aby zoptymalizować stężenia i skład paszy algowej.27 (Rysunek 4). Stosujemy również rygorystyczny harmonogram inokulacji alg, aby zapewnić stały dostęp do świeżej pokarmowej biomasy algowej (Tabela 2). Zautomatyzowany system karmienia pozwala na utrzymanie stałego harmonogramu codziennego karmienia bez obecności personelu zajmującego się hodowlą (Rysunek 2B).
Po osiągnięciu optymalnych warunków wody morskiej i karmienia, należy zainicjować nowe generacje poprzez przygotowanie naczynia do tarła zawierającego 15 samców i 30 samic w 2,5 L fSW. Zapewnia to odpowiednie stężenie zwierząt w 1. dniu następnego ranka, co pozwala na wyizolowanie 150 osobników w 2. dniu, 120 w 3. dniu oraz 45 dojrzałych osobników dorosłych w 4. dniu w celu przeprowadzenia tarła. Jeśli w 4. dniu brakuje samców lub samic, należy zebrać i przenieść tak wiele dojrzałych osobników, jak to możliwe, do 1 L fSW i pozwolić im na naturalne tarło z nadzieją, że powstanie wystarczająca liczba larw do kontynuowania kolejnej generacji. Zgodnie z przedstawionym protokołem, cykl życiowy O. dioica trwa 4 dni w temperaturze 23 °C (Rycina 7C). Udało nam się stabilnie ustanowić sześć niezależnych populacji dzikich O. dioica, z których każda przetrwała ponad 20 generacji.
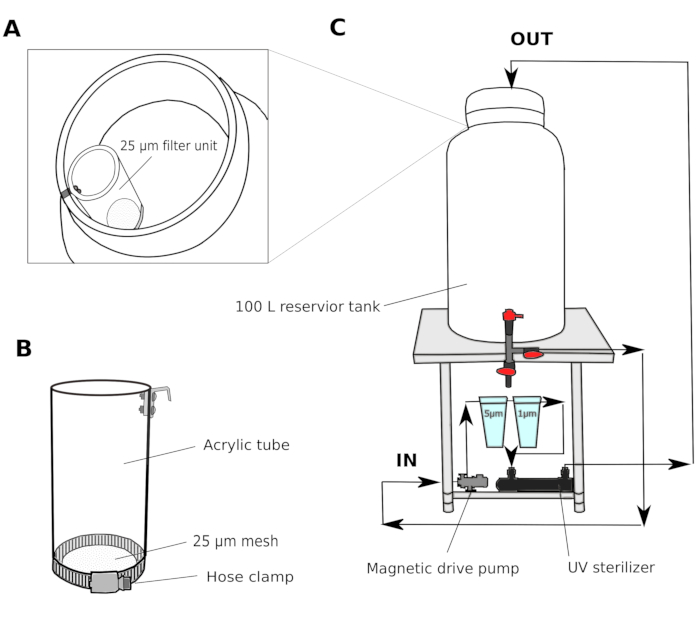
Rysunek 1: Schemat systemu filtracji wody morskiej.
(A i B) Woda morska jest początkowo filtrowana przez jednostkę filtrującą 25 µm przed przedostaniem się do zbiornika retencyjnego (C). Pompa z napędem magnetycznym służy do pobierania wody morskiej ze zbiornika retencyjnego. Następnie woda morska jest przepychana przez dwa filtry polipropylenowe i sterylizator UV, po czym wraca do zbiornika retencyjnego. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
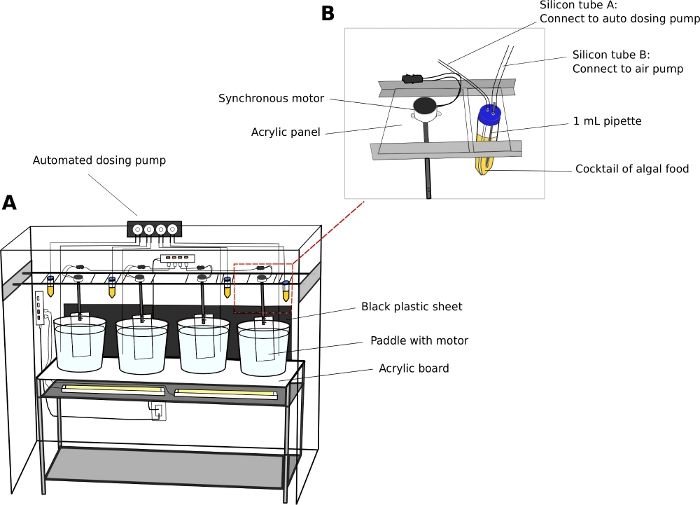
Rycina 2: System hodowli O. dioica.
(A) Przegląd systemu hodowli (B) Zbliżenie na silnik synchroniczny i zbiornik z algami dla zautomatyzowanej pompy dozującej. Średnice wewnętrzne rurek silikonowych A i B wynoszą odpowiednio 2 mm i 4 mm. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
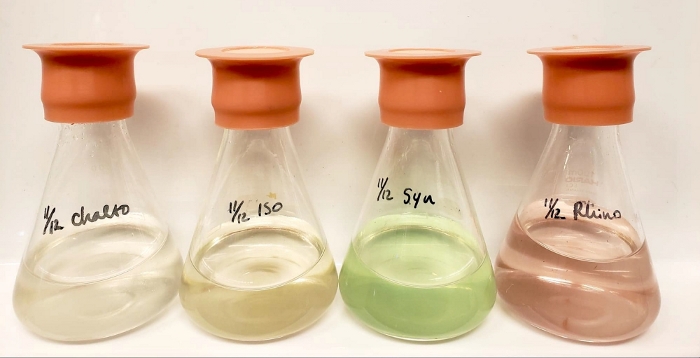
Rysunek 3: Kultury zapasowe dla O. dioica.
Od lewej: C. calcitrans, Isochrysis sp., Synechococcus sp. oraz R. reticulata po hodowli w temperaturze 17 °C pod stałym oświetleniem przez około 10 dni. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
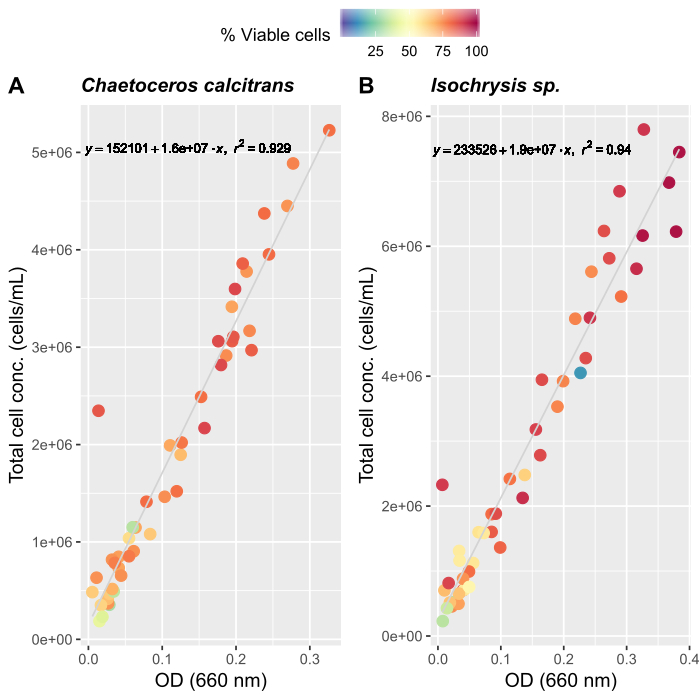
Rysunek 4: Krzywa wzrostu glonów dla dwóch głównych gatunków pokarmowych, C. calcitrans i Isochrysis sp..
Wykresy rozrzutu gęstości optycznej (OD) przy 660 nm oraz całkowitej koncentracji komórek dla (A) C. calcitrans i (B) Isochrysis sp.. Każdy punkt reprezentuje średnią z trzech pomiarów. Do wyznaczenia procentu żywych komórek oraz całkowitej koncentracji komórek (cells/mL) wykorzystano licznik komórek. Pomiary rejestrowano przez 20 dni (n = 47). Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
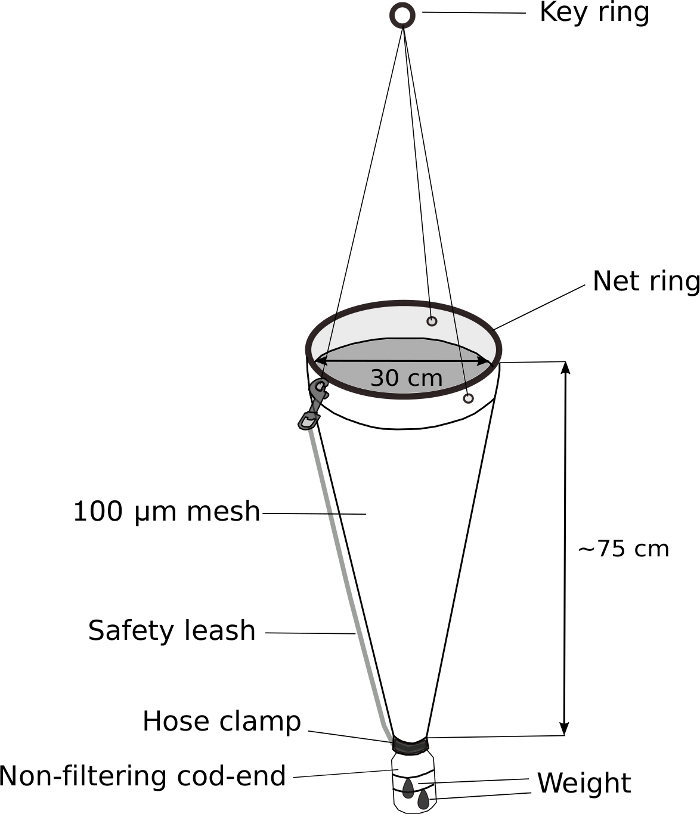
Rycina 5: Modyfikowana sieć planktonowa do pobierania próbek Oikopleura.
Koniec zbiorczy ręcznej sieci planktonowej (oczko 100 µm) zastąpiono butelką płuczką o pojemności 500 mL. Do końca zbiorczego przymocowano obciążnik 70 g. Do pierścienia klucza przymocowano około 5 m liny. Aby dodatkowo zabezpieczyć koniec zbiorczy, zastosowano smycz bezpieczeństwa. Kliknij tutaj, aby wyświetlić powiększoną wersję tej ryciny.
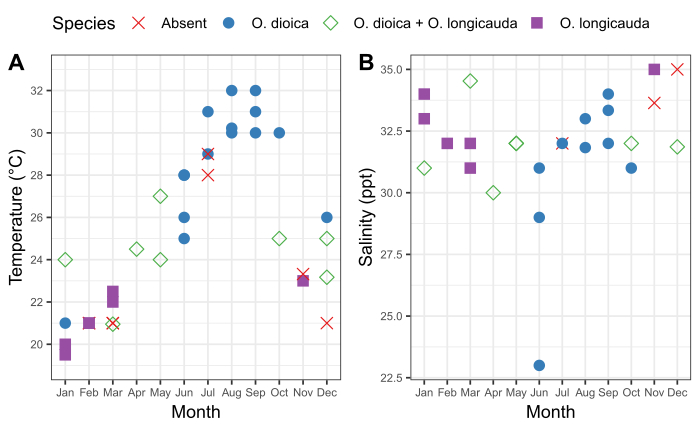
Rysunek 6: Sezonowość O. dioica na Okinawie.
Obecność i brak O. dioica oraz O. longicauda w odniesieniu do sezonowych zmian (A) temperatury i (B) zasolenia w portach w Ishikawa (26°25'39.3"N 127°49'56.6"E) i Kin (26°26'40.2"N 127°55'00.3"E) w latach 2015-2019. Gatunek odnotowano jako obecny, jeśli ręcznie policzono ponad 50 osobników. Zapisano pomiary temperatury i zasolenia wody powierzchniowej. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
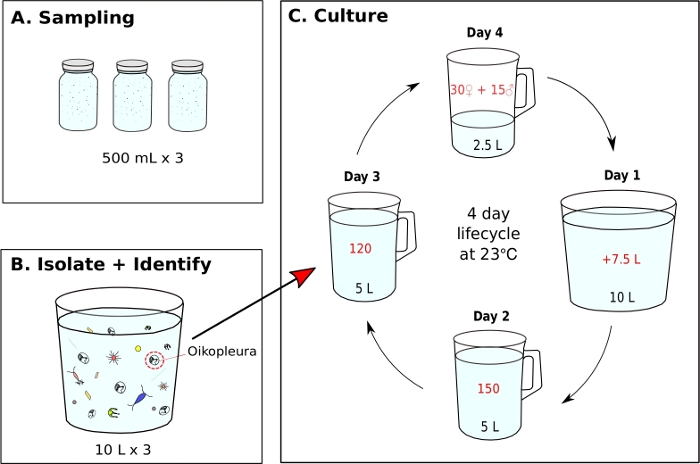
Rysunek 7: Schemat blokowy inicjowania monokultury O. dioica.
(A) Trzy próbki planktonu o objętości 500 mL są pobierane z miejsca poboru (B) Każdy słoik z próbką jest rozcieńczany, a O. dioica jest izolowana od reszty planktonu (C) Monokulturę O. dioica inicjuje się poprzez ręczne przeniesienie 120 osobników z 3. dnia do nowego zlewka zawierającego 5 L świeżej filtrowanej wody morskiej (fSW). Przygotowuje się zlewka do tarła zawierający 30 samic, 15 samców i 2,5 L świeżej fSW. Pierwszego ranka po tarle (Dzień 1) zawartość zlewka do tarła wraz z nowym pokoleniem osobników ostrożnie przelewa się do zlewka zawierającego 7,5 L świeżej fSW. Drugiego dnia po tarle (Dzień 2) przenosi się 150 osobników do zlewka zawierającego 5 L świeżej fSW. Trzeciego dnia po tarle (Dzień 3) przenosi się 120 osobników do zlewka zawierającego 5 L świeżej fSW. W ostatnim dniu (Dzień 4) przygotowuje się nowy zlewka do tarła zawierający 30 samic, 15 samców i 2,5 L świeżej fSW w celu przygotowania następnego pokolenia. Zwierzęta mają 4-dniowy cykl życiowy w temperaturze 23 °C. Kliknij tutaj, aby wyświetlić powiększoną wersję tego rysunku.
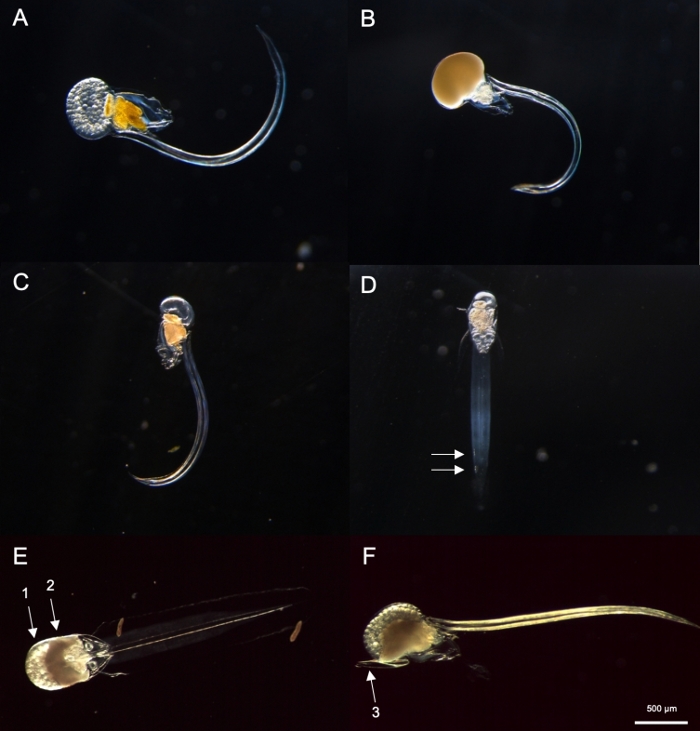
Rysunek 8: Identyfikacja Oikopleura spp. (A-D: O. dioica, E i F: O. longicauda).
(A) Samica O. dioica z jajami (B) Samiec O. dioica z plemnikami (C) Widok boczny niedojrzałej O. dioica (D) Widok brzuszny niedojrzałej O. dioica z zaznaczonymi białymi strzałkami dwiema komórkami podstrunowymi (E) Widok brzuszny dojrzałej O. longicauda z jajami (strzałka 1) i plemnikami (strzałka 2) (F) Widok boczny O. longicauda pokazujący velum (strzałka 3). Kliknij tutaj, aby wyświetlić większą wersję tego rysunku.
| Odczynniki | Produkty chemiczne | Ilość | Objętość końcowa (ml) | Sterylizacja | Zapas / Otwarto |
| Roztwór A | Na2EDTA | 45 g | 1000 | Autoklaw | -20 °C / 4 °C |
| NaNO3 | 100 g | ||||
| H3BO3 | 33,6 g | ||||
| NaH2PO4 | 20 g | ||||
| MnCl22·4h2O | 0,36 g | ||||
| FeCl3·6 h2O | 1,3 g | ||||
| Roztwór B | 1,0 ml | ||||
| Roztwór B | ZnCl22 | 2,1 g | 1000 | Autoklaw | 4 °C / 4 °C |
| CoCl22·6h2O | 2,0 g | ||||
| (NH4)6Mo7O24·4H2O | 0,9 g | ||||
| CuSO445H2O | 2,0 g | ||||
| *HCl | -- ml | ||||
| Witamina | Tiamina (B1)1) ·HCl | 200 mg | 1000 | Autoklaw | -20 °C / 4 °C |
| Biotyna | 1 mg | ||||
| Kobalamina (B12)12) | 1 mg | ||||
| Krzemian sodu | Na2SiO3 | 5% | 1000 | 0.22 µm filtr | 4 °C / 4 °C |
| Streptomycyna | C21H39N7O12 | 25 mg/ml | 50 | 0.22 µm filtr | -20 °C / -20 °C |
Tabela 1: Skład odczynników niezbędnych do hodowli alg pokarmowych. Po rozpuszczeniu wszystkich substancji chemicznych wymienionych dla roztworu B, dodaje się HCl, aż roztwór stanie się klarowny i pozbawiony zmętnienia. Wszystkie odczynniki są sterylizowane w autoklawie (120 °C, 25 min) lub przy użyciu filtra 0,22 µm. Wszystkie odczynniki z wyjątkiem roztworów stokowych witamin są sterylizowane po dodaniu określonej substancji chemicznej. W przypadku roztworów stokowych witamin należy najpierw wysterylizować wodę w autoklawie, a następnie rozpuścić wymienioną substancję chemiczną. Podano temperatury przechowywania dla roztworów stokowych oraz otwartych odczynników.
| Typ hodowli | gatunki alg | ASW (ml) | Witaminy | Roztwór A | Krzemian sodu | Streptomycyna | Algi (ml) / Typ hodowli | Inkubować / Przechowywać | Częstotliwość |
| Kultura zapasowa | Chaeto | 60 | 1/2000 | 1/2000 | 1/4000 (Tylko Chaeto) | 1/1000 (Wszystkie z wyjątkiem Syn) | 0,03 / roztwór zapasowy | 17°C / 4°C | Co dwa tygodnie |
| Izolacja | 60 | 0,03 / roztwór zapasowy | |||||||
| Rhino | 80 | 0,06 / roztwór zapasowy | |||||||
| Syn | 60 | 0,03 / roztwór zapasowy | |||||||
| Przesiew podłoża | Chaeto | 500 | 1/2000 | 1/2000 | 1/4000 (Tylko Chaeto) | 1/1000 (Wszystkie z wyjątkiem Syn) | 10 / roztwór zapasowy | 17°C / 17°C | Tygodniowo |
| Iso | 500 | 10 / roztwór stokowy | |||||||
| Rhino | 500 | 20 / roztwór zapasowy | |||||||
| Syn | 500 | 10 / roztwór stokowy | |||||||
| Kultura pracy | Chaeto | 400 | 1/2000 | 1/2000 | 1/4000 (tylko Chaeto) | 1/1000 (Wszystkie z wyjątkiem Syn) | 100 / sub | RM / RM | Co 4 dni |
| Iso | 400 | 100 / sub | |||||||
| Rhino | 400 | 150 / sub | |||||||
| Syn | 400 | 100 / sub |
Tabela 2: Instrukcja utrzymania trzech typów kultur alg. Do kolb zawierających autoklawowaną wodę morską należy dodać określoną ilość suplementów. Każdą kolbę należy zaszczepić określoną ilością kultury alg. Kultury alg należy inkubować i przechowywać w określonych temperaturach. Nową kulturę zapasową należy zaszczepić z poprzedniej kultury zapasowej, a nową kulturę roboczą z poprzedniej subkultury. Nową kulturę zapasową, subkulturę oraz kulturę roboczą należy szczepić odpowiednio co dwa tygodnie, co tydzień i co cztery dni. Harmonogram ten zapewnia wystarczającą ilość pożywki dla około 10 zlewków kultury O. dioica. Należy utrzymywać 2–3 zestawy każdego typu kultury alg jako zapasowe. RM – temperatura pokojowa.
| Dzień | Gatunki glonów | 9:00 i 17:00 | 12:00 |
| 1 | Chaeto | — | — |
| Iso | 1000 | 2000 | |
| Syn | 20,000 | 40,000 | |
| 2 | Chaeto | 1000 | 2000 |
| Iso | 2000 | 2000 | |
| Rhino | 1000 | 1000 | |
| 3 | Chaeto | 3000 | 4000 |
| Iso | 3000 | 4000 | |
| Rhino | 1500 | 1500 | |
| 4 | Chaeto | 1000 | 2000 |
| Iso | 1000 | 2000 | |
| Rhino | 1000 | 1000 |
Tabela 3: Stężenie alg na jedno karmienie – zmodyfikowano na podstawie Bouquet et al.27. Stężenia alg (cells mL-1) i gatunki alg używane do codziennego karmienia podczas 4-dniowego cyklu życiowego Okinawa O. dioica.
Plik uzupełniający 1: Tabela dziennego karmienia. Dziennie podawane ilości pokarmu dla każdego naczynia hodowlanego są obliczane automatycznie po wprowadzeniu dziennych pomiarów absorbancji alg (OD), wielkości zwierząt (Day) oraz objętości wody morskiej (SW vol.) w każdym naczyniu hodowlanym. Krzywe wzrostu R. reticulata i Synechococcus sp. zostały zaadaptowane z pracy Bouquet i wsp.27. Kliknij tutaj, aby pobrać ten plik.
Plik uzupełniający 2: Sposób podłączenia silnika synchronicznego do akrylowego mieszadła. Mocno przykręć mieszadło do silnika za pomocą klucza imbusowego. Kliknij tutaj, aby pobrać ten plik.
Dyskusja
Aby ułatwić elastyczność w zakładaniu hodowli O. dioica, ważne jest zrozumienie naturalnego środowiska zwierząt. Dane sezonowe dostarczają informacji o zakresach parametrów fizycznych, które można wykorzystać do określenia warunków hodowli laboratoryjnej. Pomaga również w zrozumieniu sezonowych wahań liczebności zwierząt. Na Okinawie O. dioica jest najbardziej niezawodnie spotykany od czerwca do października. Jednak w Zatoce Tokijskiej szczyt populacji przypada na luty i październik41 roku. Chociaż hodowla O. dioica jest często zgłaszana w temperaturze 20 °C lub niższej 27,28,29, O. dioica z Okinawy wykazuje lepszą przeżywalność w temperaturach powyżej 20 °C; Można to wytłumaczyć faktem, że minimalna temperatura powierzchniowej wody morskiej na Okinawie wynosi ~20 °C (rys. 6). Na liczebność O. dioica mogą mieć również wpływ zakwity fitoplanktonu42 i liczebność drapieżników43,44. Niezależnie od tego, gdzie zbierane są O. dioica, zrozumienie sezonowości lokalnych populacji maksymalizuje szansę na pobranie próbek i sukces hodowlany.
Biorąc pod uwagę odpowiednią porę roku i lokalizację, pobieranie próbek netto jest skutecznym sposobem zbierania dużych ilości Oikopleura przy minimalnym wysiłku. Siatki planktonowe o mniejszym rozmiarze oczek (60-70 μm) mogą być również używane do zbierania wszystkich stadiów zwierząt. W pełni dojrzałe zwierzęta rzadko znajdują się w sieci, być może ze względu na ich kruchość pod koniec cyklu życia. W związku z tym identyfikację gatunków, a następnie pobieranie próbek, uzyskuje się poprzez obserwację mikroskopową komórek podstrunowcowych. Dojrzałe osobniki zwykle pojawiają się jeden lub dwa dni po pobraniu próbki, ponieważ zwierzęta nadal rosną w laboratorium. Chociaż pobieranie próbek netto jest skuteczne, w innych okolicznościach mogą być konieczne alternatywne metody pobierania próbek. Na przykład pobieranie próbek netto w pobliżu obszarów miejskich może gromadzić duże ilości fitoplanktonu, co utrudnia wyizolowanie Oikopleury. W takich przypadkach zaleca się proste pobieranie próbek z wiadra w celu pobrania próbek wody powierzchniowej z morza lub z łodzi z obszarów poza portem. Wyniki pokazały, że stopniowa zmiana zasolenia spowodowana kolejnymi dniami opadów deszczu nie wpłynęła na liczebność O. dioica; Należy jednak unikać pobierania próbek z brzegu bezpośrednio po ekstremalnych zdarzeniach pogodowych, takich jak cyklony tropikalne. Zdarzenia te powodują nagłe i drastyczne zmiany biogeochemiczne w osłoniętym zbiorniku wodnym45,46. Spływ wód burzowych może przenosić zanieczyszczenia, osady i nadmiar składników odżywczych, które zwiększają zmętnienie i obniżają jakość wody47. Plankton filtrujący, taki jak Oikopleura, może być szczególnie podatny na te zmiany ze względu na swój sposób odżywiania się i ograniczoną mobilność. W takiej sytuacji zalecamy odroczenie pobrania próbek o kilka dni, aż lokalne warunki powrócą do normy.
Wprowadzenie wielostopniowego systemu filtracji jest niezbędne do utrzymania małych, filtrujących organizmów, takich jak O. dioica. Wykorzystując słabo przefiltrowaną wodę morską (na przykład siatkę 25 μm w poprzednim systemie hodowli), kultura była często niestabilna, zwłaszcza latem, potencjalnie ze względu na większą obfitość fitoplanktonu. Chociaż niektóre fitoplanktony są korzystne dla wzrostu O. dioica , inne wytwarzają biotoksyny, które mogą powodować nieprawidłowy rozwój zarodków O. dioica 48. Ponadto wysokie stężenie okrzemek, takich jak Chaetoceros spp., jest potencjalnie szkodliwe dla wzrostu O. dioica, ponieważ mogą posiadać długie szczeciny, które mogą zatykać kurnik i uniemożliwiać efektywne żerowanie49. Często obserwowaliśmy, jak domy małych zwierząt są zapychane przez C. calcitrans setae; dlatego teraz karmimy C. calcitrans tylko zwierzętami w 2. dniu i starszych (Tabela 3).
Chociaż nie stanowiło to tutaj problemu, długotrwała hodowla O. dioica na małą skalę może doświadczyć nagłych spadków liczebności populacji z powodu wąskiego gardła genetycznego; w takich przypadkach Martí-Solans i wsp.29 zalecają dodawanie nowych dzikich osobników do kultury co 20 pokoleń.
System hodowli Oikopleura jest elastyczny. Stabilną kulturę można ustanowić w ciągu tygodnia. Długotrwała hodowla O. dioica jest możliwa przy skromnym budżecie przy użyciu niespecjalistycznego sprzętu. Dzienny wysiłek wymagany do utrzymania 5-10 zlewek Oikopleura wynosi na ogół mniej niż 2 godziny przy 2 osobach. O. dioica może być również utrzymywana w sztucznej wodzie morskiej, co jest korzystne dla osób bez dostępu do naturalnej wody morskiej28. Długotrwałe przechowywanie pokarmu z glonów jest możliwe dzięki zastosowaniu hodowli ciał stałych i kriokonserwacji29. Co więcej, plemniki O. dioica mogą być kriokonserwowane i pozostają żywotne przez ponad rok50. Wszystkie te czynniki oznaczają, że kultury można łatwo odtworzyć. Wreszcie, wcześniejsze doświadczenia z przypadkowym hodowlą Pleurobrachia sp. może sugerować, że system hodowli opracowany dla Oikopleura może potencjalnie zostać rozszerzony na szerszą społeczność delikatnych organizmów pelagicznych.
O. dioica nadal dostarcza potężnych informacji na temat różnych dziedzin biologii. Zrozumienie lokalnej sezonowości, skrupulatny system hodowli i kilka oddanych osób pozwalają na stworzenie skutecznej kultury przy niewielkim wysiłku. System hodowli Oikopleura zapewnia podstawowe zasoby do badania szerokiego zakresu dziedzin biologicznych związanych z ekologią, rozwojem, genomiką i ewolucją tego wyjątkowego morskiego strunowca.
Oświadczenia
Autor nie ma nic do zadeklarowania.
Podziękowania
Jesteśmy wdzięczni Garthowi Ilsleyowi za jego wsparcie w ustanowieniu systemu kultury. Doceniamy wkład Ritsuko Suyamy i Sylvaina Guillota we wczesne pobieranie próbek i identyfikację gatunków. Specjalne podziękowania należą się Hiroki Nishidzie, Takeshiemu Onumie i Tatsuyi Omotezako za ich hojne wsparcie i wskazówki przez cały czas, w tym za początkowe ustanowienie lokalnego systemu hodowli oraz dzielenie się zwierzętami i kulturą mikroglonów. Dziękujemy również Danielowi Chourroutowi, Jean-Marie Bouquet, Anne Aasjord, Cristianowi Cañestro i Alfonso Ferrándezowi-Roldánowi za podzielenie się swoją wiedzą na temat pobierania próbek i hodowli. Jai Denton, Charles Plessy i Jeffrey Jolly dostarczyli bezcennych informacji zwrotnych na temat rękopisu. Charlotte West sformułowała uogólnione równanie do obliczania glonów. Na koniec dziękujemy OIST za dofinansowanie, Mary Collins i Komitetowi Bezpieczeństwa Pracy w Terenie OIST za porady dotyczące bezpiecznych procedur pobierania próbek, personelowi warsztatu mechanicznego OIST za budowę sprzętu do hodowli i pobierania próbek oraz Koichi Toda za dostarczanie wody morskiej.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| Węgiel aktywny | Sigma | C2764-2.5KG | |
| Aluminiowe koło pasowe | Rainbow Products | 10604-10607 | |
| Biotyna | Sigma | B4501-100MG | |
| Kwas borowy | Wako | 021-02195 | |
| Kobalamina (B12) | Sigma | V2876-100MG | |
| Sześciowodny chlorek kobaltu(II) | Wako | 036-03682 | |
| Siarczan miedzi(II) pięciowodny | Wako | 039-04412 | |
| Hydrat wersenianu disodowego | Wako | 044-29525 | |
| Tetrahydrat heptamolibdenianu heksaamonu | Wako | 019-03212 | |
| Klucz sześciokątny | Anex | No.6600 | |
| Kwas solny | Wako | 080-01066 | |
| Żelazo(III) sześciowodny chlorek | Wako | 091-00872 | |
| Programowalna automatyczna pompa dozująca Jebao | DP-4 | ||
| Pompa magnetyczna | REI-SEA | RMD-201 | |
| Czterowodny chlorek manganu(II) | Wako | 134-15302 | |
| Polipropylenowy filtr z wkładem nawiniętym | Advantec | TCW-10N-PPS | |
| TCW-5N-PPS | |||
| TCW-1N-PPS Bezśrubowa listwa zaciskowa | |||
| SATO PARTS | SL4500 | ||
| Prosta siatka planktonowa | RIGO, Japonia | 5512-C | |
| Metakrzemian sodu | Sigma | 307815-1KG | |
| Azotan sodu | Wako | 195-02545 | |
| Fosforan sodu jednozasadowy bezwodny | MP Biomedicals | 194740 | |
| Sól siarczanu streptomycyny | Sigma | S6501-25G | |
| Synchroniczny silnik elektryczny | Serwo | D5N6Z15M | |
| Chlorowodorek tiaminy | Wako | 201-00852 | |
| Sterylizator UV | Iwaki | UVF-1000 | |
| Chlorek | MP Biomedicals | 194858 |
Bibliografia
- Travis, J. Is It What We Know or Who We Know? Choice of Organism and Robustness of Inference in Ecology and Evolutionary Biology (American Society of Naturalists Presidential Address). The American Naturalist. 167 (3), 303-314 (2006).
- Jenner, R. A., Wills, M. A. The choice of model organisms in evo-devo. Nature Reviews Genetics. 8 (4), 311-314 (2007).
- Irigoien, X., Huisman, J., Harris, R. P. Global biodiversity patterns of marine phytoplankton and zooplankton. Nature. 429 (6994), 863-867 (2004).
- Wilson, S., Ruhl, H., Smith, J. Zooplankton fecal pellet flux in the abyssal northeast Pacific: A 15 year time-series study. Limnology and Oceanography. 58 (3), 881-892 (2013).
- Steinberg, D. K., Lomas, M. W., Cope, J. S. Long-term increase in mesozooplankton biomass in the Sargasso Sea: Linkage to climate and implications for food web dynamics and biogeochemical cycling. Global Biogeochemical Cycles. 26 (1), 1004(2012).
- Lombard, F., Kiørboe, T. Marine snow originating from appendicularian houses: Age-dependent settling characteristics. Deep Sea Research Part I: Oceanographic Research Papers. 57 (10), 1304-1313 (2010).
- Fenaux, R. The Biology of Pelagic Tunicates. Bone, Q. , Oxford University Press. 251-264 (1998).
- Hopcroft, R. R. Response of Marine Ecosystems to Global Change: Ecological Impact of Appendicularians. Gorsky, G., Youngbluth, M. J., Deibel, D. , Contemporaty Publishing International. 45-57 (2005).
- Walters, T. L., Gibson, D. M., Frischer, M. E. Cultivation of the Marine Pelagic Tunicate Dolioletta gegenbauri (Uljanin 1884) for Experimental Studies. Journal of Visualized Experiments. (150), e59832(2019).
- Deibel, D. Feeding mechanism and house of the appendicularian Oikopleura vanhoeffeni. Marine Biology. 93 (3), 429-436 (1986).
- Spada, F., et al. Molecular patterning of the oikoplastic epithelium of the larvacean tunicate Oikopleura dioica. Journal of Biological Chemistry. 276 (23), 20624-20632 (2001).
- Gorsky, G., Youngbluth, M. J., Deibel, D. Response of Marine Ecosystems to Global Change: Ecological Impact of Appendicularians. , Contemporaty Publishing International. 59-85 (2005).
- Tokioka, T. Studies on the distribution of appendicularians and some thaliaceans of the North Pacific, with some morphological notes. Publication of the Seto Marine Biological Laboratory. (8), 351-443 (1960).
- Alldredge, A. L. Discarded appendicularian houses as sources of food, surface habitats, and particulate organic matter in planktonic environments. Limnology and Oceanography. 21 (1), 14-24 (1976).
- Clarke, C., Roff, J. C. Abundance and biomass of herbivorous zooplankton off Kingston, Jamaica, with estimates of their annual production. Estuarine, Coastal and Shelf Science. 31 (4), 423-437 (1990).
- Hopcroft, R. R., Roff, J. C. Zooplankton growth rates: extraordinary production by the larvacean Oikopleura dioica in tropical waters. Journal of Plankton Research. 17 (2), 205-220 (1995).
- Hopcroft, R. R., Roff, J. C. Production of tropical larvaceans in Kingston Harbour, Jamaica: are we ignoring an important secondary producer. Journal of Plankton Research. 20 (3), 557-569 (1998).
- Mochioka, N., Iwamizu, M. Diet of anguilloid larvae: leptocephali feed selectively on larvacean houses and fecal pellets. Marine Biology. 125 (3), 447-452 (1996).
- Sakaguchi, S. O., et al. Morphological identity of a taxonomically unassigned cytochrome c oxidase subunit i sequence from stomach contents of juvenile chum salmon determined using polymerase chain reaction. Fisheries Science. 83 (5), 757-765 (2017).
- Fenaux, R. The Biology of Pelagic Tunicates. Bone, Q. , Oxford University Press. 25-34 (1998).
- Sato, R., Tanaka, Y., Ishimaru, T. House production by Oikopleura dioica (Tunicata, Appendicularia) under laboratory conditions. Journal of Plankton Research. 23 (4), 415-423 (2001).
- Flood, R., Deibel, D. The Biology of Pelagic Tunicates. Bone, Q. , Oxford University Press. 105-124 (1998).
- Alldredge, A. Response of Marine Ecosystems to Global Change: Ecological Impact of Appendicularians. Gorsky, G., Youngbluth, M. J., Deibel, D. , Contemporaty Publishing International. 309-326 (2005).
- Katija, K., Sherlock, R. E., Sherman, A. D., Robison, B. H. New technology reveals the role of giant larvaceans in oceanic carbon cycling. Science Advances. 3 (5), 1602374(2017).
- Katija, K., Choy, C. A., Sherlock, R. E., Sherman, A. D., Robison, B. H. From the surface to the seafloor: How giant larvaceans transport microplastics into the deep sea. Science Advances. 3 (8), 1700715(2017).
- Hidaka, K. Species composition and horizontal distribution of the appendicularian community in waters adjacent to the Kuroshio in winter-early spring. Plankton and Benthos Research. 3 (3), 152-164 (2008).
- Bouquet, J. M., et al. Culture optimization for the emergent zooplanktonic model organism Oikopleura dioica. Journal of Plankton Research. 31 (4), 359-370 (2009).
- Nishida, H. Development of the appendicularian Oikopleura dioica: culture, genome, and cell lineages. Development, Growth & Differentiation. 50, 239-256 (2008).
- Martí-Solans, J., et al. Oikopleura dioica culturing made easy: A Low-Cost facility for an emerging animal model in Evo Devo. Genesis. 53 (1), 183-193 (2015).
- Holland, L. Z. Tunicates. Current Biology. 26 (4), 146-152 (2016).
- Delsuc, F., Brinkmann, H., Chourrout, D., Philippe, H. Tunicates and not cephalochordates are the closest living relatives of vertebrates. Nature. 439 (7079), 965-968 (2006).
- Seo, H. C., et al. Miniature genome in the marine chordate Oikopleura dioica. Science. 294 (5551), 2506(2001).
- Fredriksson, G., Olsson, R. The subchordal cells of Oikopleura dioica and O. albicans (Appendicularia, Chordata). Acta Zoologica. 72 (4), 251-256 (1991).
- Paffenhöfer, G. A. The cultivation of an appendicularian through numerous generations. Marine Biology. 22 (2), 183-185 (1973).
- Fenaux, R., Gorsky, G. Nouvelle technique d'élevage des appendiculaires. Rapports et Procés-Verbaux des Réunions-Commission Internationale pour l'Exploration Scientifique de la Mer Méditerranée. 29, 291-292 (1985).
- Fujii, S., Nishio, T., Nishida, H. Cleavage pattern, gastrulation, and neurulation in the appendicularian, Oikopleura dioica. Development Genes and Evolution. 218 (2), 69-79 (2008).
- Patry, W. L., Bubel, M., Hansen, C., Knowles, T. Diffusion tubes: a method for the mass culture of ctenophores and other pelagic marine invertebrates. PeerJ. 8, 8938(2020).
- Fenaux, R. The classification of Appendicularia (Tunicata): history and current state. Memoires de I'Institut oceanographique. , (1993).
- Shiga, N. Illustrated Guide to Marine Plankton in Japan. Chihara, M., Murano, M. , Tokai University Press. 1393-1414 (1997).
- Gorsky, G., Castellani, C. Marine Plankton: A practical guide to ecology, methodology, and taxonomy. Castellani, C., Edwards, M. , Oxford University Press. 599-606 (2017).
- Sato, R., Ishibashi, Y., Tanaka, Y., Ishimaru, T., Dagg, M. J. Productivity and grazing impact of Oikopleura dioica (Tunicata, Appendicularia) in Tokyo Bay. Journal of Plankton Research. 30 (3), 299-309 (2008).
- Nakamura, Y., Suzuki, K., Suzuki, S. Y., Hiromi, J. Production of Oikopleura dioica (Appendicularia) following a picoplankton 'bloom'in a eutrophic coastal area. Journal of Plankton Research. 19 (1), 113-124 (1997).
- Nakamura, Y. Blooms of tunicates Oikopleura spp. and Dolioletta gegenbauri in the Seto Inland Sea, Japan, during summer. Hydrobiologia. 385 (1-3), 183-192 (1998).
- Uye, S. I., Ichino, S. Seasonal variations in abundance, size composition, biomass and production rate of Oikopleura dioica (Fol)(Tunicata: Appendicularia) in a temperate eutrophic inlet. Journal of Experimental Marine Biology and Ecology. 189 (1-2), 1-11 (1995).
- Tsuchiya, K., et al. Phytoplankton community response and succession in relation to typhoon passages in the coastal waters of Japan. Journal of Plankton Research. 36 (2), 424-438 (2014).
- Lopez-Lopez, L., et al. Effects of typhoons on gelatinous carnivore zooplankton off Northern Taiwan. Cahiers de Biologie Marine. 53, 349-355 (2012).
- Ares, Á, et al. Extreme storm-induced run-off causes rapid, context-dependent shifts in nearshore subtropical bacterial communities. bioRxiv. , (2019).
- Torres-Águila, N. P., et al. Diatom bloom-derived biotoxins cause aberrant development and gene expression in the appendicularian chordate Oikopleura dioica. Communications Biology. 1 (1), 1-11 (2018).
- Troedsson, C., Frischer, M. E., Nejstgaard, J. C., Thompson, E. M. Molecular quantification of differential ingestion and particle trapping rates by the appendicularian Oikopleura dioica as a function of prey size and shape. Limnology and Oceanography. 52 (1), 416-427 (2007).
- Ouchi, K., Nishino, A., Nishida, H. Simple procedure for sperm cryopreservation in the larvacean tunicate Oikopleura dioica. Zoological Science. 28 (1), 8-11 (2011).
Przedruki i uprawnienia
