Ten protokół pozwala na przygotowanie przekrojów nasion zbóż (np. ryżu) do analizy morfologii bielma i granulek skrobi za pomocą skaningowej mikroskopii elektronowej.
Artykuł metodologiczny
Przekroje poprzeczne dojrzałego ryżu (Oryza sativa L.) Ziarna do obrazowania w skaningowej mikroskopii elektronowej z wykorzystaniem końcówek do pipet jako wspomagania immobilizacji
W tym artykule
Podsumowanie
Streszczenie
Granulki skrobi (SGs) wykazują różne morfologie w zależności od gatunku rośliny, szczególnie w bielmie z rodziny Poaceae. Fenotypowanie bielma można wykorzystać do klasyfikacji genotypów na podstawie morfotypu SG za pomocą analizy skaningowego mikroskopu elektronowego (SEM). SG można wizualizować za pomocą SEM, przecinając jądro (owocnia, warstwy aleuronowe i bielmo) i odsłaniając zawartość organelli. Obecne metody wymagają, aby ziarno ryżu zostało zatopione w żywicy z tworzywa sztucznego i pokrojone za pomocą mikrotomu lub osadzone w ściętej końcówce pipety i pocięte ręcznie za pomocą żyletki. Pierwsza metoda wymaga specjalistycznego sprzętu i jest czasochłonna, podczas gdy druga wprowadza nowy szereg problemów w zależności od genotypu ryżu. Szczególnie kredowe odmiany ryżu stanowią problem dla tego typu sekcji ze względu na kruchy charakter ich tkanki bielma. Przedstawiono technikę przygotowania półprzezroczystych i kredowych skrawków ziaren ryżu do mikroskopii, wymagającą jedynie końcówek pipet i ostrza skalpela. Przygotowanie skrawków w granicach końcówki pipety zapobiega pękaniu bielma ziaren ryżu (w przypadku fenotypów półprzezroczystych lub "szklistych") i kruszeniu się (w przypadku fenotypów kredowych). Za pomocą tej techniki można zaobserwować wzorzec komórek bielma i strukturę nienaruszonych SG.
Wprowadzenie
Granulki skrobi (SGs) wykazują różną morfologię w zależności od gatunku rośliny, szczególnie w bielmie rodziny Poaceae1,2. Fenotypowanie bielma można wykorzystać do klasyfikacji genotypów na podstawie fenotypu SG za pomocą skaningowej analizy mikroskopowej mikroskopu elektronowego. SG można wizualizować za pomocą skaningowej mikroskopii elektronowej (SEM) poprzez krojenie jądra i podważanie ścian komórkowych bielma2.
Celem tej techniki jest łatwe przygotowanie poprzecznych odcinków ziarna ryżu wyłącznie do szybkiej analizy SEM. Opracowanie tej techniki było motywowane koniecznością szybkiego podejścia do przekroju poprzecznego, w którym próbki są przygotowywane do mikroskopii SEM bezpośrednio przed wizualizacją przy użyciu minimalnego sprzętu.
Ta technika polega na włożeniu łuskanego ziarna ryżu do końcówki pipety w celu całkowitego unieruchomienia. Jest to szczególnie ważne podczas przekroju fenotypów kredowych ziaren ryżu, które są kruche i łatwo kruszą się pod ciśnieniem3. Kredowość jest niepożądaną cechą ryżu, ponieważ wpływa na wygląd jądra i powoduje, że jądro łatwo pęka podczas polerowania i mielenia3. Kredowość objawia się jako nieprzezroczysty obszar w przekroju poprzecznym jądra, który można zaobserwować gołym okiem; Na poziomie mikroskopowym kredowość charakteryzuje się małymi, luźno upakowanymi granulkami skrobi. Przyczyny kredowatego wyglądu mogą być genetyczne4,5 lub environmental6,7.
Przekroje nasion zbóż były tradycyjnie przygotowywane przy użyciu chemicznych metod mocowania i dzielenia po zatopieniu próbki w wosku parafinowym lub innej stałej matrycy4,8,9,10. W 2010 roku metoda Matsushima została wprowadzona jako sposób na uniknięcie skomplikowanego i czasochłonnego przygotowywania próbek ziaren ryżu4. Metoda ta polegała na włożeniu łuskanego ziarna ryżu do ściętej końcówki pipety. Końcówka jest utrzymywana nieruchomo przez trymer blokowy, a cienkie, częściowe skrawki bielma są zbierane za pomocą ręcznej żyletki. Inna szybka technika opracowana w 2016 roku pozwoliła na cienkie cięcie całej gamy suchych nasion, w tym odmian kredowych10. Metody te zmotywowały do opracowania prezentowanej tu szybkiej techniki.
Ta nowa technika jest odpowiednia dla badaczy, którzy chcą uzyskać nienaruszone przekroje poprzeczne ziaren ryżu do fenotypowania bielma i analizy morfologii skrobi za pomocą SEM.
Ten protokół stanowi adaptację metody ściętej końcówki pipety Matsushima4, z kilkoma godnymi uwagi modyfikacjami: (1) jądra nie są wchłaniane w żadnym momencie techniki; (2) Do przygotowania skrawków nie jest wymagany ani trymer blokowy, ani ultramikrotom. W tym badaniu zbadano odmianę "półprzezroczystą" typu dzikiego (Oryza sativa L. ssp. japonica cv. Nipponbare) oraz zmutagizowaną "kredową" linię Nipponbare (ssg1, ziarno skrobi poniżej normy1)4. Te dwie odmiany zostały wybrane do analizy, aby zademonstrować techniczne i wizualne różnice w przetwarzaniu półprzezroczystych i kredowych odcinków ryżu.
Protokół
1. Przygotowanie poprzecznego odcinka ryżu
- Usuń suche, nienaruszone ziarna, jak pokazano na Rysunek 1A.
- Poluzuj łuski i obłuskaj ziarna ryżu, mieląc je między dwoma płaskimi gumowymi korkami. W razie potrzeby usuń łuskane ziarna ryżu z wiechy.
- Umieść pojedyncze ziarno na płaskim gumowym korku na stole roboczym (Rysunek 1B). Upewnij się, że ten korek pozostaje nieruchomy.
- Użyj drugiego płaskiego gumowego korka (Rysunek 1C), aby zetrzeć jądro, przekręcając je do pierwszego gumowego korka, używając wystarczającego nacisku (Rysunek 1D). Usuń łuski z jądra, uważając, aby nie rozbić bielma. Usuń pozostałą łuskę za pomocą drobnych kleszczy. Pozbawione łuskania jądro jest pokazane w Rysunek 1E.
- Za pomocą drobnych kleszczyków włóż pojedyncze łuskane ziarno do plastikowej końcówki pipety (rozmiar 250 μl, jedno ziarno/końcówka) (Rysunek 1F). Upewnij się, że koniec zarodka ziarna jest skierowany w stronę (stożkowego) końca końcówki pipety (Rysunek 1G).
UWAGA: Włożenie jądra w ten sposób gwarantuje, że jądro będzie jak najściślej przylegać do końcówki pipety, ponieważ jądro jest węższe w kierunku bliższego końca. - Włóż drugą końcówkę pipety o pojemności 250 μl, aby wepchnąć ziarno do końcówki pipety i utrzymać jądro w bezruchu podczas cięcia, uważając, aby nie uszkodzić jądra ani nie zgiąć drugiej końcówki pipety (Rysunek 1H). Właściwy zespół 'teleskopu' jest pokazany w Rysunek 1I.
- Połóż zespół końcówek pipet płasko na stole roboczym i przytrzymaj ręcznie (Rysunek 1J). Drugą ręką użyj ostrego ostrza skalpela (nr 20), aby przeciąć środek ziarna i odciąć koniec końcówki pipety (Rysunek 1K). Za pomocą skalpela wytnij kawałki ziarna ryżu o grubości 1 mm (Rysunek 1L).
UWAGA: Sekcja jądra jest szczelnie zamknięta w pierścieniu z tworzywa sztucznego (Rysunek 1M). Średnią grubość przekroju dla trzech przykładowych genotypów przedstawiono w tabeli 1. Sekcje znacznie cieńsze niż 1 mm pękną lub rozpadną się. Ważne jest, aby zauważyć, z jakiej części jądra pochodzi każda sekcja, jeśli ten eksperyment jest przeprowadzany na kilku odmianach ryżu dla porównania, ponieważ morfologia skrobi różni się w całym bielmie klasy <= "xref">11.
2. Mikroskopia światła odbitego poprzecznych skrawków ryżu
- Za pomocą cienkich kleszczyków umieść poprzeczne kawałki ryżu (przygotowane w sekcji 1) na czarnym kawałku czarnego papieru o dużej grubości.
- Uzyskaj obrazy świetlne przekrojów poprzecznych Nipponbare za pomocą mikroskopu stereoskopowego z zamontowanymi gęsimi szyjami do ukośnego oświetlenia, jak pokazano na Rysunek 1N-S.
- Obserwuj morfologię bielma w co najmniej 10-krotnym powiększeniu.
UWAGA: Każde źródło epiświatła jest lepsze niż mikroskopia w jasnym polu, ponieważ skrawki uzyskane tą techniką nie są wystarczająco cienkie, aby światło mogło przez nie przejść.
3. Skaningowa mikroskopia elektronowa poprzecznych skrawków ryżu
- Umieść próbki na krążku węglowym przyklejonym do aluminiowego króćca i umieść na uchwycie na próbkę redukującą ładunek. Zdejmij plastikowy pierścień z mocowania końcówki pipety za pomocą drobnych kleszczyków, aby zapobiec przedostawaniu się tworzywa sztucznego do aparatu próżniowego SEM.
UWAGA: Obrazy komórek bielma, SG i subgranulek uzyskuje się za pomocą stacjonarnej maszyny SEM, która nie wymaga napylania próbek. - Obrazy można uzyskać za pomocą wielomodowego detektora elektronów wstecznie rozpraszających (BSE) o wysokiej czułości przy napięciu 10 kV.
Wyniki
Przekroje typu dzikiego Nipponbare (Rysunek 2A) oraz przekroje ssg1 (Rysunek 2B) badano przy trzech powiększeniach: 260x, 920x i 420x. Technika ta pozwala na przygotowanie przekrojów o jakości wystarczającej do obserwacji całej komórki endospermy (Rysunek 3A), złożonych ziaren skrobi (Rysunek 3B) oraz poszczególnych podziaren (Rysunek 3C). Ziarna z łuską wymagają dłuższego czasu obróbki niż ziarna polerowane, ponieważ przed wykonaniem przekrojów suche łuski muszą zostać usunięte poprzez ścieranie. Ziarna mączyste również obrabia się dłużej niż polerowane ziarna przezroczyste, ponieważ należy zachować ostrożność, aby nie roztrzaskać ziarna podczas sekcjonowania. Prawidłowo przygotowany przekrój ryżu powinien mieć grubość około 0,9 mm (Tabela 1), przy minimalnym lub żadnym roztrzaskaniu endospermy (Rysunek 1N) oraz nienaruszonych warstwach okrywy nasiennej i aleurony (Rysunek 1O). Nieprawidłowe umieszczenie skalpela na końcówce pipety podczas sekcjonowania może prowadzić do powstania przekrojów z „odpryskami” (Rysunek 1P). Podobnie, obrazy w jasnym polu optycznym optymalnych przekrojów poprzecznych ssg1 (Rysunek 1Q) wykazały nienaruszone warstwy endospermy, okrywy nasiennej i aleurony, dostępne do wizualizacji (Rysunek 1R). Pęknięty przekrój ziarna mączystego (Rysunek 1S) może być nadal przydatny do wizualizacji, jeśli jedynym celem jest obserwacja SG, jednak wzorzec komórek endospermy nie będzie widoczny. Pęknięty przekrój może być trudny do analizy. Większe ścinanie ścian komórek endospermy zaobserwowano u typu dzikiego Nipponbare, ponieważ komórki są w nim ciaśniej upakowane i mniej kruche niż w ziarnach ssg1. W przekrojach ssg1 nie zaobserwowano ścinania komórek endospermy, a złożone ziarna skrobi pozostały nienaruszone.
Rycina S1 wykazuje wiarygodność wyników uzyskanych przy użyciu techniki „teleskopu” do przecinania ziaren ryżu. Linie ryżu zidentyfikowane jako wytwórcy przezroczystych ziaren – linia hybrydowa dzikiego typu o wysokiej zawartości skrobi opornej (RS) Xieyou 7954 (Oryza sativa L. ssp. indica)12,13,14 (Rycina S1A) oraz mutant RS1 indukowany kobaltem13,15 (Rycina S1B) wytworzyły przekroje, przez które światło było widoczne pod stereomikroskopem. Odpowiadające im obrazy SEM wykazały, że linie te wykazują „normalny” fenotyp endospermy ryżu: ściśle upakowane, wielościenne ziarna skrobi. Wytwórcy mączystych ziaren, odmiana komercyjna Yi-Tang16 (Rycina S1C) oraz RS413, mutant RS115 (Rycina S1D), wykazywały białe, nieprzezroczyste przekroje ziaren. Odpowiadające im obrazy SEM ukazały morfologię wyraźnie różną od linii tła RS o przezroczystych ziarnach: ziarna skrobi były okrągłe i luźno upakowane. Typ dziki Xiushui 1 (Oryza sativa L. ssp. japonica) (Rycina S1E) oraz jego mutant KMD1 (Kemingdao1), który ekspresuje gen Cry1Ab w celu zahamowania żerowania owadów17,18,19 (Rycina S1F), wykazywały przekroje i morfotypy endospermy podobne do przezroczystych linii RS.
Przedstawiona tutaj technika jest optymalna do przygotowywania próbek ziaren ryżu typu mączystego do analizy fenotypowej, ale zapewnia również zalety przy przekrojach fenotypów półprzezroczystych ziaren ryżu20: krojenie próbek przy użyciu nacisku od góry zmniejsza ryzyko roztrzaskania endospermy i przemieszczenia tkanek. Próbki można łatwo przygotować w ciągu kilku sekund (Tabela 2). W celu przetestowania skuteczności tej techniki przeanalizowano wiele genotypów (Tabela 3). Jak pokazano na Rysunku S2, technikę tę można zastosować do nasion innych gatunków. Modelowa jedliścienna roślina Brachypodium distachyon produkuje bardzo twarde nasiona zawierające wyłącznie skrobię z granul B21, którym brakuje puroindoliny A – białka nadającego miękkość granulom skrobi2. Mimo to możliwe było uzyskanie nienaruszonego przekroju poprzecznego (Rysunek S2A). Uzyskanie nienaruszonego przekroju poprzecznego z miękkiej białej pszenicy ozimej (SWWW) było trudne, ale możliwe do wykonania (Rysunek S2B). Nasiona SWWW zawierają dużo puroindoliny A i są duże w porównaniu z nasionami B. distachyon oraz ziarnami ryżu. Nasiona te często kruszą się podczas przekrawania przy użyciu zestawu teleskopowego.
| Genotyp | Średnia szerokość przekroju (µm) przy użyciu zestawu teleskopowego | Średnia szerokość przekroju (µm) krojenie ręczne |
| Nipponbare (łuskowany) | 971.7 ± 152.4ab | 1059.571 ± 394.2ab |
| Xieyou 7954 | 825.1 ± 128.3b | 1306.187 ± 179.1a |
| RS4 | 910.6 ± 165.0ab | 1126.694 ± 395.3ab |
| Średnie oznaczone tymi samymi literami nie różnią się istotnie statystycznie przy poziomie P < 0,01 przy użyciu jednoczynnikowej analizy wariancji (ANOVA) i testu Tukeya (n = 10). Analizy statystyczne przeprowadzono z wykorzystaniem oprogramowania JMP 15. | ||
Tabela 1: Średnia grubość przekroju ziarna.
| Genotyp | Średni czas (s)* |
| Nipponbare (łuskowany) | 14,7 ± 1,36a |
| Xieyou 7954 | 9,81 ± 0,98b |
| RS4 | 1,9 ± 1,28c |
| *Z wykorzystaniem zestawu teleskopowego. | |
| Średnie oznaczone tymi samymi literami nie różnią się istotnie przy P < 0,01 z zastosowaniem jednoczynnikowej analizy wariancji (ANOVA) i testu Tukeya (n = 10). Analizy statystyczne wykonano przy użyciu oprogramowania JMP 15. | |
Tabela 2: Średni czas przygotowania próbek.
| Genotyp | Wstęp | Jakość |
| Nipponbare | Typ dziki | półprzezroczysty |
| Ziarno skrobi poniżej standardu1 (ssg1) | Nipponbare | Kredowy |
| Skrobia oporna (RS) Xieyou 7954 | Typ dziki | Przeźroczysty |
| RS1 | Xieyou 7954 | Przeźroczysty |
| RS4 | RS1 | Kredowy |
| Yi-Tang, „Nowe Życie”, marka Lujuren | Xieyou 7954 | Kredowy |
| Xiushui 1 | Typ dziki | Przeźroczysty |
| Kemingdao1 (KMD1) | Xiushui 1 | Półprzezroczysty |
Tabela 3: Genotypy ryżu przebadane w niniejszym badaniu.
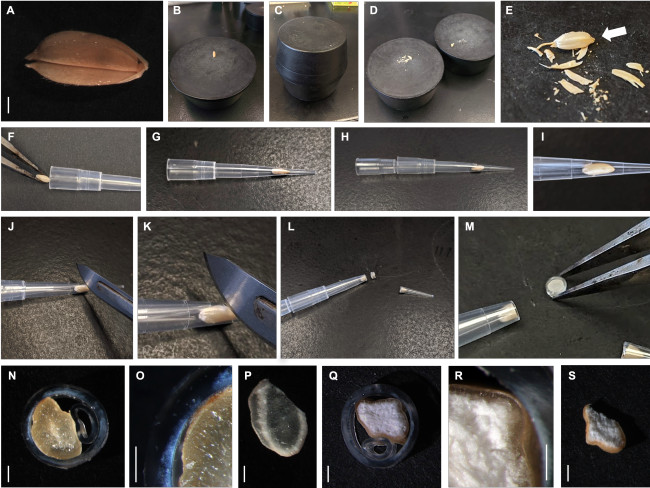
Rycina 1: Przygotowanie przekrojów poprzecznych ryżu. (A) Ziarno typu dzikiego Nipponbare z nienaruszoną łuską. (B). Ziarno umieszczone na płaskim gumowym korku o średnicy czterech cali. (CŁuski usunięto poprzez rozcieranie ziarna pomiędzy dwoma przeciwległymi korkami gumowymi.D) Łuska została oddzielona od ziarna ryżu. (E) Zbliżenie ziarna ryżu oczyszczonego. Wskazano koniec z zarodkiem. (F) Wprowadzenie ziarna do końcówki pipety za pomocą precyzyjnej pincety. (G) Ziarno zostało umieszczone w dystalnej części końcówki pipety. (H) Wprowadzenie drugiego końcówki do pipety w celu unieruchomienia ziarna do sekcjonowania (zespół „teleskopowy”). (IZiarno ryżu zostało ściśle dopasowane do dystalnego końca końcówki pipety.J) Przekroje ziarna ryżu w obrębie skupiska. (K) Zbliżenie na wycięty przekrój. (L) Odcinek jądra zamknięty w plastikowym pierścieniu. (MZbliżenie przekroju poprzecznego.N) Przekrój poprzeczny typu dzikiego Nipponbare. (O) Zbliżenie endospermy w przekroju typu dzikiego Nipponbare. (P) Słaba, suboptymalna sekcja ziarna typu dzikiego Nipponbare. (Q) Przekrój poprzeczny mutanta Nipponbare ssg14. (R) Zbliżenie endospermy wewnątrz ssg1 sekcja. (S) Słaba, suboptimalna sekcja ssg1Słupek (panele A, N-S) = 1 mm. Całe ziarna ryżu oraz ich fragmenty obrazowano za pomocą stereomikroskopu z kamerą z cyfrowym zoomem i lampami na tzw. gęsiej szyi. Aby wyświetlić powiększoną wersję tej ryciny, kliknij tutaj.
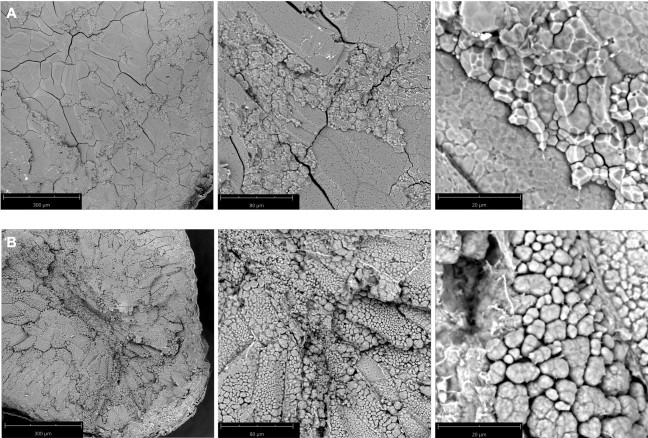
Rysunek 2: Obrazy SEM poprzecznych przekrojów ziarna. (A) Typ dziki Nipponbare, odmiana półprzezroczysta. Złożone ziarna skrobi były ściśle ze sobą złączone; (B) mutant Nipponbare ssg14, fenotyp kredowy. Złożone ziarna skrobi były luźno upakowane i nie wykazywały cech cementacyjnych charakterystycznych dla morfotypu skrobi typu dzikiego Nipponbare. Powiększenie od lewej do prawej: 260x, 920x i 420x. Długość paska skali wskazano na panelach. Kliknij tutaj, aby wyświetlić powiększoną wersję tej figury.
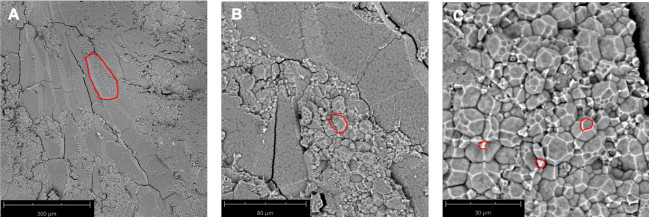
Rysunek 3: Anatomia mikroskopowa w SEM poprzecznego przekroju ziarna Xiushui 1. (A) Pojedyncza komórka endospermy zaznaczona jest czerwonym obrysem. Powiększenie 260x. (B) Złożone ziarno skrobi zostało obramowane na czerwono. Powiększenie 920x. (C) Wiele podziarna skrobi zaznaczono czerwonym kolorem. Powiększenie 250x. Długości pasków skali są podane w panelach. Prosimy o kliknięcie tutaj, aby wyświetlić powiększoną wersję tej figury.
Rycina S1: Przekroje poprzeczne innych genotypów ryżu przygotowane do SEM przy użyciu tej techniki. (A) Skrobia oporna (RS) Xieyou 795412. (B) RS1, przejrzysty mutant 7954 o wysokiej zawartości RS13. (C) RS4, mączysty mutant RS115. (D) Yi-Tang, odmiana komercyjna ryżu o wysokiej zawartości amylozy16. (E) Xiushui 1. (F) KMD1 (Kemingdao1)17,18,19. Powiększenie 10x dla obrazów w polu jasnym. Biały pasek = 1 mm. Powiększenie 250x dla obrazów SEM. Długości pasków są wskazane na panelach. Kliknij tutaj, aby pobrać tę rycinę.
Rysunek S2: Technika jest przydatna dla innych nasion. (A) Przekrój poprzeczny nasion trawienicy dwukłosowej (Brachypodium distachyon L. accession Bd21). (B) Przekrój poprzeczny nasion miękkiej białej pszenicy ozimej (Triticum aestivum L. cv. Augusta). Pole jasne, powiększenie 20x. Pasek = 1 mm. Prosimy kliknąć tutaj, aby pobrać ten rysunek.
Dyskusja
Przedstawiona tutaj technika reprezentuje szybkie, proste i chętne podejście do przygotowania poprzecznych przekrojów poprzecznych ryżu do wizualizacji SEM na pulpicie. Ta technika cięcia pozwala na szybką obserwację struktury bielma, kształtu, wielkości i wzoru komórek bielma, granulek złożonych i morfologii skrobi. Do celów fenotypowania bielma i badań przesiewowych plazmy zarodkowej kluczowe znaczenie ma uzyskanie całego przekroju poprzecznego ziarna ryżu 4,23,24. Bardzo ważne jest, aby umieścić jądro w całości w końcówce pipety, aby zapobiec naciskowi ostrza skalpela do zmuszenia bielma do kruszenia się lub pękania. Pod warunkiem, że zespół "teleskopu" jest prawidłowo skonstruowany, próbki można przygotować do wizualizacji w ciągu 15 sekund (tabela 2) przy użyciu materiałów już dostępnych w typowych warunkach laboratoryjnych. Technika ta ma zastosowanie do przekroju poprzecznego dowolnego elipsoidalnego ziarna o średnicy około czterech milimetrów w najszerszym miejscu. Nasiona trawy modelowej Brachypodium distachyon (ryc. S2A) mogą być podobnie podzielone, ale nie pozostają zamknięte w pierścieniu. Większe nasiona, takie jak pszenica, łatwo pękają i wymagają ostrożności podczas krojenia (rysunek S2B).
Istnieje jednak kilka ograniczeń przedstawionej tutaj techniki. Skrawki uzyskane przy użyciu tej techniki nie są wystarczająco cienkie, aby światło mogło przez nie przejść, co uniemożliwia stosowanie tej techniki do mikroskopowych podejść opartych na świetle przechodzącym, takich jak jasne pole (maksymalna grubość próbki 500 μm dla sekcji ziaren ryżu25) i transmisyjna mikroskopia elektronowa (TEM) (maksymalna grubość próbki 500 nm26). Użycie końcówki do pipet jako "matrycy" do krojenia również ogranicza wielkość nasion, które można podzielić za pomocą tej techniki. Konieczne byłoby dalsze rozwiązywanie problemów w celu dostosowania tej techniki do gatunków bardzo różniących się od ryżu, a rozmiar "matrycy" jest ograniczony rozmiarem końcówek pipet dostępnych w sprzedaży.
Kolejną wyraźną zaletą, jaką zapewnia ta technika, jest jakość próbek, które można wyprodukować z kredowych ziaren ryżu o fenotypie. Warto zauważyć, że nawet badanie Matsushima przyznało, że trudno było uzyskać przekroje czynne przy użyciu tej konkretnej metody dla kredowych fenotypów4, jak to zostało powtórzone w tym badaniu w celu porównania (Rysunek 1S). W ich przypadku konieczne stało się chemiczne utrwalenie próbek ryżu kredowego i zatopienie ich w żywicy w celu cięcia. Nowa technika, w połączeniu z obrazowaniem SEM za pomocą komputerów stacjonarnych, pozwala badaczowi na łatwe przygotowanie przekrojów poprzecznych ziaren ryżu do mikroskopii z większą spójnością niż bez wspomagania unieruchomienia (Tabela 3).
W nowej erze fenomiki i metabolomiki ważne jest monitorowanie zmutagenizowanych linii i bibliotek znakowanych transpozonami, aby lepiej zrozumieć funkcję i znaczenie skrobi w nasionach. Ponadto w Międzynarodowym Banku Genów Ryżu znajduje się ponad 130 000 akcesji ryżu27. Technika szybkiego fenotypowania nasion, taka jak ta przedstawiona tutaj, przyspieszyłaby klasyfikację i pobieranie próbek pod kątem jakości odżywczej28. Wreszcie, technika ta może być przydatna w świetle narastających skutków zmiany klimatu. Sezonowy stres związany z wysoką temperaturą podczas napełniania ziarna został już zidentyfikowany jako główna przyczyna kredowości6, ale ostatnie badania wskazują na wzrost temperatury na świecie ze wzrostem kredowości plonów ryżu 7,29. Takie przyspieszone fenotypowanie bielma może pomóc w uzyskaniu szerokiego obrazu skutków wzrostu globalnych temperatur w rolnictwie.
Oświadczenia
Autorzy nie mają nic do ujawnienia.
Podziękowania
Autorzy są wdzięczni Systems for Research (SFR Corp.) za korzystanie z ich instrumentu SEM Phenom ProX Desktop, a także za pomoc techniczną udzieloną przez Marię Pilarinos (Systems for Research (SFR) Corp.) i Chloë van Oostende-Triplet (Cell Biology and Image Acquisition Core Facility, Faculty of Medicine, University of Ottawa). Finansowanie zostało zapewnione przez Fundusz Innowacji Niskoemisyjnych (LCIF) z Ministerstwa Rozwoju Gospodarczego, Tworzenia Miejsc Pracy i Handlu rządu Ontario oraz Proteins Easy Corp.
Materiały
| Nazwa | Firma | Numer katalogowy | Komentarze |
|---|---|---|---|
| JMP 15 | SAS | N/A | /A |
| Leit Samoprzylepne zakładki węglowe 12 mm (opakowanie 100 szt.) | Agar Scientific | AGG3347N | N/A |
| Phenom Pro Desktop SEM | Thermo Scientific | PHENOM-PRO | N/A |
| Końcówki do pipet RC UNV 250 i micro; L | Rainin | 17001116 | N/A |
| SEM Pin Stub & Oslash; Górna średnica 12,7, trzpień standardowy, aluminium | Micro do Nano | 10-002012-50 | N/A |
| Cienkie końcówki do mikropreparacji Shandon Kleszczyki do kciuków, cienkie końcówki, 12,7 cm | Thermo Scientific | 3120019 | N/A |
| Ostrze skalpela Shandon nr 20, sterylne, 4,5 cm | Thermo Scientific | 28618256 | N/A |
| Rękojeść ostrza skalpela ze stali nierdzewnej Shandon | Thermo Scientific | 5334 | N/A |
| Mikroskop stereoskopowy Zeiss V20 Discovery | Zeiss | N/A N | /A |
Bibliografia
- James, M. G., Denyer, K., Myers, A. M. Starch synthesis in the cereal endosperm. Current Opinion in Plant Biology. 6 (3), 215-222 (2003).
- Shapter, F. M., Henry, R. J., Lee, L. S. Endosperm and starch granule morphology in wild cereal relatives. Plant Genetic Resources. 6 (2), 85-97 (2008).
- Ashida, K., Iida, S., Yasui, T. Morphological, physical, and chemical properties of grain and flour from chalky rice mutants. Cereal Chemistry. 86 (2), 225-231 (2009).
- Matsushima, R., Maekawa, M., Fujita, N., Sakamoto, W. A rapid, direct observation method to isolate mutants with defects in starch grain morphology in rice. Plant and Cell Physiology. 51 (5), 728-741 (2010).
- Zhao, X., et al. Identification of stable QTLs causing chalk in rice grains in nine environments. Theoretical and Applied Genetics. 129 (1), 141-153 (2016).
- Nagato, K., Ebata, M. Effects of high temperature during ripening period on the development and the quality of rice kernels. Japanese Journal of Crop Science. 34 (1), 59-66 (1965).
- Zhao, X., Fitzgerald, M. Climate change: implications for the yield of edible rice. PLoS One. 8 (6), 66218(2013).
- Zhao, Z. K., Mu, T. H., Zhang, M., Richel, A. Effects of high hydrostatic pressure and microbial transglutaminase treatment on structure and gelation properties of sweet potato protein. LWT - Food Science and Technology. 115, 108436(2019).
- Feiz, L., et al. Puroindolines co-localize to the starch granule surface and increase seed bound polar lipid content. Journal of Cereal Science. 50 (1), 91-98 (2009).
- Zhao, L., Pan, T., Guo, D., Wei, C. A simple and rapid method for preparing the whole section of starchy seed to investigate the morphology and distribution of starch in different regions of seed. Plant Methods. 14 (1), 16(2018).
- Zhao, L., Pan, T., Cai, C., Wang, J., Wei, C. Application of whole sections of mature cereal seeds to visualize the morphology of endosperm cell and starch and the distribution of storage protein. Journal of Cereal Science. 71, 19-27 (2016).
- Li, C., Dong, S., Li, G., Yuan, G., Dong, W. Breeding and application of the new combination of hybrid rice "Xieyou 7954". Journal of Zhejiang University (Agriculture and Life Sciences). 19 (3), 179-181 (2002).
- Shu, X., Jia, L., Ye, H., Li, C., Wu, D. Slow digestion properties of rice different in resistant starch. Journal of Agricultural and Food Chemistry. 57 (16), 7552-7559 (2009).
- Zhou, H., et al. Critical roles of soluble starch synthase SSIIIa and granule-bound starch synthase Waxy in synthesizing resistant starch in rice. Proceedings of the National Academy of Sciences. 113 (45), 12844-12849 (2016).
- Yang, C. Z., et al. Starch properties of mutant rice high in resistant starch. Journal of Agricultural and Food Chemistry. 54, 523-528 (2006).
- Zhou, Y., Zou, Y., Jiang, Y., Li, B. Detection methods for resistance starch content of Yi-Tang rice and optimization of pretreatment. Food Science and Biotechnology. 36, 416-419 (2017).
- Cheng, X., Sardana, R., Kaplan, H., Altosaar, I. Agrobacterium-transformed rice plants expressing synthetic cryIA(b) and cryIA(c) genes are highly toxic to striped stem borer and yellow stem borer. Proceedings of the National Academy of Sciences of the United States of America. 95 (6), 2767-2772 (1998).
- Liu, H., et al. Rapid detection of P-35S and T-nos in genetically modified organisms by recombinase polymerase amplification combined with a lateral flow strip. Food Control. 107, 106775(2020).
- Shu, Q., et al. Transgenic rice plants with a synthetic cry1Ab gene from Bacillus thuringiensis were highly resistant to eight lepidopteran rice pest species. Molecular Breeding. 6 (4), 433-439 (2000).
- Lisle, A. J., Martin, M., Fitzgerald, M. A. Chalky and translucent rice grains differ in starch composition and structure and cooking properties. Cereal Chemistry. 77 (5), 627-632 (2000).
- Chen, G., et al. Dynamic development of starch granules and the regulation of starch biosynthesis in Brachypodium distachyon: comparison with common wheat and Aegilops peregrina. BMC Plant Biology. 14 (1), 198(2014).
- Giroux, M. J., Morris, C. F. Wheat grain hardness results from highly conserved mutations in the friabilin components puroindoline a and b. Proceedings of the National Academy of Sciences of the United States of America. 95 (11), 6262-6266 (1998).
- Matsushima, R., Hisano, H. Imaging amyloplasts in the developing endosperm of barley and rice. Scientific Reports. 9, 3745(2019).
- Matsushima, R., et al. Amyloplast-localized SUBSTANDARD STARCH GRAIN4 protein influences the size of starch grains in rice endosperm. Plant Physiology. 164 (2), 623-636 (2014).
- Monjardino, P., et al. Development of flange and reticulate wall ingrowths in maize (Zea mays L.) endosperm transfer cells. Protoplasma. 250 (2), 495-503 (2013).
- Tizro, P., Choi, C., Khanlou, N. Sample preparation for transmission electron microscopy. Methods in Molecular Biology. 1897, 417-424 (2019).
- International Rice Genebank. , Available from: www.irri.org (2018).
- Liu, Q. H., Zhou, X. B., Yang, L. Q., Li, T. Effects of chalkiness on cooking, eating and nutritional qualities of rice in two indica varieties. Rice Science. 16 (2), 161-164 (2009).
- Morita, S., Wada, H., Matsue, Y. Countermeasures for heat damage in rice grain quality under climate change. Plant Production Science. 19 (1), 1-11 (2016).
Przedruki i uprawnienia
